本文介绍了一系列检测方法,用于独立于哺乳动物细胞消耗分子氧能力之外直接测量其线粒体功能。
本文内容
摘要
摘要
线粒体电子传递链(ETC)中的电子流动在哺乳动物细胞中支持多种生物合成、生物能量及信号传导功能。随着氧气(O₂)2)是哺乳动物电子传递链(ETC)中最普遍的末端电子受体,O2 消耗速率常被用作线粒体功能的替代指标。然而,新兴研究表明,这一参数并不总能准确反映线粒体功能,因为在缺氧条件下,延胡索酸可作为替代性电子受体以维持线粒体功能。本文汇编了一系列实验方案,使研究人员能够独立于氧气消耗来测量线粒体功能2 消耗速率。这些检测方法在研究缺氧环境下线粒体功能时尤为有用。具体而言,我们描述了测量线粒体ATP生成的方法, 从头合成 嘧啶生物合成、复合体I介导的NADH氧化以及超氧化物生成。结合经典的呼吸测定实验,这些正交且经济的检测方法将为研究人员提供其感兴趣体系中线粒体功能的更全面评估。
引言
线粒体功能是衡量细胞健康的关键指标,因为它维持着哺乳动物细胞中重要的生物合成、生物能量和信号传导功能1。绝大多数线粒体功能依赖于电子传递链(ETC)中的电子传递,而ETC中电子传递的障碍会导致严重的线粒体疾病2。ETC由一系列嵌入线粒体内膜的氧化还原(redox)反应组成,这些电子转移反应释放的自由能可用于驱动ATP合成、产热等生理过程、de novo嘧啶生物合成等生物合成途径,以及NADH等辅因子氧化还原状态的平衡。ETC复合物I和 III会产生活性氧(ROS)3,4,5,进而调控HIF、PI3K、NRF2、NFκB和MAPK等关键信号通路6。因此,ETC中电子传递的测量指标通常被用作评估哺乳动物细胞线粒体功能的替代参数。
呼吸测定实验常用于测量哺乳动物细胞中的线粒体功能。由于O2 是哺乳动物电子传递链(ETC)中最普遍的末端电子受体,其还原程度常被用作评估线粒体功能的指标。然而,越来越多的证据表明,哺乳动物线粒体可利用延胡索酸作为电子受体,以维持依赖电子传递链的功能,包括 从头合成 嘧啶生物合成7,NADH 氧化7以及硫化氢的解毒8因此,在某些情况下,尤其是在缺氧环境中,氧气的测量2 耗氧率(OCR)并不能精确或准确地反映线粒体功能。
在此,我们概述一系列可独立于氧消耗率(OCR)来测定线粒体功能的实验方法。我们提供了直接测定由复合物I介导的NADH氧化以及由二氢乳清酸脱氢酶介导的 从头合成 嘧啶生物合成、复合体V依赖性ATP合成、琥珀酸脱氢酶(SDH)复合体的净反应方向性以及线粒体来源的活性氧(ROS)。这些检测旨在用于培养的哺乳动物细胞,尽管其中许多方法可经调整后用于研究线粒体功能。 体内 值得注意的是,本方案中描述的检测方法相较于氧消耗率(OCR)能更直接地测量线粒体功能。此外,这些方法可在低氧条件下评估线粒体功能,而在低氧环境中,OCR 并不能作为有效的测量指标。综上所述,将这些检测方法与经典的呼吸测定实验相结合,将为研究人员提供对哺乳动物细胞线粒体功能更为全面的评估。
方案
1. 增殖实验以检测复合物I、二氢乳清酸脱氢酶(DHODH)和复合物V的活性
- 用于增殖检测的细胞接种
注意:本实验方案使用从ATCC商业购买的人骨肉瘤细胞系143B。该细胞系的使用遵循本单位已批准的机构生物安全委员会(IBC)方案的指导原则。- 从组织培养箱中取出培养板,吸除培养板中的培养基,并用1×磷酸盐缓冲液(PBS)洗涤,以去除残留的培养基。吸除PBS后,加入0.05%–0.25%胰蛋白酶覆盖培养皿,使细胞从培养板底部脱落。
- 等待3-5分钟,使胰蛋白酶将细胞从培养板上消化下来,然后加入10 mL含10%胎牛血清(FBS)的所需培养基以终止胰蛋白酶反应。
- 将细胞收集至锥形管中,以 1,000 × g 离心5分钟以收集细胞。
- 吸出管中的培养基,注意不要扰动沉淀。用完全培养基重悬沉淀。
- 计数细胞,并计算在6孔板中接种10,000至25,000个细胞所需的体积。
注意:每种细胞系均需优化接种细胞数量。理想的实验开始时汇合度约为10%,实验结束时汇合度约为80%。 - 将细胞移液至6孔板中,每孔加入2 mL完全培养基。于实验用培养条件处理前静置培养24 h。
注意:每种条件至少设置三个重复孔,并准备足够数量的孔用于检测未处理对照组、抑制剂处理对照组、未处理实验组以及抑制剂处理实验组。
- 通过增殖评估复合物V活性的培养基更换
注意:在含半乳糖培养基中增殖的细胞依赖于复合物V活性进行ATP合成9,10与葡萄糖不同,葡萄糖通过糖酵解可净生成两个ATP,而半乳糖则不产生ATP,迫使细胞依赖复合体V进行ATP合成(图1复合物V抑制剂寡霉素用作对照。- 制备含10 mM葡萄糖的培养基(参见 表1).
- 制备含10 mM半乳糖的培养基(参见 表1).
- 将每个孔中的培养基更换为含葡萄糖的DMEM或含半乳糖的DMEM。向相应孔中加入5 µM寡霉素(复合体V抑制剂),向未处理孔中加入等体积的DMSO。寡霉素储存液为10 mM,溶于DMSO。将培养板放回组织培养孵箱中培养2天。
- 通过增殖评估复合体 I 活性的培养基更换
注意:在无丙酮酸盐培养基中增殖的细胞对复合体 I 活性有更高的依赖性11,12没有丙酮酸时,培养的细胞需要复合体I来促进大部分NADH重新氧化为NAD⁺+ (图2复合物 I 抑制剂鱼藤酮用作对照。- 配制不含丙酮酸钠的DMEM培养基,添加10% FBS和1%青霉素-链霉素。
- 配制1 M的丙酮酸溶液(参见 表1).
- 将每个孔中的培养基更换为无丙酮酸培养基或含丙酮酸培养基。向处理孔中加入2 µM鱼藤酮(复合物I抑制剂),向未处理孔中加入等体积的DMSO。鱼藤酮储存液为25 mM,溶于DMSO。将培养板放回组织培养孵箱中培养2天。
- 通过细胞增殖评估 DHODH 活性时的培养基更换
注意:在无尿苷培养基中增殖的细胞需要二氢乳清酸脱氢酶(DHODH)活性11,12,13. 在无外源尿苷的情况下,培养的细胞通过以下途径合成嘧啶 从头合成 通路。DHODH抑制剂brequinar用作对照。- 配制不含尿苷的DMEM,添加10% FBS和1%青霉素-链霉素。
- 配制10 mg/mL尿苷储备液,然后制备100 µg/mL尿苷培养基(参见 表1).
- 将每孔中的培养基更换为无尿苷培养基或含尿苷培养基。向处理组孔中加入5 µM的brequinar(DHODH抑制剂),向未处理组孔中加入等体积的DMSO。brequinar储存液为10 mM,溶于DMSO。将培养板放回组织培养孵箱中培养2天。
- 细胞增殖实验中的细胞计数
- 所有实验均需每2天更换一次培养基。若培养基颜色变黄,应增加换液频率。细胞培养时间最长不超过7天,若任一孔出现过度生长现象,应立即终止实验。当细胞融合度超过80%时,视为过度生长。
- 吸弃培养基,用1×PBS洗涤,然后在孔底部加入0.25%胰蛋白酶(6孔板每孔500 µL)。
- 等待5分钟,直至细胞从培养皿上脱落。在显微镜下观察确认。
- 用含10% FBS的1 mL完全DMEM终止胰蛋白酶反应。
- 用移液器上下吹打以分散细胞团块。
- 使用等渗缓冲液为库尔特计数杯加样,每杯加入10 mL(每孔使用一杯)。在细胞计数仪上计数细胞,并记录数据。若读数单位为每毫升细胞数(cells/mL),则将记录值乘以1.5,得到每孔细胞总数。
注意:如果实验室没有库尔特计数器,可使用其他细胞计数方法,例如血细胞计数板。
2. 使用13C4-天冬氨酸稳定同位素示踪结合液相色谱-质谱分析检测DHODH活性
- 13C4贴壁细胞中的天冬氨酸稳定同位素示踪
注意:可通过测量掺入量直接监测 DHODH 活性 13C4-天冬氨酸进入 13C3-UMP。Brequinar 用作 DHODH 活性对照(图3)。所得到的水平 13C3-UMP 是 DHODH 活性的检测指标。- 在6孔板中接种250,000至500,000个细胞,使次日细胞融合度达到75%。
- 配制250 mM的储备液 13C4-天冬氨酸和 10 mM 13C4-天冬氨酸培养基(参见 表1).
- 更换每孔中的培养基为含有 10 mM 的培养基 13C4-天冬氨酸。孵育适当小时数,以达到标记目标细胞的稳态。
注:稳态定义为标记代谢物百分比随时间推移达到平台期的时间范围14对于143B骨肉瘤细胞, 13C4-天冬氨酸在8小时达到稳态。最佳实践是在实验前通过使用目标稳定同位素进行时间进程实验来确定该时间范围。
- 贴壁细胞中代谢物的提取
- 开始前,准备一桶干冰,并配制80%的HPLC级甲醇水溶液(使用HPLC级水)。将该缓冲液在−80 °C冰箱中预冷过夜,或直接置于干冰上冷却。
- 每次从培养箱中取出一块培养板,吸去孔中的培养基,用1×PBS洗涤2次。进入下一步前,彻底清除孔中残留的PBS。
注意:吸取液体时应倾斜培养板,并将移液枪头沿培养皿壁操作,以防止破坏贴壁细胞。 - 将培养板置于干冰上,立即向每孔加入800 µL色谱级甲醇(MeOH)与色谱级水按80:20体积比组成的溶液。
- 将培养板置于 −80 °C 超低温冰箱中孵育至少 15 分钟,以促进细胞裂解。
注意:此时可从培养箱中取出下一块培养板,并重复步骤 2.2.1–2.2.4。依次操作,直至所有培养板均置于 −80 °C 超低温冰箱中孵育。 - 从冷冻机中每次取出一块培养板,用细胞刮在干冰上刮取每个孔,将裂解液转移至1.5 mL微量离心管中。将试管保持在干冰上,直至进行下一步操作。
- 将所有试管在4 °C下涡旋10分钟,然后在4 °C下以最大速度(至少17,000 × g).
- 将上清液转移至1.5 mL微量离心管中,在配备−105 °C冷阱的4 °C真空浓缩仪中,于高真空条件下浓缩约6小时,或直至样品完全蒸发。裂解液干燥后,将代谢物沉淀物于−80 °C保存,待进行液相色谱-质谱联用(LCMS)分析前再行处理。
- 液相色谱-质谱法(LC-MS)测定极性代谢物
注意:任何能够检测天冬氨酸及其中间产物的色谱与质谱工作流程均可 从头合成 嘧啶生物合成,UMP 即可满足14.- 将干燥的样品沉淀置于冰上,加入100 µL HPLC级水,4 °C下涡旋振荡10分钟,以备LCMS分析。
- 在 4 °C 条件下以最大速度(至少 17,000 × g)离心样品 10 分钟 g)并将25 µL转移至每个LC-MS小瓶中。
- 向液相色谱-质谱联用系统注入2 µL裂解液。以下为一种常用的方法:
- 准备 流动相A 由20 mM碳酸铵(LC-MS级)和0.1%氢氧化铵(LC-MS级)溶于LC-MS级水中组成。
- 选择色谱纯乙腈(LC-MS级)作为 流动相B.
- 用于色谱分析,选择一根5 µm、150 mm × 2.1 mm的分析柱,并配备2.1 mm × 20 mm保护柱,用于亲水性化合物(参见 材料表将色谱柱温箱设置为 25 °C。
- 使用以下液相色谱条件:流速恒定为 0.15 mL/min;在 20 分钟内,流动相 B 从 80% 线性梯度变化至 20%,随后在 0.5 分钟内从 20% 线性梯度变化至 80%,最后在 80% 流动相 B 条件下保持 7.5 分钟。
- 选择以下质谱仪参数设置:全扫描范围为 m/z 70 Da 至 1,000 Da;分辨率设为 70,000;自动增益控制(AGC)目标值设为 1 × 10⁶最大注入时间为 20 ms。使源在极性切换模式下运行。喷雾电压设为 3.0 kV,加热毛细管温度为 275 °C,HESI 探针温度为 350 °C,鞘气流速为 40 单位,辅助气体流速为 15 单位,吹扫气体流速为 1 单位。
- 使用任何与LCMS工作流程兼容的软件进行数据分析。
注意:上述工作流程所使用的软件为 XCalibur(Thermo)和 TraceFinder(Thermo)。数据处理的关键注意事项如下:- 预期保留时间: 在实验前,使用色谱方法分别运行各目标代谢物的标准品,以确定每种代谢物的保留时间。
注意:UMP 及其同位素异构体的保留时间,包括 13C3-UMP,完全相同。 - 代谢物的预期质荷比(m/z): 如果一种代谢物在负离子模式下电离(例如UMP),则使用UMP的分子式减去一个质子来计算其预期精确质量 [C9H14N2O9对于在正离子模式下电离的代谢物,使用分子式加一个质子来计算精确质量。
- 质量准确性: 使用轨道阱质谱仪时,目标代谢物及其同位素异构体的质量精度预计在 ±5 mmu 范围内。应使用软件计算该值,结合预期的质荷比(M/Z)与实际检测到的质荷比(M/Z)进行校正。
- 天然丰度校正: 所有示踪数据均需进行天然丰度校正,以校正约1%的天然丰度影响 13C 和约 0.5% 15自然界中的氮同位素15.
- 预期保留时间: 在实验前,使用色谱方法分别运行各目标代谢物的标准品,以确定每种代谢物的保留时间。
3. 使用13C5-谷氨酰胺稳定同位素示踪法测定SDH活性
- 13C5-谷氨酰胺稳定同位素示踪在贴壁细胞中的应用
注:通过13C5-谷氨酰胺示踪后检测富马酸盐和琥珀酸盐特定同位素异构体之间的相互转化,可直接监测琥珀酸脱氢酶(SDH)活性7,16,17。使用复合体III抑制剂抗霉素A作为对照,以改变SDH复合体的净反应方向(图4)。- 在6孔板中接种25万至50万个细胞,使次日细胞融合度达到75%。
- 制备50 mM 13C5-谷氨酰胺储备液(见表1)。
- 制备含2 mM 13C5-谷氨酰胺的示踪培养基(见表1)。
- 将每孔中的培养基更换为含2 mM 13C5-谷氨酰胺的培养基。孵育适当小时数,以使目标细胞达到稳定的标记状态(参见步骤2.1.3中的注释)。
- 按照步骤2.2中的方案提取代谢物。
- 按照步骤2.3中描述的工作流程,使用液相色谱-质谱(LC-MS)分析样品。
- 基于标记模式分析SDH活性
注:可通过评估13C5-谷氨酰胺示踪后13C4-富马酸盐与13C4-琥珀酸盐的比值,监测SDH复合体的琥珀酸氧化活性;通过评估13C5-谷氨酰胺示踪后13C3-琥珀酸盐与13C3-富马酸盐的比值,监测SDH复合体的富马酸还原活性。- 计算13C3-富马酸盐、13C4-富马酸盐、13C3-琥珀酸盐和13C4-琥珀酸盐的标记百分比。例如,为确定13C3-富马酸盐的百分比,将所有富马酸盐同位素异构体的积分峰面积相加(未标记富马酸盐、13C1-富马酸盐、13C2-富马酸盐、13C3-富马酸盐和13C4-富马酸盐),然后用13C3-富马酸盐的峰面积除以总同位素异构体面积,再乘以100。
- 为计算琥珀酸氧化活性,将13C4-富马酸盐的百分比除以13C4-琥珀酸盐的百分比。
- 为计算富马酸还原活性,将13C3-琥珀酸盐的百分比除以13C3-富马酸盐的百分比。
4. 直接复合物I活性检测
注意:DCPIP 是一种人工电子受体;当其从泛酚接受电子时,会转变为还原形式。在此实验中,泛醌通过复合物 I 介导的 NADH 氧化为 NAD+ 而被还原为泛酚。因此,在该无细胞实验中测定氧化型 DCPIP 的转化速率可间接反映复合物 I 的活性7,18。
- 从细胞中纯化并定量线粒体
注意:本实验可采用任何线粒体纯化方案19。- 将细胞扩增至获得2500万至1亿个细胞。吸除培养皿中的培养基,用1× PBS洗涤一次,吸除PBS,然后用0.25%胰蛋白酶消化细胞。用培养基终止胰酶反应,并在1,000 × g 条件下离心5分钟以收集细胞。
- 用5 mL 1× PBS洗涤细胞沉淀两次,每次均在1,000 × g 条件下离心5分钟以收集细胞。将洗涤后的细胞沉淀储存于−20 °C冰箱中,直至进行线粒体纯化。
注意:细胞沉淀冻融次数不得超过一次。 - 配制线粒体分离缓冲液(见表1)。
注意:不应使用含钠试剂(如NaOH)配制线粒体分离缓冲液,因为钠离子会破坏线粒体膜电位20,并干扰线粒体钙稳态21。 - 将细胞沉淀重悬于线粒体分离缓冲液中,浓度为每1 mL缓冲液含1000万个细胞。例如,将1亿个细胞沉淀重悬于10 mL线粒体分离缓冲液中。
注意:确保充分打散细胞团块,同时避免在缓冲液中引入气泡。 - 取2 mL细胞悬液加入预冷的玻璃匀浆器中(工作体积为3–8 mL),使用与Potter-Elvehjem聚四氟乙烯(PTFE)研杵兼容的装置。匀浆10–20次,期间在显微镜下观察细胞,确认在整个匀浆过程中细胞已完全裂解。如需提高裂解效率,可增加匀浆次数。
注意:若上述方法无法有效裂解细胞,可改用注射器裂解法22。 - 将2 mL细胞裂解液转移至预冷的微量离心管中,并重复上述步骤,直至全部细胞悬液完成匀浆。
- 在4 °C条件下,以650 × g 离心10分钟,沉淀细胞核和细胞碎片。
- 将上清液转移至新的2.0 mL离心管中,并在4 °C条件下再次以650 × g 离心10分钟。
- 将上清液转移至另一新的2.0 mL离心管中,在4 °C条件下以7,000 × g 离心10分钟,沉淀粗制线粒体。
- 弃去上清液,将沉淀重悬于1 mL线粒体分离缓冲液中。取50 µL转移至新管中用于蛋白定量。对两个样品分装物(50 µL样品和剩余约950 µL样品)重复上述离心步骤。
- 弃去上清液,将沉淀储存于−80 °C冰箱中,待后续使用。
- 向50 µL分装样品所得沉淀中加入200 µL RIPA缓冲液以提取蛋白,涡旋振荡10分钟,然后在21,000 × g 条件下离心以分离蛋白。测定50 µL分装样品中的蛋白含量,并据此推算剩余950 µL样品中的总蛋白量。例如,若50 µL样品的蛋白浓度为1 µg/µL,则剩余线粒体沉淀中的总蛋白量为950 µg(1 µg/µL × 950 µL)。
- 进行复合物I活性检测
注意:本实验使用143B骨肉瘤细胞系,但该方案可适用于任何培养细胞。- 将纯化的线粒体重悬于线粒体重悬缓冲液中(见表1),终浓度为5 mg蛋白/mL。
- 在−20 °C冰箱中进行五次冻融循环,以通透线粒体膜。
- 配制复合物I活性检测缓冲液(见表1)。
- 取50 µg的5 mg/mL线粒体储备液与90 µL复合物I活性缓冲液混合。准备五个未处理重复样本和五个鱼藤酮处理(5 µM)重复样本,用于对照复合物I活性。
- 在设定为37 °C的酶标仪中读取600 nm处的初始吸光度。
- 加入NADH至终浓度为2 mM以启动反应,并在1小时内持续监测600 nm处吸光度变化,至少每2分钟测量一次。吸光度的降低表明复合物I活性介导了DCPIP的还原。
注意:应使用多通道移液器加入NADH,以确保所有样品同时启动反应。
5. 基于液相色谱-质谱法测定超氧阴离子水平的检测方法
注意:MitoSox Red 的荧光特性可能独立于其与超氧阴离子的反应而发生变化23。本基于液相色谱-质谱联用(LC-MS)的检测方法可直接测定超氧阴离子与 MitoSox Red 反应生成的产物。以下实验方案略作修改自 Xiao 等人的研究24。超氧阴离子反应的产物为 2-羟基-线粒体乙锭(2-Hydroxy-mitoethidium,2-OH MitoE2+)(图 5)。本实验采用 Caki1 细胞系,但该方案可适用于任何培养的细胞。
- 用 MitoSox Red 处理贴壁细胞
- 在6孔板中接种250,000至500,000个细胞,使次日细胞融合度达到75%。务必同时接种一组用于LC-MS检测的培养板,以及另一组用于细胞计数归一化的重复培养板。
- 在杜氏改良伊格尔培养基中配制含10%热灭活胎牛血清和1%青霉素-链霉素的完全DMEM。
- 为所有条件的各孔更换培养基,每孔加入 2 mL 完全 DMEM。此时务必加入所需的各种药物或处理因素。
- 将细胞在组织培养孵箱中孵育1小时。
- 制备阳性和阴性对照。用 PBS 稀释制备 50 mM 的叔丁基过氧化氢储备液,以及用 DMSO 稀释制备 250 mM 的 N-乙酰半胱氨酸(NAC)储备液(参见 表1).
注意:叔丁基过氧化氢(tBuOOH)是一种强效的活性氧物质,可作为阳性对照,增加2-OH MitoE2的含量+NAC 是一种强效抗氧化剂,可作为阴性对照,中和由 tBuOOH 引起的超氧阴离子生成。 - 向阳性对照孔中加入1 µL tBuOOH,向阴性对照孔中加入1 µL tBuOOH和100 µL NAC。
注意:使用P2移液器(0.1–2 µL量程)是转移1 µL液体的最佳方法。 - 在组织培养孵箱中孵育1小时。
- 配制1 mM MitoSox Red储备液(参见 表1),每孔加入2 µL的1 mM MitoSox Red,使终浓度为1 µM。在组织培养孵箱中孵育30分钟。
- 在最后一次孵育期间,计数一份重复平板以获得细胞数量,用于标准化最终的液相色谱-质谱数据。
- 从贴壁细胞中分离氧化的Mitosox Red产物
- 准备一桶干冰,并在开始分离前将冷却的HPLC级异丙醇置于干冰上。
- 每次取出一块培养板,吸去孔中的培养基,用 1 mL 1×PBS 洗涤 2 次。进入下一步操作前,彻底吸净孔中残留的 PBS。
注意:吸取液体时应倾斜培养板,并将移液枪头沿培养皿壁操作,以防止破坏贴壁细胞。 - 将培养板置于干冰上,向每孔加入800 µL HPLC级异丙醇。
- 将培养板置于 −80 °C 超低温冰箱中孵育至少 15 分钟,以促进细胞裂解。
注意:此时可从培养箱中取出下一块培养板,并重复步骤 5.2.1–5.2.4。依次操作,直至所有培养板均置于 −80 °C 超低温冰箱中孵育。 - 每次从冷冻机中取出一块培养板,在干冰上用细胞刮将每个孔刮下,并将裂解液转移至1.5 mL微量离心管中。将试管保持在干冰上,直至进行下一步操作。
- 将所有试管在 4 °C 下涡旋 10 分钟,然后在 4 °C 下以最大速度(至少 17,000 × g).
- 将上清液转移至1.5 mL微量离心管中,使用真空浓缩仪干燥。待裂解液完全干燥后,将代谢物沉淀物于−80 °C保存,直至进行液相色谱-质谱(LC-MS)分析。
- MitoSox Red 和 2-羟基-美托乙啶(2-OH MitoE2)的液相色谱-质谱联用检测+)
- 在冰上准备样品用于液相色谱-质谱分析,加入100 µL HPLC级甲醇:氯仿:水(3:3:1)混合液,4 °C下涡旋振荡10分钟。
- 将25 µL转移至每个LC-MS小瓶中。剩余样品储存于−80 °C冰箱中。
- 配制以下液相色谱流动相:i) 流动相A:含0.1%甲酸的HPLC级水;ii) 流动相B:含0.1%甲酸的HPLC级乙腈。
- 打开 Thermo XCalibur 仪器设置应用程序以开始开发方法。
- 在该窗口左侧边栏中查找两个框——第一个框用于色谱方法开发,第二个框用于质谱方法开发。
- 液相色谱方法开发:
- 设定流速为0.25 mL/min,起始流动相为20% B,于12分钟内线性梯度升至95% B。随后1分钟内将流动相B降至20%,并在此水平维持2分钟。
注意:最后2分钟以20% B的流速流动对柱压恢复至初始压力以及用适当的缓冲液比例平衡色谱柱至关重要。若省略此平衡步骤,将导致后续所有样品的保留时间发生偏移。
- 设定流速为0.25 mL/min,起始流动相为20% B,于12分钟内线性梯度升至95% B。随后1分钟内将流动相B降至20%,并在此水平维持2分钟。
- 创建一个 调整文件 参数如下:
- 打开 调整应用程序,并创建一个新的曲目文件。
- 应用任何重叠的设置 方法设置模块 (参见步骤 5.3.9.3)也应用于此调谐文件,包括 扫描范围、分辨率、极性、AGC目标,以及 最大IT.
- 设置 鞘气 到 30,the 辅助气体 到 3,以及 扫气 到 3 同样。设置 喷雾电压 到 3 kV,the 毛细管温度 到 300,以及 S-透镜射频电平 到 60.
- 质谱方法开发:
- 从左下方的潜在扫描列表中,拖动并放置 完整质谱 窗口中心。务必点击 全扫描质谱 调整设置后,液滴的 总质谱方法时长 是 13 分钟.
注意:LC 方法比 MS 方法耗时更长,因为最后 2 分钟用于色谱柱再平衡,而非代谢物定量。 - 在模块右侧,位于 方法的特性,确保 方法持续时间 和 运行时间 设定为 13.00 分钟。
- 在正离子模式下进行全扫描 分辨率 的 70,000 和一个 AGC 目标值为 1 × 10⁶. 设置 最大 IT 到 100 毫秒 以及 扫描范围 从 300 m/z 到 700 m/z.
- 在……下方 调整文件 在模块的顶部附近,注意观察刚刚创建的调谐文件已与此方法相关联。
- 从左下方的潜在扫描列表中,拖动并放置 完整质谱 窗口中心。务必点击 全扫描质谱 调整设置后,液滴的 总质谱方法时长 是 13 分钟.
- 采用2 µL样品进样量,运行MitoSox Red检测方法。
结果
DHODH、复合体I和复合体V的活性均可通过增殖实验进行评估。当培养基中缺乏尿苷时,细胞对这些通路的依赖性增加 从头合成 嘧啶生物合成途径。因此,当细胞在无尿苷培养基中增殖时,相较于在含尿苷培养基中培养的细胞,其对brequinar抑制DHODH活性的作用更为敏感(图6A)。类似地,当培养基中缺乏丙酮酸时,细胞增殖对复合物I活性的依赖性增加。因此,当细胞在无丙酮酸培养基中增殖时,其对鱼藤酮抑制复合物I活性的敏感性高于在含丙酮酸培养基中培养的细胞(图6B). 可通过将细胞置于含半乳糖而非葡萄糖的培养基中促使其增殖,以评估复合体V的活性。由于半乳糖在糖酵解过程中净生成零ATP,因此以此为能源生长的细胞更依赖于线粒体通过复合体V产生ATP。因此,在含半乳糖培养基中增殖的细胞对寡霉素抑制复合体V的敏感性高于在含葡萄糖培养基中增殖的细胞(图6C).
SDH 活性可通过13C5-谷氨酰胺示踪并监测其在延胡索酸和琥珀酸同位素异构体中的掺入来测定。在对照处理条件下,SDH 复合物倾向于正向反应,13C4-琥珀酸掺入至13C4-延胡索酸的水平高于13C3-延胡索酸掺入至13C3-琥珀酸(图 7)。在抗霉素处理条件下,SDH 复合物倾向于逆向反应,13C3-延胡索酸掺入至13C3-琥珀酸的程度大于13C4-琥珀酸掺入至13C4-延胡索酸(图 7)。
可使用荧光探针 MitoSox 检测线粒体内超氧化物的产生,MitoSox 与超氧化物反应后生成 2-羟基-线粒体乙啶。本研究中,在叔丁基过氧化氢存在下用 MitoSox 处理的细胞中,2-羟基-线粒体乙啶水平升高,而加入抗氧化剂 NAC(可清除细胞内活性氧)后该升高受到抑制(图 8)。
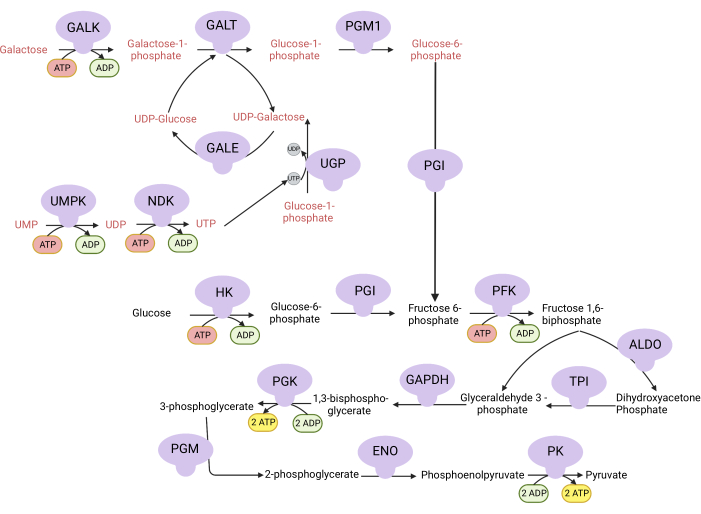
图1:复合物V增殖实验的机制基础。 葡萄糖和半乳糖通过糖酵解途径被氧化。葡萄糖经糖酵解净生成两个ATP,而半乳糖经糖酵解净生成零个ATP,因为UDP-半乳糖的合成需要消耗UTP。因此,由于缺乏糖酵解产生的ATP,生长在半乳糖培养基中的细胞更依赖线粒体ATP合成。缩写:GALK = 半乳糖激酶;GALT = 半乳糖-1-磷酸尿苷酰转移酶;PGM1 = 磷酸葡萄糖变位酶1;GPI = 葡萄糖-6-磷酸异构酶;UGP = UDP-葡萄糖焦磷酸化酶;GALE = UDP-半乳糖-4-差向异构酶;NDK = 核苷二磷酸激酶;UMPK = 尿苷单磷酸激酶;HK = 己糖激酶;PFK = 磷酸果糖激酶;ALDO = 醛缩酶;TPI = 三碳糖磷酸异构酶;GAPDH = 3-磷酸甘油醛脱氢酶;PGK = 磷酸甘油酸激酶;PGM = 磷酸葡萄糖变位酶;ENO = 烯醇化酶;PK = 丙酮酸激酶。 请点击此处查看该图的放大版本。

图2:复合物I增殖实验的机制基础。 复合物I活性受抑制后发生改变的代谢通路示意图。在高丙酮酸培养基中,通过乳酸脱氢酶(LDH)介导的NADH氧化可绕过复合物I的抑制。而在低丙酮酸培养基中,这种适应机制较难实现,细胞更依赖复合物I活性来重新氧化NADH。缩写:LDH = 乳酸脱氢酶;TCA cycle = 三羧酸循环。 请点击此处查看该图的放大版本。
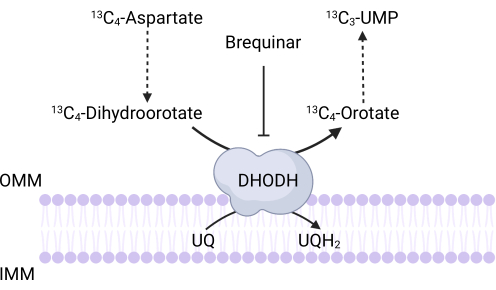
图3:使用13C4-天冬氨酸示踪时DHODH反应的示意图。 Brequinar抑制二氢乳清酸氧化为乳清酸,从而阻断UMP的下游合成。13C4-天冬氨酸通过DHODH活性被掺入至13C3-UMP中。缩写:OMM = 线粒体外膜;IMM = 线粒体内膜;DHODH = 二氢乳清酸脱氢酶。请点击此处查看该图的放大版本。

图 4:通过13C5-谷氨酰胺示踪法测定复合体 II 的正向与逆向活性。 为测定复合体 II 的正向活性(左),监测13C5-谷氨酰胺掺入13C4-琥珀酸和13C4-延胡索酸的情况。为测定复合体 II 的逆向活性(右),监测13C5-谷氨酰胺掺入13C3-琥珀酸和13C3-延胡索酸的情况。缩写:SDH = 琥珀酸脱氢酶;CytC = 细胞色素 C。请点击此处查看该图的放大版本。
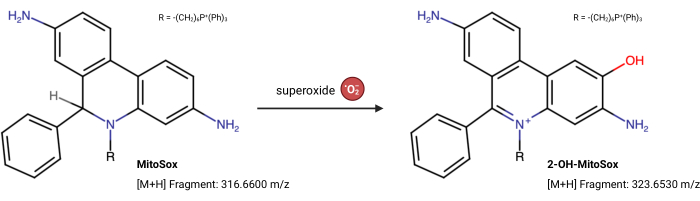
图 5:MitoSox Red 与超氧阴离子的反应。MitoSox 与线粒体中的超氧阴离子反应生成 2-OH-MitoE2+。请点击此处查看该图的放大版本。

图6:基于增殖的检测方法用于测量线粒体功能(A)在添加或不添加100 µg/mL尿苷的培养基中,用5 µM brequinar(DHODH抑制剂)处理的143B骨肉瘤细胞的增殖情况。数据表示为均值±标准误;每组条件n = 3。(B)在添加或不添加5 mM丙酮酸的培养基中,用2 µM鱼藤酮(复合物I抑制剂)处理的143B骨肉瘤细胞的增殖情况。数据表示为均值±标准误;每组条件n = 3。(C)在分别以10 mM葡萄糖或10 mM半乳糖作为唯一中心碳源的培养基中,用5 µM寡霉素(复合物V抑制剂)处理的143B骨肉瘤细胞的增殖情况。数据表示为均值±标准误;每组条件n = 3。*表示使用Graphpad Prism软件进行单因素方差分析时,p < 0.05。请点击此处查看该图的放大版本。
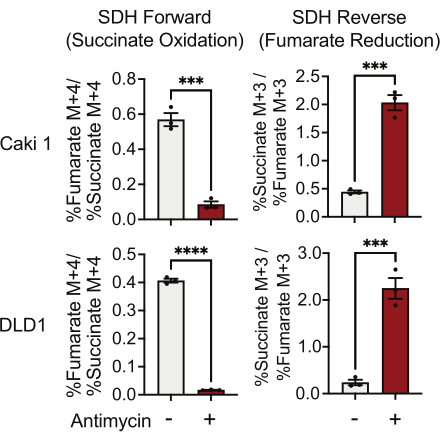
图 7:13C5-谷氨酰胺示踪法测定复合体 II 活性。 在 DMSO 和 500 nM 抗霉素 A 处理的 Caki1 与 DLD1 细胞中进行的琥珀酸氧化及延胡索酸还原(SDH 逆向反应)。数据表示为均值 ± 标准误;每组条件 n = 3。*** 表示使用 GraphPad Prism 软件进行非配对 t 检验,p < 0.05。缩写:SDH = 琥珀酸氧化;SDH 逆向 = 延胡索酸还原。 请点击此处查看该图的放大版本。
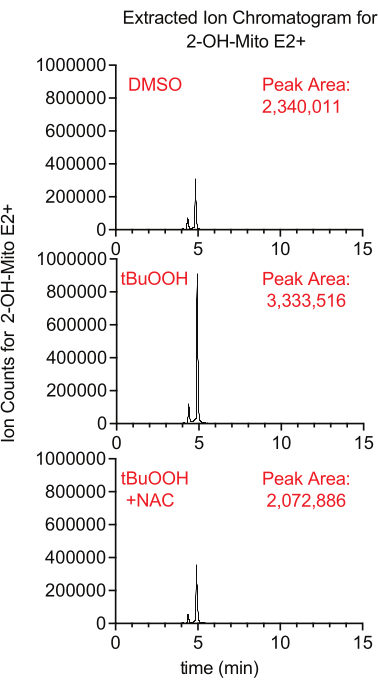
图8:基于LCMS的MitoSox检测法检测超氧阴离子。 经MitoSox处理30分钟并同时给予tBuOOH ± NAC的Caki1细胞中分离得到的2-OH-Mito E2+的提取离子色谱图。缩写:LCMS = 液相色谱-质谱联用;NAC = N-乙酰半胱氨酸。 请点击此处查看该图的放大版本。
表1:本实验方案中所用试剂、缓冲液和培养基的组成。 请点击此处下载该表格。
讨论
随着新兴研究证明哺乳动物线粒体可以在不消耗分子氧的情况下发挥功能,研究人员迫切需要采用多种正交检测方法,而不仅限于氧消耗率(OCR)测量,以准确量化线粒体功能。本文汇总了一系列可直接评估复合物I、复合物II、复合物V以及二氢乳清酸脱氢酶(DHODH)活性的检测方法,这些方法通过测量线粒体内的NAD+/NADH平衡、适应性末端电子受体的利用、ATP的生成、从头嘧啶生物合成以及线粒体来源的活性氧(ROS)来实现功能评估。值得注意的是,这些检测方法相较于OCR测量能更直接地反映线粒体功能。此外,这些方法为研究人员提供了切实可行的手段,用于量化缺氧条件下的线粒体功能——在此条件下,由于延胡索酸被优先用作末端电子受体,OCR测量基本不再适用。最后,本文所述基于细胞增殖的检测方法比传统的呼吸测定实验更具成本效益,因而为在哺乳动物系统中研究线粒体功能提供了一种广泛可及的途径。
在利用这些检测方法测定培养细胞中线粒体功能时,有一些关键因素需要考虑。关于增殖检测,重要的是根据每种细胞系的倍增速率调整接种的细胞数量。细胞接种密度应至少达到10%汇合度,并留有足够空间,使其能够进行三到四次倍增,以便量化增殖差异。每种检测方法的另一个考虑因素是用作各电子传递链(ETC)复合物活性对照的小分子化合物的浓度。由于不同细胞系对这些抑制剂的敏感性可能不同,因此必须测试这些小分子的剂量,以确定其最佳浓度。
研究线粒体功能的检测方法普遍存在局限性 体外,包括OCR测定及本文所述所有检测,是培养基的代谢成分。标准细胞培养基往往会使系统产生线粒体功能表面性升高的偏差。例如,超生理浓度的谷氨酰胺会增强其对三羧酸循环的回补作用25,这会促进线粒体NADH的合成,从而增加氧化磷酸化。类似地,氧气的分压范围在3 mmHg至100 mmHg之间(约0.1%–13% O₂)。2)在哺乳动物组织中较低,而在大气中较高(140 mmHg,约21%) 体外26,27。这种过量的O2 最大化线粒体呼吸能力和超氧化物产生28近年来,研究人员致力于设计出更具生理性的培养基29,30值得注意的是,在模拟人血浆的培养基中培养细胞会降低某些癌细胞系的线粒体呼吸作用30T细胞中的线粒体活性氧31以及线粒体对癌症治疗药物的适应性变化32因此,必须注意所用培养基的成分,并了解其可能对线粒体功能产生的影响。
解释线粒体功能时另一个重要且普遍的局限性在于线粒体数量可能存在差异。因此,必须通过定量线粒体DNA(mtDNA)33、使用膜电位不敏感性染料测定线粒体质量34,或对线粒体标志物进行蛋白质印迹(western blotting)来测量线粒体含量。这一对照至关重要,以避免将线粒体数量的减少误判为线粒体功能的下降。
此处所述的检测方法也存在特定的局限性和注意事项。首先,由于分化后的细胞不再增殖,基于增殖的检测方法将不适用于评估此类细胞中的线粒体功能。使用13C4-天冬氨酸示踪法测定DHODH活性的一个关键局限性在于,细胞对天冬氨酸的摄取效率可能极低35。为克服这一潜在局限,研究人员可过表达天冬氨酸转运蛋白SLC1A3,以促进13C4-天冬氨酸的摄取35。
使用13C5-谷氨酰胺示踪法测定琥珀酸脱氢酶(SDH)活性的一个局限性在于,该检测方法依赖细胞通过还原性羧化途径富集M+3同位素异构体,以测量其逆向活性。某些细胞系由于ATP柠檬酸裂解酶表达水平较低36,缺氧诱导因子(HIF)稳定性不足37,或α-酮戊二酸与柠檬酸的比例过低38,无法产生还原性羧化通量。为克服这一局限,可采用13C4-天冬氨酸示踪法来同时测定SDH的正向与逆向活性7。在此检测中,SDH的正向活性可通过延胡索酸M+2与琥珀酸M+2的比值来衡量,而逆向反应则通过琥珀酸M+4与延胡索酸M+4的比值来评估。值得注意的是,该示踪策略绕过了还原性羧化途径中的大部分酶促步骤。
使用DCPIP还原作为检测指标的复合物I活性测定法存在一个局限性,即线粒体并非结构完整。为使线粒体在测定中能够摄取NADH而进行的冻融处理,必然会损害线粒体膜的结构完整性39。该测定应与复合物I增殖测定等其他测定方法平行进行,以确保所观察到的复合物I活性变化在结构完整的 细胞中同样成立。
在今后的研究中,其中一些技术可被改进用于测量线粒体功能 体内 使用小鼠等模式生物 秀丽隐杆线虫 测量线粒体功能的现有方法 体内 以生物体水平的耗氧率(OCR)为核心,特别是在使用小鼠模型时的呼吸交换率。该方法的一个明显局限在于,氧气在生物体内的作用远不止作为线粒体电子传递链(ETC)中普遍存在的末端电子受体。例如,氧气还参与多种生物化学反应和信号传导功能。 "消耗" 由双加氧酶家族酶的催化活性所介导。尽管这些酶参与细胞耗氧速率,但并不参与、调控或反映线粒体功能。经典的呼吸测定实验 体外 通常用于对照 "非线粒体耗氧率"而生物体的呼吸交换率(RER)实验无法对此进行控制,限制了将RER作为线粒体功能指标的解释能力 在体内 然而,可以通过调整方案来检测DHODH活性 13C4-天冬氨酸示踪,通过复合体II活性 13C5-谷氨酰胺示踪、利用组织中纯化的线粒体测定复合物I活性,以及使用适合液相色谱-质谱联用的化合物(如MitoB)检测线粒体活性氧,以评估线粒体功能 体内这些用于检测线粒体功能的直接检测方法,结合经典的呼吸测定实验,为研究人员提供了对哺乳动物细胞和组织中线粒体功能更全面、更准确的评估。
披露
作者声明无任何利益冲突。
致谢
本文中生成的图示使用 BioRender.com 制作。我们感谢 Amy Walker 为本文提供的反馈意见。J.B.S. 的研究得到了伍斯特生物医学研究基金会资助的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 离心管 | 细胞处理 | 667443 | |
| 2.0 mL 离心管 | 细胞处理 | 229446 | |
| 6孔板 | 细胞处理 | 229106 | |
| 12孔板 | 细胞处理 | 229112 | |
| 13C4-天冬氨酸 | Sigma-Aldrich | 604852 | |
| 13C5谷氨酰胺 | Cambridge Isotope Laboratories | 285978-14-5 | |
| 15 mL 离心管 | 细胞处理 | 667411 | |
| 50 mL 离心管 | 细胞处理 | 667421 | |
| 150 毫米组织培养皿 | 细胞处理 | 229651 | |
| 1× 磷酸盐缓冲液 | Gibco | 10010049 | |
| 2,6-二氯酚靛酚 | 霍尼韦尔 | 33125 | |
| 碳酸铵 | Sigma-Aldrich | 37999 | |
| 抗霉素 | Sigma-Aldrich | A8674 | |
| Ascentis Express C18 | Sigma-Aldrich | 53825-U | |
| 500 mL 瓶顶滤器,0.22 μm µm,PES 9 9 mm 膜直径 | 细胞治疗 | 229717 | |
| 牛血清白蛋白 | Sigma-Aldrich | A3294 | |
| Brequinar | Sigma-Aldrich | SML0113 | |
| 细胞刮刀,双头扁平窄刃 | 细胞处理 | 229305 | |
| CentriVap -105 冷阱 | Labconco | 7385020 | |
| 完整蛋白酶抑制剂片剂 | Sigma-Aldrich | 4693116001 | |
| 库尔特计数杯 | Fisher Scientific | 07-000-694 | |
| Decylubiquinone | Sigma-Aldrich | D7911 | |
| DMSO | Invitrogen | D12345 | |
| 杜尔贝科’DMEM(杜尔贝科改良伊格尔培养基) | Gibco | 11995-065 | |
| EDTA | Sigma-Aldrich | E6758 | |
| EGTA | Sigma-Aldrich | E3889 | |
| Eppendorf 离心机 5425R | Eppendorf | 2231000908 | |
| Eppendorf Centrifuge 5910 Ri | Eppendorf | 5943000343 | |
| 半乳糖 | Sigma-Aldrich | G5388 | |
| 葡萄糖 | Sigma-Aldrich | G7021 | |
| 无葡萄糖DMEM | Gibco | 11966025 | |
| 无谷氨酰胺DMEM | 赛默飞世尔科技 | 11960044 | |
| 热灭活胎牛血清 | Sigma-Aldrich | F4135 | |
| Hepes | Sigma-Aldrich | H3375 | |
| HPLC级35%氨水 | 赛默飞世尔科技 | 460801000 | |
| HPLC级乙腈 | Sigma-Aldrich | 900667 | |
| HPLC级氯仿 | Sigma-Aldrich | 366927 | |
| HPLC级甲酸 | 赛默飞世尔科技 | 28905 | |
| HPLC级异丙醇 | Sigma-Aldrich | 563935 | |
| 色谱纯甲醇 | Sigma-Aldrich | 900688 | |
| HPLC级水 | Sigma-Aldrich | 270733 | |
| 人骨肉瘤细胞系 143B | ATCC | CRL-8303 | |
| 盐酸 | Sigma-Aldrich | 320331-500ML | |
| 等渗缓冲液 | 贝克曼库尔特 | 8546719 | |
| K2HPO4 | Sigma-Aldrich | P2222 | |
| 甘露醇 | Sigma-Aldrich | M4125 | |
| MitoSox Red | Invitrogen | M36008 | |
| N-乙酰-L-半胱氨酸 | Sigma-Aldrich | A9165 | |
| 寡霉素 | Sigma-Aldrich | 75351-5MG | |
| 青霉素-链霉素 | Gibco | 15140-122 | |
| Potter-Elvehjem 组织研磨器,21 号规格 | Kimble | 885502-0021 | |
| 丙酮酸 | Sigma-Aldrich | P5280 | |
| 无丙酮酸钠的DMEM培养基 | Gibco | 11965175 | |
| Q Exactive Plus 质谱仪 | 赛默飞世尔科技 | 726030 | |
| ReCO2孵育器 | 贝克 | ||
| 冷藏式Centrivap台式真空浓缩仪 | Labconco | 7310020 | |
| RIPA缓冲液 | 默克生命科学 | 20188 | |
| 鱼藤酮 | Sigma-Aldrich | R8875 | |
| SeQuant ZIC-pHILIC 5μ150 x 2.1 mm 分析柱 | Sigma-Aldrich | 1.50460.0001 | |
| SeQuant ZIC-pHILIC 保护柱套件 | Millipore Sigma | 1.50438.0001 | |
| 氢氧化钠,颗粒状 | Millipore Sigma | 567530-250GM | |
| 蔗糖 | Sigma-Aldrich | S0389 | |
| SW,TRACEFINDER 5.1 SP3 | 赛默飞世尔科技 | OPTON-31001 | |
| 叔丁基过氧化氢溶液 | Sigma-Aldrich | 458139 | |
| Tris | Sigma-Aldrich | 93352 | |
| 胰蛋白酶-EDTA(0.25%),酚红 | Gibco | 25-200-114 | |
| 尿苷 | Sigma-Aldrich | U3003 | |
| VANQUISH HORIZON / FLEX 高效液相色谱系统 | 赛默飞世尔科技 | VF-S01-A-02 | |
| Z2 库尔特颗粒计数与粒径分析仪 | 贝克曼库尔特 | BZ10131270 |
参考文献
- Spinelli, J. B., Haigis, M. C. The multifaceted contributions of mitochondria to cellular metabolism. Nature Cell Biology. 20 (7), 745-754 (2018).
- Gorman, G. S., et al. Mitochondrial diseases. Nature Reviews Disease Primers. 2, 16080(2016).
- Chandel, N. S., et al. Reactive oxygen species generated at mitochondrial complex III stabilize hypoxia-inducible factor-1alpha during hypoxia: A mechanism of O2 sensing. Journal of Biological Chemistry. 275 (33), 25130-25138 (2000).
- Cadenas, E., Boveris, A., Ragan, C. I., Stoppani, A. O. M. Production of superoxide radicals and hydrogen peroxide by NADH-ubiquinone reductase and ubiquinol-cytochrome C reductase from beef-heart mitochondria. Archives of Biochemistry and Biophysics. 180 (2), 248-257 (1977).
- Murphy, M. P. How mitochondria produce reactive oxygen species. Biochemical Journal. 417 (1), 1-13 (2009).
- Schieber, M., Chandel, N. S. ROS function in redox signaling and oxidative stress. Current Biology. 24 (10), 453-462 (2014).
- Spinelli, J. B., et al. Fumarate is a terminal electron acceptor in the mammalian electron transport chain. Science. 374 (6572), 1227-1237 (2021).
- Kumar, R., et al. A redox cycle with complex II prioritizes sulfide quinone oxidoreductase-dependent H(2)S oxidation. Journal of Biological Chemistry. 298 (1), 101435(2022).
- Warburg, O., Geissler, A. W., Lorenz, S. On growth of cancer cells in media in which glucose is replaced by galactose. Hoppe-Seyler's Zeitschrift für Physiologische Chemie. 348 (12), 1686-1687 (1967).
- Marroquin, L. D., Hynes, J., Dykens, J. A., Jamieson, J. D., Will, Y. Circumventing the Crabtree effect: replacing media glucose with galactose increases susceptibility of HepG2 cells to mitochondrial toxicants. Toxicological Sciences. 97 (2), 539-547 (2007).
- Attardi, G., King, M. P. Human cells lacking mtDNA: Repopulation with exogenous mitochondria by complementation. Science. 246 (4929), 500-503 (1989).
- Bodnar, A. G., Cooper, M., Leonard, J. V., Schapira, A. H. Respiratory-deficient human fibroblasts exhibiting defective mitochondrial DNA replication. Biochemical Journal. 305, 817-822 (1995).
- Gregoire, M., Morais, R., Quilliam, M. A., Gravel, D. On auxotrophy for pyrimidines of respiration-deficient chick embryo cells. European Journal of Biochemistry. 142 (1), 49-55 (1984).
- Mackay, G. M., Zheng, L., vanden Broek, N. J., Gottlieb, E. Analysis of cell metabolism using LC-MS and isotope tracers. Methods in Enzymology. 561, 171-196 (2015).
- Heinrich, P., et al. Correcting for natural isotope abundance and tracer impurity in MS-, MS/MS- and high-resolution-multiple-tracer-data from stable isotope labeling experiments with IsoCorrectoR. Scientific Reports. 8 (1), 17910(2018).
- Lee, P., Chandel, N. S., Simon, M. C. Cellular adaptation to hypoxia through hypoxia inducible factors and beyond. Nature Reviews Molecular Cell Biology. 21 (5), 268-283 (2020).
- Bisbach, C. M., et al. Succinate can shuttle reducing power from the hypoxic retina to the O(2)-rich pigment epithelium. Cell Reports. 31 (2), 107606(2020).
- Angebault, C., et al. Idebenone increases mitochondrial complex I activity in fibroblasts from LHON patients while producing contradictory effects on respiration. BMC Research Notes. 4, 557(2011).
- Liao, P. C., Bergamini, C., Fato, R., Pon, L. A., Pallotti, F. Isolation of mitochondria from cells and tissues. Methods in Cell Biology. 155, 3-31 (2020).
- Iwai, T., et al. Sodium accumulation during ischemia induces mitochondrial damage in perfused rat hearts. Cardiovascular Research. 55 (1), 141-149 (2002).
- Murphy, E., Eisner, D. A. Regulation of intracellular and mitochondrial sodium in health and disease. Circulation Research. 104 (3), 292-303 (2009).
- Lampl, T., Crum, J. A., Davis, T. A., Milligan, C., Del Gaizo Moore, V. Isolation and functional analysis of mitochondria from cultured cells and mouse tissue. Journal of Visualized Experiments. (97), e52076(2015).
- Murphy, M. P., et al. Guidelines for measuring reactive oxygen species and oxidative damage in cells and in vivo. Nature Metabolism. 4 (6), 651-662 (2022).
- Xiao, Y., Meierhofer, D. Are hydroethidine-based probes reliable for reactive oxygen species detection. Antioxidants and Redox Signaling. 31 (4), 359-367 (2019).
- DeBerardinis, R. J., et al. Beyond aerobic glycolysis: Transformed cells can engage in glutamine metabolism that exceeds the requirement for protein and nucleotide synthesis. Proceedings of the National Academy of Sciences of the United States of America. 104 (49), 19345-19350 (2007).
- Keeley, T. P., Mann, G. E. Defining physiological normoxia for improved translation of cell physiology to animal models and humans. Physiological Reviews. 99 (1), 161-234 (2019).
- Ast, T., Mootha, V. K. Oxygen and mammalian cell culture: Are we repeating the experiment of Dr. Ox. Nature Metabolism. 1 (9), 858-860 (2019).
- Gu, C., Jun, J. C. Does hypoxia decrease the metabolic rate. Frontiers in Endocrinology. 9, 668(2018).
- Voorde, J., et al. Improving the metabolic fidelity of cancer models with a physiological cell culture medium. Scientific Advances. 5 (1), 7314(2019).
- Cantor, J. R., et al. Physiologic medium rewires cellular metabolism and reveals uric acid as an endogenous inhibitor of UMP synthase. Cell. 169 (2), 258-272 (2017).
- MacPherson, S., et al. Clinically relevant T cell expansion media activate distinct metabolic programs uncoupled from cellular function. Molecular Therapy. Methods and Clinical Development. 24, 380-393 (2022).
- Torres-Quesada, O., Doerrier, C., Strich, S., Gnaiger, E., Stefan, E. Physiological cell culture media tune mitochondrial bioenergetics and drug sensitivity in cancer cell models. Cancers. 14 (16), 3917(2022).
- Chan, S. W., Chen, J. Z. Measuring mtDNA damage using a supercoiling-sensitive qPCR approach. Methods in Molecular Biology. 554, 183-197 (2009).
- Doherty, E., Perl, A. Measurement of mitochondrial mass by flow cytometry during oxidative stress. Reactive Oxygen Species. 4 (10), 275-283 (2017).
- Birsoy, K., et al. An essential role of the mitochondrial electron transport chain in cell proliferation is to enable aspartate synthesis. Cell. 162 (3), 540-551 (2015).
- Beigneux, A. P., et al. ATP-citrate lyase deficiency in the mouse. Journal of Biological Chemistry. 279 (10), 9557-9564 (2004).
- Gameiro, P. A., et al. In vivo HIF-mediated reductive carboxylation is regulated by citrate levels and sensitizes VHL-deficient cells to glutamine deprivation. Cell Metabolism. 17 (3), 372-385 (2013).
- Fendt, S. M., et al. Reductive glutamine metabolism is a function of the alpha-ketoglutarate to citrate ratio in cells. Nature Communications. 4, 2236(2013).
- Lee, C. P. Biochemical studies of isolated mitochondria from normal and diseased tissues. Biochimica et Biophysica Acta. 1271 (1), 21-28 (1995).
重印与许可
