过氧化氢(H2O2)既是氧化损伤的来源,也是一种信号分子。本实验方案介绍了如何在活酵母细胞中利用线粒体靶向的基因编码比率型生物传感器 HyPer7(mtHyPer7)来检测线粒体内的 H2O2,并详细说明了如何优化成像条件,以及如何使用免费软件进行定量的细胞和亚细胞水平分析。
本文内容
摘要
摘要
线粒体功能障碍或功能改变存在于多种疾病和病理状态中,包括神经退行性疾病、肌肉骨骼系统疾病、癌症以及正常衰老过程。本文介绍一种利用基因编码、侵入性极小、基于比率检测的生物传感器,在细胞和亚细胞水平上评估活酵母细胞中线粒体功能的方法。该生物传感器为靶向线粒体的HyPer7(mtHyPer7),可检测过氧化氢(H₂O₂)水平,从而反映线粒体活性。通过荧光显微镜成像,结合特异性刺激与抑制剂处理,可动态监测线粒体氧化还原状态的变化。该方法具有高时空分辨率,适用于研究线粒体在代谢调控、应激响应及细胞命运决定中的作用。此外,该技术可拓展至其他真核细胞系统,为探究线粒体相关疾病的机制提供有力工具。 关键词:线粒体功能障碍,酵母细胞,mtHyPer7,过氧化氢检测,比率型生物传感器,活细胞成像,氧化还原状态,线粒体靶向2O2)在线粒体中。它由一个线粒体信号序列与一个环状重排的荧光蛋白及H2O2-细菌OxyR蛋白的响应域。该生物传感器利用CRISPR-Cas9无标记系统在酵母基因组中生成并整合,用于 相较于质粒携带的构建体,表达更加一致。
mtHyPer7 可定量靶向至线粒体,对酵母生长速率或线粒体形态无明显影响,并可在正常生长条件及氧化应激暴露下,提供线粒体 H2O2 的定量读数。本方案详细说明了如何利用转盘共聚焦显微镜系统优化成像条件,并使用免费软件进行定量分析。这些工具使得收集细胞内及细胞群体中线粒体的丰富时空信息成为可能。此外,本文所述的工作流程还可用于验证其他生物传感器。
引言
线粒体是真核细胞中至关重要的细胞器,以其通过氧化磷酸化和电子传递产生ATP的功能而广为人知1。此外,线粒体还参与钙离子储存、脂质、氨基酸、脂肪酸以及铁硫簇的合成,并在信号转导中发挥重要作用2,3。在细胞内,线粒体形成具有特定形态和分布的动态网络,其结构随细胞类型和代谢状态而变化。此外,尽管线粒体能够发生融合与分裂,但细胞内的线粒体并非完全等同。大量研究已证实,单个细胞内的线粒体在膜电位和氧化状态等功能特性上存在异质性4,5,6。这种功能差异部分源于线粒体自身受到的损伤,包括线粒体DNA(mtDNA)突变(其突变率高于核DNA)以及线粒体内外产生的活性氧(ROS)所导致的氧化损伤7,8,9。细胞通过线粒体质量控制机制来减轻这些损伤,这些机制可修复损伤或清除无法修复的受损线粒体10。
过氧化氢(H2O2)是一种活性氧,可导致细胞蛋白质、核酸和脂质发生氧化损伤。然而,H2O2 也可作为信号分子,通过可逆地氧化靶蛋白中的硫醇基团来调控细胞活动11,12。H2O2 可由线粒体电子传递链中泄漏的电子以及特定酶(如 NADPH 氧化酶和单胺氧化酶)产生13,14,15,16,17,18,19,20。同时,它也可被抗氧化系统(包括硫氧还蛋白和谷胱甘肽系统)所清除21,22,23。因此,分析线粒体中 H2O2 的水平对于理解该代谢物在正常线粒体和细胞功能以及氧化应激条件下的作用至关重要。
本实验方案的总体目标是检测线粒体H2O2 使用一种基因编码的比率型 H2O2 生物传感器 HyPer7,靶向定位于细胞器(mtHyPer7)。mtHyPer7 是一种嵌合体,包含来自线粒体的信号序列 ATP9 (Su9前序列),绿色荧光蛋白(GFP)的一种环状重排形式,以及H2O2OxyR 蛋白的结合域 Neisseria meningitidis24 (图1)。在环状重排的GFP中,天然GFP的N端和C端被融合,而在发色团附近形成新的末端,这使得蛋白质具有更高的灵活性,以及相较于天然GFP更不稳定的光谱特性25. mtHyPer7的OxyR结构域与H的相互作用2O2 具有高亲和力,H2O2选择性,并导致保守的半胱氨酸残基发生可逆氧化及二硫键的形成。OxyR 氧化所引发的构象变化会传递至 mtHyPer7 中的环状重排绿色荧光蛋白,从而使 mtHyPer7 发色团在还原状态下的激发最大值由 405 nm 发生光谱偏移 488 nm 在 H2O2-氧化态26因此,mtHyPer7 在 488 nm 与 405 nm 激发下的荧光强度比值反映了探针对 H₂O₂ 的氧化程度2O2.
理想情况下,生物传感器应能够实时、绝对且定量地检测其目标分子。然而,在实际测量中,这并不总是可行的。以氧化还原传感器为例,如 mtHyPer7,其实时信号读数会受到二硫键还原速率的影响。活性氧生物传感器所依赖的还原系统各不相同,这些差异会显著改变探针的响应动力学——这一点已在酵母细胞质中通过 HyPer7(由硫氧还蛋白系统还原)与 roGFP2-Tsa2ΔCR(由谷胱甘肽还原)的比较中得到证实27。因此,若要根据 mtHyPer7 的比值推断相对 H2O2 浓度,必须假设实验过程中还原系统的还原能力保持恒定。尽管存在上述限制,HyPer7 及相关探针仍已被广泛应用于多种研究场景,以获取活细胞内 H2O2 的相关信息25,28,29。

图1设计、分子机制及H的激发/发射光谱2O2 生物传感器 mtHyPer7 (AmtHyPer7 探针是通过将环状重排的 GFP 插入来自 OxyR-RD 结构域而获得的 脑膜炎奈瑟菌. 它包含来自ATP合酶亚基9的线粒体靶向序列 Neurospora crassa (Su9). (B) H 的示意图2O2-mtHyPer7 的感应机制。RD 结构域中的半胱氨酸被氧化后,在 488 nm 激发下的荧光发射增强,而在 405 nm 激发下的发射减弱。C) HyPer7在氧化态和还原态下的激发光谱和发射光谱。本图经Pak等授权转载。24缩写:GFP = 绿色荧光蛋白;cpGFP = 环状重排绿色荧光蛋白。 请点击此处以查看此图的放大版本。
这种对 mtHyPer7 的比率成像在定量线粒体 H2O2 方面具有重要优势24,27;它可提供探针浓度的内部对照。此外,H2O2 刺激引起的激发峰位移即使在 H2O2 饱和浓度下也不完全。因此,比率成像可通过在分析中整合两个光谱点来提高检测灵敏度。
本文所使用的mtHyPer7探针对于H2O2具有很高的亲和力,且对pH的敏感性相对较低24,并已成功靶向至Caenorhabditis elegans的线粒体30。该蛋白也已在酵母中得到应用27,31。然而,以往的研究依赖于质粒介导的mtHyPer7表达,这会导致探针在细胞间的表达水平存在差异27。此外,本实验方案中描述的构建体通过基于CRISPR的方法整合到X染色体上一个保守的、无基因区域中,实现无标记整合32。整合后的生物传感器基因由强组成型TEF1启动子驱动表达(图2)。因此,与使用质粒表达的生物传感器相比,酵母细胞群体中该生物传感器的表达更加稳定且一致,携带该生物传感器的细胞无需选择性培养基即可持续传代。
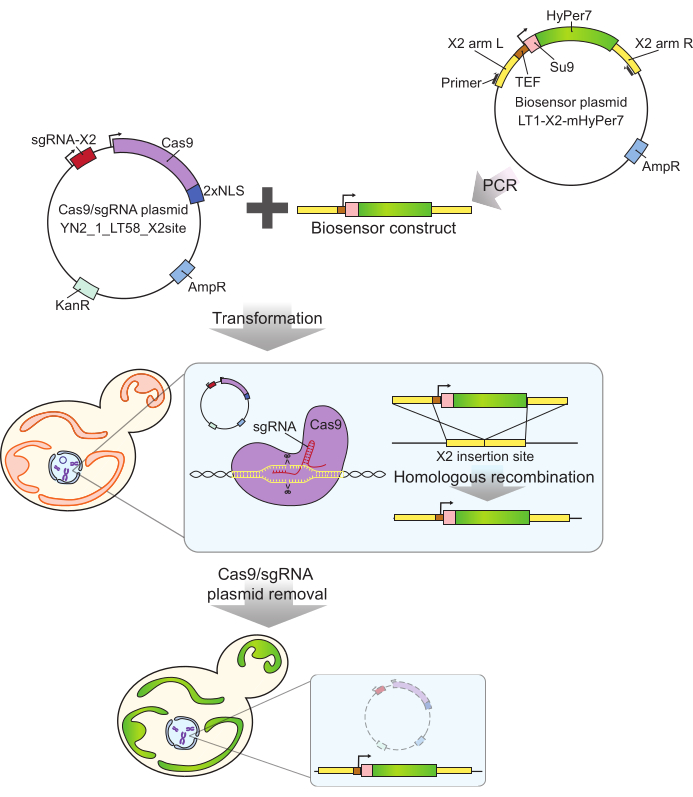
图 2:通过 CRISPR 生成表达 mtHyPer7 的细胞。 将含有 Cas9 和 sgRNA 的质粒(YN2_1_LT58_X2site)与通过 PCR 扩增获得的含 mtHyPer7 生物传感器构建体,利用乙酸锂转化法导入酿酒酵母细胞中。染色体 X 上的无基因插入位点(X2)被 Cas9 蛋白在 sgRNA 引导下识别并切割,生物传感器通过同源重组整合到基因组中。通过显微镜筛选、菌落 PCR 和测序鉴定成功转化的菌株后,通过在非选择性培养基中培养去除 Cas9 质粒(消除质粒)。缩写:sgRNA = 单链引导 RNA;TEF = 转录增强因子。请点击此处查看该图的放大版本。
最后,mtHyPer7 相较于其他活性氧生物传感器具有多项优势。例如,用于检测活性氧的有机染料(如二氢乙啶 [DHE]2 和 MitoSOX3)可能产生不均匀或非特异性的染色,且通常需用乙醇或二甲基亚砜等溶剂递送,因此需要额外设置溶剂效应的对照组。另一类活性氧生物传感器是基于荧光共振能量转移(FRET)的传感器(如用于细胞氧化还原状态的 Redoxfluor4,以及过氧化物传感器 HSP-FRET5、OxyFRET6 和 PerFRET6)。这类探针为基因编码,理论上具有高灵敏度,并可通过已明确的线粒体信号序列实现对线粒体的定量靶向。然而,FRET 基探针在使用中存在一些挑战,包括因交叉激发和荧光串扰导致的背景干扰,以及 FRET 发生对荧光基团之间距离和取向的严格要求33,34。此外,FRET 探针包含两个荧光蛋白,相较于光谱位移型探针,其在目标细胞中表达所需的构建体更大。本文所述方案旨在充分利用基于 HyPer7 的生物传感器的优势,利用这一紧凑、可比率检测、高亲和力、基因编码的探针,对活酵母细胞中线粒体内的过氧化物进行定量成像。
方案
1. 生物传感器质粒的构建、整合至酵母基因组,以及mtHyPer7在线粒体中的靶向性、对线粒体形态、细胞生长速率或氧化应激敏感性影响的评估
注意:有关生物传感器质粒构建所用的菌株、质粒和引物,分别请参见补充文件1、补充表S1、补充表S2和补充表S3。本实验方案中使用的所有材料、试剂和仪器的相关信息详见材料表。
- 使用引物 Y290 和 Y291 从生物传感器质粒中扩增生物传感器结构图2通过聚合酶链式反应(PCR)
- 混合 500 ng Cas9/guide RNA 质粒(YN2_1_LT58_X2site)32)与 50 µL 步骤1.1中PCR产物(生物传感器构建体)的转化至芽殖酵母 使用醋酸锂法35 在含有 200 mg/mL G418 的 YPD 平板上筛选转化子。
- 使用引物 Y292 和 Y293 通过 PCR 扩增基因组 DNA,筛选候选转化子。对于插入片段大小符合预期的转化子(阳性:3.5 kb;阴性:0.3 kb),对插入区域进行测序以进一步验证。
- 评估生物传感器对生长和线粒体功能的影响图3). 如果生物传感器似乎影响了细胞或线粒体的功能,可通过更换启动子、整合位点或宿主菌株来尽量减少这种影响。
- 测定生物传感器构建体在有无氧化应激物(如百草枯)存在下对生长速率的影响,具体操作步骤如前所述36.
- 将对数中期细胞稀释至600 nm光密度(OD6000.0035 的光密度值(OD) 200 µL 将相应培养基分别加入含处理和不含处理的96孔平底板的各孔中。使用酶标仪每20分钟测量一次培养物的光密度,持续72小时。计算72小时过程中240分钟时间间隔内光密度的最大变化斜率,作为最大生长速率。
- 通过荧光显微镜观察细胞,并按照先前所述方法评估荧光亮度及线粒体形态37.
- 将细胞培养至对数生长期中期,用 250 nM MitoTracker Red 染色线粒体 30 分钟,成像前洗涤两次。采集 Z 轴层扫图像 6 µm 深度在 0.3 µm 在宽场或共聚焦荧光显微镜下以一定时间间隔拍摄图像,并进行目视观察。注意查看线粒体是否形成细长的管状结构。
- 测定生物传感器构建体在有无氧化应激物(如百草枯)存在下对生长速率的影响,具体操作步骤如前所述36.
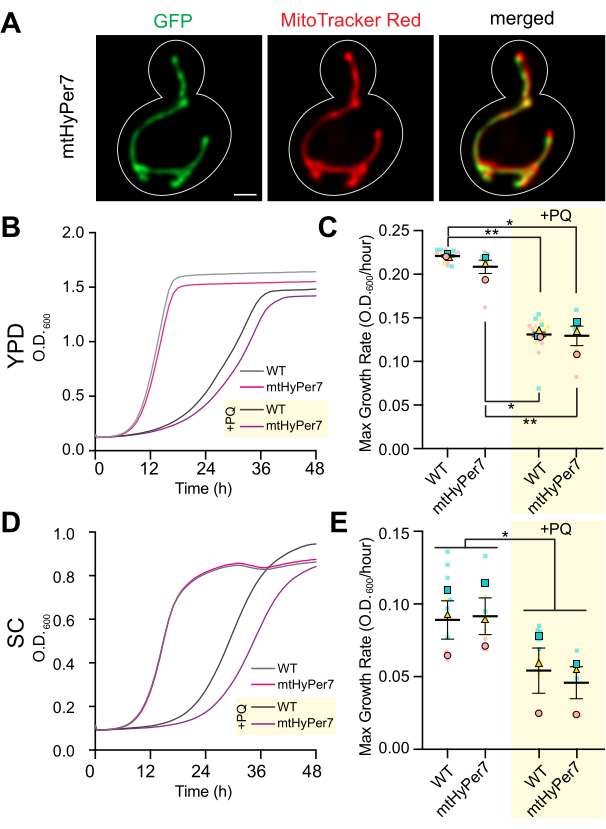
图3mtHyPer7 定位于线粒体,不影响线粒体形态、细胞生长或对氧化应激的敏感性。 (A) 表达 mtHyPer7 的活酵母细胞中线粒体形态。左图:采用 488 nm 激发光观察 mtHyPer7。中图:用 250 nM MitoTracker Red 标记线粒体。右图:图像合并。显示最大强度投影,细胞轮廓以白色标出。比例尺 = 1 µm. (B,C) 在YPD培养基中培养的野生型细胞及表达mtHyPer7的细胞在有(+PQ)或无2.5 mM百草枯存在条件下的生长曲线及最大生长速率。D,E) 野生型和表达 mtHyPer7 的细胞在 SC 培养基中培养时的生长曲线及最大生长速率,培养条件为存在(+PQ)或不存在 2.5 mM 百草枯。所有生长曲线均为三次独立重复实验的平均值。最大生长速率以均值表示 ± 平均值的标准误差(SEM)。通过将对数生长期中段的细胞稀释至OD600 0.0035英寸 200 µL 将相应培养基加入96孔平底板的每孔中。使用酶标仪每20分钟测量一次培养物的OD值,持续72小时。每种菌株/条件设三个重复孔,取平均生长速率作图。最大生长速率(斜率)通过72小时内OD值在240分钟时间间隔内的变化计算得出。缩写:WT = 野生型;PQ = 百草枯。 请点击此处查看该图的放大版本。
2. 细胞培养及成像前准备(图4)
- 将细胞在合成培养基中培养至对数中期,用于成像。5 mL 对数中期培养物可提供足够用于四到五张载玻片的细胞,总计 >用于分析的100个出芽细胞。
- 实验前一天早晨,取一支50 mL锥形管,加入5 mL合成完全(SC)液体培养基,接种一单菌落酵母细胞,制备液体预培养物。
- 在200 rpm的摇床中孵育预培养物 30 °C 6-8 小时。测定 OD600 对数中期的预培养物:约0.5–1 × 10⁷ 细胞/毫升,OD600 ~0.1-0.3.
- 使用前培养物制备对数中期培养物,用于次日的成像。计算前培养物接种量,以获得经 overnight 培养(8–16 小时)后的对数中期培养物。当细胞在 SC 培养基中生长时,其倍增时间约为 2 小时。因此,接种 5 mL overnight 培养物所需的前培养物体积(V)可通过以下公式计算:1):
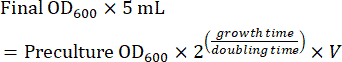 (1)
- 在50 mL锥形管中加入5 mL SC培养基,并接种步骤2.1.3中计算好的预培养液体积。置于摇床中,200 rpm振荡培养 30 °C 8–16 小时。
- 成像当天,确认步骤2.1.4中培养的菌液处于对数中期(OD600 ~0.1–0.3)。通过在6,000 × g下离心浓缩1 mL对数中期培养物中的细胞 × g 30秒。移除上清液,保留10-20 µL 上清液的体积。用移液器轻轻吹打残留的培养基,重悬细胞沉淀。
- 使用吹气球或无绒擦拭纸清除玻璃显微镜载玻片上的灰尘,并添加 1.8 µL 将细胞悬液加到载玻片上。用 #1.5 盖玻片覆盖细胞。170 µm 厚玻璃盖玻片,以倾斜角度缓慢放下盖玻片,避免引入气泡。
- 成像后立即丢弃载玻片,成像时间不超过10分钟。
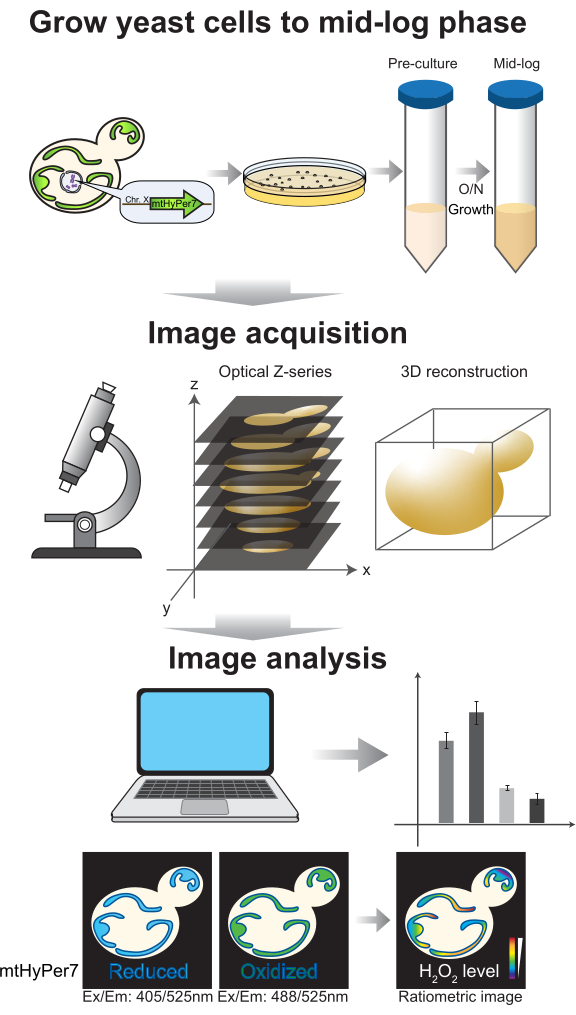
图4细胞生长与成像 表达 mtHyPer7 的芽殖酵母细胞培养至对数中期。通过转盘共聚焦显微镜采集 Z 系列图像,随后进行三维重建与分析。详见方案第 2-3 节。 请点击此处以查看此图的放大版本。
3. 成像条件优化与图像采集(图 5)
- 选择一个 成像模式对于无需后期处理的光学切片,首选转盘共焦成像系统。然而,若信号较弱或该仪器不可用,则可采用宽场成像,并确保按照前文所述方法对宽场图像进行去卷积处理,以消除离焦模糊。38.
- 选择 光学使用高数值孔径的油浸物镜,例如100x/1.45 Plan-Apochromat。
- 选择 激发 和 发射波长。对于 转盘共聚焦成像,使用激光激发 405 nm 和 488 nm 和一个 标准GFP发射滤光片。对于 宽场成像,使用发光二极管(LED)或灯激发,但需确保滤光片设置允许改变激发光,同时使发射光通过标准的GFP滤光片。
注意:例如,可通过从GFP滤光盒中移除激发滤光片,并使用LED或滤光轮来选择激发光来实现这一点。 - 选择 曝光时间 和 光照强度.
- 建立各荧光通道的采集条件,以获得易于检测的信号和可接受的分辨率。例如,在 转盘共聚焦显微镜 与一个 sCMOS相机,使用 2 x 2 二倍采样, 20-40% 激光功率,以及 200-600 毫秒曝光.
- 检查图像直方图。在 12 位图像(4,096 级灰度),确保像素值的总动态范围至少为数百个灰度级,且未达到饱和(图 5A)。此外,确保该范围比噪声水平高一个数量级。噪声水平的计算方法为:按照步骤4.1.3.1中所述方法,测量图像中无细胞区域的像素值的标准差。
- 在选定的成像条件下检测光漂白或成像诱导的线粒体应激。如果出现明显的光漂白或线粒体H2O2 观察到此现象时,应降低激光功率并增加曝光时间或像素合并。
- 采集一系列无时间间隔的延时图像,以评估成像条件对线粒体信号稳定性和氧化应激的影响。使用显微镜采集软件或 ImageJ 测量 平均像素值 以确认各荧光通道的信号稳定性(<5% 变化; 图5B)。如果实验不涉及延时成像,需确保荧光信号在两到三次重复的Z轴层扫(25-35次曝光)中保持稳定。
注意:两个通道的荧光强度均下降可能表明发生了光漂白;然而,若405 nm激发的荧光下降同时伴随488 nm激发通道的荧光增强,则可能提示线粒体H2O2 以及成像引起的细胞器内氧化应激
- 采集一系列无时间间隔的延时图像,以评估成像条件对线粒体信号稳定性和氧化应激的影响。使用显微镜采集软件或 ImageJ 测量 平均像素值 以确认各荧光通道的信号稳定性(<5% 变化; 图5B)。如果实验不涉及延时成像,需确保荧光信号在两到三次重复的Z轴层扫(25-35次曝光)中保持稳定。
- 采集图像。若采集Z轴堆栈图像,需确保数据集中所有图像的Z轴间距相同,并包含完整的细胞。对于出芽酵母,使用以下条件进行成像: Z区间 的 0.5 µm 和一个 总堆栈深度 的 6 µm. 获取透射光图像以记录细胞边界。
- 手动或半自动分析图像 通过 可用的脚本在 补充文件 2 和在 https://github.com/theresaswayne/biosensor,使用 ImageJ 的 Fiji 分发版本39 以及统计软件 R(图6)。在软件说明中,分层菜单命令以 粗体 与 "|",表示一系列菜单选择。选项和按钮在文中以 粗体.
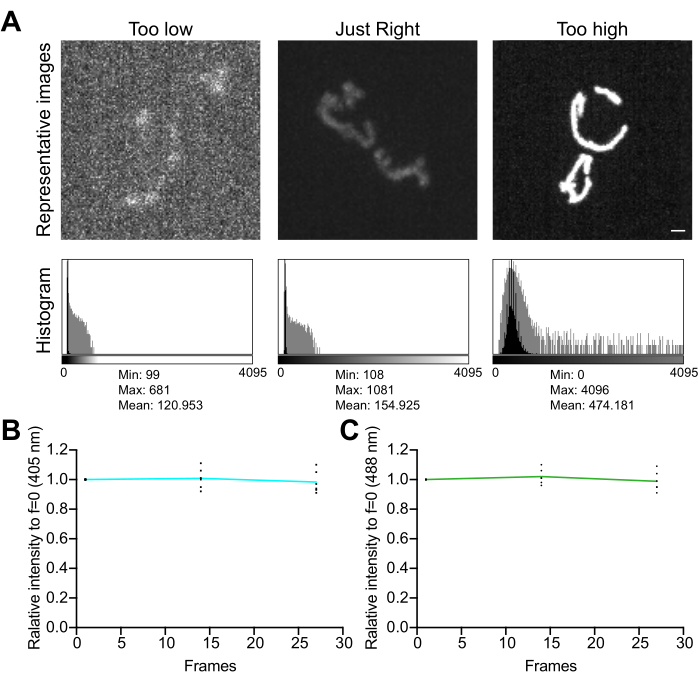
图 5:成像条件的优化。 (A) 图像与直方图在正确强度范围内的评估。图中显示了转盘共聚焦图像的最大强度投影。直方图同时以线性Y轴(黑色)和对数Y轴(灰色)展示,以说明图像的动态范围。左侧面板:强度低、动态范围小且噪声明显的图像。中间面板:具有可接受动态范围(约1,000个灰度级)和强度的图像。右侧面板:对比度过强导致过度饱和的图像。比例尺 = 1 µm。(B,C) mtHyPer7 光漂白的分析。连续采集Z层图像,无时间延迟,将Z层图像叠加求和,并测量线粒体的平均强度,归一化至第一个时间点。结果显示了前三个时间点(共27次曝光)的数据。(B)激发波长:405 nm。(C)激发波长:488 nm。所示数值来自三次独立实验中各三个细胞的平均值。 请点击此处查看该图的放大版本。
4. 使用脚本进行半自动化分析
- 使用生物传感器分析脚本(例如 biosensor.ijm 或 biosensor-image-subtraction.ijm)生成并测量比值图像。
- 选择要使用的脚本。每个脚本的使用流程相似;文本中将具体说明任何差异。
- biosensor.ijm:在此脚本中,背景和噪声通过用户选定的图像区域、固定值或不进行减法进行校正。可分别独立选择背景和噪声校正方法。
- biosensor-image-subtraction.ijm:在此脚本中,背景和噪声均通过同一用户选定的方法处理,该方法可为以下之一:空白图像、图像内用户选定区域、固定值或无校正。
- 在 Fiji 中打开步骤 3.5 获取的多通道 Z 轴层叠图像。打开所需的生物传感器分析脚本文件。在 脚本编辑器 窗口中点击 运行 以执行脚本。在出现的 对话窗口 中输入 请求的信息。
- 选择用于比值计算的分子和分母对应的 通道编号。对于 mtHyPer7,分子为在 488 nm 激发的通道,分母为在 405 nm 激发的通道。如果存在透射光图像,请选择其 通道编号,否则选择 0。
- 从以下四种选项中选择所需的背景减除方法。若背景相对均匀,选择 选择图像区域,该方法直接测量图像中的背景水平。若背景在视野中变化显著,请使用 biosensor-image-subtraction.ijm 脚本并选择 空白图像(为校正采集空白图像,需在无细胞视野或使用无细胞培养基制备的载玻片上,以相同的采集条件获取多通道 Z 轴层叠图像)。固定值 允许输入先前测量的背景值。无 表示不进行背景校正,但可能降低测量精度。
- 选择所需的噪声减除方法。噪声值用作背景减除后掩膜通道图像的下限阈值,以减少探测器读数中随机波动的影响。建议选择 选择图像区域 或 固定值,以输入先前测量的噪声水平,通常在成像条件保持恒定时噪声水平是稳定的。或者选择 无,并使用 1 作为下限阈值,但这可能增加测量的变异性。
- 选择一种阈值算法,以准确且一致地检测线粒体;推荐使用 Otsu 或 MaxEntropy。理想情况下,实验中所有图像应使用相同的算法,但需确保线粒体被准确识别。若实验过程中形态发生变化,可使用不同的阈值方法。
- 选择每细胞的感兴趣区域(ROI)数量。例如,若测量 母细胞-芽体差异,请选择 2。
- 选择保存测量数据和比值图像的输出文件夹。
- 根据 背景 和 噪声校正 的提示进行操作。
- 区域选择(如适用):若为背景或噪声测量选择了 选择图像区域,请根据提示使用 矩形 ROI 工具 在无细胞或荧光伪影的区域绘制背景区域。绘制完成后点击 确定。
- 固定值输入(如适用):若为背景或噪声测量选择了 固定值,请根据提示为每个荧光通道输入 背景 和/或 噪声值。
- 空白参考图像(如适用):在 biosensor-image-subtraction.ijm 脚本中,若为背景或噪声校正选择了 空白图像,请根据提示选择 空白图像文件。
- 标记用于测量的 ROI。在对数中期培养物中,将分析限制于出芽细胞。
- 根据明场图像绘制对应于单个细胞或亚细胞区域的 ROI。ROI 无需精确匹配细胞轮廓,因为仅 ROI 内经阈值处理的线粒体会被测量。或者,可打开先前保存的 ROI 集:在 ROI 管理器中点击 更多,然后选择 ROI 文件。
- 创建每个 ROI 后按 T 键,将所选 ROI 添加至 ROI 管理器。在 ROI 管理器中勾选 显示全部 以记录已标记的细胞。每个添加的区域将在 ROI 管理器列表中显示为编号项。若每细胞分析多个 ROI(例如母细胞和芽体),应对每个分析的细胞以相同顺序标记 ROI。
- 当所有所需 ROI 均已添加至 ROI 管理器后,在 标记细胞 对话窗口中点击 确定。
- 选择测量表格格式。在出现的 多测量 对话窗口中,勾选 测量所有切片。勾选 每切片一行 选项以生成所需格式的表格。使用 process_multiROI_tables.R 脚本处理采用 每切片一行 选项生成的表格;请 不要 勾选 追加结果。重复此步骤 3 次(用于测量分子 [488]、分母 [405] 和比值 [488/405] 图像)。
- 脚本将输出文件保存至步骤 4.1.2.6 中选择的文件夹。
- 选择要使用的脚本。每个脚本的使用流程相似;文本中将具体说明任何差异。
- 计算每个区域或细胞的加权平均比值
- 利用上一步获得的结果,使用公式(2)计算每个区域或细胞的加权平均比值。可计算“逐像素”或“逐区域”比值(详见讨论部分)。
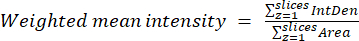 (2)
注:面积和积分密度(IntDen)值仅包含阈值化线粒体内的像素。此计算可通过 process_multiROI_tables.R 脚本和 R 统计软件实现自动化。
- 利用上一步获得的结果,使用公式(2)计算每个区域或细胞的加权平均比值。可计算“逐像素”或“逐区域”比值(详见讨论部分)。
- 生成伪彩比值图像。由于色调(颜色)变化比强度变化更易被人眼察觉,将比值转换为颜色标尺可便于视觉解释。colorize_ratio_image.ijm 脚本可对掩膜后的比值图像进行着色。
- 在 Fiji 中打开步骤 4.1.6 生成的比值 Z 轴层叠图像。打开 colorize_ratio_image.ijm 脚本文件。在 脚本编辑器 窗口中点击 运行 以执行脚本。在出现的对话窗口中输入请求的信息。
- 着色方法:在 非调制 选项中,所有线粒体像素以相同亮度显示。然而,某些图像可能显得嘈杂,因为暗和亮像素均对比值图像有贡献。为减轻此效应,建议使用 强度调制 选项。
- 显示的最小和最大值:这些值控制将被着色的比值范围。选择接近实验中观察到的平均最小值和最大值的数值(基于步骤 4.2.1 计算的加权平均比值)。在同一实验中,务必以相同的成像条件获取所有图像,并以相同的最小值和最大值显示所有图像。
- 投影模式:Z 轴层叠图像以投影形式显示,以呈现完整的线粒体群体。投影在着色前生成。选择 最大值 以生成最大强度投影(保留最大比值和强度值),或选择 平均值 以生成平均强度投影。
- 输出文件夹:选择保存伪彩图像的文件夹。
- 若选择了 非调制 选项,在出现的对话窗口中选择一种配色方案(查找表;LUT)。可使用 Fiji 内置的 火焰 或 彩虹 RGB LUT,或任何 ImageJ .lut 格式的所需 LUT(从 LUT 文件导入)。推荐使用 彩虹平滑40 LUT(包含在 补充文件 2 和 GitHub 上)。
- 脚本将输出文件保存至步骤 4.3.1.4 中选择的文件夹。输出文件包括伪彩比值图像(Color_RGB.tif)以及带有校准条的伪彩比值图像(Color_with_bar.tif),该校准条显示比值与图像颜色之间的对应关系。
- 在 Fiji 中打开步骤 4.1.6 生成的比值 Z 轴层叠图像。打开 colorize_ratio_image.ijm 脚本文件。在 脚本编辑器 窗口中点击 运行 以执行脚本。在出现的对话窗口中输入请求的信息。
5. 手动分析
注意:该方法耗时较长,但可在预处理和设定阈值时提供更大的灵活性。
- 校正背景。
- 在 Fiji 中设置选项。
- 点击 分析 | 设置测量参数在出现的对话窗口中,勾选以下复选框: 面积,平均值,标准差,积分密度,以及 显示标签将小数位数设置为3。
- 点击 编辑 | 选项 | 输入/输出. 在出现的对话窗口中,勾选以下复选框: 保存行号 和 保存列标题.
- 为提高比值计算的灵敏度,需从每个荧光通道中减去背景信号。若背景相对均匀,可测量图像中无细胞区域的平均强度,并将该值从整幅图像中减去(步骤 5.1.2.1)。或者,若背景在视野内差异较大,可使用空白图像进行校正(步骤 5.1.2.2)。
- 减去用户选定的区域, 点击 图像 | 颜色 | 分离通道,并保持所有通道图像打开,因为后续步骤中会用到。针对每个荧光通道,在背景区域(无细胞区域)绘制一个感兴趣区域(ROI),然后点击 分析 | 测量,或对于堆栈,单击 图像 | 层叠 | 测量层叠. 观察出现在 ROI 中的平均值 结果 表格。单击 编辑 | 取消选择全部,然后 流程 | 数学 | 减法在出现的对话窗口中,输入测得的平均背景值,四舍五入至最接近的整数。
注:四舍五入可避免后续二进制运算中的误差。 - 为从数据文件中减去空白图像,需从完全无细胞的视野或用无细胞培养基制备的载玻片上采集空白图像。点击 过程 | 图像计算器在出现的对话窗口中,将操作设置为 减去,并将 Image1 和 Image2 分别设置为细胞图像和空白图像。检查 新建窗口 和 32位结果.
- 减去用户选定的区域, 点击 图像 | 颜色 | 分离通道,并保持所有通道图像打开,因为后续步骤中会用到。针对每个荧光通道,在背景区域(无细胞区域)绘制一个感兴趣区域(ROI),然后点击 分析 | 测量,或对于堆栈,单击 图像 | 层叠 | 测量层叠. 观察出现在 ROI 中的平均值 结果 表格。单击 编辑 | 取消选择全部,然后 流程 | 数学 | 减法在出现的对话窗口中,输入测得的平均背景值,四舍五入至最接近的整数。
- 在 Fiji 中设置选项。
- 为将分析限定于线粒体,需进行分割。由于每个通道的强度可能随生物传感器的状态而变化,因此使用两个通道信号的总和来一致地定义线粒体区域。
- 要创建一个叠加图像,请单击 流程 | 图像计算器. 在出现的对话窗口中,将操作设置为 添加,将 Image1 和 Image2 设置为任意顺序的两个扣除背景后的荧光通道。检查 新建窗口 和 32位结果 等待总和图像出现。
- 在叠加图像上设置阈值以定义线粒体。
- 点击 图像 | 调整 | 阈值. 在 阈值 出现的窗口中,选中 暗背景 和 堆叠直方图设置 方法 到所需的算法(例如, Otsu 或 最大熵)。为确保可重复性,采用自动阈值法;若无合适的自动方法,则手动调整阈值。
注意:理想情况下,同一批实验中的所有图像应使用相同的算法,但在实验过程中形态可能发生改变,某些条件下可能需要采用不同的阈值分割方法。 - 当阈值满意时,单击 应用在出现的对话窗口中,选择 转换为蒙版在出现的对话窗口中,勾选 黑色背景 取消选中其他所有选项,保存生成的掩膜图像以评估分割准确性。
- 点击 图像 | 调整 | 阈值. 在 阈值 出现的窗口中,选中 暗背景 和 堆叠直方图设置 方法 到所需的算法(例如, Otsu 或 最大熵)。为确保可重复性,采用自动阈值法;若无合适的自动方法,则手动调整阈值。
- 将掩膜值从 0 和 255 分别转换为 0 和 1,方法是单击 流程 | 数学 | 除法将数值设置为255,当系统提示时,选择处理所有图像的选项。
- 将掩膜应用于背景扣除后的荧光通道,方法是单击 过程 | 图像计算器在出现的对话窗口中,将操作设置为 倍增将图像1和图像2分别设置为分子通道和掩膜。检查 新建窗口 和 32位结果;用分母通道重复进行掩模乘法运算。
- 将每个掩膜通道的背景像素设置为,以准备进行比值计算 NaN ("非数字").
- 选择被遮罩的分子通道 并点击 图像 | 调整 | 阈值. 在 阈值 窗口,单击 设置,并在出现的对话窗口中设置 最低值 到 计算噪声水平 或用于 1,然后离开 最大值,因为它就是如此.
- 在 阈值 窗口,点击 应用在下一个对话框中,选择 设为 NaN对遮罩的分母通道重复上述步骤。
- 生成比值图像。
- 点击 流程 | 图像计算器在出现的对话窗口中,将操作设置为 分割将图像1和图像2分别设置为经背景扣除的掩膜后分子通道和分母通道。对于mtHyPer7,分子通道为在488 nm激发的氧化态形式,分母通道为在405 nm激发的还原态形式。因此,比值越高,表明H2O2.
- 检查 新建窗口 和 32位结果保存比值图像以供分析。
- 标记并量化感兴趣区域。每个细胞或亚细胞区域均被选中,并作为感兴趣区域(ROI)存储在ROI管理器中。ROI无需与细胞轮廓完全吻合,因为仅对掩膜后的线粒体区域进行测量。
- 使用透射光图像以避免偏差,创建对应于单个细胞(或亚细胞区域)的感兴趣区域(ROI)。在对数中期培养物中,将分析限制在带有芽体的酵母细胞,这些细胞正处于活跃的细胞分裂状态。按压 T 创建每个感兴趣区域(ROI)后,将其添加至ROI管理器。检查 显示全部 用于记录被标记的细胞。
- 单击上方创建的比率图像,然后在 ROI 管理器中单击 更多 … 多参数测量. 在出现的对话窗口中,选中 测量所有切片。做 不 检查 添加结果. 检查 每切片一行 生成所需格式表格的选项。process_multiROI_tables.R 脚本将处理使用该选项创建的表格 每切片一行 R 统计软件中的选项
- 保存结果。单击 结果 窗口,然后 文件 | 保存并将结果表保存为 .csv 或 .xls 格式,文件名需与图像名称一致。
- 保存感兴趣区域(ROIs)。在ROI管理器中,首先确保未选中任何ROI:单击 取消选择,然后 更多 | 保存在 Fiji 中打开保存的 ROI,并与原始图像一同对照,以核对测量结果与图像的一致性。
- 使用上一步骤获得的结果及公式(计算每个细胞或区域的加权平均比值3)。计算以下任意一项 "逐像素" 或 "区域性的" 比值(详见讨论部分)。
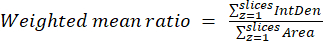 (3)
注意:面积和积分密度值仅包含经阈值处理后的线粒体内像素。该计算可使用 R 统计软件中的 process_multiROI_tables.R 脚本实现自动化。 - 生成彩色比率图像。
注意:彩色图像可以是非调制的,其中所有线粒体像素以相同亮度显示;也可以是强度调制的,其中原始图像中的像素强度用于设定彩色图像中像素的强度。- 生成未调制的彩色图像:
- 打开上述生成的比率图像。点击 图像 | 重复 生成图像的副本,然后关闭原始图像。
- 如果图像是Z轴层叠图像,可选择单层切片,或生成Z轴投影以观察全部线粒体。投影方式可采用最大强度投影(保留每个XY像素坐标的最高比率和强度值)或平均强度投影。
- 点击 图像 | 查找表 并设置LUT为所需的颜色方案(例如, 彩虹 RGB 或 火 [在 ImageJ 中默认可用])。或者,单击 文件 | 导入 LUT 并选择 ImageJ 的 .lut 格式中的任意所需 LUT,例如 彩虹平滑40 (包含在补充文件2及GitHub中)。确保LUT具有 深色 分配给 0 值.
- 通过单击设置显示对比度 图像 | 调整 | 亮度/对比度. 在 亮度/对比度窗口,点击 设置,然后在出现的对话窗口中输入所需的数值 最低限度 和 最大值 显示的数值。为了最大化观察到的颜色差异,将这些值设置为所有图像中获得的最小值和最大值附近。将实验中所有图像的对比度水平设置为相同。
注意:不要 不 点击 应用,因为这会改变像素值,从而在下一步中无法生成准确的校准条。 - 单击以添加颜色校准条 分析 | 工具 | 校准标尺. 在出现的对话窗口中,勾选 覆盖 如有需要,可通过点击移除该工具栏 图像 | 叠加 | 移除叠加.
- 如需要,可通过点击添加比例尺 分析 | 工具 | 比例尺在出现的对话窗口中,设置标尺的所需尺寸、位置和颜色。勾选 覆盖 无论使用何种调色板(LUT),均可选择保持色条颜色不变。
- 通过点击生成用于发表的 RGB 图像 图像 | 叠加 | 合并图层保存生成的图像。
注意:此图像仅用于展示或发表。图像的强度值已作调整,因此无法进行测量。标尺也已永久性地叠加在图像上。
- 创建强度调制图像:
- 点击 图像 | 复制 生成图像副本,然后关闭原始图像。
- 如果图像是Z轴层叠图像,可选择单个切片,或生成Z轴投影以查看所有线粒体。
- 通过单击设置比率图像的显示对比度 图像 | 调整 | 亮度/对比度,以及在 亮度/对比度窗口,点击 设置在出现的对话框中,输入所需的数值 最低限度 和 最大值 显示的数值。为了最大化观察到的颜色差异,将这些值设置为所有图像中获得的最小值和最大值的近似值,并将实验中所有图像的对比度水平设置为相同。点击 应用 重新调整像素值的范围。
- 要创建校准标尺,复制此增强图像,并通过导航至 分析 | 工具 | 标定条. 单击将图像和叠加转换为 RGB 格式 图像 | 叠加 | 合并图层如需要,可将此图例粘贴至第5.6.2.12步获得的强度调制RGB图像上,用于展示或发表。
- 单击以创建一个与原图像宽度和高度相同的新图像 文件 | 新建 | 图像…在打开的对话窗口中,按如下设置参数: 类型:RGB 填充:黑色; 宽度 和 高度:图像的宽度和高度); 切片: 1.
- 通过单击将新堆栈转换为 HSB(色调、饱和度、亮度)图像堆栈 图像 | 类型 | HSB 叠加.
- 单击对比度调整后的比值图像,方法是导航至 编辑 | 全选,然后 编辑 | 复制. 然后,单击 HSB 叠层,选择 第一切片(色调),然后单击 编辑 | 粘贴 以转移比值数据。
- 选择 切片 2(饱和) 的 HSB 叠层. 设置 前景色 至 白色 通过导航至 编辑 | 选项 | 颜色. 点击 编辑 | 全选,然后 编辑 | 填写,在打开的对话框中,选择 无 仅用白色填充当前切片。
- 打开原始数据图像,通过点击分离通道 图像 | 颜色 | 分离通道.
- 使用两个比值通道生成平均值 图像计算器 并点击 过程 | 图像计算器. 在出现的对话窗口中,将操作设置为 平均值,并设置 图像1 和 图像2 到 分子 和 分母图像分别。检查 创建新窗口.
- 单击通过导航到上方创建的平均图像 编辑 | 全选,然后 编辑 | 复制. 然后,单击 HSB 叠层,选择 第三片(Value),然后点击 编辑 | 粘贴 以转移强度值。
- 通过单击将 HSB 叠加图像转换为 RGB 色彩空间 图像 | 类型 | RGB 颜色保存生成的图像。
- 生成未调制的彩色图像:
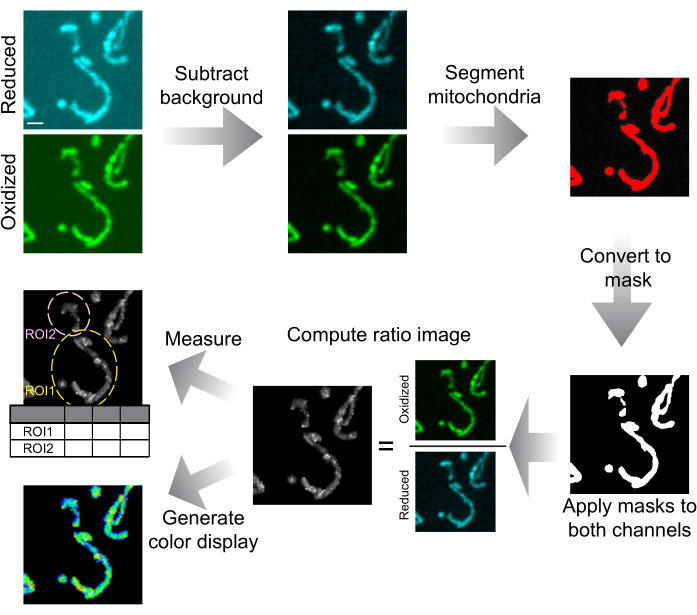
图6:图像分析与展示示意图。 首先对转盘共聚焦图像进行背景扣除。通过阈值分割线粒体,并为每层图像生成对应的掩膜。这些掩膜被同时应用于两个通道,利用掩膜图像计算比值图像。通过绘制感兴趣区域(ROI)来测量细胞或亚细胞区域内的mtHyPer7比值。也可生成彩色编码的比值图像用于数据展示。比例尺 = 1 µm。缩写:ROI = 感兴趣区域。 请点击此处查看该图的高清版本。
结果
为验证 mtHyPer7 是否适合作为检测线粒体 H2O2 的探针,评估了 mtHyPer7 的定位及其对酵母线粒体和细胞健康的影响。为评估 mtHyPer7 的靶向性,在对照酵母细胞及表达 mtHyPer7 的酵母细胞中,使用活细胞特异性线粒体染料 MitoTracker Red 对线粒体进行染色。通过 MitoTracker Red 染色可见,线粒体呈现为沿母细胞-芽体轴排列的长管状结构,并在芽体顶端以及远离芽体的母细胞顶端聚集41。对照组与表达 mtHyPer7 的细胞中,线粒体形态相似。此外,mtHyPer7 与 MitoTracker Red 染色的线粒体共定位(图 3A)。因此,mtHyPer7 能高效且定量地靶向线粒体,且不影响线粒体正常的形态或分布。
接下来,进行了额外的验证实验,以评估mtHyPer7对细胞适应性以及线粒体氧化应激敏感性的影响。表达mtHyPer7的细胞在富含营养或基于葡萄糖的合成培养基(YPD或SC)中的生长速率与未转化的野生型细胞相似(图3B、D)。为了评估mtHyPer7对线粒体氧化应激可能产生的影响,将对照组和表达mtHyPer7的酵母细胞用低浓度的百草枯处理;百草枯是一种具有氧化还原活性的小分子化合物,可在线粒体中积累,并导致细胞器内超氧化物水平升高24,27。如果mtHyPer7的表达本身会诱导线粒体内的氧化应激,或对线粒体起到抗氧化保护作用,则表达mtHyPer7的细胞应分别表现出对百草枯处理的敏感性增加或降低。低浓度百草枯处理导致酵母生长速率下降。此外,在百草枯存在条件下,野生型细胞与表达mtHyPer7细胞的生长速率相似(图3C、E)。因此,该生物传感器的表达并未在芽殖酵母细胞中引起显著的细胞应激,也未改变酵母对线粒体氧化应激的敏感性。
鉴于已有证据表明 mtHyPer7 适用于研究芽殖酵母中的线粒体 H2O2,因此进一步检测了 mtHyPer7 是否能够检测对数中期野生型酵母中线粒体 H2O2 水平,以及由外源添加 H2O2 所诱导的线粒体 H2O2 变化。通过开展 H2O2 滴定实验,测定线粒体中氧化态与还原态(O/R)mtHyPer7 的平均比值。
自动化分析脚本生成了多个输出文件。
比值图像(ratio.tif):由经过背景校正并设定阈值的488 nm和405 nm图像堆栈计算其比值得到的Z堆栈。该堆栈可在Fiji中直接查看,无需额外处理;但在查看前建议按照方案步骤4.3或5.6所述增强对比度和/或对图像进行伪彩处理。
掩膜图像(mask.tif):由用于分析的经阈值处理的线粒体区域组成的Z堆栈。该图像必须用于评估阈值处理的准确性。
用于分析的感兴趣区域(ROIs.zip):将此文件与源图像一同在 Fiji 中打开时,感兴趣区域将叠加显示在图像上,以便对照结果表与源图像。每个感兴趣区域均被重命名为细胞编号和感兴趣区域编号。
包含每个切片在分子、分母和比值图像中经阈值处理后的线粒体面积、平均值和积分密度的测量表(NumResults.csv、DenomResults.csv、Results.csv)。在线粒体缺失或失焦的切片中,记录为 NaN。
记录用于背景和噪声校正、阈值设定及比率计算的参数选项的日志文件(Log.txt)。
mtHyPer7 的 O/R 比值对 H2O2 浓度呈现剂量依赖性反应,在外源添加 1–2 mM H2O2 时达到平台期(图 7)。令人意外的是,暴露于 0.1 mM H2O2 的细胞中 HyPer7 比值低于对照组细胞,尽管该差异无统计学意义。此现象的一种可能解释是应激适应效应(hormesis response),即低水平应激源的暴露可能诱导应激反应(如抗氧化机制),从而降低探针可检测到的活性氧(ROS)水平。相比之下,较高水平的应激源可能压倒细胞内的应激防御系统,导致 HyPer7 检测信号升高。

图7mtHyPer7 对外源添加 H₂O₂ 的响应2O2. (A) 405 nm 和 488 nm 激发下 mtHyPer7 在对数中期细胞中的最大投影,以及不同浓度 H₂O₂ 处理条件下比率成像的平均强度投影2O2伪彩色表示氧化态与还原态 mtHyPer7 的比值(底部标尺)。标尺 = 1 µm细胞轮廓以白色显示;n > 每种条件下100个细胞。B) 不同浓度 H₂O₂ 处理的芽殖酵母细胞中 mtHyPer7 氧化态:还原态比率的定量分析2O2五次独立实验的均值以不同形状和颜色的符号表示。均值 ± mtHyPer7 氧化态与还原态比值的扫描电镜分析:1.794 ± 0.07627(未处理),1.357 ± 0.03295(0.1 mM),2.571 ± 0.3186(0.5 mM),6.693 ± 0.5194(1 mM),7.017 ± 0.1197(2 mM) p < 0.0001(采用Tukey多重比较检验的单因素方差分析)。 p 数值表示为:****p < 0.0001. 请点击此处查看该图的放大版本。
最后,先前的研究表明,功能更健全的线粒体(其还原程度更高且超氧化物含量更低)会优先被酵母子代细胞继承4,并且细胞质过氧化氢酶会被转运至酵母子代细胞并在其中被激活42,43,44,45。这些研究记录了酵母细胞分裂过程中线粒体的不对称遗传现象,以及该过程在子代细胞适应性、寿命和母子代年龄不对称性中的作用。为了检验母细胞与芽体之间是否存在H2O2水平的差异,研究人员测定了芽体和母细胞中的mtHyPer7信号。在酵母细胞内观察到线粒体H2O2水平存在差异,与母细胞中的线粒体相比,芽体中线粒体的H2O2生物传感器信号呈现出虽微弱但具有统计学意义的降低(图8)。这些发现与此前关于芽体中线粒体对氧化应激具有更强保护能力的研究结果一致。同时,本研究也证实mtHyPer7可在出芽酵母中以细胞级和亚细胞级分辨率对线粒体H2O2提供定量检测信号。
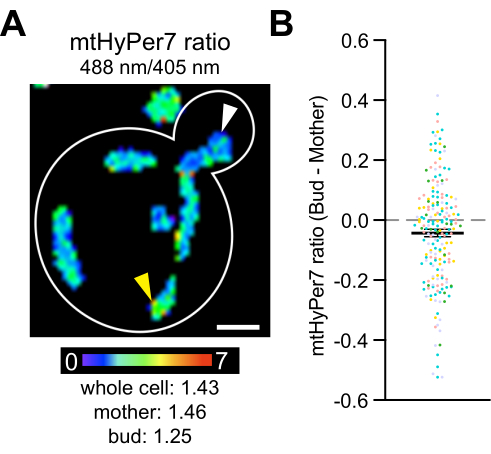
图8:线粒体 H2O2 子细胞中的水平较低。 (A) 代表性细胞中mtHyPer7比率成像的最大投影。伪彩色表示氧化型:还原型mtHyPer7的比率(底部标尺)。比率在亚细胞结构间的差异明显(箭头所示)。比例尺 = 1 µm细胞轮廓:白色。 (B) 芽细胞与母细胞之间 mtHyPer7 比值的差异。对每个单独的细胞,用芽细胞的比值减去母细胞的比值,并将结果作为单个数据点绘图。n = 193 个细胞,来自五次独立实验,每次实验的数据用不同颜色的符号表示。均值 ± mtHyPer7比率在芽细胞与母细胞间差异的扫描电镜分析:-0.04297 ± 0.01266. p = 0.0008(配对) t-测试) 请点击此处以查看此图的放大版本。
补充表 S1:本研究中使用的小鼠品系。 本研究中使用的小鼠品系列表。请点击此处下载该文件。
补充表 S2:本研究中使用的质粒。 所使用质粒的列表。请点击此处下载该文件。
补充表 S3:本研究中使用的引物。 使用的引物列表。请点击此处下载该文件。
补充文件1:生物传感器质粒构建方案。 请点击此处下载该文件。
补充文件 2: 用于自动分析的脚本。 每个脚本均提供示例输入文件和输出文件。请点击此处下载该文件。
讨论
本方案描述了一种利用mtHyPer7作为生物传感器,在活体 出芽酵母细胞中检测线粒体H2O2的方法。该生物传感器采用基于CRISPR的方法构建,并插入酵母基因组中一个保守的无基因区域,无需使用可筛选标记。与质粒携带的生物传感器相比,整合型传感器在所有细胞中表达且表达水平一致,可提供更可靠的定量结果。在构建表达mtHyPer7的细胞时未使用可筛选标记,因此可适用于更广泛的菌株背景,并便于对表达生物传感器的细胞进行遗传改造。mtHyPer7蛋白可被准确靶向至线粒体,且对线粒体形态、功能、分布或细胞生长速率无明显影响。mtHyPer7对外源添加的H2O2表现出剂量依赖性响应。此外,mtHyPer7能够在亚细胞分辨率水平上报导线粒体质量的异质性。最后,与宽场显微镜相比,使用转盘共聚焦显微镜对靶向线粒体的生物传感器进行成像,可减少荧光团的光漂白,并生成高分辨率图像,用于分析亚细胞结构的差异。
局限性与替代方法
该方法不适用于超过 10 分钟的细胞成像,因为细胞在盖玻片下会逐渐干燥。对于长期成像,建议采用琼脂垫法46,或在装有 SC 培养基的玻璃底培养皿中固定细胞。
生物传感器的选择应根据实验条件下目标分子的浓度来决定。如果HyPer7的灵敏度过高,建议选用其他版本的HyPer,例如HyPer3或HyPerRed47,48。但需要注意的是,其他HyPer探针对pH更敏感。若需要更高的灵敏度,基于过氧还蛋白的roGFP可能更为合适(roGFP2Tsa2ΔCR)27。
H2O2 传感器的氧化稳态与氧化速率和还原速率均相关。生物传感器的氧化速率主要由 H2O2 引起,而还原速率则取决于细胞和细胞器中活跃的抗氧化还原系统。已有研究表明,在酵母细胞质中,HyPer7 主要由硫氧还蛋白系统还原,其还原速度比 roGFP2Tsa2ΔCR27 更快。因此,在解读 H2O2 生物传感器测量结果时,应考虑探针不同的还原机制和响应动力学。特别是,若要从生物传感器信号推断 H2O2 水平,必须假设实验过程中还原系统的还原能力保持恒定。除本文所述脚本外,目前已有多种其他软件被免费提供用于氧化还原传感器的分析49。
关键步骤
对于任何生物传感器,关键是要证明该生物传感器本身不会影响所测量的过程。因此,比较每种实验条件下菌株的生长情况和线粒体形态非常重要。此处使用 MitoTracker Red 评估线粒体形态,该染料以膜电位依赖的方式对线粒体进行染色。然而,也可以通过使用四甲基罗丹明甲酯(TMRM)——另一种可感应膜电位的线粒体活体染料,或使用 MitoTracker Green——一种不依赖膜电位的线粒体染料,对未转化细胞和携带生物传感器的转化细胞中的线粒体进行比较。如果怀疑存在有害效应,降低表达水平或改变整合位点可能有助于缓解问题。
验证探针的剂量-反应行为以及成像技术的信噪比,对于获得可靠结果同样至关重要。如果组内变异程度超过组间变异程度,则难以检测到组间差异。组内变异可能源于真实的群体差异,也可能来自检测过程中的噪声。提高信噪比的关键步骤包括图像采集(像素值范围和噪声)、背景扣除以及阈值设定。
在计算步骤中也可以减少噪声的影响。最直接的方法是从比率图像测量值(Results.csv)中计算加权平均强度,其中每个像素代表局部激发效率之间的比率。这将生成一个"逐像素"比率。然而,如果图像的信噪比较低,则可以通过分别对分子和分母通道中的感兴趣区域(ROI)计算加权平均强度,再计算这两个加权平均值之间的比率,从而获得更稳健的结果("逐区域"比率)。
为了选择一种阈值分割方法,可以使用 Fiji 命令 图像 | 调整 | 自动阈值 来自动尝试所有 Fiji 内置的阈值方法。为了评估分割(阈值)效果,可将已保存的掩膜通过点击 编辑 | 选择 | 创建选区 转换为选区,然后添加到 ROI 管理器(按 T 键),并将其激活应用于原始图像文件。如果线粒体未被充分检测到,则应尝试不同的分割方法。
在比较图像时,必须在相同的成像条件下获取所有图像,并以相同的对比度增强方式显示所有图像。
在优化成像条件时,必须考虑线粒体的运动。如果线粒体在405 nm和488 nm激发之间发生显著移动,则比值成像将不准确。建议曝光时间保持在<500 ms,并通过最快可用的方法切换激发光(例如触发脉冲或声光可调滤波器)。在采集Z轴层叠图像时,应在移动到下一个Z轴步进前,完成每个Z轴层面的两种激发。
在结果的显示中,色调(颜色)的变化比强度的变化更易被人类眼睛察觉。因此,将比值转换为颜色标尺,以便更直观地进行视觉解读。着色图像可以是非调制的,即所有线粒体像素以相同的亮度显示;也可以是强度调制的,即使用原始图像中的像素强度来设定着色图像中的像素强度。
修饰与故障排除
作为通过百草枯处理来验证线粒体功能的替代方法,可将细胞进行影印接种或接种至可发酵与不可发酵的碳源中。
用于背景扣除,滚动球扣除(通过导航至 处理 | 减去背景…) 也可用于消除照明不均匀性。应确保细胞的存在不会改变被减去的背景(通过勾选相应选项来验证这一点) 创建背景 并检查结果。
总之,mtHyPer7探针提供了一种稳定且微创的方法,可用于关联活细胞中酵母线粒体的形态学与功能状态,并能够在遗传操作简便且易于获取的模式系统中研究一种重要的细胞应激因子和信号分子。
披露
作者声明不存在利益冲突。
致谢
作者感谢 Katherine Filpo Lopez 提供的专业技术协助。本研究由美国国立卫生研究院(NIH)授予 LP 的资助项目(GM122589 和 AG051047)支持。
这些研究使用了哥伦比亚大学赫伯特·欧文综合癌症中心的共聚焦和特种显微镜共享资源,部分资金来自美国国立卫生研究院/国家癌症研究所癌症中心支持基金 P30CA013696。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 100x/1.45 Plan Apo Lambda 物镜 | 尼康 | MRD01905 | |
| 硫酸腺嘌呤 | Sigma-Aldrich | A9126 | |
| Bacto 琼脂 | BD Difco | DF0145170 | |
| 胰蛋白胨 | BD Difco | DF0118170 | |
| 胰蛋白胨 | BD Difco | DF211705 | |
| 酵母提取物(Bacto) | BD Difco | DF0127179 | |
| BamHI | New England Biolabs | R0136S | |
| BglII | New England Biolabs | R0144S | |
| 羧苄西林 | Sigma-Aldrich | C1389 | |
| 卡尔·蔡司 Immersol 浸油 | 卡尔·蔡司 | 444960 | |
| 葡萄糖(D-(+)-葡萄糖) | Sigma-Aldrich | G8270 | |
| E. cloni 10G 化学感受态细胞 | Bioserch Technologies | 60108 | |
| FIJI | 美国国立卫生研究院 | Schindelin 等,2012 | |
| G418(遗传霉素) | Sigma-Aldrich | A1720 | |
| GFP发射滤光片 | 色度 | 525/50 | |
| 吉布森组装 | New England Biolabs | E2611 | |
| Graphpad Prism 7 | GraphPad | https://www.graphpad.com/scientific-software/prism/ | |
| H2O2 (稳定) | Sigma-Aldrich | H1009 | |
| HO-pGPD-mito-roGFP-KanMX6-HO | Pon 实验室 | JYE057/EP41 | 廖 et al 2020¹ |
| 摇床培养箱 | 新不伦瑞克科学公司 | E24 | |
| KAPA HiFi PCR 试剂盒 | 罗氏测序与生命科学,Kapa生物系统公司,马萨诸塞州威尔明顿 | KK1006 | |
| L-精氨酸盐酸盐 | Sigma-Aldrich | A8094 | |
| 激光 | 安捷伦 | 405 和 488 nm | |
| L-组氨酸盐酸盐 | Sigma-Aldrich | H5659 | |
| L-亮氨酸 | Sigma-Aldrich | L8912 | |
| L-赖氨酸盐酸盐 | Sigma-Aldrich | L8662 | |
| L-甲硫氨酸 | Sigma-Aldrich | M9625 | |
| L-苯丙氨酸 | Sigma-Aldrich | P5482 | |
| L-色氨酸 | Sigma-Aldrich | T8941 | |
| L-酪氨酸 | Sigma-Aldrich | T8566 | |
| mHyPer7 质粒 | 本研究 | JYE116 | |
| 显微镜盖玻片 | ThermoScientific | 3406 | #1.5 (170 µm 厚度) |
| 显微镜载玻片 | 赛默飞世尔科技 | 3050 | |
| MitoTracker Red CM-H2Xros | 赛默飞世尔科技 | M7513 | |
| NaCl | Sigma-Aldrich | S9888 | |
| NEBuilder HiFi 一步连接预混液 | New England Biolabs | E2621 | |
| 尼康 Elements | 尼康 | 显微镜图像采集软件 | |
| 尼康Ti Eclipse倒置显微镜 | 尼康 | ||
| 百草枯(甲基紫精二氯化物水合物) | Sigma-Aldrich | 目录号 856177 | |
| RStudio | Posit.co | 免费桌面版 | |
| 分光光度计 | 贝克曼 | BU530 | |
| Stagetop 培养箱 | 东海日立 | INU | |
| 尿嘧啶 | Sigma-Aldrich | U1128 | |
| 含硫酸铵但不含氨基酸的酵母氮源基础培养基(YNB) | BD Difco | DF0919073 | |
| YN2_1_LT58_X2位点 | Addgene | 177705 | Pianale 等,2021 |
| Zyla 4.2 sCMOS 相机 | 安道尔 |
参考文献
- vander Bliek, A. M., Sedensky, M. M., Morgan, P. G. Cell biology of the mitochondrion. Genetics. 207 (3), 843-871 (2017).
- McBride, H. M., Neuspiel, M., Wasiak, S. Mitochondria: more than just a powerhouse. Current Biology. 16 (14), 551-560 (2006).
- Shi, R., Hou, W., Wang, Z. -Q., Xu, X. Biogenesis of iron-sulfur clusters and their role in DNA metabolism. Frontiers in Cell and Developmental Biology. 9, 735678(2021).
- McFaline-Figueroa, J. R., et al. Mitochondrial quality control during inheritance is associated with lifespan and mother-daughter age asymmetry in budding yeast. Aging Cell. 10 (5), 885-895 (2011).
- Higuchi-Sanabria, R., et al. Mitochondrial anchorage and fusion contribute to mitochondrial inheritance and quality control in the budding yeast Saccharomyces cerevisiae. Molecular Biology of the Cell. 27 (5), 776-787 (2016).
- Higuchi-Sanabria, R., et al. Role of asymmetric cell division in lifespan control in Saccharomyces cerevisiae. FEMS Yeast Research. 14 (8), 1133-1146 (2014).
- Lam, Y. T., Aung-Htut, M. T., Lim, Y. L., Yang, H., Dawes, I. W. Changes in reactive oxygen species begin early during replicative aging of Saccharomyces cerevisiae cells. Free Radical Biology & Medicine. 50 (8), 963-970 (2011).
- Laun, P., et al. Aged mother cells of Saccharomyces cerevisiae show markers of oxidative stress and apoptosis. Molecular Microbiology. 39 (5), 1166-1173 (2001).
- Doudican, N. A., Song, B., Shadel, G. S., Doetsch, P. W. Oxidative DNA damage causes mitochondrial genomic instability in Saccharomyces cerevisiae. Molecular and Cellular Biology. 25 (12), 5196-5204 (2005).
- Roca-Portoles, A., Tait, S. W. G. Mitochondrial quality control: from molecule to organelle. Cellular and Molecular Life Sciences. 78 (8), 3853-3866 (2021).
- Sies, H., Berndt, C., Jones, D. P. Oxidative stress. Annual Review of Biochemistry. 86, 715-748 (2017).
- Sies, H., Jones, D. P. Reactive oxygen species (ROS) as pleiotropic physiological signalling agents. Nature Reviews Molecular Cell Biology. 21 (7), 363-383 (2020).
- Imlay, J. A., Fridovich, I. Assay of metabolic superoxide production in Escherichia coli. The Journal of Biological Chemistry. 266 (11), 6957-6965 (1991).
- Fridovich, I. Mitochondria: are they the seat of senescence. Aging Cell. 3 (1), 13-16 (2004).
- Quinlan, C. L., Perevoshchikova, I. V., Hey-Mogensen, M., Orr, A. L., Brand, M. D. Sites of reactive oxygen species generation by mitochondria oxidizing different substrates. Redox Biology. 1 (1), 304-312 (2013).
- Griendling, K. K., Minieri, C. A., Ollerenshaw, J. D., Alexander, R. W. Angiotensin II stimulates NADH and NADPH oxidase activity in cultured vascular smooth muscle cells. Circulation Research. 74 (6), 1141-1148 (1994).
- Griendling, K. K., Sorescu, D., Ushio-Fukai, M. NAD(P)H oxidase: role in cardiovascular biology and disease. Circulation Research. 86 (5), 494-501 (2000).
- Edmondson, D. E., Binda, C., Wang, J., Upadhyay, A. K., Mattevi, A. Molecular and mechanistic properties of the membrane-bound mitochondrial monoamine oxidases. Biochemistry. 48 (20), 4220-4230 (2009).
- Ramsay, R. R., Singer, T. P. The kinetic mechanisms of monoamine oxidases A and B. Biochemical Society Transactions. 19 (1), 219-223 (1991).
- Ramsay, R. R. Kinetic mechanism of monoamine oxidase A. Biochemistry. 30 (18), 4624-4629 (1991).
- Handy, D. E., Loscalzo, J. Redox regulation of mitochondrial function. Antioxidants & Redox Signaling. 16 (11), 1323-1367 (2012).
- Wood, Z. A., Schröder, E., Robin Harris, J., Poole, L. B. Structure, mechanism and regulation of peroxiredoxins. Trends in Biochemical Sciences. 28 (1), 32-40 (2003).
- Slade, L., et al. Examination of the superoxide/hydrogen peroxide forming and quenching potential of mouse liver mitochondria. Biochimica et Biophysica Acta. General Subjects. 1861 (8), 1960-1969 (2017).
- Pak, V. V., et al. Ultrasensitive genetically encoded indicator for hydrogen peroxide identifies roles for the oxidant in cell migration and mitochondrial function. Cell Metabolism. 31 (3), 642-653 (2020).
- Topell, S., Hennecke, J., Glockshuber, R. Circularly permuted variants of the green fluorescent protein. FEBS Letters. 457 (2), 283-289 (1999).
- Belousov, V. V., et al. Genetically encoded fluorescent indicator for intracellular hydrogen peroxide. Nature Methods. 3 (4), 281-286 (2006).
- Kritsiligkou, P., Shen, T. K., Dick, T. P. A comparison of Prx- and OxyR-based H2O2 probes expressed in S. cerevisiae. The Journal of Biological Chemistry. 297 (1), 100866(2021).
- Baird, G. S., Zacharias, D. A., Tsien, R. Y. Circular permutation and receptor insertion within green fluorescent proteins. Proceedings of the National Academy of Sciences. 96 (20), 11241-11246 (1999).
- Abedi, M. R., Caponigro, G., Kamb, A. Green fluorescent protein as a scaffold for intracellular presentation of peptides. Nucleic Acids Research. 26 (2), 623-630 (1998).
- Onukwufor, J. O., et al. A reversible mitochondrial complex I thiol switch mediates hypoxic avoidance behavior in C. elegans. Nature Communications. 13 (1), 2403(2022).
- Vega, M., et al. Antagonistic effects of mitochondrial matrix and intermembrane space proteases on yeast aging. BMC Biology. 20 (1), 160(2022).
- Torello Pianale, L., Rugbjerg, P., Olsson, L. Real-time monitoring of the yeast intracellular state during bioprocesses with a toolbox of biosensors. Frontiers in Microbiology. 12, 802169(2022).
- Imani, M., Mohajeri, N., Rastegar, M., Zarghami, N. Recent advances in FRET-based biosensors for biomedical applications. Analytical Biochemistry. 630, 114323(2021).
- Zadran, S., et al. Fluorescence resonance energy transfer (FRET)-based biosensors: visualizing cellular dynamics and bioenergetics. Applied Microbiology and Biotechnology. 96 (4), 895-902 (2012).
- Gietz, R. D., Woods, R. A. Transformation of yeast by lithium acetate/single-stranded carrier DNA/polyethylene glycol method. Methods in Enzymology. 350, 87-96 (2002).
- Liao, P. -C., Wolken, D. M. A., Serrano, E., Srivastava, P., Pon, L. A. Mitochondria-associated degradation pathway (MAD) function beyond the outer membrane. Cell Reports. 32 (2), 107902(2020).
- Higuchi-Sanabria, R., Swayne, T. C., Boldogh, I. R., Pon, L. A. Live-cell imaging of mitochondria and the actin cytoskeleton in budding yeast. Methods in Molecular Biology. 1365, 25-62 (2016).
- Liao, P. -C., Yang, E. J., Pon, L. A. Live-cell imaging of mitochondrial redox state in yeast cells. STAR Protocols. 1 (3), 100160(2020).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nature Methods. 9 (7), 676-682 (2012).
- Collins, T. J. ImageJ for microscopy. BioTechniques. 43, 25-30 (2007).
- Chazotte, B. Labeling mitochondria with MitoTracker dyes. Cold Spring Harbor Protocols. 2011 (8), 990-992 (2011).
- Aguilaniu, H., Gustafsson, L., Rigoulet, M., Nyström, T. Asymmetric inheritance of oxidatively damaged proteins during cytokinesis. Science. 299 (5613), 1751-1753 (2003).
- Erjavec, N., Larsson, L., Grantham, J., Nyström, T. Accelerated aging and failure to segregate damaged proteins in Sir2 mutants can be suppressed by overproducing the protein aggregation-remodeling factor Hsp104p. Genes & Development. 21 (19), 2410-2421 (2007).
- Erjavec, N., Cvijovic, M., Klipp, E., Nyström, T. Selective benefits of damage partitioning in unicellular systems and its effects on aging. Proceedings of the National Academy of Sciences. 105 (48), 18764-18769 (2008).
- Erjavec, N., Nyström, T. Sir2p-dependent protein segregation gives rise to a superior reactive oxygen species management in the progeny of Saccharomyces cerevisiae. Proceedings of the National Academy of Sciences. 104 (26), 10877-10881 (2007).
- Davidson, R., Liu, Y., Gerien, K. S., Wu, J. Q. Real-time visualization and quantification of contractile ring proteins in single living cells. Methods in Molecular Biology. 1369, 9-23 (2016).
- Bilan, D. S., et al. HyPer-3: a genetically encoded H2O2 probe with improved performance for ratiometric and fluorescence lifetime imaging. ACS Chemical Biology. 8 (3), 535-542 (2013).
- Ermakova, Y. G., et al. Red fluorescent genetically encoded indicator for intracellular hydrogen peroxide. Nature Communications. 5 (1), 5222(2014).
- Fricker, M. D. Quantitative redox imaging software. Antioxidants & Redox Signaling. 24 (13), 752-762 (2016).
- Yang, E. J., Pernice, W. M., Pon, L. A. A role for cell polarity in lifespan and mitochondrial quality control in the budding yeast Saccharomyces cerevisiae. iSCIENCE. 25 (3), 103957(2022).
重印与许可
