本文详细描述了一种优化的接种方案,该方案利用分离的玉米叶鞘进行可重复的细胞学、生理学和分子水平研究,以分析玉米与真菌植物病原体之间的互作。叶鞘有助于在未固定的组织中实时观察活体植物与真菌之间的细胞相互作用。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
我们优化了一种在玉米叶鞘上接种兼性生物营养和坏死营养型叶部致病真菌的实验方案。该方法改编自最初应用于水稻叶鞘的接种技术,可实现对活体植物细胞内真菌生长与发育过程的直接显微观察。取具有两个完全展开叶环的玉米幼苗叶鞘,用20 µL、浓度为5 x 10⁶孢子/mL的孢子悬液滴注接种,在28°C、相对湿度>95%的黑暗条件下共培养3天。接种后不同时间点取样,经台盼蓝乳酸酚棉蓝染色后封片,利用亮场或微分干涉相差显微镜观察真菌侵染结构、菌丝扩展及宿主细胞反应。该方法避免了叶片表面蜡质层和气孔开闭对侵染过程的干扰,提高了图像清晰度与实验重复性,适用于研究玉米与叶部真菌病原体之间的互作机制。 关键词:玉米,叶鞘接种,兼性生物营养真菌,坏死营养真菌,活体显微观察,真菌侵染,宿主-病原互作5 孢子/mL真菌孢子悬浮液,置于23 °C、持续荧光光照的保湿培养箱中孵育。24–72小时后,用剃刀片去除多余组织,仅保留单层表皮细胞,获得光学透明的样品,可直接成像,无需化学固定或透明处理。在整个实验过程中,植物和真菌细胞均保持活性,可实时观察二者间的相互作用。可通过染色或质壁分离处理叶鞘,以研究侵染和定殖过程中寄主与病原菌细胞的发育细胞学特征及细胞活性。表达荧光蛋白的真菌菌株可单独或混合接种于叶鞘上,以提高分辨率,并便于评估菌株间的竞争性或协同性相互作用。表达荧光融合蛋白的真菌菌株可用于追踪并定量分析这些特定蛋白的生成及其亚细胞定位 在植株中接种后的叶鞘组织可用于提取核酸、蛋白质或代谢物。这些叶鞘检测方法的应用极大地推动了对玉米中真菌致病机制的深入研究,以及对参与致病性的真菌蛋白效应子和次级代谢产物的研究。
引言
在细胞水平上进行空间和时间分析对于理解真菌-植物相互作用的生理学和细胞学至关重要。以往的研究曾使用化学固定1,2,3或透明染色4的叶片组织以及人工膜5来研究叶部病原菌发育及植物-真菌相互作用的细胞学过程。然而,由于在制备光学透明样品以进行成像时存在技术难题,对活体寄主组织中侵染过程进行实时观察(无需固定或透明处理)仍然具有挑战性。
20世纪40年代末,为在明场显微镜下研究活体水稻表皮细胞对稻瘟病菌Magnaporthe oryza6的抗性,建立了一种离体叶鞘接种方法。近年来,通过将该叶鞘方法的改良版本与表达荧光蛋白的真菌转化子相结合,并辅以包括落射荧光显微镜和共聚焦显微镜在内的高性能活细胞成像技术,极大地促进了对Colletotrichum和Magnaporthe属真菌侵染寄主过程的分子、生理及细胞学层面的详细观察7,8,9,10,11,12,13。
本文详细介绍了一种优化的接种方案,利用离体玉米叶鞘观察半活体营养型和坏死营养型叶部真菌病原菌的侵染过程。我们已专门采用该方法研究 禾生炭疽菌(C. graminicola),导致炭疽病叶枯病和茎腐病的病原体,以及 Stenocarpella maydis,可引起 Diplodia 叶枯病和茎腐病。然而,该方法应适用于其他半活体营养型和坏死营养型叶部真菌病原菌。在离体叶鞘中,感染和定殖过程中的细胞学和生理学反应与完整叶片中的反应相似12,14,15此外,半活体营养型病原菌对叶鞘表皮细胞的定殖过程 C. graminicola 与茎秆髓部细胞的定植相似16,17脱离的鞘组织在真菌侵入和定殖方面表现出比叶片或茎秆髓组织更高的同步性和实验可重复性14,16,17,18大多数玉米品种均可用于本实验方案。然而,叶鞘中含有大量紫色色素的自交系或杂交种较不适用,因为这些色素会干扰成像。金禧甜玉米在我们的研究中尤为适用,因其未处理种子可从商业渠道获得,植株对多种叶部病害高度敏感,且在温室中生长良好。1970年代,美国首次暴发的炭疽病茎腐病疫情曾导致印第安纳州甜玉米作物全军覆没。19,20该叶鞘接种方法可用于直接观察和量化活体植物细胞与局部死亡植物细胞中真菌的生长与发育,验证植物对真菌侵染在亲和性/非亲和性反应中的抗性反应,并实时检测同一叶鞘上不同真菌菌株间的相互作用。
访问受限。请登录或开始试用以查看此内容。
方案
注意:该方法的工作流程见图1。

图 1:使用离体玉米叶鞘优化接种方案的步骤。 孢子悬浮液制备、叶鞘接种以及活细胞显微镜样品制备分别用绿色(A)、紫色(B)和橙色(C)方框标出。图片由 BioRender.com 生成。 请点击此处查看此图的放大版本。
1. 植物与真菌材料
- 植物生长
- 在温室中种植玉米幼苗(见材料表),光照/温度条件为14小时光照/27 °C,10小时黑暗/22 °C,使用SC10容器(见材料表)。栽培基质由三份商用盆栽土(见材料表)和两份经蒸汽灭菌的表层土混合而成。
- 每天早晨使用顶部喷灌系统对幼苗浇水2分钟。
- 在V2期收获幼苗,即在土壤表面处剪断植株。当幼苗高度达到5至10 cm,并具有两个可见的叶鞘时,即达到V2生长期21。
- 用湿润的纸巾包裹植株,并将其放入塑料袋中,运送到实验室进行后续处理。
- 真菌培养
- 在无菌条件下复苏保存的真菌硅胶颗粒菌种22,方法是将约50粒受侵染的硅胶颗粒撒在合适的琼脂培养基上。为避免形态变化和致病性丧失,复苏后继代培养不超过3次。通常使用马铃薯葡萄糖琼脂(PDA;见材料表)培养C. graminicola,而燕麦片琼脂(OA;见材料表)用于培养S. maydis。
- 制备PDA培养真菌菌种时,将19.5 g市售的脱水PDA粉末溶于500 mL去离子水(DI)中。制备OA时,将36 g市售的脱水OA在去离子水中煮沸15–30分钟,用三层纱布过滤,滤液定容至500 mL。将培养基高压灭菌以达到灭菌效果。
- 在处理转化菌株时,向熔化并冷却的培养基中添加适当的抗生素(如潮霉素B、遗传霉素)。在500 mL培养基中,潮霉素和遗传霉素的终浓度分别为250 µg/mL和100 µg/mL。
- 将培养物置于最适条件下培养,直至形成产孢菌丝。Colletotrichum graminicola和S. maydis在23 °C、持续荧光光照和环境湿度条件下生长良好。S. maydis在接种后7天(dai)开始产孢,C. graminicola则在14 dai开始产孢。
2. 叶鞘接种
- 玻璃棉滤器组件组装
- 使用重型剪刀或剪刃剪去1.5 mL微量离心管的管盖,并从锥形管底剪除约0.5 mm(参见 材料表).
- 放置一小块玻璃 wool(约 0.5 cm × 0.5 cm;参见 材料清单) 覆盖切开管的中心孔,如图所示 图2.
- 切割玻璃棉时需佩戴手套,因为硼硅酸盐玻璃可能引起刺激。
- 叶鞘支撑架的制备
- 切割一个无裙边的96孔PCR板(参见 材料清单) 按照图示方式放入六个两列(8 × 2 孔)支撑架中 图3A.
- 将双列架翻转,使孔的锥形底部朝上,平面顶部朝下(图3B).
- 将每个支撑物放入含有湿润滤纸的玻璃培养皿中,并盖上皿盖(参见 材料清单)。该装置可作为鞘管的小型湿度室。
- 接种物制备
- 对于每种真菌菌株,将一个组装好的玻璃棉滤器单元放入一个完整的无菌 1.5 mL 微离心管中,如图所示 图2后者用作收集管。
- 标记试管。
- 从产孢培养物中收集分生孢子,首先向每块平板加入 3-4 mL 无菌去离子水进行浸润。在某些情况下,可能需要更多水以在菌落表面形成一层液体。该体系中无需使用润湿剂。
- 用无菌锥形头研杵轻轻研磨琼脂以释放孢子(参见 材料清单)以均匀刮取整个平板。
- 将1 mL孢子悬液无菌接种于玻璃棉滤器装置上,依靠重力使孢子流入收集管中。
- 将含有过滤后孢子悬浮液的收集管在 3,500 x g 5 分钟。孢子应沉淀在微量离心管底部。
注意:离心 C. graminicola 以高于此处推荐的速度离心孢子会导致活力显著下降。 - 将液体倒入可高压灭菌的容器中,加入1 mL无菌去离子水,轻轻振荡以重悬沉淀的孢子。按步骤2.3.6进行离心。
- 用洗涤液清洗孢子3次,以去除可能含有自抑制剂的分生孢子基质,避免其降低萌发或侵入效率。
- 第三次洗涤后,加入300-500 µL 加入无菌去离子水以重悬孢子用于定量。
- 在100倍放大倍数的复式显微镜下使用血细胞计数板测定孢子浓度。计数前无需进行孢子染色。
- 制备 5 x 10⁵ 孢子/mL 悬液,用无菌去离子水配制。
注意: C. graminicola 孢子悬液在室温下放置不得超过4小时,否则会迅速丧失活力。冷藏分生孢子并不能提高其活力。
- 鞘内接种
- 在用真菌菌株接种植物前,检查相关的生物安全操作规范与程序。
- 从V2期幼苗的第一片真叶上取下叶鞘时,用拇指指甲沿叶鞘重叠的边缘划过,轻轻将其从茎芽上松解。在尝试完全取下叶鞘前,需先从茎芽两侧将叶鞘松解开。
- 将回收的叶鞘切成3-5 cm长的片段。接种前无需对叶鞘进行表面消毒。
- 非常轻柔地展开每个片段,以暴露内侧(近轴)表皮层。
- 在准备用于接种的叶鞘时,将剩余切除的叶鞘用湿润的纸巾包裹,以防止干燥。
- 位置 20 µL 在鞘片内表面中脉正上方的中心位置接种真菌孢子悬液,如图所示 图4.
- 将接种后的叶鞘水平放置于玻璃培养皿内的支撑物上,叶鞘中脉朝下,培养皿中含有一张湿润的滤纸,如图所示 图5.
- 每个架子最多可容纳七个鞘状物。每种菌株至少接种五个鞘状物,以补偿样品制备或培养过程中可能丢失的重复样本。
- 将小型湿度培养盒放入已铺有湿润发芽纸的透明储存盒中(参见 材料清单).
- 用盖子盖住盒子。将盒子置于指定条件下孵育 23 °C 在持续光照条件下培养至预定时间,具体时长取决于真菌种类及其拟观察的真菌发育阶段。接种于玉米叶鞘后不同时间点的总结如下: C. graminicola 在……中提供 表1.
- 每天检查叶鞘上的病害症状,并保持萌发环境和滤纸湿润。在未接种的情况下,叶鞘可保存长达6天,且无明显的植物细胞死亡或降解现象。
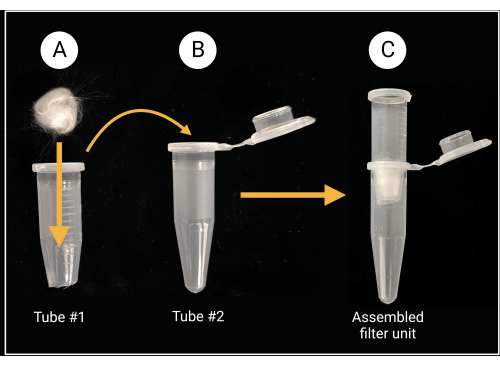
图2:玻璃棉滤器装置的制备。(A) 将一块0.5 cm × 0.5 cm的玻璃棉球置于已切去锥形底部的微量离心管1中。(B–C) 然后将滤器管插入另一支微量离心管2中,组装成完整的滤器装置,用于孢子悬液的制备。由BioRender.com制作。请点击此处查看该图的放大版本。
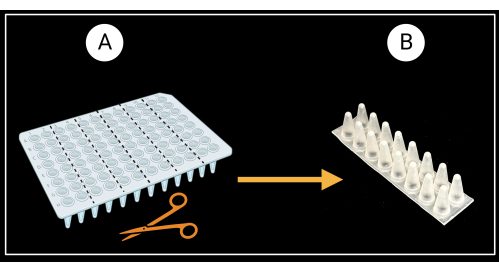
图3:非裙边96孔PCR板的切割方法。(A) 将PCR板切割成六个支撑架,每个为8×2孔。单个鞘状支撑架的示例如(B)所示。叶片鞘水平放置在支撑架上。图片由BioRender.com制作。 请点击此处查看该图的放大版本。

图4:叶鞘接种法。 将单滴接种液直接施加于叶鞘部位的近轴面。 请点击此处查看该图的放大版本。
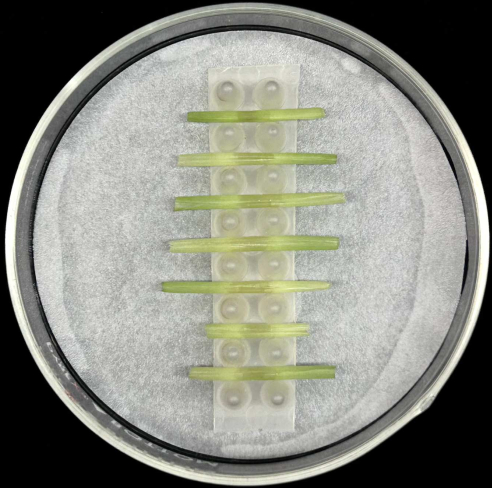
图5:鞘内孵育法。 将接种后的叶片鞘水平放置于含湿润滤纸的玻璃培养皿内的支撑架上。请点击此处查看该图的放大版本。
3. 活细胞显微镜观察
- 显微镜观察的样品制备
- 用无菌去离子水轻轻冲洗鞘状部件,以去除未附着的孢子或表面真菌生长物。
- 将套管置于干净的玻璃显微镜载玻片上(参见 材料清单)使鞘片的近轴面(内侧)朝下,远轴面(外侧)朝上。
- 使用新的单刃剃须刀片(参见 材料清单剪去鞘端约 1 cm,并去除中脉两侧大部分的叶片组织。
- 将剃刀片以一定角度握住 90° 相对于叶鞘进行刮削,以去除远轴面中脉的组织,并暴露接种点上方近轴表面的表皮层。尽量保持厚度均匀。一旦叶鞘被刮削完毕,不建议进一步修剪,以免损伤样本。
- 确保剃除区域的面积不超过1 cm × 1 cm。操作过程中避免按压鞘膜中心部位。当处理接种了不同孢子悬浮液的鞘膜时,应在样品间消毒手套并更换剃刀刀片。
- 准备好一块洁净的玻璃载玻片。从鞘状部分的一边轻轻掀起,并小心转移至新的载玻片上。接种面(近轴面)应朝上,靠近物镜一侧。轻柔封片以避免损伤真菌结构。
- 应用 60 µL 加入无菌去离子水至切片,并加盖 24 mm × 60 mm 玻璃盖玻片(参见 材料表)。操作应缓慢进行,以避免产生气泡。
- 准备进行显微镜观察时,用透明指甲油封固盖玻片(参见 材料表通过在每条边缘放置少量封片剂,然后用指甲油刷将各液滴连接起来,形成无缝密封。
注意:该鞘液方案可与细胞学染色剂(如4′,6-二脒基-2-苯基吲哚(DAPI)、中性红或台盼蓝染色,或通过观察细胞质壁分离来评估植物细胞活力。进行叶鞘染色或细胞质壁分离实验时,切勿封固盖玻片。 - 进行质壁分离实验时,将高渗溶液(0.75 M 蔗糖或 1 M 氯化钠)加至盖玻片的一侧边缘,并用折叠的无绒纸巾从另一侧边缘吸取溶液,使溶液流经样品。染色时,采用类似方法施加染色液。
- 宽场显微镜技术
- 将叶鞘固定在显微镜载玻片上后,在400倍放大倍数下使用宽场光学显微镜检查其真菌定殖情况。
- 为详细观察真菌结构,应使用水浸物镜而非油浸物镜,以获得更高质量的样本图像。由于折射率不匹配可能导致球面像差,从而引起图像质量下降。水浸物镜适用于宽场光学显微镜 显微镜以及共聚焦显微镜。
- 为确定每个叶鞘的定植相对数量,使用100倍放大倍率的宽场光学显微镜,统计每个真菌侵入位点所侵染的玉米细胞数量。该定量方法适用于在比较不同菌株、处理方式和/或发育阶段的统计分析之前作为筛选步骤。
- 共聚焦激光扫描显微镜
- 为了在转基因真菌菌株发育过程中观察玉米组织中的荧光蛋白,需调整基本的图像采集参数。根据所选的荧光标记物确定最佳的激发/发射波长设置。
注意:分析由分泌蛋白构建的荧光融合体时,建议使用60倍水镜。现代共聚焦显微镜配备经过高度校正的水浸物镜,可避免伪影和形态畸变。 - 若需对荧光蛋白进行活细胞成像,应使用未转染的真菌菌株作为自发荧光对照。在倒置共聚焦显微镜上捕获真菌-寄主相互作用动态及 mCherry 荧光蛋白信号时,采用以下图像采集参数:激光功率最高设为 5%,高压(HV)设为 450–600,根据表达水平进行调整,增益设为 1.375 X,偏移量设为 3%,分析每截面最多五个玉米细胞时采用 1 倍光学变焦,观察单个菌丝时采用 2–5 倍光学变焦。
注意:高分辨率Z轴扫描共聚焦图像可提供三维数据,更清晰地展示宿主与病原体之间的实时相互作用。 - 为定量分析与分泌型融合蛋白相对应的荧光强度,可使用共聚焦显微镜制造商提供的图像分析软件,或使用可在线免费下载的图像处理程序(如ImageJ)。有关如何准确量化荧光信号的详细信息,请参阅相关软件使用手册。
- 为了在转基因真菌菌株发育过程中观察玉米组织中的荧光蛋白,需调整基本的图像采集参数。根据所选的荧光标记物确定最佳的激发/发射波长设置。
访问受限。请登录或开始试用以查看此内容。
结果
以下示例描述了采用玉米叶片鞘接种方法后获得的代表性结果。这些示例展示了利用该优化检测方法实时观察和比较玉米-真菌互作过程的简便性、快速性和精确性。活细胞成像还可提取定量信息,为比较性的分子、细胞学和生理学研究提供了有力工具。各项成功应用的更多详细信息可参见所引用的原始文献。
示例数据1:利用染色和质壁分离方法对接种后的玉米叶鞘进行染色,以评估真菌状态并检测植物对真菌侵染的响应
玉米叶鞘已被用于在活体寄主细胞中通过明场显微镜观察并比较Colletotrichum graminicola和Stenocarpella maydis的侵染过程,从而能够详细描述其定殖模式和时间进程(未发表结果;图6)。
这些研究结果表明 S. maydis 通过未分化的菌丝膨大直接快速侵入表皮细胞,不同于 C. graminicola 产生黑色素化的附着胞。进入表皮细胞后,两种...
访问受限。请登录或开始试用以查看此内容。
讨论
此处所述的优化版叶鞘接种方法源自最初为水稻叶鞘开发并应用的原始实验方案6,8,36它能够利用宽场或共聚焦显微镜对活体植物细胞中真菌的生长与发育进行直接、详细的观察。该实验方案适用于在玉米定殖过程中对多种微观现象进行表征、比较和定量分析,包括相容性与非相容性互作期间的真菌发育情况及寄主响应,以及特定真菌蛋白的产生与分泌 在植株中;以及玉米与真菌互作过程中产生的常见或新型致病因子的细胞学与生物化学特性。我们已将该方法应用于玉米的半活体营养型和坏死营养型病原菌。尽管尚未尝试用活体营养型病原菌(如锈菌)进行接种,但由于叶鞘在实验期间保持存活状态,因此该方法也适用于此类病原菌的研究。此外,我们还将该方法应用于高粱叶鞘,以研究寄主和品种特异性抗性的细胞学特征7,37对于高粱叶鞘,该方案的唯一调整是将孢子悬浮液注满整个叶鞘,而不是仅...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在任何竞争性财务利益,也无任何需要披露的内容。
致谢
作者感谢美国农业部-国家食品与农业基金会(USDA-NIFA)提供的经费支持(项目编号 2018-67013-28489 和 2020-70410-32901)。本手稿中表达的任何观点、发现、结论或建议均仅代表作者的观点,不一定反映美国农业部的立场。我们感谢来自巴西“科学无国界”项目的访问学生 Mayara de Silva 提供了 图6A 和 图7D 中的图像。同时感谢肯塔基大学植物病理学系提供使用奥林巴斯共聚焦显微镜的机会。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Axiocam 单色显微镜相机 | ZEISS | 426560-9010-000 | 与 Axioplan 2 显微镜兼容;提供低读出噪声和高速性能,适用于活细胞成像 |
| Axioplan 2 落射荧光显微镜 | ZEISS | N/A | 允许实时观察以及图像/视频采集 生物样品 |
| 台式离心机 24 × 1.5/2 mL | Thermo Fisher Scientific | 75002431 | Sorvall Legend Micro 17;最大转速:13,300 rpm(17,000 × g) |
| 带盖 Falcon 细菌培养用培养皿 | Fisher Scientific | 08-757-105 | 聚苯乙烯材质;疏水表面 |
| 滤纸 | Fisher Scientific | 09-920-115 | Whatman 1 号级,用于培养皿湿润室 |
| FV 3000 激光扫描共聚焦显微镜 | Olympus | N/A | 用于真菌转化子的可视化' |
| 发芽纸 | Anchor Paper Co. | SD7615L | 76# 高克重,用于塑料盒湿润室 |
| 玻璃培养皿 | VWR International | 75845-542 | 1 类 A 级,33 膨胀系数硼硅酸盐玻璃; 完整套装(盖子 + 底部),用于培养皿湿润室 |
| 玻璃棉 | Ohio Valley Specialty Chemical | 3350 | 用于玻璃棉过滤装置 |
| 血细胞计数板/Neubauer 计数室及盖玻片 | VWR International | 15170-172 | 计数室深度 0.1 mm;配有两片 0.4 mm 厚盖玻片 |
| 显微镜盖玻片 | Fisher Scientific | 12-553-457 | 硼硅酸盐玻璃;每包 100 片;22 mm 长,22 mm 宽 |
| 玉米品种 Golden Jubilee 种子 | West Coast Seeds Ltd., Delta, BC, Canada | CN361 | 成熟期 为 95–105 天;种子类型:F1 |
| 微量离心管 | USA Scientific | 1415-2500 | 容量 1.5 mL |
| 显微镜载玻片 | Fisher Scientific | 12-550-123 | Superfrost 白边载玻片;76 mm 长,25 mm 宽 |
| 燕麦培养基(OA) | VWR International | 255210 | Difco 燕麦培养基,BD;500 g |
| 透明指甲油 | Revlon | 43671 | 用于密封显微镜载玻片的透明指甲油;色号 771 Clear |
| 无裙边 96 孔 PCR 板 | USA Sientific | 1402-9500 | 板体积 100 μL |
| 微量离心管研磨杵 | USA Scientific | 1415-5390 | 锥形尖端;聚丙烯材质 |
| PlanApo 60X/1.00 WLSM 水镜物镜 | Olympus | 1-UB933 | 与 Olympus FV 3000 共聚焦显微镜兼容 |
| 马铃薯葡萄糖琼脂(PDA) | VWR International | 90000-758 | Difco 马铃薯葡萄糖培养基,BD;500 g |
| Pro-Mix BX | Premium Horticulture Supply Co. | N/A | 优质通用型栽培基质,配方设计可提供 良好的保水性与适当的排水性能 |
| SC10 圆锥形容器 | Greenhouse Megastore | CN-SS-SC-10B | 直径 1.5 英寸,深度 8.25 英寸,容积 164 mL |
| SC10 圆锥形容器托盘 | Greenhouse Megastore | CN-SS-SCTR98 | 24 英寸长 × 12 英寸宽 × 6.75 英寸高;最多可容纳 98 个 SC10 圆锥形容器 |
| 单刃剃须刀片 | Thermo Fisher Scientific | 17-989-145 | AccuTec 刀片;钢制材质;刀片长度 38 mm |
| 带扣盖储存容器/盒 | Target | 002-02-0405 | 透明可视储存盒,用于湿润室; 外部尺寸:23 5/8 英寸 × 16 3/8 英寸 × 6 1/2 英寸;容量 32 夸脱 |
参考文献
- Cheng, Y., Yao, J., Zhang, H., Huang, L., Kang, Z. Cytological and molecular analysis of nonhost resistance in rice to wheat powdery mildew and leaf rust pathogens. Protoplasma. 252 (4), 1167-1179 (2015).
- Hickey, E. L., Coffey, M. D. A fine-structural study of the pea downy mildew fungus Peronospora pisi in its host Pisum sativum. Canadian Journal of Botany. 55 (23), 2845-2858 (1977).
- Wharton, P. S., Julian, A. M., O'Connell, R. J. Ultrastructure of the infection of Sorghum bicolor by Colletotrichum sublineolum. Phytopathology. 91 (2), 149-158 (2001).
- Latunde-Dada, A. O., et al. Infection process and identity of the hemibiotrophic anthracnose fungus (Colletotrichum destructivum O'Gara) from cowpea (Vigna unguiculata (L) Walp.). Mycological Research. 100 (9), 1133-1141 (1996).
- Bourett, T. M., Howard, R. J. In vitro development of penetration structures in the rice blast fungus Magnaporthe grisea. Canadian Journal of Botany. 68 (2), 329-342 (1990).
- Sakamoto, M. On the new method of sheath inoculation of rice plants with blast fungus, Pyricularia oryzae Cav., for the studying of the disease-resistant nature of the plant. Bulletin of the Institute for Agricultural Research, Tōhoku University. 1 (3), 120-129 (1949).
- Buiate, E. A., et al. A comparative genomic analysis of putative pathogenicity genes in the host-specific sibling species Colletotrichum graminicola and Colletotrichum sublineola. BMC genomics. 18 (1), 1-24 (2017).
- Kankanala, P., Czymmek, K., Valent, B. Roles for rice membrane dynamics and plasmodesmata during biotrophic invasion by the blast fungus. The Plant Cell. 19 (2), 706-724 (2007).
- Khang, C. H., et al. Translocation of Magnaporthe oryzae effectors into rice cells and their subsequent cell-to-cell movement. The Plant Cell. 22 (4), 1388-1403 (2010).
- Mosquera, G., Giraldo, M. C., Khang, C. H., Coughlan, S., Valent, B. Interaction transcriptome analysis identifies Magnaporthe oryzae BAS1-4 as biotrophy-associated secreted proteins in rice blast disease. The Plant Cell. 21 (4), 1273-1290 (2009).
- Sakulkoo, W., et al. A single fungal MAP kinase controls plant cell-to-cell invasion by the rice blast fungus. Science. 359 (6382), 1399-1403 (2018).
- Torres, M. F., Cuadros, D. F., Vaillancourt, L. J. Evidence for a diffusible factor that induces susceptibility in the Colletotrichum-maize disease interaction. Molecular Plant Pathology. 15 (1), 80-93 (2014).
- Valent, B., Khang, C. H. Recent advances in rice blast effector research. Current Opinion in Plant Biology. 13 (4), 434-441 (2010).
- Mims, C. W., Vaillancourt, L. J. Ultrastructural characterization of infection and colonization of maize leaves by Colletotrichum graminicola, and by a C. graminicola pathogenicity mutant. Phytopathology. 92 (7), 803-812 (2002).
- Vargas, W. A., et al. Plant defense mechanisms are activated during biotrophic and necrotrophic development of Colletotricum graminicola in maize. Plant Physiology. 158 (3), 1342-1358 (2012).
- Venard, C., Vaillancourt, L. Colonization of fiber cells by Colletotrichum graminicola in wounded maize stalks. Phytopathology. 97 (4), 438-447 (2007).
- Venard, C., Vaillancourt, L. Penetration and colonization of unwounded maize tissues by the maize anthracnose pathogen Colletotrichum graminicola and the related nonpathogen C. sublineolum. Mycologia. 99 (3), 368-377 (2007).
- Berruyer, R., Poussier, S., Kankanala, P., Mosquera, G., Valent, B. Quantitative and qualitative influence of inoculation methods on in planta growth of rice blast fungus. Phytopathology. 96 (4), 346-355 (2006).
- Belisário, R., Robertson, A. E., Vaillancourt, L. J. Maize anthracnose stalk rot in the genomic era. Plant Disease. 106 (9), 2281-2298 (2022).
- Warren, H. L., Nicholson, R. L., Ullstrup, A. J., Sharvelle, E. G. Observations of Colletotrichum graminicola on sweet corn in Indiana. Plant Disease Reporter. 57, 143-144 (1973).
- Ritchie, S. W., Hanway, J. J., Benson, G. O. How a corn plant develops. Special Report, Iowa State University. 48, (1986).
- Tuite, J. Plant pathological methods: fungi and bacteria. , Burgess Publishing Co. (1969).
- Wicklow, D. T., Rogers, K. D., Dowd, P. F., Gloer, J. B. Bioactive metabolites from Stenocarpella maydis, a stalk and ear rot pathogen of maize. Fungal Biology. 115 (2), 133-142 (2011).
- Daudi, A., O'Brien, J. A. Detection of hydrogen peroxide by DAB staining in Arabidopsis leaves. Bio-protocol. 2 (18), e263-e263 (2012).
- Benhamou, R. I., Jaber, Q. Z., Herzog, I. M., Roichman, Y., Fridman, M. Fluorescent tracking of the endoplasmic reticulum in live pathogenic fungal cells. ACS Chemical Biology. 13 (12), 3325-3332 (2018).
- Lorang, J. M., et al. fluorescent protein is lighting up fungal biology. Applied and Environmental Microbiology. 67 (5), 1987-1994 (2001).
- Liu, C. Y., Zhu, J., Xie, Z. Visualizing yeast organelles with fluorescent protein markers. JoVE (Journal of Visualized Experiments). 182, e63846(2022).
- Westermann, B., Neupert, W. Mitochondria-targeted green fluorescent proteins: convenient tools for the study of organelle biogenesis in Saccharomyces cerevisiae. Yeast. 16 (15), 1421-1427 (2000).
- Lee, A. S. The ER chaperone and signaling regulator GRP78/BiP as a monitor of endoplasmic reticulum stress. Methods. 35 (4), 373-381 (2005).
- Krishnakumar, V., et al. A maize database resource that captures tissue-specific and subcellular-localized gene expression, via fluorescent tags and confocal imaging (Maize Cell Genomics Database). Plant and Cell Physiology. 56 (1), e12-e12 (2015).
- Wu, Q., Luo, A., Zadrozny, T., Sylvester, A., Jackson, D. Fluorescent protein marker lines in maize: generation and applications. International Journal of Developmental Biology. 57 (6-7-8), 535-543 (2013).
- O'Connell, R. J., et al. Lifestyle transitions in plant pathogenic Colletotrichum fungi deciphered by genome and transcriptome analyses. Nature Genetics. 44 (9), 1060-1065 (2012).
- Torres, M. F., et al. A Colletotrichum graminicola mutant deficient in the establishment of biotrophy reveals early transcriptional events in the maize anthracnose disease interaction. BMC Genomics. 17 (202), 1-24 (2016).
- Andrie, R. M., Martinez, J. P., Ciuffetti, L. M. Development of ToxA and ToxB promoter-driven fluorescent protein expression vectors for use in filamentous ascomycetes. Mycologia. 97 (5), 1152-1161 (2005).
- Gordon, C. L., et al. Glucoamylase:: green fluorescent protein fusions to monitor protein secretion in Aspergillus niger. Microbiology. 146 (2), 415-426 (2000).
- Koga, H., Dohi, K., Nakayachi, O., Mori, M. A novel inoculation method of Magnaporthe grisea for cytological observation of the infection process using intact leaf sheaths of rice plants. Physiological and Molecular Plant Pathology. 64 (2), 67-72 (2004).
- Xavier, K. V., Pfeiffer, T., Parreira, D. F., Chopra, S., Vaillancourt, L. Aggressiveness of Colletotrichum sublineola strains from Sorghum bicolor and S. halepense to sweet sorghum variety Sugar Drip, and their impact on yield. Plant Disease. 101 (9), 1578-1587 (2017).
访问受限。请登录或开始试用以查看此内容。
重印与许可
