噬菌体(phages)是一类感染细菌的病毒,是肠道微生物组的重要组成部分。尽管这些共生微生物影响着细菌的适应性和种群动态,但其对肠道稳态及疾病的影响机制仍知之甚少。本实验方案采用小鼠模型研究分离的T4噬菌体,该方法可适用于其他噬菌体-细菌组合的研究。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
噬菌体(phages)是一类特异性感染细菌的病毒,其宿主范围可精确到物种和菌株水平,是目前已知所有生态系统中数量最丰富的生物实体。在细菌群落(如肠道微生物群)中,噬菌体参与调控微生物群的种群动态,并驱动细菌的进化过程。过去十年间,随着溶菌性噬菌体因其对特定宿主的杀伤能力而展现出对抗日益严峻的抗菌药物耐药性细菌的潜力,噬菌体研究重新受到广泛关注。此外,近期研究表明,噬菌体可黏附于肠黏膜,提示其可能在防止细菌侵入下方上皮组织方面发挥保护作用。尤为重要的是,类似于细菌微生物组,噬菌体组的失衡也已被证实与炎症性肠病等疾病的恶化预后相关。先前的研究已证明,通过粪便滤液移植,噬菌体能够调节动物和人类的微生物组,从而有益于宿主健康。随着这一轮研究热潮的到来,建立并标准化在肠道微生物组背景下研究噬菌体的实验方案变得尤为必要。. 本方案提供了一套用于研究分离的T4噬菌体及其细菌宿主的实验步骤, 大肠杆菌, 在小鼠胃肠道的背景下。本文所述方法概述了 如何从噬菌体裂解液开始,将其施用于小鼠,并评估其对细菌宿主和噬菌体水平的影响。 该方案可经修改后应用于其他噬菌体-细菌组合,为研究宿主-噬菌体相互作用动态提供了起点 体内
引言
噬菌体(bacteriophages,简称phages)是一类能够特异性感染并杀死特定物种和菌株细菌的病毒1。在复杂的细菌群落(如肠道微生物群)中,噬菌体发挥着重要作用,已被证实参与调控细菌种群动态并影响细菌的适应性2。在过去十年中,由于耐药性病原微生物的不断出现3,人们对噬菌体研究重新产生了浓厚兴趣,并开始探索将噬菌体疗法作为替代治疗策略的潜力。近年来,裂解性噬菌体混合制剂已通过静脉注射方式在治疗人类严重的抗生素耐药性细菌败血症感染中取得了一定成效3,4。口服噬菌体疗法也被提出作为治疗肠道感染和炎症的潜在抗生素替代方案。此外,研究表明噬菌体可能在粪便滤液移植(fecal filtrate transplants, FFT)中发挥关键作用;FFT 是经过滤去除细菌后的粪便微生物群制剂,已被用于治疗复发性Clostridioides difficile感染(rCDI)5,6 、炎症性肠病(IBD)7,8以及早产仔猪的坏死性小肠结肠炎9。鉴于上述结果,在将新型噬菌体引入已有微生物群落时,必须充分考虑噬菌体与肠道微生物群之间以及噬菌体与哺乳动物宿主之间的相互作用,因为这种引入可能不仅影响其靶向细菌,还可能对整个微生物群落产生间接影响2,10。
噬菌体与其靶向细菌相互作用的研究 体外 已证明对理解肠道中噬菌体与细菌相互作用的机制及影响具有重要意义。在此背景下, 已表明 大肠杆菌-特异性的T4噬菌体,属于目 有尾噬菌体目 需要位于病毒颗粒表面高抗原性外衣壳(Hoc)蛋白中的免疫球蛋白(Ig)样结构域以黏附于肠黏液11此外,Transwell 实验表明,T4 噬菌体能够与上皮细胞培养物相互作用,并通过巨胞饮作用穿过细胞层。12,13这些结果支持了噬菌体能够与其后生动物宿主相互作用的假说,尽管它们无法感染真核细胞。这些模型虽然具有一定的应用价值,但缺乏肠道生态系统中存在的全部复杂相互作用,因而不足以全面探究噬菌体、细菌与后生动物宿主三者之间的相互关系。
小鼠模型是研究复杂环境中噬菌体的重要工具。噬菌体施用的一个理想应用是作为治疗耐药性微生物感染或与慢性炎症性疾病(包括炎症性肠病)相关的病理共生菌的替代策略。然而,新近的文献表明噬菌体行为 体外 不能完全代表 体内 功能。Buttimer 等人14 证明了噬菌体混合制剂能够在简化的人类微生物组共培养物中耗尽靶向细菌 体外,但无法被重复 体内 在定植有相同细菌-噬菌体群落的无菌小鼠中。此外,在常规小鼠肠道微生物组中,T7噬菌体导致其靶向肠道细菌的选择性减少,尽管随着时间推移观察到细菌逐渐恢复,表明靶细菌已进化出抗性15其他研究已证明口服噬菌体与其靶向细菌菌株可在体内共存 体内2,16事实上,除了噬菌体与细菌的共存之外,噬菌体的施用还导致了整体微生物群落组成和功能的广泛变化2,16这一点在疾病背景下具有重要意义,因为多项研究已发现尾病毒目(Caudovirales)相对丰度的增加与炎症性肠病(IBD)之间存在关联。7,8,17 与细菌丰度变化无关7目前尚不清楚这是疾病发病机制的驱动因素还是其结果。
噬菌体研究的历史重点一直集中在噬菌体与其靶向细菌之间的关系上。然而,同样重要的是要考虑噬菌体与后生动物宿主的黏膜、上皮以及免疫系统之间可能存在的相互作用。这些相互作用在宿主对肠道噬菌体感染的整体反应中均发挥着重要作用。为说明这一点,已有研究利用无菌(GF)小鼠模型来探究噬菌体对免疫系统的影响,从而排除微生物群的干扰8。在此系统中,吞噬性免疫细胞(巨噬细胞和树突状细胞)内体中的Toll样受体(TLRs)可检测到噬菌体核酸,进而激活下游信号通路,并刺激T细胞依赖性的干扰素(IFN)-γ8 或I型IFN18的产生。此外,Fluckiger等19 发现记忆性CD8+ T细胞能够识别噬菌体编码的(前噬菌体)抗原,导致T细胞与肿瘤抗原发生交叉反应,从而减轻肿瘤负荷。最后,在小鼠研究中已记录到噬菌体特异性抗体的产生,这些研究通过饮水持续给予动物模型噬菌体8,20,或通过连续数月重复口服灌胃的方式给予噬菌体20,表明噬菌体蛋白具有诱导体液免疫反应的能力。尽管这些噬菌体接种方式有利于免疫系统的最佳且持续的致敏,但它们可能并不能代表噬菌体与肠道环境之间自然发生的相互作用,也无法反映口服噬菌体治疗的动力学特征。迄今为止,仅有少数研究探讨了噬菌体在单菌定植小鼠模型中与单一细菌物种的相互作用21。然而,单菌定植小鼠模型已被证明对于解析单个微生物物种对胃肠道(GI)道及免疫系统发育的特异性影响至关重要22,23,24,未来该模型可能在阐明噬菌体、其靶向细菌与后生动物宿主三者之间相互作用方面继续发挥重要作用。
令人振奋的是,关于肠道噬菌体与肠道共生细菌之间的相互作用,以及后生动物宿主与其体内定植的噬菌体之间的相互作用,仍有许多未知有待探索。本实验方案提供了一套利用无菌小鼠模型研究分离的T4噬菌体及其 细菌对应物E. coli(K-12,BW25113)的操作流程。这些标准化的操作步骤也为优化其他噬菌体-细菌组合提供了基础,只需根据目标组合调整相应的培养参数即可。本文所述方法包括:(1)制备用于小鼠灌胃的T4噬菌体及对照溶剂裂解液;(2)对单一定植E. coli的无菌小鼠进行T4噬菌体口服给药;(3)随时间动态监测小鼠粪便及组织中T4噬菌体的水平。
此处展示的代表性结果所用的纯化T4噬菌体裂解液,源自Rohwer实验室保藏的噬菌体库菌种。T4噬菌体的扩增采用了改良的Phage-on-Tap方法25,如本方案中所提及。该方法可在三天内获得高滴度、低内毒素的噬菌体储备液。采用此方法,可从10 mL培养物中获得≥1010 噬菌体T4的斑块形成单位(pfu)/mL < 0.5 内毒素单位(EU)/mL 常规收集。小鼠口服或静脉注射时推荐的内毒素水平分别为 ≤ 20 EU/mL 和 ≤ 5 EU/kg/h(或对20 g小鼠在1 h内给予0.1 EU),因此该噬菌体制备方法适用于 体内 接种。所有噬菌体储备液均保存在4 °C的盐水镁(SM)噬菌体缓冲液中(配方见步骤1.1.5.1)。 E. coli 在LB培养基中培养。对于不同的噬菌体-细菌配对,可从本方案中调整多种培养基和培养条件。噬菌体也可来源于环境样本,如废水、海水、土壤和肠道内容物,并可根据Sambrook和Russell的方法进行分离和纯化。26 在使用每种噬菌体-宿主组合对应的适宜生长和扩增条件进行制备之前25或者,噬菌体可从商业来源获得(参见 材料表)或从噬菌体文库中获取。
访问受限。请登录或开始试用以查看此内容。
方案
所有实验均按照不列颠哥伦比亚大学动物护理委员会和生物安全委员会批准的方案指南(A23-0113,B19-0038)进行。小鼠饲养于不列颠哥伦比亚大学疾病建模中心的无病原体环境中。C57BL/6小鼠在无菌软膜隔离器内于设施中繁育,并提供无菌小鼠饲料、水、垫料和筑巢材料。小鼠维持在12小时光照/12小时黑暗的循环条件下。实验所用小鼠(包括雄性和雌性)在每项实验中均按年龄匹配,周龄介于6至12周之间,所有实验中小鼠体重为15–30 g。
1. 小鼠口服灌胃用噬菌体及载体裂解液的制备
- 噬菌体纯化与保存液制备
注意:本研究中,T4 噬菌体通过单层琼脂法在细菌菌苔上接种培养并测定滴度,具体方法如下所述。双层琼脂法此前已有报道。25,27 并且同样具有良好的效果。本实验方案选用单层琼脂法,因其可提高噬菌斑的可见度28.- 培养 E. coli 在5 mL无菌LB培养基中,使用无菌聚苯乙烯或玻璃培养管(带盖)。将培养管于 37 °C 以200 rpm振荡培养过夜,直至达到稳定期。
- 在玻璃培养基瓶中,将LB培养基与0.5%琼脂混合,高压灭菌后冷却至 50 °C 或在保持液态的前提下低于该温度,再进行添加。每块培养皿准备15 mL的软琼脂。
- 在软琼脂中添加 MgSO₄4 和 CaCl2 至每种物质终浓度为 1 mM。加入 100 µL 过夜的 E. coli 每 3 mL 琼脂糖培养基加入相应培养物。使用磁力搅拌子轻轻搅拌,使添加物均匀混合并悬浮于琼脂糖中进行培养。
注意:在体积和密度上保持一致 E. coli 即 添加到软琼脂制备中的成分至关重要(详见代表性结果部分)。 - 加入15 mL软琼脂 + E. coli 每培养皿(15 cm 直径)使用移液管加入。平板在室温下静置,待同日使用。
注意:打开皿盖后,平板约 20 分钟即可凝固。此时琼脂仍较柔软,但倒置平板时不会发生移位。 - 在SM缓冲液中将T4噬菌体原液进行8-10个10倍系列稀释。点样 5 µL 每个稀释度点样到平板上。待斑点干燥后,倒置平板并在 37 °C 过夜。
- 为制备Saline Magnesium(SM)噬菌体缓冲液,在1 L去离子H2O,溶解 100 mM NaCl,8 mM MgSO4·7H2O和50 mM Tris-HCl(pH 7.4)。高压灭菌后室温保存。
注意:第二天, E. coli 应在软性LB琼脂中形成连续的菌苔。噬菌斑,或可见的生长抑制透明区域, E. coli 菌苔,将在噬菌体杀死感染菌处出现 E. coli 宿主细胞中出现噬斑。每个噬斑代表一个噬斑形成单位(pfu)。
- 为制备Saline Magnesium(SM)噬菌体缓冲液,在1 L去离子H2O,溶解 100 mM NaCl,8 mM MgSO4·7H2O和50 mM Tris-HCl(pH 7.4)。高压灭菌后室温保存。
- 从软琼脂平板上挑选单个噬菌斑,将无菌移液器吸头插入噬菌斑中心,使吸头末端带有琼脂小块。将带有噬菌斑的琼脂小块重悬于1.7 mL微量离心管中的1 mL SM缓冲液内。涡旋振荡管子1分钟至最大速度以充分混匀。
- 将离心管在4000 x g 室温下离心5分钟,以去除裂解液中的任何碎片。将上清液转移至新的微量离心管中。
- 为扩增分离得到的噬菌体,重复步骤 1.1.1–1.1.3。添加 100 µL 将分离的噬菌体加入含有软琼脂的15 mL等分试样中 E. coli 在锥形管中,倒置管子三次以混匀,然后将琼脂倒入培养皿中。
- 让培养皿干燥后再倒置,并在过夜培养于 37 °C制备不含噬菌体的平板作为草坪对照,以确认 E. coli 活力
注意:过夜培养后,对照组平板应形成均匀的菌苔。 E.coli 而含有噬菌体的培养皿应完全裂解。 - 从平板中提取噬菌体:向噬菌体清除区的平板表面加入 5 mL SM 缓冲液,在室温下以 70 rpm 的速度在摇床上振荡 15 分钟。
- 将平板中的缓冲液收集至一个50 mL锥形离心管中,在4000 x g 室温下离心5分钟,以沉淀琼脂平板中的任何碎片。
- 将 T4 噬菌体储备裂解液收集至新离心管中,并于 4 °C 直至滴定与扩增。
注意:T4 噬菌体可稳定保存超过 10 年25;然而,稳定性取决于噬菌体的类型及储存条件。噬菌体滴度也会随储存时间而变化。噬菌体对冷冻敏感,因此建议在液氮中进行低温保存,并避免冻融循环,以免损伤噬菌体,导致噬菌体滴度下降25. - 滴定T4噬菌体储备裂解液,以确定其pfu/mL浓度,方法如前所述25,29,30高滴度的T4噬菌体储备液将含有108 pfu/mL 或更高
- 实验噬菌体裂解液的制备
- 培养 E. coli 在5 mL LB培养基中,使用无菌聚苯乙烯或玻璃培养管(带盖)。将培养管在37°C下过夜培养 37 °C 以200 rpm振荡培养,直至达到稳定期。
- 过夜传代培养 E. coli 以1:50的比例将菌种接种于100 mL LB培养基中,置于玻璃锥形瓶内。37℃培养 37 °C 以200 rpm振荡培养,直至细菌达到对数早期至中期(约1.5 h)。
注意:可先进行初步生长曲线测定,以确定600 nm处的光密度(OD600范围 此时细菌培养物处于对数生长期。建议使用玻璃锥形管进行培养,因为近期有证据表明噬菌体能够黏附于聚丙烯等塑料材质上31. - 添加 100 µL 步骤1.1中高滴度T4噬菌体储备液 E. coli 传代培养并在 37 °C 振荡反应3小时,或直至新的裂解液完全混合 不再浑浊。将T4噬菌体裂解液收集到50 mL锥形管中,可直接进行后续纯化步骤,或根据需要储存于 4 °C 直到第二天。
注意:较大的噬菌体爆发量(表示每个复制周期释放的病毒粒子平均数量较高)需要在步骤1.2.2中延长细菌亚培养物的孵育时间,以在加入噬菌体储备液前获得更高的细菌密度。 - 4000 × g 离心裂解液 g 室温下离心20分钟,以沉淀残留的细菌和细胞碎片。使用滤器对所得上清液进行过滤除菌 0.22 µm 尼龙滤膜过滤,并将滤液转移至新的50 mL锥形离心管中。
- 向每体积过滤后的T4噬菌体裂解液中加入0.1体积的氯仿,以杀死任何残留的细菌并防止细菌生长。短暂涡旋混匀,室温孵育10分钟。
注意:脂质包膜噬菌体对氯仿敏感,可能导致噬菌体滴度下降25如果需要,可跳过此步骤。
警告:氯仿是一种有毒的有机溶剂,吸入、摄入或经皮肤吸收后可能造成危害。操作氯仿时应在通风橱中进行,并使用适当个人防护装备(PPE)。操作氯仿时应使用玻璃移液管而非聚苯乙烯刻度移液管,因为氯仿与大多数塑料不相容。在步骤1.2.5–1.2.6中可将氯仿置于聚丙烯锥形离心管中,但不应长期储存在塑料管中。 - 将裂解液在4000 x g 室温下静置5分钟,使氯仿与裂解液分层。使用血清移液管小心地将上层裂解液转移至新的50 mL锥形管中,注意不要扰动下方的氯仿层。将氯仿废液弃置到指定的危险液体废物容器中。将裂解液储存于 4 °C 直至次日进行浓缩和缓冲液置换。
- 使用100 kDa离心过滤装置浓缩噬菌体裂解液(参见 材料表) 通过将13 mL噬菌体裂解液加入装置的上层储液室,并在4000 x g 5 分钟,或直至大部分裂解液已通过滤膜进入下方储液室。
注意:离心结束时,裂解液体积应约为 2 mL。随着裂解液的加入,滤膜中噬菌体浓度升高,离心时间可能会逐渐延长。离心过滤装置具有物理性限位结构,可防止其完全离心干燥。32切勿让滤膜干燥(即避免将上层储液室中的所有液体移除),以防影响后续使用。离心时间可能因噬菌体类型和滴度不同而有所差异。 - 使用 P200 或 P1000 移液器,每次离心后在上层储液室中轻柔地将剩余的约 2 mL 裂解液上下吹打,以疏通滤膜。将下层储液室中的滤液弃至废液容器中,保留上层储液室中的浓缩噬菌体。
- 重复步骤 1.2.7–1.2.8,直至全部噬菌体裂解液通过滤膜装置,每次离心后上层储液室中保留约 2 mL 浓缩噬菌体。
- 最后一次离心后,用移液器反复吹吸上层储液池中的剩余裂解液(约 2 mL),以疏通滤膜。通过向储液池上层加入 12 mL SM 缓冲液进行噬菌体洗涤(缓冲液置换),并在 4000 x g 10 分钟,或直至大部分缓冲液通过滤膜。
- 弃去滤液,重复洗涤步骤(步骤 1.2.10)。将剩余的 2 mL 裂解液用 SM 缓冲液重悬,终体积为 10 mL(或更少),用于长期保存。将裂解液转移至 50 mL 锥形离心管中并储存于 4 °C 直至去除内毒素。
注意:此步骤可选择对噬菌体进行滴定,以确认噬菌体裂解液已被浓缩> 108 pfu/mL),并确定在去除内毒素过程中噬菌体的损失情况。 - 通过加入0.4倍体积的1-辛醇去除T4噬菌体裂解液中的内毒素污染(参见 材料清单) 加至裂解液体积的总体积中。
注意:内毒素具有强烈的免疫刺激性,因此需将其去除,以避免引发与噬菌体无关的先天免疫反应25.
警告:1-辛醇是一种具有强烈气味的芳香性有机易燃化合物,对眼睛具有刺激性。操作1-辛醇时应穿戴适当的个人防护装备。所有操作均应在通风橱内进行,以避免吸入蒸气。若在通风橱外操作,应使用封口膜密封管口,防止泄漏。 - 用封口膜密封锥形离心管管盖,防止泄漏。在室温下,于摇床或往复式摇床上以120 rpm振荡1小时,随后孵育于 4 °C 1.5 小时,不振荡。
- 4000 x 离心 g 孵育10分钟,以分离内毒素清除的裂解液与1-辛醇。1-辛醇层将浮于裂解液上层。使用P1000移液器小心尽可能移除全部1-辛醇,并弃置于适当的危险/易燃液体废物容器中。
- 使用18 G针头和10 mL注射器收集位于剩余1-辛醇层下方的噬菌体裂解液,注意避免吸取1-辛醇层。将裂解液保存于 4 °C 直至真空干燥。
- 将1 mL T4噬菌体裂解液分装至无菌的1.5 mL微量离心管中。在4000 × g条件下,打开管盖进行真空离心浓缩。 g 在室温下放置,以蒸发裂解液中残留的1-辛醇。使用真空离心浓缩仪处理3小时,或直至噬菌体裂解液体积减少30%25. 储存于 4 °C 直至滴定完成。
- 滴定噬菌体裂解液以确定其 pfu/mL 浓度。用 SM 缓冲液将所得 T4 噬菌体裂解液稀释至所需浓度,并重新滴定以确认。
- 使用显色法内毒素定量试剂盒,按照制造商说明书定量T4噬菌体裂解液中存在的内毒素(参见 材料表)将最终噬菌体裂解液中的内毒素水平与去内毒素前样品、阴性对照载体、缓冲液及小鼠饮用水进行比较。
注意:1-辛醇会使显色内毒素定量试剂盒失活25. 在定量内毒素之前,通过真空离心步骤去除1-辛醇(步骤1.2.16)。蒸馏水的内毒素含量估计为20 EU/mL25;然而,不同实验设施中供小鼠饮用的水中内毒素含量可能存在差异。如果噬菌体裂解液中的内毒素水平高于饮用水中的含量,建议重复内毒素去除步骤(1.2.12–1.2.16)。 - 将浓缩的、去内毒素的T4噬菌体裂解液在SM缓冲液中保存于 4 °C.
- 用于对照的噬菌体-free 细菌裂解液的制备
注意:可制备不含噬菌体的细菌裂解液作为对照载体,以排除在第1.2步噬菌体裂解液制备过程中产生的细菌污染物(如内毒素)对小鼠接种后可能产生的实验影响。- 从过夜培养的培养物中 E. coli,传代培养 E. coli 1:50 稀释至 100 mL LB 培养基中。不添加噬菌体,继续振荡培养细菌 37 °C 孵育3小时,或与步骤1.2中制备的噬菌体裂解液的孵育时间保持一致。
- 转移 E. coli 将培养物转移至50 mL锥形管中,使用超声波探头裂解细胞(参见 材料表在冰上以30 kHz频率进行3次脉冲处理,每次30秒,以手动裂解细菌细胞。
- 按照步骤1.2的其余部分进行操作,从步骤1.2.4开始,包括所有纯化、洗涤和内毒素去除步骤。
注意:由于不含噬菌体,载体裂解液通过离心滤膜装置浓缩时流速较噬菌体裂解液更快。因此,应将离心时间从5分钟缩短至2–5分钟,以确保超滤膜在长时间离心过程中不会干燥。 - 滴定载体裂解液,以确认其中不含噬菌体。
- 按照制造商说明书,使用显色法内毒素定量试剂盒测定载体裂解液中的内毒素水平。用SM缓冲液稀释载体裂解液,使其内毒素水平与噬菌体裂解液中的内毒素水平相当。
- 替代性实验对照:热灭活噬菌体裂解液的制备
注意:噬菌体无菌裂解物的替代物是热灭活的噬菌体裂解物。热灭活可使噬菌体病毒颗粒解离,而残留的内毒素(如脂多糖,LPS)则具有热稳定性。8,33该方法由 Gogokhia 等人8 以确定完整的、有活性的噬菌体病毒颗粒是否为免疫激活所必需。建议研究人员测试两种方法(无噬菌体) 与. 经加热灭活)并确定哪种对照最符合其实验需求。无论选择哪一种,都必须认识到缓冲液对照通常不适用,因为噬菌体储备液的浓缩和纯化过程需要进行显著的操作处理。- 将步骤1.2中所需体积的经清洁、纯化和稀释的T4噬菌体裂解液转移100 µL 每只小鼠)加入装有管盖锁的无菌微量离心管中。
- 在加热块上加热裂解物 95 °C 15 分钟16.
- 可选:如需去除噬菌体/细菌核酸,可按照 Jakočiūnė 和 Moodley 的方法进行 DNase I 和 RNase A 处理34简而言之:
- 添加 50 µL DNase I 10x 缓冲液, 1µL DNase I(1 U/µL)和 1 µL RNase A(10 mg/mL)(参见 材料表) 到 450 µL 热灭活的噬菌体裂解液
- 孵育裂解物于 37 °C 在加热块中孵育1.5小时,不振荡。
- 通过加入使 DNase I 和 RNase A 失活 20 µL 0.5 M 乙二胺四乙酸(EDTA)34.
- 将裂解液在室温下放置10分钟以冷却,若使用多个离心管,则合并裂解液。储存于 4 °C 直至滴定完成。
- 进行噬菌体滴度测定,以确认裂解液中不存在有活性的T4噬菌体。将热灭活的裂解液储存在 4 °C.
- 使用显色法内毒素定量试剂盒,按照制造商说明书检测热灭活裂解液中的内毒素水平。根据相应噬菌体裂解液中的内毒素水平,用SM缓冲液对热灭活裂解液进行稀释。
2. T4 噬菌体的给药与监测 E. coli 单菌定植小鼠
- 小鼠的单菌定植 E. coli
- 准备 E. coli 用于无菌小鼠给药8 通过培养 E. coli 从单个菌落挑取并在LB培养基中过夜培养。
- 在严格无菌条件下35,给予 200 µL 的 E. coli 通过口服灌胃将菌种接种至饲养在无菌乙烯基隔离器或生物排外密闭笼具中的无菌小鼠。若使用耐氧细菌,亦可通过应用 200 µL 将细菌培养物接种于每只小鼠的背部。
注意:接种剂量将取决于菌株,因为不同细菌表现出不同的耐酸存活能力36,37. Zucoloto 等人35 建议接种 1 x 10⁸ 每只动物的菌落形成单位(cfu)。此处展示的代表性结果来自接种了过夜培养物(未测定cfu)的小鼠。可先开展预实验,以确定能使目标小鼠品系实现稳定定植的接种剂量。经口灌胃给予的细菌体积可能受小鼠年龄和体重的影响。有关允许使用的最大剂量,应参考各实验室或机构的动物伦理方案。此处建议的体积基于灌胃量为小鼠体重的10%(例如, 200 µL 最大剂量适用于20 g小鼠)。某些细菌种类无法耐受胃部酸性环境,因而难以定植于肠道。可先考虑通过灌胃给予 100 µL 1 M NaHCO₃3 中和胃酸2若使用严格厌氧微生物进行定植,需在厌氧条件下培养该微生物,并将其转移至无菌动物设施中的单独密封容器内(每只小鼠1个容器)。打开容器后应迅速完成每次灌胃操作,以尽量减少因暴露于氧气而导致微生物活力下降。 - 监测小鼠的不良健康反应。
注意:如出现不良健康反应,请参照相关动物护理机构制定的标准。可能的不良健康反应包括但不限于:(1)灌胃液误吸入肺:症状包括鼻腔排出气泡, "张口" 呼吸/喘息。(2) 食管穿孔:症状包括健康状况迅速恶化、蜷缩、嗜睡,导致动物在24小时内死亡。(3) 因反复灌胃引起的食管炎症:症状包括插入灌胃针困难。(4) 因微生物组改变引起的腹泻。 - 通过每周至少一次的培养和/或16S rRNA测序来确认粪便颗粒中的细菌定植情况35.
注意:若在无菌隔离器内定植繁殖鼠以生产实验小鼠,需至少提前9周规划,以获得6周龄的第一代子代(F1)实验小鼠。 Alternatively,无菌成年小鼠可进行单菌定植。在此方法中,建议在定植后等待7周再进行噬菌体接种,因为这是将复杂微生物群引入无菌小鼠后肠道黏膜达到稳定所需的时间。38.
- T4噬菌体口服接种 E. coli 单菌定植小鼠
- 将T4噬菌体裂解液和阴性对照用SM缓冲液稀释至预定浓度。根据Hsu等人的方法。2,稀释噬菌体裂解液,以便给予 2 x 10⁶ 每只小鼠空斑形成单位2.
注意:可根据噬菌体的稳定性使用更高或更低浓度的噬菌体 体内. 剂量为 2 x 102,2 × 104 和 2 x 10⁶ 每只小鼠接种的 T4 噬菌体空斑形成单位(pfu)可导致肠道内稳定且长期的定植,且该定植似乎不具有剂量依赖性(见代表性结果部分)。因此,应预先开展噬菌体-细菌动力学的试点研究。 体内 在大规模实验之前。 - 在无菌、已知菌群条件下,对每只小鼠进行灌胃 100 µL 1 M NaHCO₃ 溶液,经高压灭菌3 以中和胃酸。等待10分钟,然后进行灌胃 100 µL T4噬菌体裂解液或空白对照
- 监测小鼠的不良健康反应。
- 将T4噬菌体裂解液和阴性对照用SM缓冲液稀释至预定浓度。根据Hsu等人的方法。2,稀释噬菌体裂解液,以便给予 2 x 10⁶ 每只小鼠空斑形成单位2.
3. 监测T4噬菌体水平 体内
注意:小鼠接种噬菌体后,可在粪便或组织样本中测定噬菌体及目标细菌的浓度。这可提供有关噬菌体感染动力学以及两种生物定植动态的信息。
- 通过点样法测定粪便颗粒中T4噬菌体的浓度
- 将每只小鼠的粪便颗粒收集到无菌的、预先称重的微量离心管中,用于检测T4噬菌体和E. coli的水平。收集后立即将样品置于冰上,直至进行点样。
注意:在样品收集与点样之间的间隔期间,应将样品置于冰上,以减缓耐氧细菌的生长。数小时内仍可能发生需氧细菌的增殖,或因氧气暴露导致部分厌氧细菌死亡,从而引起细菌计数偏差。因此,应在样品采集后尽快完成细菌和噬菌体的点样。专性厌氧菌无法耐受氧气暴露。为保存样品完整性,应将样品收集至密封管中,并在采集后尽快转移至厌氧培养箱中。若在粪便样品中未检测到菌落生长,可考虑采用16S rRNA qPCR等替代方法进行细菌定量。 - 记录每根离心管的最终重量,并通过减去初始管重计算样品重量。该数值将用于将T4噬菌体和E. coli的浓度标准化为单位样品重量(分别为pfu/g或cfu/g)。
- 向每根管中加入1 mL无菌SM缓冲液,并以最大速度充分涡旋振荡(>1分钟),以均质化粪便颗粒。若样品重量小于15 mg,可加入较小体积的SM缓冲液。记录每个样品所加SM缓冲液的体积,用于后续计算cfu/g或pfu/g。
- 将每个样品取20 µL加入180 µL SM缓冲液中,按10倍梯度制备8个(或更多,视预期噬菌体浓度而定)连续稀释系列。在加入第一管/孔前,短暂涡旋振荡各均质化样品以混匀。每次加样之间使用移液器吹打混匀,并在每次稀释时更换吸头,以防止因样品残留导致噬菌体或细菌计数偏高。
注意:若样品中存在纤维或碎屑影响移液操作,可向粪便悬液中额外添加缓冲液,进一步稀释原始样品。 - 将每个稀释度的5 µL样品点样于含有E. coli的LB软琼脂平板(用于噬菌斑检测)或LB琼脂平板(1.5%琼脂,用于细菌菌落检测)上,以测定各样品中T4噬菌体和E. coli的浓度。为确保准确性,每个样品应设三个重复点样。
注意:若在96孔板中进行连续稀释,可使用8通道P20多通道移液器将每列稀释后的样品转移至平板上。即使从最稀释到最浓缩方向操作,也应在每次稀释后更换吸头,因为噬菌体可能黏附于移液器吸头内壁,从而改变加入新孔中的噬菌体量31。 - 待每个点样区域完全干燥后,将平板倒置并放入培养箱中。于37 °C过夜培养。
- 对每个样品,选择每点可计数噬菌斑数为3–30个的稀释度。记录该点的噬菌斑数量及对应的稀释倍数。
- 通过将噬菌斑数除以每点所点样的体积(µL),得到pfu/µL。再乘以稀释倍数和每个样品所加SM缓冲液的总体积,得到pfu/样品。最后除以样品重量,得到pfu/g30。

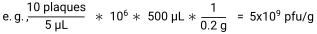
- 将每只小鼠的粪便颗粒收集到无菌的、预先称重的微量离心管中,用于检测T4噬菌体和E. coli的水平。收集后立即将样品置于冰上,直至进行点样。
- 实验终点时的组织取样
- 在每个选定的时间点,根据机构批准的动物伦理操作规程实施小鼠安乐死,并将盲肠内容物、小肠和大肠内容物以及任何感兴趣的组织收集至无菌的、预先称重的2 mL圆底微量离心管中。
- 记录每根离心管的最终重量,以计算样品重量。将组织和盲肠内容物置于冰上保存,并于同日完成点样。
- 向每根管中加入无菌SM缓冲液,并记录所加体积。
- 对于盲肠和肠道内容物,参照步骤3.1.3充分涡旋振荡样品(>1分钟)。
- 对于组织样品,向每根管中加入一颗无菌金属珠。使用组织破碎仪(见材料表)在20 Hz条件下均质化组织5分钟,或直至组织完全解离且悬液均匀。
注意:若组织未能充分均质化,可考虑增加SM缓冲液的体积、延长均质化时间,或将均质频率提高至30 Hz。也可使用组织匀浆器进行组织解离,同时有助于保持细菌和噬菌体的回收率39,40。匀浆器可在更高频率下运行,同时维持细菌结构完整性。 - 将各样品按10倍梯度进行连续稀释,并参照步骤3.1.4–3.1.8进行点样,以测定各样品中E. coli和T4噬菌体的浓度41。
访问受限。请登录或开始试用以查看此内容。
结果
为研究T4噬菌体与E. coli在小鼠肠道内的相互作用,制备、清洗并纯化了T4噬菌体及对照溶剂裂解液(图1A)。通过噬斑实验测定T4噬菌体裂解液的滴度,并用SM缓冲液稀释至2 × 10⁷ pfu/mL(每只小鼠2 × 106 pfu)。同时对对照溶剂裂解液进行滴度测定以确认无活性噬菌体存在,并用与T4噬菌体裂解液相同体积的SM缓冲液稀释。使用显色法内毒素定量试剂盒测定稀释后裂解液中的内毒素水平。T4噬菌体、热灭活噬菌体及对照溶剂裂解液的内毒素水平均低于饮用水可接受限值(<20 EU/mL)25 (图1B)。由于对照溶剂裂解液的内毒素含量与T4噬菌体裂解液相近,因此被认为适合作为对照。热灭活噬菌体裂解液(热处理前为2 × 10⁷ pfu/mL)的内毒素水平低于对照溶剂和T4噬菌体裂解液。根据试剂盒说明书,对经1-辛醇处理的样品,通过向对照溶剂裂解液中添加内毒素标...
访问受限。请登录或开始试用以查看此内容。
讨论
与细菌相比,微生物组中噬菌体的研究面临重大挑战。具体而言,噬菌体缺乏一种所有噬菌体共有的保守系统发育标记,而这种标记在细菌和真核生物中分别由16S和18S核糖体亚基提供,使得原核和真核物种的测序与鉴定得以简便进行。42然而,随着下一代测序技术的进步,包括读长的增加、通量的提高以及成本的降低,噬菌体基因组数据库正在迅速扩展42,43,44。随着噬菌体发现的基础工作不断推进,噬菌体研究如今比以往更加易于开展。作为肠道微生物组的关键成员以及地球上遗传多样性最丰富的生物体,噬菌体为探究微生物组复杂性的新研究提供了极具吸引力的切入点。本文所述的实验方案聚焦于在定植了目标细菌的小鼠中研究已知的噬菌体种类。需要注意的是,这些方案仅为研究噬菌体提供了指导性框架 体内 并可随着该领域的发展而进一步拓展。
随着20世纪40年代抗生素的问世,噬菌体在治疗...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
作者谨此申明,本研究所进行的区域是 xwməθkwəy̓əm(Musqueam)民族的传统、祖传且未经割让的领地。该土地位于历来为 Musqueam 人民的学习之地,千百年来,他们的文化、历史与传统在此地代代相传。我们鼓励各界人士通过 https://native-land.ca 了解更多有关其生活与工作所在原住民土地的信息。作者感谢来自 Natural 加拿大自然科学与工程研究委员会(NSERC)加拿大研究生奖学金-硕士(N.P.),BC省迈克尔·史密斯健康研究会培训生奖(RT-2023-3174,授予MH),加拿大自然科学与工程研究委员会(NSERC)发现基金项目(RGPIN-2019-04591,授予C.T.;RGPIN-2016-04282,授予LCO),加拿大先进研究所/人类与微生物组项目(FL-001253 Appt 3362,授予C.T.),迈克尔·史密斯健康研究基金会学者奖(18239,授予C.T.),加拿大卫生研究院(PJT-159458,授予LCO)以及加拿大创新基金会(34673,授予LCO;38277,授予CT)。我们感谢不列颠哥伦比亚大学疾病建模中心(UBC Centre for Disease Modelling)和ubcFLOW提供的技术支持,上述机构由不列颠哥伦比亚大学GREx生物韧性倡议(UBC GREx Biological Resilience Initiative)资助, 并向Osborne实验室和Tropini实验室的成员致以感谢,感谢他们对稿件提出的宝贵讨论与评审意见。 图1A 和 图 2A 使用 Biorender.com 创建。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1-辛醇(99%) | 赛默飞世尔科技 | CAAAA15977-AP | |
| 50 ml PES Steriflip 无菌一次性真空滤器单元 | Millipore Sigma | SCGP00525 | |
| 琼脂糖(低电渗/多用途/分子生物学级) | Fisher BioReagents | BP160-500 | |
| Amicon® 100 kDa Ultra-15 离心过滤装置,Ultracel-100 | Millipore Sigma | UFC910008 | |
| BD Microtainer® SST 管 | BD 医疗 | 365967 | |
| 生物排阻气密笼具(ISO笼具) | Techiplast | 1245ISOCAGE | |
| C1000 Touch™ 带有96孔快速反应模块的热循环仪 | BioRad | 1851196 | |
| 二水合氯化钙(白色晶体至粉末) | Fisher BioReagents | BP510-500 | |
| 1.5 mL 离心管盖帽,100 个/包 | 安德温科学公司 | 16812612 | |
| 氯仿(乙醇作为防腐剂/符合美国化学会标准) | Fisher | C298-500 | |
| 铜包钢珠(4.5 mm) | Crosman Corporation | 0767 | |
| DNeasy 血液 & 组织试剂盒(50) | 赛默飞世尔科技 | 69504 | |
| DreamTaq Green PCR Master Mix (2X) | 赛默飞世尔科技 | K1081 | |
| 乙二胺四乙酸(EDTA)二钠盐溶液,分子生物学用,0.5 M 水溶液 | Sigma Aldrich | E7889 | |
| Fisher BioReagents™ 琼脂,粉末/薄片,Fisher BioReagents™ | Fisher Bioreagents | BP1423-500 | |
| Fisher BioReagents™ 微生物培养基:LB肉汤(粉末)- Lennox | Fisher Bioreagents | BP1427-500 | |
| GeneRuler 100 bp DNA Ladder | 赛默飞世尔科技 | SM0241 | |
| Green FastMix® qPCR 混合液,1250 次反应 | QuantaBio | 95072-012 | |
| 用于隔离笼盖的高效过滤器,可高压灭菌 H14 级过滤器,适用于 IsoLine - 经辐照处理 | Techiplast | UISOHEPAXTBOX-300 | |
| 七水硫酸镁 | Fisher BioReagents | BP213-1 | |
| MaxQ 6000 恒温摇床 | 赛默飞世尔科技 | 8354-30-0009 | |
| 微生物学培养基:LB 肉汤(粉末)- Lennox | Fisher BioReagents | BP1427-500 | |
| 带锁定扣盖的微量离心管,2 ml | Fisher | 14-666-315 | |
| Parafilm 密封膜 | 贝米斯 | PM-996 | |
| 噬菌体储备液 | 卡罗来纳生物供应公司 | n/a | |
| PicoLab® 小鼠饮食20 EXT | LabDiet | 5R58 | |
| 皮尔斯™ 显色法内毒素定量试剂盒 | 赛默飞世尔科技 | A39552S | |
| RNase A(17,500 U) | Qiagen | 19101 | |
| 无RNase的DNase试剂盒 | Qiagen | 79254 | |
| 碳酸氢钠(细白色粉末) | Fisher Chemical | BP328-500 | |
| 氯化钠(结晶/美国化学会认证) | Fisher Chemical | S271 | |
| 超声波破碎仪(探头型号 CL-18;电源型号 FB50) | Fisher Scientific | n/a | |
| 无菌柔性薄膜隔离器 | 生物洁净等级 | n/a | |
| SYBR™ 安全型DNA凝胶染料 | Invitrogen | S33102 | |
| T100热循环仪 | 伯乐(BioRad) | 1861096 | |
| T4噬菌体引物,正向(CCACACATAGCGCGAGTATAA) | IDT | n/a | |
| T4噬菌体引物,正向(GAAACTCGGTCAGGCTATCAA) | IDT | n/a | |
| TissueLyser II | Qiagen | 85300 | |
| Tris-HCl,1 M 溶液,pH 8.0,分子生物学级,超纯 | 赛默飞世尔科技 | AAJ22638AE | |
| 水(无DNASE、RNASE) | Fisher BioReagents | BP2484100 |
参考文献
- Rohwer, F., Segall, A. M. A century of phage lessons. Nature. 528 (7580), 46-47 (2015).
- Hsu, B. B., et al. Dynamic modulation of the gut microbiota and metabolome by bacteriophages in a mouse model. Cell Host & Microbe. 25 (6), 803-814.e5 (2019).
- Gordillo Altamirano, F. L., Barr, J. J. Phage Therapy in the postantibiotic era. Clinical Microbiology Reviews. 32 (2), (2019).
- Schooley, R. T., et al. Development and use of personalized bacteriophage-based therapeutic cocktails to treat a patient with a disseminated resistant Acinetobacter baumannii infection. Antimicrobial Agents and Chemotherapy. 61 (10), (2017).
- Ott, S. J., et al. Efficacy of Sterile Fecal Filtrate Transfer for Treating Patients With Clostridium difficile Infection. Gastroenterology. 152 (4), 799-811.e7 (2017).
- Zuo, T., et al. Bacteriophage transfer during faecal microbiota transplantation in Clostridium difficile infection is associated with treatment outcome. Gut. 67 (4), 634-643 (2018).
- Norman, J. M., et al. Disease-specific alterations in the enteric virome in inflammatory bowel disease. Cell. 160 (3), 447-460 (2015).
- Gogokhia, L., et al. Expansion of bacteriophages is linked to aggravated intestinal inflammation and colitis. Cell Host & Microbe. 25 (2), 285-299.e8 (2019).
- Brunse, A., et al. Fecal filtrate transplantation protects against necrotizing enterocolitis. The ISME Journal. 16 (3), 686-694 (2022).
- Duerkop, B. A., Clements, C. V., Rollins, D., Rodrigues, J. L. M., Hooper, L. V. A composite bacteriophage alters colonization by an intestinal commensal bacterium. Proceedings of the National Academy of Sciences of the United States of America. 109 (43), 17621-17626 (2012).
- Barr, J. J., et al. Bacteriophage adhering to mucus provide a non-host-derived immunity. Proceedings of the National Academy of Sciences of the United States of America. 110 (26), 10771-10776 (2013).
- Nguyen, S., et al. Bacteriophage Transcytosis provides a mechanism to cross epithelial cell layers. mBio. 8 (6), (2017).
- Bichet, M. C., et al. Bacteriophage uptake by mammalian cell layers represents a potential sink that may impact phage therapy. iScience. 24 (4), 102287(2021).
- Buttimer, C., et al. Impact of a phage cocktail targeting Escherichia coli and Enterococcus faecalis as members of a gut bacterial consortium in vitro and in vivo. Frontiers in Microbiology. 13, 936083(2022).
- Li, Y., et al. Bacteriophages allow selective depletion of gut bacteria to produce a targeted-bacterium-depleted mouse model. Cell Reports Methods. 2 (11), 100324(2022).
- Reyes, A., Wu, M., McNulty, N. P., Rohwer, F. L., Gordon, J. I. Gnotobiotic mouse model of phage-bacterial host dynamics in the human gut. Proceedings of the National Academy of Sciences of the United States of America. 110 (50), 20236-20241 (2013).
- Federici, S., et al. Targeted suppression of human IBD-associated gut microbiota commensals by phage consortia for treatment of intestinal inflammation. Cell. 185 (16), 2879-2898.e4 (2022).
- Sweere, J. M., et al. Bacteriophage trigger antiviral immunity and prevent clearance of bacterial infection. Science (New York, N.Y.). 363 (6434), (2019).
- Fluckiger, A., et al. Cross-reactivity between tumor MHC class I-restricted antigens and an enterococcal bacteriophage. Science (New York, N.Y.). 369 (6506), 936-942 (2020).
- Majewska, J., et al. Induction of Phage-Specific Antibodies by Two Therapeutic Staphylococcal Bacteriophages Administered per os. Frontiers in Immunology. 10, 2607(2019).
- Weiss, M., et al. In vivo replication of T4 and T7 bacteriophages in germ-free mice colonized with Escherichia coli. Virology. 393 (1), 16-23 (2009).
- Thomson, C. A., Morgan, S. C., Ohland, C., McCoy, K. D. From germ-free to wild: modulating microbiome complexity to understand mucosal immunology. Mucosal Immunology. 15 (6), 1085-1094 (2022).
- Al-Asmakh, M., Zadjali, F. Use of germ-free animal models in microbiota-related research. Journal of Microbiology and Biotechnology. 25 (10), 1583-1588 (2015).
- Ivanov, I. I., et al. Induction of intestinal Th17 cells by segmented filamentous bacteria. Cell. 139 (3), 485-498 (2009).
- Bonilla, N., et al. Phage on tap-a quick and efficient protocol for the preparation of bacteriophage laboratory stocks. PeerJ. 4, e2261(2016).
- Sambrook, J., Russell, D. W. Molecular Cloning: A Laboratory Manual. 1, Cold Spring Harbor Laboratory Press. New York, NY. (2001).
- Kropinski, A. M., Mazzocco, A., Waddell, T. E., Lingohr, E., Johnson, R. P. Enumeration of bacteriophages by double agar overlay plaque assay. Methods in Molecular Biology (Clifton, N.J). 501, 69-76 (2009).
- Manikantha, B., Karthika, R., Murugadas, V., Vishnuvinayagam, S., Rao, B. M. Comparison of the single agar and double agar layer methods for enumeration of bacteriophages. Fishery Technology. 59, 60-63 (2022).
- Sanders, E. R. Aseptic laboratory techniques: plating methods. Journal of Visualized Experiments. 63, e3064(2012).
- Louten, J. Chapter 7 - Detection and diagnosis of viral infections. Essential Human Virology. , 111-132 (2016).
- Richter, Ł, et al. Adsorption of bacteriophages on polypropylene labware affects the reproducibility of phage research. Scientific Reports. 11 (1), 7387(2021).
- Merck KGaA. Amicon Ultra-15 Centrifugal Filter Devices. , Darmstadt, Germany. https://www.emdmillipore.com/CA/en/product/Amicon-Ultra-15-Centrifugal-Filter-Unit,MM_NF-UFC901024#documentation (2018).
- Hecker, W., Witthauer, D., Staerk, A. Validation of dry heat inactivation of bacterial endotoxins. PDA Journal of Pharmaceutical Science and Technology. 48 (4), 197-204 (1994).
- Jakočiūnė, D., Moodley, A. A Rapid bacteriophage DNA extraction method. Methods and Protocols. 1 (3), 27(2018).
- Zucoloto, A. Z., Yu, I. L., McCoy, K. D., McDonald, B. Generation, maintenance, and monitoring of gnotobiotic mice. STAR Protocols. 2 (2), 100536(2021).
- Ng, K. M., et al. Single-strain behavior predicts responses to environmental pH and osmolality in the gut microbiota. mBio. 14 (4), e0075323(2023).
- McCallum, G., Tropini, C. The gut microbiota and its biogeography. Nature Reviews. Microbiology. , (2023).
- Bergstrom, K., Xia, L. The barrier and beyond: Roles of intestinal mucus and mucin-type O-glycosylation in resistance and tolerance defense strategies guiding host-microbe symbiosis. Gut Microbes. 14 (1), 2052699(2022).
- Askar, M., Ashraf, W., Scammell, B., Bayston, R. Comparison of different human tissue processing methods for maximization of bacterial recovery. European Journal of Clinical Microbiology & Infectious Diseases. 38 (1), 149-155 (2019).
- Redanz, S., Podbielski, A., Warnke, P. Improved microbiological diagnostic due to utilization of a high-throughput homogenizer for routine tissue processing. Diagnostic Microbiology and Infectious Disease. 82 (3), 189-193 (2015).
- Bhinder, G., et al. The Citrobacter rodentium mouse model: studying pathogen and host contributions to infectious colitis. Journal of Visualized Experiments. 72, e50222(2013).
- Reyes, A., Semenkovich, N. P., Whiteson, K., Rohwer, F., Gordon, J. I. Going viral: next-generation sequencing applied to phage populations in the human gut. Nature Reviews Microbiology. 10 (9), 607-617 (2012).
- Camarillo-Guerrero, L. F., Almeida, A., Rangel-Pineros, G., Finn, R. D., Lawley, T. D. Massive expansion of human gut bacteriophage diversity. Cell. 184 (4), 1098-1109.e9 (2021).
- Reyes, A., et al. Viruses in the faecal microbiota of monozygotic twins and their mothers. Nature. 466 (7304), 334-338 (2010).
- Bach, M. S., et al. Filamentous bacteriophage delays healing of Pseudomonas-infected wounds. Cell Reports. Medicine. 3 (6), 100656(2022).
- Filyk, H. A., Osborne, L. C. The multibiome: The intestinal ecosystem's influence on immune homeostasis, health, and disease. EBioMedicine. 13, 46-54 (2016).
- Rohwer, F., Merry, Y., Maughan, H., Hisakawa, N. Heather Life in Our Phage World: A Centennial Field Guide to the Earth's Most Diverse Inhabitants. Wholon. , San Diego. (2014).
- Glonti, T., Pirnay, J. P. In Vitro techniques and measurements of phage characteristics that are important for phage therapy success. Viruses. 14 (7), 1490(2022).
- Fraser, J. S., Yu, Z., Maxwell, K. L., Davidson, A. R. Ig-like domains on bacteriophages: a tale of promiscuity and deceit. Journal of Molecular Biology. 359 (2), 496-507 (2006).
- Li, H., et al. The outer mucus layer hosts a distinct intestinal microbial niche. Nature Communications. 6, 8292(2015).
- Bergström, A., et al. Nature of bacterial colonization influences transcription of mucin genes in mice during the first week of life. BMC Research Notes. 5, 402(2012).
- Adams, M. H. Bacteriophages. , Interscience Publishers. https://books.google.co.uk/books?id=3wVrAAAAMAAJ (1959).
- Kutter, E., Sulakvelidze, A. Bacteriophages: Biology and Applications. , CRC Press. https://books.google.co.uk/books?id=flHOvAEACAAJ (2004).
- Bao, H., et al. Dysbiosis and intestinal inflammation caused by Salmonella Typhimurium in mice can be alleviated by preadministration of a lytic phage. Microbiological Research. 260, 127020(2022).
访问受限。请登录或开始试用以查看此内容。
重印与许可
