通过实验教学可以使生物学课程对学生更具吸引力。本文介绍了两种不同但互补的实验方案,可在课堂教学中用于鼓励学生提出并验证与高热量饮食、饥饿和衰老相关的假设。
方法文章
使用低成本染料可视化糖原积累和肠道完整性 秀丽隐杆线虫
* These authors contributed equally
本文内容
摘要
摘要
Caenorhabditis elegans(秀丽隐杆线虫)是一种透明的非寄生性线虫,其生物学结构简单,因此非常适合通过细胞或其分子成分的染色来开展生命科学教学。卢戈氏碘液(碘-碘化钾溶液)在生物化学中被广泛用于染色糖原储存。通过该染色方法,可以观察到饲喂与饥饿状态下线虫之间的差异,以及不同条件(如不同饮食和氧气水平)的影响。刺蓝(Erioglaucine)是一种蓝色染料,可用于指示肠道屏障完整性的丧失。当肠道屏障完整时,蓝色染料局限于肠腔内;而当屏障完整性被破坏时,染料会渗漏至体腔中。教师可利用体视显微镜或普通显微镜展示这些生理和生化变化,也可引导学生提出科学问题,并利用上述染色方法进行假设的构建与验证。本实验方案描述了学生可轻松操作的两种针对C. elegans的染色技术。
引言
高中阶段的生物科学教学一直面临持续的挑战。值得注意的是,技术的获取与应用已在教与学过程中带来了重要进展,然而,诸如人工智能聊天机器人等工具由于提供了易于获得(有时却是错误的)回答,使得理性思考和证据寻求变得更加困难1。因此,在课堂教学中采用以探究式学习为导向的科学方法并结合实践性实验,是培养学生或激发学生批判性思维、创造力和技术能力的重要策略2。
在此背景下,自由生活的线虫 秀丽隐杆线虫 已成功用于教学实验3 因其具有特定优势:它不是寄生生物,且 大肠杆菌 用于喂养的生物安全等级为1级,因此生物危害几乎为零;其运动方式优雅且可量化,便于学生观察;此外,该生物体透明,既可直接观察器官,也可用染料染色以指示生物分子的存在或生理变化的发生4因此,可以在课堂上对与生物化学和生理变化(如衰老)相关的简单假设进行假说提出和实验验证。
糖原是一种储存性碳水化合物,由葡萄糖分子通过葡萄糖基残基以(1→4)-α糖苷键形成线性连接,并在分支点处通过(1→6)-α糖苷键连接而成的长链且高度分支的结构,对肌肉收缩、细胞分化以及血糖稳态维持具有重要作用5。进食后,胰岛素激活糖原合酶,促进糖原的合成。在运动或禁食期间,肾上腺素或胰高血糖素分别激活糖原磷酸化酶,从而降解多糖,为肌细胞提供葡萄糖-6-磷酸,或释放游离葡萄糖以防止低血糖6,7。在多种生理和病理生理条件下,包括癌症,糖原水平的变化会影响细胞分化、信号转导、氧化还原调节以及干细胞特性8。在C. elegans中,糖原主要存在于咽部肌肉、表皮、肠道、神经元以及体壁肌中9。可使用卢戈氏碘液测定糖原含量,因为碘可与糖原的螺旋结构结合形成碘-糖原复合物,产生明显的蓝黑色或棕黑色,该方法已成功用于显示C. elegans中的糖原含量10。已有研究表明,高葡萄糖饮食引起的糖原积累可缩短线虫寿命,从而加速衰老过程11,12。此外,代谢紊乱、其他激素以及外源性物质的暴露也会影响糖原代谢13,14。因此,对C. elegans中糖原含量的研究具有重要意义,因为多种因素可能干扰其代谢,进而激发课堂上围绕运动、饮食、疾病和衰老等跨学科主题展开的基础生物化学讨论。
衰老是由细胞损伤引起的时间依赖性功能衰退。这种损伤可能与氧化应激、端粒缩短、蛋白质稳态失衡、炎症,甚至不溶性聚葡萄糖体的积累等多种因素相关15。衰老的一个重要特征是肠道完整性的下降,这与生物体生命周期中出现的多种慢性疾病密切相关16。肠道稳态的维持依赖于肠道上皮的完整性,该完整性由连接相邻上皮细胞的连接蛋白构成的物理屏障提供支持。当上皮受损时,肠腔内容物会渗漏至间质中17。基于这一机制,smurf实验已被用于在多种动物模型中检测肠道完整性,因为这种蓝色染料——二钠盐依柔红苷(Erioglaucine disodium salt)无法穿过完整的肠道膜,而保留在肠腔内18。当线虫感染病原体、暴露于某些有毒物质或衰老导致间质完整性受损时,染料便会穿透屏障并在整个虫体内扩散,使线虫全身呈现蓝色。该检测方法可用于探讨衰老生理学,并通过将线虫暴露于不同条件下,研究能够加速或延缓这一过程的影响因素。本文所述的实验方案将详细描述这两种基于染料的方法,这些方法易于在课堂中实施,有助于激发学生提出并验证与生物化学和生理学相关的假设。
实验方案的第一部分展示了其在C. elegans模型中定性和定量分析糖原含量的适用性10。 第二部分实验方案的目的是评估C. elegans肠道的完整性。该技术通过评估肠道膜的完整性来监测C. elegans的衰老过程。此外,该方法还可用于评估某种物质是否加速或延缓衰老,以及判断任何物质是否对肠屏障具有毒性作用19。
本研究所用的 C. elegans 品系为Bristol N2野生型。然而,该实验步骤也可使用具有相似生长速率的品系进行重复;或者根据设备更换的需求(前提是所替换设备具有相同或类似功能),或根据所用菌株的特性对方法进行相应调整,因为某些菌株具有特定的培养和/或敏感性要求;相关信息可从 Caenorhabditis 遗传学中心(CGC)或WormBase网站获取。这些调整不应影响该方法的可重复性。
方案
注意:Escherichia coli OP50(E. coli OP50)菌株和Bristol N2野生型线虫可从美国明尼苏达大学的秀丽隐杆线虫遗传中心(CGC)获取,或由C. elegans实验室赠送。为确保研究人员的安全,必须使用个人防护装备。尽管次氯酸钠和氢氧化钠等试剂的浓度较低,但仍需佩戴文中强调推荐的个人防护装备,以最大限度降低与这些化学品相关的潜在风险。
1. 糖原含量
- 测试平板的制备
- 为每种线虫品系准备六个 60 mm × 15 mm 的 NGM 琼脂平板20(每个平板含 10 mL 按照补充表 1所述配制的线虫生长培养基琼脂,NGM),在室温下干燥 1 天。保持平板封闭以防止污染。
- 在超净工作台中,向每种品系的四个 60 mm × 15 mm NGM 平板中各加入 200 µL 的 E. coli OP50 液体培养物(光密度 = 0.600,波长约为 600 nm),接种后将平板封闭,在 37 °C 下孵育 1 天后使用。
注意:准备六个平板(步骤 1.1),但仅用 E. coli OP50 细菌接种其中四个。将剩余两个平板储存在 4 °C,用于后续饥饿条件下的实验。本分析可设置重复。 - 在测试当天,向每种品系先前已接种 E. coli OP50 细菌的两个(6 mm × 15 mm)NGM 琼脂平板中各加入 200 µL 的 0.025 M D-葡萄糖溶液。在超净工作台中于室温下干燥平板。
注意:接种了 E. coli OP50 细菌的 NGM 琼脂平板也可在酒精灯附近干燥,作为使用超净工作台的替代方法。
- 同步化
- 在同步化前约 3 天,从含有处于不同发育阶段的 C. elegans 布里斯托尔 N2(野生型)的维持用 NGM 琼脂平板上,取 3–4 块(3 cm × 3 cm)菌块(每块约含 500 条线虫),转移至一个预先接种了 E. coli OP50 细菌的新平板(150 mm × 90 mm)中。
- 将该平板置于 20 °C 的受控环境中,保持湿度 >95%,培养 3 天(72 h),使大多数线虫达到产卵成虫阶段。
注意:根据所使用的 C. elegans 品系,可能需要调整培养温度。 - 使用巴斯德移液管,用蒸馏 H2O 收集已准备好的平板上的线虫,并转移至 50 mL 离心管中。
- 依靠重力使线虫自然沉降(约 15 分钟),然后去除上清液。重复此过程 3 次以去除细菌。最后一次洗涤后,将体积减少至 5 mL。
- 加入 10 mL 漂白液 (补充表 1),用手剧烈振荡约 6 分钟。
- 振荡完成后立即用 M9 缓冲液补足至 50 mL。
- 在 1400 × g 下离心 3 分钟,去除上清液至剩余 5 mL,再加入 45 mL M9 缓冲液。重复此过程 4 次。
- 最后一次洗涤后,将体积调整至 15 mL,并在受控温度(20 °C)和湿度(>95%)下静置约 14 小时。
注意:同步化过程也可通过收集产卵获得卵来替代:将约 20 条成年孕虫转移至一个预先接种了 200 µL E. coli OP50 的 NGM 平板(6 mm × 15 mm)中,让其产卵 1 天。之后移除孕虫,等待卵孵化。
- 线虫的准备
- 使用自动移液器将 10 µL 同步化后的线虫(步骤 1.2.8)加至显微镜载玻片上,计数线虫数量。计算为获得 500–1000 条线虫/µL 所需的移液体积。
- 将 500–1000 条 L1 期同步化线虫(步骤 1.2.8)转移至接种了 E. coli OP50 细菌作为食物来源的 NGM 琼脂平板(150 mm × 90 mm,补充表 1)中,在 20 °C 下培养至四龄幼虫阶段(L4)。
注意:可使用自动移液器转移线虫。若无自动移液器,可使用玻璃巴斯德移液管,并借助微量管标签或刻度玻璃移液管控制体积。 - 同步化后 48 小时20:借助塑料巴斯德移液管,用 M9 缓冲液(补充表 1)从平板上收集 L4 幼虫,转移至洁净的 50 mL 锥形离心管中,并用新鲜 M9 缓冲液洗涤 3 次,或重复洗涤直至所有残留的 E. coli OP50 细菌完全去除(室温下进行)。
注意:此洗涤步骤至关重要,因为部分线虫在实验过程中将经历饥饿状态。
- 进行实验
- 从先前准备好的 NGM 琼脂平板(60 mm × 15 mm,步骤 1.1.2 和 1.1.3)中,将每组 500–1000 条 L4 期线虫(步骤 1.3.1)转移至新的平板中,在 20 °C 下继续培养 48 小时,直至测试日。该方案将产生以下三个实验组,每组设重复(图 1):
A-(饥饿组):线虫在未接种 E. coli OP50 细菌的常规 NGM 琼脂平板上生长;
B-(常规组):线虫在接种了 E. coli OP50 细菌的常规 NGM 琼脂平板上生长;
C-(高葡萄糖组):线虫在接种了 E. coli OP50 细菌并含有 0.025 M D-葡萄糖的 NGM 琼脂平板上生长。 - 在测试日(48 小时后):收集线虫,并用 M9 缓冲液短暂洗涤三次(步骤 1.2.2 和 1.2.3)
注意:此处应准备添加了 D-葡萄糖的 NGM 琼脂平板(步骤 1.3),并暂时放置一旁,待添加线虫时使用。- 碘染色:使用新鲜 M9 缓冲液配制 5%(v/v)卢戈氏碘液(碘/碘化钾溶液)。
注意:卢戈氏碘液可从本地试剂供应商或药房购买,初始浓度可能不同。必要时需计算以获得 5%(v/v)的溶液。
- 碘染色:使用新鲜 M9 缓冲液配制 5%(v/v)卢戈氏碘液(碘/碘化钾溶液)。
- 从每组中取约 100 µL 洗涤后的线虫(步骤 4.2),转移至含有稀释卢戈氏碘液(5% v/v)的 1.5 mL 微量离心管中。使用自动移液器按 1:5 的比例将 100 µL 线虫加入 400 µL 卢戈氏碘液中,随后在混匀器中轻柔振荡 5 分钟。
注意:若无混匀器,可小心用手摇动微量离心管。 - 5 分钟后立即在 1400 × g 下离心 1.5 mL 微量离心管(线虫 + 卢戈氏碘液)3 分钟。
注意:若本实验使用 L4 阶段或更晚阶段的线虫,可用重力沉降代替离心。将微量离心管敞口置于实验台架上静置 10 分钟,直至所有线虫沉降至管底。 - 去除上清液,并用 1.0 mL 新鲜 M9 缓冲液洗涤线虫。重复洗涤直至溶液中所有残留碘完全去除(至少 3 次)。
- 最后一次洗涤后,除保留约 100 µL 残余液体外,其余上清液均去除。用此残余液体轻柔重悬线虫,用于显微观察。
- 取约 50 µL 重悬的线虫溶液转移至显微镜载玻片,加盖盖玻片。使用体视显微镜(放大倍数 1.5×)观察明场图像。
注意:若无体视显微镜,可使用普通显微镜,并通过适配器用手机摄像头(放大倍数 3.4×)拍摄图像。为避免因光照/亮度/曝光导致的误差,必须确保所有照片的手机摄像头设置保持一致。
- 从先前准备好的 NGM 琼脂平板(60 mm × 15 mm,步骤 1.1.2 和 1.1.3)中,将每组 500–1000 条 L4 期线虫(步骤 1.3.1)转移至新的平板中,在 20 °C 下继续培养 48 小时,直至测试日。该方案将产生以下三个实验组,每组设重复(图 1):
- 数据分析
- 定量数据:根据线虫的碘染色结果计算糖原含量。
- 保存体视显微镜拍摄的图像,每组至少包含 10 条线虫,保存为 .jpeg 文件以供后续处理。下载免费的 ImageJ 软件进行分析。详细操作见补充文件 1、补充图 1、补充图 2。
- 使用 ImageJ 软件(可从 https://imagej.nih.gov/ij/download.html 免费下载)打开 .jpeg 图像。点击分段线工具,逐条勾勒线虫轮廓。点击分析,然后选择测量以获得染色定量结果。数据将以“平均值”形式显示在表格中。平均值表示每条线虫单位面积的染色密度。
- 定性数据:获取各组体视显微镜图像,目视比较线虫的染色情况。如有需要,可建立评分系统分析染色程度:0 表示无色;1 表示浅染;2 表示染色;3 表示深染。使用体视显微镜手动计数每组约 10 条线虫(至少),使用手动计数器记录。
- 定量数据:根据线虫的碘染色结果计算糖原含量。
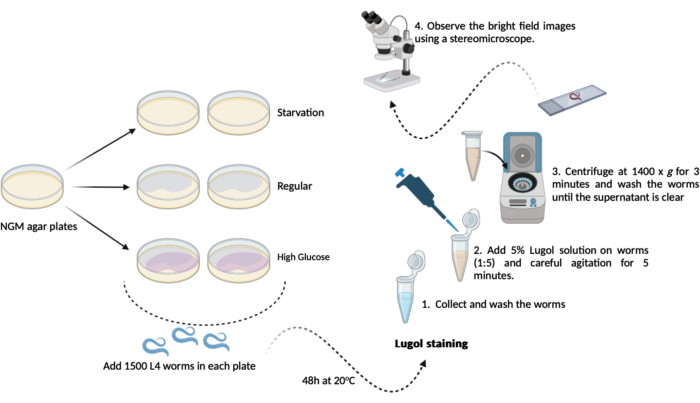
图1:C. elegans中总糖原含量检测的示意图。本实验中用于检测糖原含量的整体实验流程示意图。请点击此处查看该图的放大版本。
2. 肠道通透性的评估
- 线虫的制备
- 在同步化后约14小时(步骤1.2.8),将500–1000条处于第一幼虫期(L1)的线虫(步骤1.3.1及注释)转移至预先准备好的每块新的NGM琼脂平板(60 mm × 15 mm),并置于 20 °C 直至测试当天。该方案将产生以下两个实验组:图2):
A-(年轻):线虫将在接种有细菌的NGM琼脂平板上生长 E. coli OP50 直至幼虫 4 龄期(L4);
B-(旧):线虫将在接种了细菌的NGM琼脂平板上生长 E. coli OP50 直至第7天th 成年日
注意:线虫需培养至第7天th 成年后的每一天都必须用M9缓冲液清洗,并转移至新的NGM琼脂平板(60 mm × 15 mm)中 200 µL 的 E. coli 此前接种用于食物替换和子代清除的OP50细菌。较年轻的线虫在倾注过程中会漂浮,可通过移除上清液进行分离。蓝染线虫的比例随年龄增长而增加。然而,肠道通透性的评估可根据研究目的在任何阶段和年龄进行。
- 在同步化后约14小时(步骤1.2.8),将500–1000条处于第一幼虫期(L1)的线虫(步骤1.3.1及注释)转移至预先准备好的每块新的NGM琼脂平板(60 mm × 15 mm),并置于 20 °C 直至测试当天。该方案将产生以下两个实验组:图2):
- 运行检测
- 在测试当天,收集L4期蠕虫(步骤2.1.1之后2天)以及成虫期蠕虫于7th 天(现处于第9th 天)加入 M9 缓冲液(补充表1) 并转移至已标记的 1.5 mL 微管中。
- 以 1400 x 离心 g 3 分钟后,移除上清液,加入 1.0 mL M9,轻轻混匀。重复此步骤 3 次以去除细菌。最后一次洗涤后,将体积减少至 500 µL.
- 使用自动移液器,加入 10 µL 将蠕虫沉淀物转移至显微镜载玻片,计数蠕虫数量。计算移液获取100条蠕虫所需的体积。µL.
- Smurf染色:配制25%的赤藓红二钠盐(Erioglaucine disodium salt)补充表 1) 溶液,使用蒸馏水溶解。如有必要,可使用涡旋振荡以促进溶解。
- 在新确定的微量离心管中,使用自动移液器加入含有100条线虫的体积 100 µL 25% 次甲蓝二钠盐溶液, 200 µL 的 E. coli OP50 并用 M9 缓冲液补足至终体积 500 µL.
注意:亮蓝二钠的体积, E. coli 且蠕虫的数量是固定的。M9缓冲液的体积是可变的,可用于调节至最终体积 500 µL. - 在室温下,于混匀仪中避光振荡孵育 3 h。
注意:如果无混匀仪可用,需每隔15分钟用手小心振荡微量离心管。 - 孵育3小时后,以1400 x g离心1.5 mL微量离心管 g 孵育3分钟。移除1.0 mL上清液,并用1.0 mL M9缓冲液洗涤线虫。
- 重复洗涤,直至溶液中的亮蓝FCF二钠盐完全去除。最后一次洗涤后,除去上清液,仅保留约 250 µL用此方法小心重悬线虫,并进行显微分析处理。
- 将约50条重悬的线虫转移至显微镜载玻片上,并加盖盖玻片。将载玻片置于冰箱中于-20 °C 10 分钟以麻痹线虫。
注意:另一种使蠕虫麻痹的替代方法是添加 10 µL 盐酸左旋咪唑溶液(10 mM; 补充表1)并用盖玻片盖好。 - 使用体视显微镜的明场(1.5倍)观察并计数线虫的总数及完全染色的线虫数量。可通过连接适配器的手机相机(3.4倍)获取图像。为避免因光线/亮度/曝光导致的误差,必须保持所有照片的手机相机设置一致。
- 数据检查
- 定性数据:从体视显微镜获取各组(L4 和 7)的图像th 成年当天,对线虫的染色情况进行肉眼比较。
- 使用体视显微镜统计蠕虫的总数以及蓝染蠕虫(smurf worms)的数量。
- 以年轻线虫(L4期,作为对照组)和老年线虫(7天龄)中蓝染线虫的百分比表示结果th 成年日
A × X = 100 (%) × B
X = 100 × B / A
其中,A = 蠕虫总数
B = 蓝色染料吸收蠕虫的数量
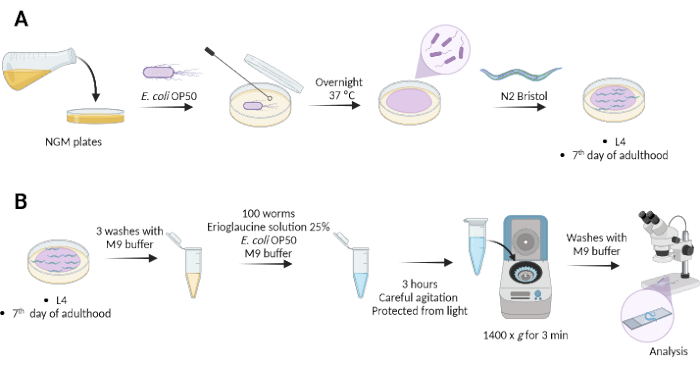
图2:C. elegans 整体肠道通透性检测示意图。(A)C. elegans 的制备。(B)使用蓝光素二钠染色。请点击此处查看此图的放大版本。
结果
糖原含量检测为筛选多种测试条件提供了一种可靠且快速的方法,例如比较不同菌株对糖原合成或降解影响的研究。在本研究中,L4期线虫被分为三种不同的测试条件:禁食组、喂养组和葡萄糖富集组。该检测共进行了三次,每次检测中每种条件均设置两个重复;代表性图像显示于 图3每次实验后,使用卢戈氏碘溶液染色的线虫在体视显微镜下进行观察,并对各组线虫的染色情况进行定性比较。从肉眼观察来看,饥饿组(禁食)线虫的染色强度较喂食组线虫弱。 E. coli OP50(常规)以及饲喂有 E. coli OP50 和 D-葡萄糖(高葡萄糖)。此外,以大肠杆菌 OP50 和 D-葡萄糖(高葡萄糖)喂养的线虫表现出最强的染色信号。

图 3:糖原含量检测的代表性图像。 通过碘染色法检测 C. elegans 中的糖原水平。显微图像展示了经 48 小时处理的代表性 C. elegans 蠕虫,分别处于(A)饥饿、(B)正常或(C)高葡萄糖条件下。染色操作按照步骤 1.4 所述方法,将蠕虫浸入卢戈氏碘/M9 缓冲液(1%)中 5 分钟完成。请点击此处查看该图的放大版本。
肠道通透性实验结果显示出幼龄线虫(L4)与老龄线虫(7)在完整肠道染色上的差异th 成年后的某一天)因衰老导致肠道膜受损图 4)。肠道的 秀丽隐杆线虫 是健康至关重要的组织,因其在消化和代谢中发挥关键作用,并作为应激反应和衰老调控的信号中心21在幼龄蠕虫中,肠道的 C. elegans 由一个强大的屏障构成,可防止肠道内容物泄漏。然而,随着这些蠕虫老化,肠道屏障功能逐渐减弱,对破坏的敏感性增加,这是由于细胞和微绒毛进行性退化以及衰老肠道中细菌积聚所致21,22当年轻时 C. elegans 摄入染料刺云实碱二钠盐后,线虫的肠道被染色(图 4A)。另一方面,可以观察到老年蠕虫出现染料外渗现象,染料渗透至蠕虫整个虫体,表明肠道膜结构已受到损伤(图 4B).

图4代表性图像 秀丽隐杆线虫 二钠盐依红染色 显微图像显示 C. elegans 完整肠道(L4阶段)的蠕虫与肠道破裂的蠕虫(7th 成虫期当天)。按照步骤2.2.4,将线虫浸入25%的赤藓红二钠盐溶液中染色3小时。 请点击此处以查看此图的放大版本。
补充图1:用于选择 C. elegans 轮廓的 ImageJ 截图。 请点击此处下载该文件。
补充图2:用于计算平均值的 ImageJ 截图。 请点击此处下载该文件。
补充表1:培养基、缓冲液和培养物配方。 当前方案中使用的不同培养基、缓冲液和培养物的组成。 请点击此处下载该文件。
补充文件 1:用于定量线虫糖原含量的 ImageJ 软件详细说明。请点击此处下载该文件。
讨论
综上所述,本实验方案利用卢戈氏碘染色法对单个秀丽隐杆线虫(C. elegans)的糖原含量进行定性评估:这是一种操作简便、结果可靠且快速的检测方法。卢戈氏碘染色是一种无标记且非侵入性的技术,可在亚细胞分辨率下获取分子数据,从而实现对单条线虫体内糖原含量变化的监测10。此外,该方法因所需设备极少而具有显著的成本优势。仅需使用显微镜或体视显微镜即可采集图像,且只要保持所有照片的光照/亮度/曝光设置一致,甚至可以使用手机摄像头轻松完成成像。同时,通过某些操作步骤的优化可进一步提升本方案的效果。例如,可使用酒精灯和重力沉降替代更复杂的实验设备(如超净工作台和离心机)。这些替代方案使该方法更加经济实惠,并便于广大研究人员使用。除科研人员外,教育工作者也可将该检测方法应用于学校教学,以直观展示与糖原储存及其生物合成相关的生理变化。
尽管传统的酶学检测方法可以定量糖原水平,但卢戈氏碘染色法在评估秀丽隐杆线虫(C. elegans)体内糖原储存方面展现出高灵敏度、准确性、低成本以及高通量的潜力。在本研究中,数据揭示了三种不同条件下染色程度的明显差异,提示喂养条件与染色强度之间可能存在相关性。换句话说,这表明不同喂养组间的糖原含量存在差异,因为染色强度与糖原含量呈正比。基于这些初步观察和证据,学生可以进一步探究和验证不同食物、饮料或化学试剂等各类因素是否也会影响线虫体内的糖原含量。
这种方法的一个缺点源于其依赖人工操作和主观判断。染色评估具有主观性,评分基于视觉观察,可能导致不同分析人员之间存在差异,从而在结果解读中引入波动。
本报告还展示了对肠道完整性的评估 秀丽隐杆线虫 使用染料赤藓红二钠盐。可借此评估肠道屏障功能的丧失情况 秀丽隐杆线虫 通过喂食一种无法经表皮吸收的蓝色染料来处理线虫。该检测可用于观察染料是否从肠道泄漏,此检测被称为“蓝精灵检测”(smurf test),因为动物会变得像卡通中的蓝精灵一样呈蓝色。23该方法此前已被应用于 黑腹果蝇 和 斑马鱼 采用类似方法进行肠道评估24,25。在 秀丽隐杆线虫 我们采用了与二钠盐亮蓝相同的该技术原理,该方法被认为是一种简单且可重复的技术,用于验证肠道完整性 秀丽隐杆线虫19,26.
该方案可用于评估线虫衰老的诱导或延缓,以及验证物质在肠道中的潜在毒性 秀丽隐杆线虫 以简便快速的方式进行,无需使用复杂设备,使该方法具有经济可行性19,27除了在科学研究中的应用外,教师还可将该检测方法用于教育机构的教学目的,以探究肠道通透性的变化 秀丽隐杆线虫通过一个简单的实验,可以研究关于衰老的假设以及化学试剂对线虫肠道屏障的影响。
该实验可根据研究目的调整使用其他 C. elegans 品系和幼虫阶段,前提是所替换的品系具有相同或类似功能,以保持方法的可重复性。为获得成功的分析结果,按照方案所述,对老化线虫进行 3 小时的染色至关重要。随后,洗去多余染料的步骤是该方法中的关键环节,必须小心操作,避免线虫随上清液被一同移除。在评估物质效应时,该方案的一个局限性在于难以找到一种易于获取且可有效裂解线虫肠道膜的阳性对照。
披露
作者无任何利益冲突需要披露。
致谢
D.S.A. 感谢巴西国家研究与发展委员会(Conselho Nacional de Pesquisa e Desenvolvimento,CNPq/Brazil)的资助,资助编号 #301808/2018-0、#313117/2019-5;南里奥格兰德州研究资助基金会(Fundação de Amparo à Pesquisa do Estado do Rio Grande do Sul,FAPERGS/Brazil),资助编号 21/2551-0001963-8;以及高等级人员进修协调办公室(Coordenação de Aperfeiçoamento de Pessoal de Nível Superior,CAPES,N.S.J 和 A.C.S 的资助代码 001)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 微量离心管 | 本地供应商 | - | |
| 37度培养箱 | KS 4000i | 97014-816 | |
| 50 mL 一次性塑料离心管 | 本地供应商 | - | |
| 6 cm 培养皿 | 本地供应商 | - | |
| 细菌学用琼脂 | 丁â云母石í云母 Contemporânea Ltda. | 9002-18-0 | |
| 秀丽隐杆线虫 Bristol N2(野生型) | 美国明尼苏达秀丽隐杆线虫遗传中心(CGC,美国明尼苏达州) | - | |
| CaCl₂ | 丁â云母石í云母 Contemporânea Ltda. | 10035-04-8 | |
| 胆固醇 | Sigma-Aldrich 巴西有限公司 | 57-88-5 | |
| D-(+)-葡萄糖无水物 | 霓虹 | 50-99-7 | |
| 蒸馏水 | 本地供应商 | - | |
| 二钠盐亮蓝 | Sigma-Aldrich 巴西有限公司 | 3844-45-9 | |
| 大肠杆菌 OP50 | 美国明尼苏达州秀丽隐杆线虫遗传中心(CGC) | - | |
| 超净工作台 | Mylabor | ||
| 培养箱 | 北美松下医疗公司,MIR-254-PA | - | |
| KH2PO4 | 丁â云母石í云母当代ânea Ltda. | 7778-77-0 | |
| 盐酸左旋咪唑 | RIPERCOL L 150F | - | |
| 卢戈氏碘液 | Sigma-Aldrich 巴西有限公司 | L6146 | |
| MgSO4 | 合成 | S1063-01-AH | |
| 微型离心机 | Centrifuge 5425R Eppendorf SE,德国 | ||
| Na2HPO4 | 丁â云母 Quí云母 Contemporânea Ltda. | 7558-79-4 | |
| NaCl | 丁â云母石í云母当代ânea Ltda. | 7647-14-5 | |
| 制霉菌素 | Sigma-Aldrich 巴西有限公司 | N6261 | |
| 蛋白胨细菌学 | êxodo científica | 91079-38-8 | |
| 体视显微镜 | Leica S8 Apo 体视显微镜 (Sã巴西圣保罗 | ||
| 硫酸链霉素 | Estreptomax | - |
参考文献
- Thorp, H. H. ChatGPT is fun, but not an author. Science. 379 (6630), 313(2023).
- Lemons, M. L. An inquiry-based approach to study the synapse: Student-driven experiments using C. elegans. J Undergrad Neurosci Educ. 15 (1), A44-A55 (2016).
- Andersen, J., Krichevsky, A., Leheste, J. R., Moloney, D. J. Caenorhabditis elegans as an undergraduate educational tool for teaching RNAi. Biochem Mol Biol Educ. 36 (6), 417-427 (2008).
- Martins, R. R., McCracken, A. W., Simons, M. J. P., Henriques, C. M., Rera, M. How to catch a smurf? - Ageing and beyond... In vivo assessment of intestinal permeability in multiple model organisms. Bio Protoc. 8 (3), e2722(2018).
- Ellingwood, S. S., Cheng, A. Biochemical and clinical aspects of glycogen storage diseases. J Endocrinol. 238 (3), R131-R141 (2018).
- Cori, C. F., Cori, G. T. Glycogen formation in the liver from d-and l-lactic acid. J Bio Chem. 81 (2), 389-403 (1929).
- Wosilait, W. D., Sutherland, E. W. The relationship of epinephrine and glucagon to liver phosphorylase. II. Enzymatic inactivation of liver phosphorylase. J Biol Chem. 218 (1), 469-481 (1956).
- Zhang, H., Ma, J., Tang, K., Huang, B. Beyond energy storage: roles of glycogen metabolism in health and disease. FEBS J. 288 (12), 3772-3783 (2021).
- Liu, Q., et al. Characterization of glycogen molecular structure in the worm Caenorhabditis elegans. Carbohydr Polym. 237, 116181(2020).
- Cherkas, A., et al. Label-free molecular mapping and assessment of glycogen in C. elegans.Analyst. 144 (7), 2367-2374 (2019).
- Gusarov, I., et al. Glycogen controls Caenorhabditis elegans lifespan and resistance to oxidative stress. Nat Commun. 8, 15868(2017).
- Seo, Y., Kingsley, S., Walker, G., Mondoux, M. A., Tissenbaum, H. A. Metabolic shift from glycogen to trehalose promotes lifespan and healthspan in Caenorhabditis elegans. Proc Natl Acad Sci U S A. 115 (12), E2791-E2800 (2018).
- Frazier, H. N. 3rd, Roth, M. B. Adaptive sugar provisioning controls survival of C. elegans embryos in adverse environments. Curr Biol. 19 (10), 859-863 (2009).
- da Silva, F. N., Zimath, P. L., do Amaral, T. A., Martins, J. R. N., Rafacho, A. Coadministration of olanzapine causes minor impacts on the diabetogenic outcomes induced by dexamethasone treatment in rats. Life Sci. 322, 121660(2023).
- Gusarov, I., Nudler, E. Glycogen at the crossroad of stress resistance, energy maintenance, and pathophysiology of aging. Bioessays. 40 (9), e1800033(2018).
- Untersmayr, E., Brandt, A., Koidl, L., Bergheim, I. The intestinal barrier dysfunction as driving factor of inflammaging. Nutrients. 14 (5), 949(2022).
- Lin, P. Y., Stern, A., Peng, H. H., Chen, J. H., Yang, H. C. Redox and metabolic regulation of intestinal barrier function and associated disorders. Int J Mol Sci. 23 (22), 14463(2022).
- Dambroise, E., et al. Two phases of aging separated by the Smurf transition as a public path to death. Sci Rep. 6, 23523(2016).
- Laranjeiro, R., et al. Swim exercise in Caenorhabditis elegans extends neuromuscular and gut healthspan, enhances learning ability, and protects against neurodegeneration. Proc Natl Acad Sci U S A. 116 (47), 23829-23839 (2019).
- Stiernagle, T. Maintenance of C. elegans.WormBook. , 1-11 (2006).
- McGhee, J. D. The C. elegans intestine. WormBook: The Online Review of C. elegans Biology. , (2007).
- McGee, M. D., et al. Loss of intestinal nuclei and intestinal integrity in aging C. elegans. Aging Cell. 10 (4), 699-710 (2011).
- Gelino, S., et al. Intestinal autophagy improves healthspan and longevity in C. elegans during dietary restriction. PLoS genetics. 12 (7), e1006135(2016).
- Rera, M., Clark, R. I., Walker, D. W. Intestinal barrier dysfunction links metabolic and inflammatory markers of aging to death in Drosophila. Proc Natl Acad Sci U S A. 109 (52), 21528-21533 (2012).
- Zhang, G., Gu, Y., Dai, X. Protective effect of bilberry anthocyanin extracts on dextran sulfate sodium-induced intestinal damage in Drosophila melanogaster. Nutrients. 14 (14), 2875(2022).
- Gelino, S., et al. Intestinal autophagy improves healthspan and longevity in C. elegans during dietary restriction. PLoS Genet. 12 (7), e1006135(2016).
- Qu, M., Xu, K., Li, Y., Wong, G., Wang, D. Using acs-22 mutant Caenorhabditis elegans to detect the toxicity of nanopolystyrene particles. Sci Total Environ. 643, 119-126 (2018).
重印与许可
