蛋白质-蛋白质相互作用对于阐明靶蛋白的功能至关重要,而免疫共沉淀(co-IP)可轻松验证蛋白质相互作用(PPI)。我们将编码表位标签蛋白的质粒瞬时转染至HEK-293细胞中,并建立了一种免疫沉淀方法,以简便地验证两种靶蛋白之间的结合。
本文内容
摘要
摘要
蛋白质-蛋白质相互作用(PPI)在细胞结构、细胞内信号转导和转录调控等生物学现象中发挥着关键作用。因此,理解PPI是进一步研究目标蛋白质功能的重要起点。本研究提出一种简便的方法,通过聚乙烯亚胺法将哺乳动物表达载体导入HEK-293细胞,使用自制的蛋白裂解缓冲液裂解细胞,并利用表位标签亲和凝胶沉淀目标蛋白,从而确定两种目标蛋白之间的结合。此外,也可使用针对不同标签的亲和抗体替代表位标签亲和凝胶,以确认不同表位标签融合蛋白之间的PPI。该方案还可用于验证来自其他细胞系(包括核提取物)的多种PPI。因此,该方法可作为多种PPI实验的基础方法。蛋白质在长时间孵育和反复冻融循环中会发生降解,因此细胞裂解、免疫沉淀和免疫印迹应尽可能无缝衔接地进行。
引言
蛋白质在所有细胞功能中发挥着重要作用,包括信息处理、代谢、转运、决策以及结构组织。蛋白质通过与其他分子发生物理相互作用来实现其功能。蛋白质-蛋白质相互作用(PPI)对于介导细胞功能至关重要,例如介导信号转导、感知环境、将能量转化为机械运动、调控代谢酶和信号酶的活性,以及维持细胞结构组织1。因此,PPI可用于阐明未知的蛋白质功能2。检测PPI的方法可分为三类:in vitro、in vivo 和 in silico。共免疫沉淀(co-IP)、亲和层析、串联亲和纯化、蛋白质芯片、噬菌体展示、蛋白质片段互补、X射线晶体学以及核磁共振波谱法已被用于in vitro条件下PPI的检测3。在这些方法中,由于操作简便,共免疫沉淀(co-IP)被广泛应用。
融合标签FLAG由八个氨基酸组成(AspTyrLysAspAspAspAspLys:DYKDDDDK),包含一个肠激酶切割位点,专为免疫亲和层析而设计4。DYKDDDDK标记的蛋白质可被抗DYKDDDDK抗体识别并捕获,因此可通过DYKDDDDK结合的琼脂糖微珠高效沉淀,以简便地验证其与特定蛋白质的相互作用5。免疫共沉淀可在多种细胞中进行,利用针对目标蛋白的抗体可验证广泛的蛋白质-蛋白质相互作用。使用抗DYKDDDDK琼脂糖微珠进行免疫沉淀及多肽洗脱的方法已有报道5。
本文提供了一种简单的免疫沉淀方法,通过将编码DYKDDDDK标签蛋白的质粒瞬时转染至HEK-293细胞中,以验证两种目标蛋白之间的相互作用。某些DYKDDDDK抗体能够结合融合蛋白的N端和C端,而另一些则不能6。因此,为避免混淆,应选择可识别同时与N端和C端融合的标签的抗体。在插入表位标签时,可在表位标签与目标蛋白之间插入3至12个碱基对,以尽量避免蛋白构象发生改变。然而,插入的序列应为3的倍数个碱基对,以防止发生移码突变。
方案
图1展示了本实验方案的概览。
1. 溶液与缓冲液的配制
- 蛋白裂解缓冲液:按照先前发表的文献7(表1)配制蛋白裂解缓冲液。
- 含蛋白酶抑制剂(PI)的蛋白裂解缓冲液:将蛋白酶抑制剂(见材料表)加入上述已配制的缓冲液中(步骤1.1)。于-20 °C保存。
- 上样缓冲液:取900 µL 4x Laemmli上样缓冲液(见材料表)与100 µL 2-巯基乙醇混合。于-20 °C保存。
- 含聚氧乙烯(20)山梨醇单月桂酸酯的磷酸盐缓冲液(PBS-P):取1.998 L PBS与2 mL聚氧乙烯(20)山梨醇单月桂酸酯(见材料表)混合。室温保存。
- 1x Tris/甘氨酸/SDS缓冲液:取450 mL去离子水(DDW)与50 mL 10x Tris/甘氨酸/SDS缓冲液混合。于使用当天室温配制。
2. 质粒转染
- 使用含10%胎牛血清和1%青霉素-链霉素(10,000单位/毫升青霉素G和10,000 µg/mL链霉素)的杜尔贝科改良伊格尔培养基,在10 cm胶原蛋白包被的培养皿中培养HEK-293细胞至亚汇合状态(80%–95%)(参见材料表)。
- 每皿准备1–10 µg待转染的质粒7,并配制转染混合液。加入150 mM NaCl至每皿终体积为250 µL。涡旋振荡并短暂离心。
- 每皿加入60 µL 1 mg/mL聚乙烯亚胺(PEI,参见材料表),再加入150 mM NaCl,使PEI溶液终体积为250 µL。
- 将PEI溶液加入转染混合液中,形成混合溶液。立即涡旋振荡(最高速度3–5秒,后续操作均相同),然后短暂离心。
- 室温孵育15–30分钟。在此期间,更换HEK-293细胞的培养基。
- 将500 µL/皿的混合溶液均匀洒在HEK-293细胞培养皿中,过夜孵育(13–14小时)。
- 次日进行培养基更换。
3. 细胞裂解与样品制备
注意:为避免蛋白质降解,后续步骤应尽可能在不保存或不冻融样本的情况下进行。
- 转染后约 48 小时,用预冷的 PBS 洗涤细胞三次,每皿加入 500 µL 蛋白裂解缓冲液 + PI,用细胞刮和移液器将细胞收集至低蛋白吸附的离心管中,并置于冰上。
- 每 5 分钟涡旋一次,冰上孵育样品 10 分钟。
- 在 4 °C 条件下以 16,400 × g 离心 10 分钟。收集上清液并转移至新的低蛋白吸附的 1.5 mL 离心管中。样品可在 -80 °C 下保存。
- 根据试剂盒说明书(见材料表),使用蛋白浓度检测试剂盒测定各样品的蛋白浓度。
- 从每个样品中取 200–1000 µg 等量蛋白,然后加入蛋白裂解缓冲液 + PI,调节总体积至 500–1000 µL。
注意:以下步骤均在冰上操作。
4. 混悬液的制备
注意:在免疫沉淀前一天或当天,准备蛋白G凝胶与表位标签亲和凝胶的1:1混合液。
- 蛋白G凝胶的制备
- 使用切去末端的枪头充分混匀,然后分装蛋白G凝胶(见材料表),使每份样品准备20 µL凝胶珠。
- 在4 °C条件下以12,000 × g离心20秒,将凝胶珠置于冰上1分钟使其沉降,用移液器弃去上清液。
- 向步骤4.1.2中制备的蛋白G凝胶中加入1 mL蛋白裂解缓冲液 + PI,通过轻弹和倒置混匀。在4 °C条件下以12,000 × g离心20秒,将凝胶珠置于冰上1分钟使其沉降,弃去上清液。
- 重复步骤4.1.3三次。
- 向蛋白G凝胶中加入等体积的蛋白裂解缓冲液,制成1:1的蛋白G凝胶悬液。该悬液可在4 °C保存约1天。
- 表位标签亲和凝胶的制备
- 使用切去末端的枪头充分振荡,然后分装表位标签亲和凝胶(见材料表),使每份样品准备10–15 µL凝胶珠。
- 在4 °C条件下以5,000 × g离心30秒,将凝胶珠置于冰上1分钟使其沉降,用移液器弃去上清液。
- 向步骤4.2.2中制备的表位标签亲和凝胶中加入1 mL蛋白裂解缓冲液 + PI,通过轻弹和倒置混匀。在4 °C条件下以5,000 × g离心30秒,将凝胶珠置于冰上1分钟使其沉降,用移液器弃去上清液。
- 重复步骤4.2.3两次。
- 向步骤4.2.4中制备的表位标签亲和凝胶中加入500 µL 0.1 M甘氨酸(pH 3.5),通过轻弹和倒置混匀。此步骤用于去除游离的表位标签抗体。加入甘氨酸后20分钟内,在4 °C条件下以5,000 × g离心30秒,将凝胶珠置于冰上1分钟使其沉降,弃去上清液。
- 向步骤4.2.5中制备的表位标签亲和凝胶中加入500 µL蛋白裂解缓冲液 + PI,通过轻弹和倒置混匀。在4 °C条件下以5,000 × g离心30秒,将凝胶珠置于冰上1分钟使其沉降,弃去上清液。
- 重复步骤4.2.6三次。
- 向表位标签亲和凝胶中加入等体积的蛋白裂解缓冲液,制成1:1的表位标签亲和凝胶悬液。该悬液可在4 °C保存约1天。
5. 使用蛋白G凝胶进行预清除,并利用表位标签亲和凝胶捕获蛋白复合物
- 使用装有切口吸头的移液器将1:1蛋白G悬液(步骤4中制备)混匀,并每次向样品中加入40 µL。
- 在4 °C冷藏室中,将样品置于旋转仪上旋转1小时,每循环约30秒(参见材料表)。
- 在4 °C下以12,000 x g 离心20秒,然后将磁珠置于冰上1分钟,使磁珠沉降。
- 收集上清液,并转移至新的低蛋白吸附性1.5 mL离心管中。
- 从步骤5.4中分离出用于input的样品,并转移至新的1.5 mL离心管中。
- 向样品中加入20–30 µL的1:1表位标签凝胶悬液。
- 在4 °C冷藏室中,以每循环约30秒的速度在旋转仪上旋转2小时。
- 向步骤5.5中制备的input样品中加入样品缓冲液,稀释至4倍体积,并在98 °C加热10分钟。input样品可保存于-80 °C。
注意:由于反复冻融可能导致蛋白质降解,后续操作应尽可能避免长期保存蛋白质。
6. 洗涤并洗脱沉淀的蛋白质
- 将热块的温度设置为 98 °C。
- 在 4 °C 条件下以 5,000 × g 离心 30 秒,然后将样品置于冰上静置 1 分钟,使磁珠充分沉降。使用移液器弃去上清液。
- 向步骤 6.4 中制备的样品中加入 1 mL 蛋白裂解缓冲液 + PI,通过轻敲和倒置混匀。在冷藏室(4 °C)中旋转混匀,每循环约 30 秒,共 5 分钟。在 4 °C 条件下以 5,000 × g 离心 30 秒,冰上静置 1 分钟使磁珠沉降,弃去上清液。
- 重复步骤 6.3 5–10 次。
- 向步骤 6.4 中制备的样品中加入 10 µL 上样缓冲液。在 98 °C 下煮沸 10 分钟。
- 在 4 °C 条件下以 5,000 × g 离心 30 秒。
- 将层析柱置于新的低蛋白吸附管中,使用去尖端的移液枪头将凝胶转移至层析柱中。使用层析柱可避免凝胶污染。
- 在 4 °C 条件下以 9,730 × g 离心 1 分钟。收集穿流液。样品可在 -80 °C 下保存。
注意:若担心样品降解,建议在不冻存的情况下直接进行后续免疫印迹分析。
7. 免疫印迹
注意:免疫印迹实验步骤基于先前的报道7,8。
- 将完整样品上样至十二烷基硫酸钠聚丙烯酰胺凝胶(SDS-PAGE,参见材料表)。
注意:如有需要,使用大孔胶以确保整个样品能够转移。本实验使用了50 µL上样孔的凝胶。 - 将凝胶放入电泳槽中,并加入1× Tris/甘氨酸/SDS缓冲液(参见材料表),加至适当体积,使液面浸没凝胶。
- 在100 V和400 mA条件下进行凝胶电泳。
- 将蛋白转移至聚偏二氟乙烯(PVDF,参见材料表)膜上。
- 用含5%脱脂奶粉的PBS-P溶液在室温下封闭PVDF膜1小时。
- 在摇床上以最高速度用PBS-P洗涤膜3次,每次5分钟。后续所有洗涤步骤均采用相同操作。
- 在4 °C下,于摇床上与一抗(参见材料表)孵育过夜。
- 次日,用PBS-P洗涤膜3次。
- 在室温下,于摇床上与二抗孵育1小时。
注意:若目标蛋白的分子量接近约50 kDa的IgG重链,则可使用针对轻链的二抗,以避免目标条带与IgG重链信号重叠。本研究使用了轻链特异性抗体7或Veriblot作为免疫沉淀检测试剂(参见材料表)。 - 使用辣根过氧化物酶化学发光底物显影蛋白条带。洗涤两次PBS-P后,可将膜保存于PBS中。
- 用洗脱液(参见材料表)洗脱10分钟。
- 洗涤3次后,用含5%脱脂奶粉的PBS-P封闭。后续操作步骤同第7.6步起的流程。
结果
产热型脂肪细胞,也称为棕色和米色脂肪细胞,具有抗肥胖和抗葡萄糖耐受不良的潜力。含PR(PRD1-BF1-RIZ1同源)结构域的蛋白16(PRDM16)是一种转录共调节因子,在决定产热型脂肪细胞特性方面发挥着重要作用9,10。
EHMT1(常染色质组蛋白-赖氨酸N-甲基转移酶1),也称为GLP,主要利用辅因子S-腺苷甲硫氨酸催化组蛋白H3第9位赖氨酸(H3K9)的单甲基化和二甲基化11。先前有报道称,EHMT1是PRDM16复合物中一种必需的甲基转移酶,通过组蛋白甲基化调控产热型脂肪细胞的命运12,13。此外,我们此前曾报道,在人类肾周棕色脂肪组织(BAT)中,PRDM16和EHMT1的表达水平与产热基因的表达水平显著相关,提示PRDM16和EHMT1在人类BAT发育过程中发挥重要作用8。
为了验证该方案在确认蛋白质相互作用(PPIs)方面的有效性,我们将DYKDDDDK-PRDM16和HA-EHMT1共转染至HEK-293细胞,并按照上述方案对DYKDDDDK-PRDM16进行免疫共沉淀。DYKDDDDK标记的PRDM16和HA标记的EHMT1被插入哺乳动物表达载体pcDNA3.1的克隆位点(见材料表)。免疫印迹结果证实,在共转染DYKDDDDK-PRDM16和HA-EHMT1的组别中,DYKDDDDK-PRDM16与HA-EHMT1之间存在相互作用(图2)。
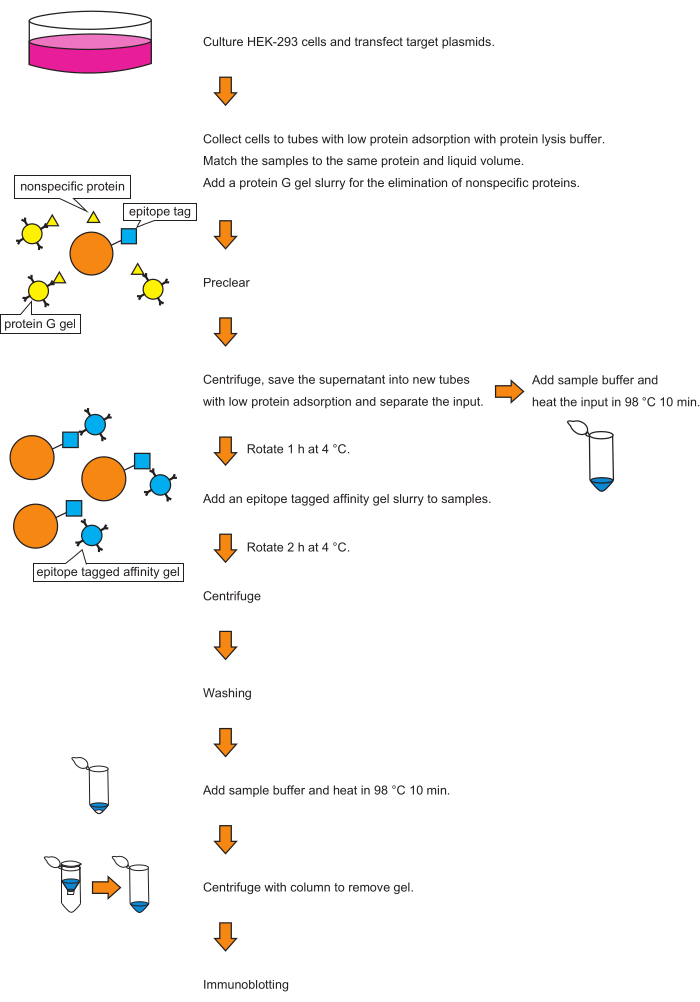
图1:共免疫沉淀的示意图。 此处展示了实验方案的示意图。右侧为方案的工作流程;左侧为反应过程的图示。 请点击此处查看此图的放大版本。
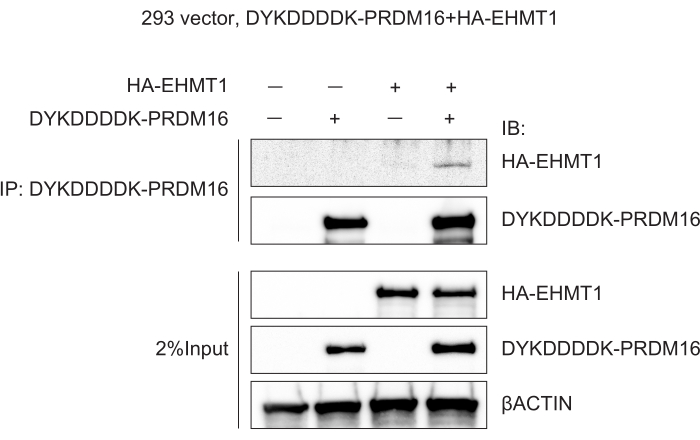
图 2:PRDM16 与 EHMT1 相互结合。 将 HEK-293 细胞转染空载体(阴性对照)、DYKDDDDK-PRDM16,或同时转染 DYKDDDDK-PRDM16 和 HA-EHMT1。随后使用 DYKDDDDK 标签亲和凝胶进行共免疫沉淀,接着进行免疫印迹分析。请点击此处查看该图的放大版本。
| 蛋白质裂解缓冲液 250 mL(0.22 μm 过滤,4 °C 保存) | ||
| mL | 终浓度 | |
| 1 M Tris pH 8.0 | 12.5 | 50 mM |
| 5 M NaCl | 7.5 | 150 mM |
| 0.5 M 乙二胺四乙酸 | 0.5 | 1 mM |
| 甘油 | 25 | 10% |
| 聚氧乙烯(10)辛基苯基醚 | 2.5 | 1% |
| 去离子水 | 202 | |
| 总量 | 250 | |
表1:蛋白裂解缓冲液的组成。
讨论
本方案与先前报道的方案几乎相同5,7,14,15。本方案的关键在于,从细胞裂解步骤到免疫沉淀步骤之间,实验过程从不中断。蛋白质降解会阻碍蛋白质相互作用(PPI)的检测。延长操作时间以及反复冻融均会导致蛋白质降解。SDS-PAGE电泳也应在免疫沉淀当天进行,不仅是为了最大限度减少蛋白质降解,同时也是为了最大限度提高PPI的检测效率。
在产热型脂肪细胞中,先前的研究报道了EHMT1与PRDM16之间的相互作用13。EHMT1-PRDM16复合物调控棕色脂肪细胞的命运决定及产热过程13。EHMT1通过阻断PRDM16与淀粉样蛋白结合蛋白(APPBP)2之间的相互作用,从而使PRDM16稳定性增强16。该PRDM16的稳定性受cullin(CUL)2-APPBP2和EHMT1共同调控16。
本研究使用 HEK-293 细胞,因为 HEK-293 细胞在重组蛋白的生产中被广泛应用17。其他易于通过质粒转染的细胞系也可使用,例如 Cos-7 细胞和 Hela 细胞。转染采用 PEI,因为与传统的脂质体转染相比,PEI 更经济且操作更简便。
预清除、在表位标签亲和凝胶中旋转孵育以及洗涤是该方法中尤为关键的步骤。预清除可去除非特异性结合到凝胶上的蛋白质。此外,与表位标签亲和凝胶旋转孵育的时间至关重要,因为孵育时间过长可能导致非特异性蛋白质被检测到,而时间不足则可能影响目标蛋白质的检测。
需要注意以下几点。HEK-293 细胞容易脱落,因此在制备样品时应使用胶原蛋白包被的培养皿。PEI 溶液具有细胞毒性,因此转染后应及时更换培养基,避免细胞长时间暴露于其中。如果未观察到蛋白质相互作用(PPIs),可能是转染的质粒量不足,和/或用于免疫沉淀(IP)的蛋白量过低。此外,若洗涤次数过多,可能导致相互作用丢失。为解决这些问题,可考虑增加转染至 HEK-293 细胞的质粒量、增加用于 IP 的蛋白量,以及减少洗涤次数。另外,若最后一次洗涤后残留过多上清液,会导致样品在十二烷基硫酸钠-聚丙烯酰胺凝胶电泳时从加样孔溢出。若出现非特异性条带,可能是用于 IP 的质粒或蛋白用量过高,或洗涤次数不足、洗涤强度不够。可通过减少用于 IP 的质粒或蛋白用量、增加洗涤次数,或通过提高洗涤缓冲液中的盐浓度以增强洗涤强度来解决这些问题。
常用的去垢剂(如聚氧乙烯(10)辛基苯基醚)可能会破坏具有重要功能的蛋白质-蛋白质相互作用(PPIs)18。较温和的去垢剂可能有助于提高功能重要复合物的回收率,但也可能因溶解不完全而导致非特异性相互作用水平过高。本研究中使用的蛋白裂解缓冲液含有1%的聚氧乙烯(10)辛基苯基醚。该缓冲液可有效裂解细胞质蛋白,并适用于转染质粒后大量过表达的蛋白。当对分离细胞核与细胞质后制备的样品进行免疫共沉淀时,与全细胞裂解制备的样品相比,背景信号降低,目标条带更清晰可辨17。若需对细胞核内蛋白进行免疫共沉淀,可使用商业化的核蛋白提取试剂盒,或先用含去垢剂的低盐缓冲液破坏并去除细胞质,再用高盐缓冲液提取细胞核蛋白19。在免疫印迹中,显色时间的控制不仅应避免背景过高,还需确保能够检测到特定条带。
该方法存在若干局限性。首先,我们使用了一种极有可能被检测到的蛋白质相互作用(PPI)。其次,由于每个基因的表达依赖于质粒的组合,可能导致获得的蛋白质不足,因此无法检测到相互作用。
总之,与质谱法相比,该方法能够以更经济、更简便的方式验证蛋白质-蛋白质相互作用(PPI)。通过使用针对各种表位标签融合蛋白的每种标签的亲和抗体,而非表位标签亲和凝胶,也可确认这些融合蛋白之间的PPI。此外,通过导入表达任意与DYKDDDDK标签融合的蛋白的质粒,类似的免疫沉淀方法也可在其他细胞类型中进行。进一步地,使用内源性抗体替代表位标签亲和凝胶,可实现对多种细胞类型中内源性蛋白质-蛋白质相互作用的验证。
披露
我们声明,所有作者均无与本研究相关的利益冲突。
致谢
本工作得到了日本科学促进会(JSPS)科研费资助项目19K18008(G.N.)、JSPS科研费资助项目22K16415(G.N.)、JSPS科研费资助项目22K08672(H.O.)、日本糖尿病学会青年研究者研究资助(G.N.)以及MSD生命科学基金会青年研究者研究资助(G.N.)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.5 M EDTA (pH8.0) | Nippon gene | 311-90075 | |
| 10% Mini-PROTEAN TGX 预制蛋白凝胶,10 孔,50 µL | Biorad | 4561034 | |
| 10x Tris/Glycine/SDS | Biorad | 1610772 | |
| ANTI-FLAG M2 亲和凝胶 | Sigma | A2220 | |
| 抗小鼠 IgG,HRP 标记全抗体(羊来源) | GE Healthcare | NA931-1ML | |
| 抗兔 IgG,HRP 标记全抗体(驴来源) | GE Healthcare | NA934-1ML | |
| 细胞刮刀 M | 住友电木 | MS-93170 | |
| 胶原蛋白 I 包被培养皿 100 mm | IWAKI | 4020-010 | |
| cOmplete,无 EDTA 蛋白酶抑制剂混合物 | Roche | 4693132001 | |
| DMEM/F-12,含 GlutaMAX 添加剂 | Invitrogen | 10565042 | |
| D-PBS (-) | FUJIFILM Wako | 045-29795 | |
| 甘油 | FUJIFILM Wako | 072-00626 | |
| 甘氨酸 | FUJIFILM Wako | 077-00735 | |
| HA 标签 (C29F4) 兔单克隆抗体 #3724 | Cell Signaling | C29F4 | |
| Laemmli 上样缓冲液 | Bio-Rad Laboratories | 161-0747 | |
| 微型 Bio-Spin 层析柱 | Biorad | 7326204 | |
| Mini-PROTEAN Tetra 小型预制凝胶电泳系统 | Biorad | 1658004JA | |
| 小鼠来源的单克隆 ANTI-FLAG M2 抗体 | Sigma | F3165 | |
| NaCl | FUJIFILM Wako | 191-01665 | |
| pcDNA3.1-FLAG-PRDM16 | 本文 | N/A | |
| pcDNA3.1-HA-EHMT1 | 本文 | N/A | |
| pcDNA3.1-空载体 | 本文 | N/A | |
| PEI MAX - 转染级线性聚乙烯亚胺盐酸盐 | PSI | 24765 | |
| 青霉素-链霉素溶液 | FUJIFILM Wako | 168-23191 | |
| Pierce BCA 蛋白定量试剂盒 | Thermo scientific | 23227 | |
| 聚氧乙烯(10)辛基苯基醚 | FUJIFILM Wako | 168-11805 | |
| 聚氧乙烯(20)失水山梨醇单月桂酸酯 | FUJIFILM Wako | 167-11515 | |
| Protein G Sepharose 4 快速流速实验装 | Cytiva | 17061801 | |
| Protein LoBind 管 | eppendorf | 30108442 | |
| ROTATOR RT-5 | TAITEC | RT-5 | |
| 脱脂乳 | 森永 | 0652842 | |
| Strip 溶液 | FUJIFILM Wako | 193-16375 | |
| Trans-Blot Turbo Mini PVDF 转膜试剂盒 | Biorad | 1704156B03 | |
| Trans-Blot Turbo 转膜系统 | Biorad | N/A | |
| Trizma 碱基 | Sigma | T1503-1KG | |
| 经美国农业部检测的胎牛血清(FBS) | HyClone | SH30910.03 | |
| Veriblot | Abcam | ab131366 | |
| β-肌动蛋白 (13E5) 兔单克隆抗体 #4970 | Cell Signaling | 4970S |
参考文献
- Braun, P., Gingras, A. History of protein-protein interactions: from egg-white to complex networks. Proteomics. 12 (10), 1478-1498 (2012).
- Yanagida, M. Functional proteomics; current achievements. Journal of Chromatography B-Analytical Technologies in the Biomedical and Life Sciences. 771 (1-2), 89-106 (2002).
- Rao, V. S., Srinivas, K., Sujini, G. N., Kumar, G. N. S. Protein-protein interaction detection: methods and analysis. International Journal of Proteomics. 2014, 147648(2014).
- Hopp, T. P., et al. A short polypeptide marker sequence useful for recombinant protein identification and purification. Nature Biotechnology. 6 (10), 1204-1210 (1988).
- Gerace, E., Moazed, D. Affinity pull-down of proteins using anti-FLAG M2 agarose beads. Methods in Enzymology. 559, 99-110 (2015).
- Einhauer, A., Jungbauer, A. The FLAG peptide, a versatile fusion tag for the purification of recombinant proteins. Journal of biochemical and biophysical methods. 49 (1-3), 455-465 (2001).
- Egusa, G., et al. Selective activation of PPARα maintains thermogenic capacity of beige adipocytes. iScience. 26 (7), 107143(2023).
- Nagano, G., et al. Activation of classical brown adipocytes in the adult human perirenal depot is highly correlated with PRDM16-EHMT1 complex expression. PLoS One. 10 (3), e0122584(2015).
- Seale, P., et al. Transcriptional control of brown fat determination by PRDM16. Cell Metabolism. 6 (1), 38-54 (2007).
- Kajimura, S., et al. Regulation of the brown and white fat gene programs through a PRDM16/CtBP transcriptional complex. Genes and Development. 22 (10), 1397-1409 (2008).
- Shinkai, Y., Tachibana, M. H3K9 methyltransferase G9a and the related molecule GLP. Genes and Development. 25 (8), 781-788 (2011).
- Able, A. A., Richard, A. J., Stephens, J. M. TNFα effects on adipocytes are influenced by the presence of lysine methyltransferases, G9a (EHMT2) and GLP (EHMT1). Biology. 12 (5), 674(2023).
- Ohno, H., Shinoda, K., Ohyama, K., Sharp, L. Z., Kajimura, S. EHMT1 controls brown adipose cell fate and thermogenesis through the PRDM16 complex. Nature. 504 (7478), 163-167 (2013).
- Bian, W., et al. Protocol for establishing a protein-protein interaction network using tandem affinity purification followed by mass spectrometry in mammalian cells. STAR Protocols. 3 (3), 101569(2022).
- Cristea, I. M., Chait, B. T. Affinity purification of protein complexes. Cold Spring Harbor Protocols. 2011 (5), (2011).
- Wang, Q., et al. Post-translational control of beige fat biogenesis by PRDM16 stabilization. Nature. 609 (7925), 151-158 (2022).
- Holden, P., Horton, W. Crude subcellular fractionation of cultured mammalian cell lines. BMC Research Notes. 2, 243(2009).
- Yang, L., Zhang, H., Bruce, J. E. Optimizing the detergent concentration conditions for immunoprecipitation (IP) coupled with LC-MS/MS identification of interacting proteins. Analyst. 134 (4), 755-762 (2009).
- Herrmann, C., Avgousti, D. C., Weitzman, M. D. Differential salt fractionation of nuclei to analyze chromatin-associated proteins from cultured mammalian cells. BIO-PROTOCOL. 7 (6), e2175(2017).
重印与许可
