本方案描述了在野外采集并定期在实验室维护接种了冠层形成型巨藻的基质,用于开展修复试验,以评估“绿色碎石”技术在野外环境中的应用效果及其局限性。
本文内容
摘要
摘要
形成冠层的大型褐藻是关键的基础物种,能够支持生物多样性,并提供每年价值超过5000亿美元的生态系统服务。由于气候驱动的生态胁迫导致全球巨藻林不断衰退,迫切需要创新的恢复策略。一种名为“绿色砾石”的新兴恢复技术旨在无需大量水下人工操作的情况下,在大范围内播撒幼年褐藻,因其成本效益高且可扩展性强,成为一种极具前景的恢复工具。本视频文章介绍了一种培养巨藻(Macrocystis pyrifera)的实验方案及相关工具,同时为后续研究在野外条件下评估该方法的成功与局限性提供了资源支持。我们详细阐述了基于“绿色砾石”技术的野外与实验室方法,包括繁殖组织的采集、孢子释放、接种、培育、基质维护以及对早期生活阶段定植基质的监测。该方案简化并整合了当前该领域的恢复实践,以支持研究人员、管理者和相关利益方实现褐藻保护目标。
引言
大型藻类中的林冠形成种——巨藻(属于褐藻门海带目)是全球重要的基础物种,在温带和北极海域的近岸岩礁生态系统中占据主导地位1。这些巨藻形成结构复杂且生产力极高的生物成因生境,被称为巨藻林,支撑着分类上高度多样化的海洋群落2。全球范围内的巨藻林为人类提供了多种生态系统服务,包括商业渔业资源、碳和营养循环以及休闲活动,其每年总估值约为5000亿美元3。
尽管海藻林具有重要价值,但在许多地区正面临日益加剧的人为压力3。气候变化因长期海洋变暖以及温度异常事件频率不断增加,已成为对海藻类植物最严重的威胁之一3,4,5,6,7。海洋温度升高与营养盐限制相关8,而当温度超过生理耐受阈值时,热胁迫可导致海藻死亡9。在叠加区域性的局部胁迫因素后7,全球海藻种群正以每年约2%的速度下降10,部分区域已出现显著损失,并持续转变为其他群落状态6,11,12,13,14。仅依靠海藻种群的自然恢复可能不足以逆转当前及预期损失的程度15,16,17,18,这凸显了主动开展生态恢复的重要性。
目前的海带恢复工作可以结合多种方法,在沿海岩礁上重新建立这些重要的基础物种3,19。针对特定地点问题所选择的方法取决于地理背景、海带恢复面临的具体障碍以及社会-生态系统背景11。理解社会-生态系统之间的联系与相互依赖关系是关键,而通过干预措施吸纳地方机构参与并获得当地社区支持,将提高恢复工作的成功可能性20。
除了气候变化之外,食草动物的压力或种间竞争也会导致生态系统衰退或抑制其恢复(例如海胆13、植食性鱼类21,22、丝状藻类9,23或入侵性藻类24)。生态修复可能侧重于清除这些生物胁迫因子25,但这些方法需要大量资源并依赖持续的维护11。为了促进巨藻物种的恢复,已有研究尝试采用直接播种的方法,例如将装有可育巨藻叶片的网袋加权沉入海底,使游孢子释放到环境中26。然而,该方法耗时较长,且需要复杂的技术性水下安装与回收操作。其他案例则集中于移植大量完整的成年供体植株,但这可能损害与之密切相关的、脆弱的供体种群,且由于依赖持续的移植工作,通常仅限于小规模应用27。
对于因栖息地破碎化导致巨藻孢子受限、从而阻碍巨藻林恢复的区域,一种名为“绿砾石”(green gravel)技术的相对较新的巨藻恢复方法被提出。该技术已在挪威南部的弗洛德维根研究站(Flødevigen Research Station)成功试用28 ,因其成本效益高且可扩展性强,成为极具前景的恢复手段。该技术的操作流程如下:(1)从野外采集具有繁殖能力的成年巨藻的生殖组织,制备孢子溶液,随后接种到小颗粒基质(如砾石)上;(2)在实验室可控的非生物条件下,在基质上培育早期阶段的巨藻;(3)将带有可见孢子体的基质投放至特定礁区,作为“绿砾石”(green gravel),使孢子体继续生长。需注意的是,传统的成体移植通常需要潜水员进行费力且成本高昂的水下安装,而“green gravel”技术则可通过水面直接简易投放28。
该 绿色碎石 该技术目前正在被多个国际工作组的成员试用29 在不同环境及多种巨藻科海带物种中的应用。本方案详细描述了利用巨藻开展此项修复技术野外部署前,所需设施、材料以及幼体海带的组织采集、孢子形成、附着 seeding、培育条件、日常维护和监测方法。 巨藻(Macrocystis pyrifera)该方案为研究人员、管理者及相关利益方提供了深入了解此方法的优势与局限性的重要资源 M. pyrifera 在不同的野外环境中。
方案
本方案中所用的海带组织由加利福尼亚州鱼类与野生动物管理局根据许可证 S-202020004-20205-001 采集并监管。
1. 设施与材料的准备
- 确保海藻培养设施能够维持温度(10–15 °C),提供全光谱光照(0–180 µmol 光子 m⁻² s⁻¹),并具备海水循环系统。-2 s-1),并进行过滤通气(0.2 µm 孔径)。使用带有内置出线口或用于导线、管路、照明和气源接入孔的培养箱系统(图1)。如果培养系统不在项目范围、预算或预期规模之内,可使用由冷却的天然海水或冷水机调节温度的水浴装置(图2)。参考 材料表 具体细节请参见。
- 将温度计放入培养基中,或使用红外测温仪确保温度在10-18 °C之间。
注意:饲养温度因地点和季节而异30. - 将全光谱光源的光周期设定为12小时光照:12小时黑暗,可通过调节光源的定时设置或使用机械定时器实现。使用防水的光合有效辐射(PAR)量子计在靠近砾石的水面以下测量光强,并通过可调光光源或叠加玻璃纸进行调节(在进行营养性配子体培养时,参见 第9节)或在光源上覆盖网格(有关光强调整的详细信息,请参见 第6.3节).
- 使用空气泵以确保充分通气31 孢子形成后一天。使用滤膜(0.2 µm 孔径)以减少空气中的细菌污染。
注意:对于“绿色碎石 培养过程中,通气压力必须足以使所有培养容器中的水体循环,同时不干扰早期海带在接种基质上的附着。若需扩增配子体生物量(参见 第9.2节存在时,通气压力必须足以使配子体悬浮于培养基中。
- 将温度计放入培养基中,或使用红外测温仪确保温度在10-18 °C之间。
- 对材料和操作台进行灭菌。提前准备以下物品(参见 材料表).
- 使用70%异丙醇清洁表面。在超净台外处理生殖孢子囊组织并清洁采集设备 绿色碎石 苗圃,如果可能的话。
- 使用以下灭菌方法:先用实验室级清洁剂清洗,再用蒸馏水彻底冲洗;然后在稀释的漂白剂溶液中浸泡(按照制造商说明),之后用蒸馏水彻底冲洗;最后根据物品类型(玻璃器皿或器械)选择合适的参数进行高压蒸汽灭菌。灭菌后,材料可储存于密封容器中或用铝箔包裹保存。
- 用实验室级洗涤剂擦洗并清洁将用于培养的带盖容器,然后用蒸馏水彻底冲洗。
注意:带盖的培养容器有助于减少培养基的蒸发。将盖子略微打开以允许空气交换,或使用单向阀以减少空气传播的污染。若无带盖容器,可用石蜡膜等热塑性材料密封培养容器,并打2-3个孔。若使用较大的培养箱,应采用透明塑料制成的防蒸发盖。 - 确保砾石表面具有纹理或轻微凹陷,因为配子体更易保留在粗糙度较高的基质上32,33. 用刷子刷洗碎石并冲洗,直至水变清澈,以去除灰尘或碎屑。将碎石浸泡于10%稀释漂白液中至少24小时,然后用滤膜除菌海水冲洗(参见 第2.1节)。或者,在刷洗和冲洗后,将砾石浸泡在去离子水(DI水)中1周32.
注意:理想情况下,应使用当地采集的基质以减少对修复地点的污染。 alternatively,建议使用水族箱级砾石。避免使用石灰质基质(如石灰岩),因其可能导致移植海藻组织白化及随后的死亡32.
2. 培养基的制备
- 根据资源可用性,采用以下方法过滤并灭菌海水。计算每周为培养容器更换所需的过滤灭菌海水体积(参见第7节),并据此安排过滤/灭菌操作。将大量过滤灭菌后的海水储存于避光容器中,在8–10 °C条件下可保存长达6个月。若无冷藏条件,则存放于阴凉避光处。
- 使用真空过滤系统对海水进行过滤,滤膜孔径为0.55–1 µm。在水完全抽滤完毕前关闭真空源,以避免损坏滤膜,随后将滤后海水倒入专用的无菌容器中。对于较大体积的海水,可使用流通式过滤系统。例如,将海水依次通过三级褶皱滤膜(孔径分别为10 µm、5 µm和1 µm),按孔径从大到小排列。
注意:若无法获取天然海水,可配制人工海水。此外,也可从水族商店批量购买天然海水,此类海水通常已过滤、消毒并调节pH值。但上述替代方案仍需进行培养基营养强化。 - 采用紫外线(UV)和/或高压蒸汽灭菌法对过滤后的海水进行灭菌。将流通式系统连接至水族用紫外灯,并按照制造商推荐的流速运行。将海水置于耐高压玻璃器皿中,瓶盖稍松或用铝箔覆盖,采用液体程序进行高压灭菌(121°C;1–2 PSI,15–30分钟,具体时间依液体体积而定)34。
注意:建议在培养初期对过滤海水进行高压灭菌。
- 使用真空过滤系统对海水进行过滤,滤膜孔径为0.55–1 µm。在水完全抽滤完毕前关闭真空源,以避免损坏滤膜,随后将滤后海水倒入专用的无菌容器中。对于较大体积的海水,可使用流通式过滤系统。例如,将海水依次通过三级褶皱滤膜(孔径分别为10 µm、5 µm和1 µm),按孔径从大到小排列。
- 对过滤灭菌后的海水添加营养物质和维生素,对M. pyrifera的生长至关重要。Provasoli强化海水培养基(PES)是一种广泛用于藻类培养的培养基35,可从藻类培养中心购买。PES的配制方法及促进M. pyrifera生长所需额外维生素的添加方案见文献34。
- 每1 L过滤海水中加入20 mL PES进行营养强化。也可选用工业级培养基。
- 按照制造商建议储存营养强化液。在需要使用培养基时再对过滤灭菌海水进行营养强化,以避免强化液成分降解。
3. 野外采集
- 确定孢子叶采集时间,以模拟当地种群的自然生殖周期 M. pyrifera 种群. 咨询当地专家(例如,海带研究人员、管理者、生态学家、公民科学家、潜水团队),以确保配子体采集的时间恰当。
- 获取符合当地法律法规的海带组织采集许可。这是培养过程中可能耗时较长的环节,必须纳入项目时间规划中。
- 使用自给式水下呼吸器(SCUBA)从10-15株成熟个体中选取3-5个孢子叶叶片 M. pyrifera 选择具有可见孢子囊群的个体,且个体间间距至少为2米。尽可能挑选干净完整、附着物或降解程度较轻的孢子叶。自此之后,根据亲本个体分别存放孢子叶叶片。
注意:孢子叶密集生长 "裙边" 位于成年海带固着器上方的基部,因缺乏充满气体的气囊而易于识别1成熟的孢子囊群组织通常比周围组织略高且颜色较深1. - 将孢子叶叶片置于避光的采集袋中运输,避免阳光过度照射,袋中保留少量采集地的海水以保持叶片湿润,并在约12 °C的冷藏箱中保存,直至抵达培养场所。确保样品不与冰块直接接触。
注意:孢子叶可运输至其他地点或从其他地点运来。- 用海水冲洗孢子叶。将从单个藻体采集的叶片用海水冲洗后包裹。 M. pyrifera 个体置于浸有海水的湿润纸巾中,再用铝箔包裹,以避免光线透入和进一步干燥36这种方法通常被称为 "卷饼法".
- 将这些包裹放入装有冰块的冷藏箱中,并使用再生泡泡纸或纸板等保护性隔层进行防护。准备好冷藏箱以进行过夜运输。确保有人能够接收货物,并将包裹置于冷藏条件下。
4. 孢子形成
- 若条件允许,应在 10–15 °C 的控温环境中处理孢子叶,并远离其他任何培养物。提前准备并灭菌器械和操作台。操作海带组织时佩戴防护手套,以减少污染。
- 可选择将孢子叶在冷藏条件下保存 12–48 小时,以促进孢子囊组织释放孢子37。保存时,采用第 3.3 节中所述的"卷饼法"。
- 选取成熟的孢子囊组织,使用无菌剪刀将其切成 25 cm2 的小片。从 10–15 株独立的海带亲本中各选取 1–2 个洁净的孢子囊区域,以促进遗传多样性。
注意:若已保存,可选择性检查纸巾上是否有部分孢子释放的迹象,以判断是否存在可育的孢子囊组织。孢子囊组织通常略高于周围组织,颜色较深。 - 清洁时,用经滤膜灭菌的海水润湿的无菌纱布,仅沿一个方向轻轻擦拭孢子囊组织的两面。如有需要,可用无菌剃刀片轻轻刮除附着物。将孢子囊片段浸入淡水浴中 30 秒至 1 分钟,随后用滤膜灭菌的海水冲洗。
注意:处理不同个体的多个孢子囊片段时,应更换淡水浴并重新灭菌所用材料,以减少交叉污染。 - 将每个孢子囊片段浸入盛有 10–15 °C 滤膜灭菌海水的无菌 50 mL 离心管中。将离心管置于 4–12 °C 黑暗环境中,最多静置 4 小时以诱导产孢。若无冰箱,可将其存放于低光照、低温区域。
注意:也可将多个孢子囊片段置于同一个无菌容器中进行产孢。 - 使用复式显微镜和血细胞计数板,每 30 分钟观察 3–4 个样品的孢子密度,持续至 4 小时。每次取样之间需更换移液器吸头。若孢子密度达到至少 10,000 个孢子/mL-1(见第 5.1.1 节),则进入下一步。若某孢子囊片段在 4 小时后仍未释放孢子,则弃去该样品。孢子在释放后数小时内可能沉降,但初期可见其呈环形游动。
- 用无菌镊子取出各离心管中的孢子囊片段。将所得的孢子悬液合并至一个已灭菌的容器中,并测定最终混合液的孢子密度。
5. 接种
- 计算接种所需的孢子溶液终体积,确保培养容器中的最终浓度约为 500–1,000 个孢子/mL−1。
- 为根据血细胞计数板中央方格的计数结果计算合并孢子样品的浓度,将计数值除以 10-4 mL (代表血细胞计数板中观察区域的溶液体积)。
- 为确定需加入每个容器的孢子溶液体积,需先确定培养容器中浸没基质所需的培养基体积。
- 为计算每个容器中孢子的总数,将该海水体积乘以所需的孢子浓度。
- 为确定需加入的孢子溶液总体积,将所需孢子总数除以孢子溶液中每毫升的孢子浓度。
- 在培养容器内放置无菌载玻片,用于监测海带发育情况。为实现充分监测,应在培养容器中随机分布至少 30 张载玻片(详见第 7 节)。
- 使用无菌移液器吸头,将计算好的孢子溶液体积加入含有浸没于培养基中基质的培养容器内。封闭容器并轻轻搅拌以使孢子均匀分布。密封后将容器放入培养系统中。
6. 饲养条件
- 根据部署地点的温度,将温度设定在 10-15 °C 之间。
- 1 天后,使用过滤空气源提供轻微通气。
- 为水生植物设置全光谱 LED 灯,光照周期为 12 小时光照:12 小时黑暗,光照强度范围为 0-180 µmol photon m-2 s-1:
- 在 0-1 天期间,将光照强度设为 5-10 µmol photon m-2 s-1,并在第 1 周结束前逐步增加至 20-30 µmol photon m-2 s-1。
- 此后,每 3-4 天将辐照度增加 10-20 µmol photon m-2 s-1,直至第 6 周结束时达到 180 µmol photon m-2 s-1。
- 继续在 180 µmol photon m-2 s-1 条件下培养至第 8 周结束,或直至孢子体长度达到约 1-2 cm。
7. 监测
- 在前两周内,每天或每隔一天至少监测两个随机的载玻片,以评估发育情况。
- 监测时,使用灭菌镊子夹取载玻片,并将其放入含有足量灭菌海水的洁净培养皿中,使载玻片完全浸没。取出后的载玻片不得放回原培养物中,以避免交叉污染。
- 使用复合显微镜或倒置显微镜,在40–400倍放大倍数下观察早期海带。根据以下时间线追踪发育过程(参见图3以了解发育各阶段的示例)。
注意:附着的孢子通常在0–1天内可见。孢子可在数小时内萌发,表现为萌发管的形成。萌发通常在1–2天内观察到。早期配子体通常在1–4天内可见。配子形成(即细胞通过分裂和分化形成雄性和雌性配子的过程)通常在前两周内发生。雌性细胞体积约为雄性细胞的5–7倍。雄性配子体生长出细长的丝状分支,而雌性则呈较圆或卵圆形。雌性通常在2–3周内产生卵子。雄性释放的精子游向雌性并与卵子结合,形成二倍体合子。适当的接种密度可确保配子间足够接近,从而实现成功繁殖38,39。受精卵发育为胚胎孢子体。孢子体通常在2–4周内可见。合子经历快速细胞分裂,约在6–8周内生长出1–2 cm的叶片。
- 两周后,每周监测1–2次至少两个随机载玻片,观察健康生长情况及是否存在污染,直至孢子体长至1–2 cm大小。
注意:健康生长的特征为金褐色(而非绿色或透明)。可通过倒置显微镜在载玻片上观察多个定量指标,包括存活率、萌发率、营养生长、生殖成熟度与繁殖力,以及性别比例40。 - 使用显微镜检测细菌、真菌、纤毛虫和硅藻的污染情况。清除局部污染。通过二氧化锗(GeO2)处理控制硅藻污染的早期迹象(参见第8.3节)。
8. 维护
- 根据第6.3节调整光照条件。
- 每周更换一次培养基,以补充巨藻(M. pyrifera)生长所需的营养物质和矿物质。
- 将新鲜培养基冷却至适宜温度。此过程中确保温度不超过15 °C。
- 通过虹吸法将培养容器中的培养基移除,以避免扰动已接种的基质。让培养基排出直至容器几乎排空。应立即补充新鲜培养基,以尽量减少干燥。在重新加液时,轻微倾斜容器,使培养基沿容器壁流下,从而最小程度地扰动基质。
- 每周更换培养基时,随机调换容器或水槽的位置,以消除光照强度差异的影响。
注:参见补充文件1 中的日程表,用于跟踪巨藻培养的操作安排和预期事项。该日程表标明了光照和通气调节的时间,以及每周更换培养基的节点。
- 可选地,使用二氧化锗(GeO2)处理以控制硅藻污染。向每1 L添加至接种基质的海水中加入0.3–0.5 mL的250 mg/mL GeO2 ,以减少广泛的硅藻污染。
注:GeO2 可能抑制藻类配子的产生。可在萌发后至卵子和精子大量产生前的短暂窗口期(1–7 d),和/或在卵子受精及观察到孢子体后(>21 d)施用GeO2处理,并在处理48小时后更换培养基以去除该化学物质。由于具体时间可能因培养条件而异,通过显微镜监测生活史阶段的发育情况是确定GeO2施用时机的最佳方法。若在培养容器中持续出现硅藻污染,并观察到硅藻在早期海带幼体上过度生长,应考虑重新接种基质。
9. 巨型海带营养体配子体培养
- 全年在营养条件下培养配子体,以减少对从天然珊瑚礁季节性采集孢子体的依赖。
- 根据来源种群,将配子体培养物置于含有培养基的烧瓶中,在4-12 °C、光照强度为5-20 µmol photon m⁻² s⁻¹的红光条件下保存-2 s-1 在12小时光照:12小时黑暗循环中。
- 持续通气,每2至6个月更换一次培养基。
- 用于无性繁殖生长的配子体生物量扩增绿色碎石接种后,增加通气量以悬浮配子体,将培养基更换频率提高至每周一次,并每两周对配子体进行一次机械破碎。
- 通过振荡或搅拌使配子体生物量悬浮于培养瓶中,必要时用无菌工具刮擦培养瓶内壁,以去除附着的配子体。
- 将悬浮的原叶体倒入无菌搅拌器或咖啡研磨机中,根据生物量浓度,以脉冲模式搅打原叶体溶液约5-15次,每次1-2秒,直至肉眼不可见成团的聚集体。
- 诱导繁殖以绿色碎石接种基质,并将全光谱LED光照强度从5-20提升至45-60 µmol photon m⁻² s⁻¹-2 s-1 (+10 µmol 光子 m-2 s-1 每天进行光适应),然后以10-20 µmol photon m⁻² s⁻¹的幅度逐步增加-2 s-1 每3-4天一次,直至达到180 µmol photon m⁻² s⁻¹的光合有效辐射强度-2 s-1.
10. 部署
- 经过 6–8 周的实验室培养后,确保幼嫩孢子体长度达到 1–2 cm,已准备好进行部署(图4)。在使用前24小时更换培养容器中的生长培养基。
- 获取符合当地法律法规的砾石投放许可。这是养殖过程中可能耗时较长的环节,必须纳入项目时间规划中。
- 转运绿色碎石用浸透海水的毛巾覆盖托盘,以保持海带湿润。将托盘放入带隔热层的冷藏箱中,并加入冰块,注意确保托盘不与冰块直接接触。确保 绿色碎石 紧密包装以避免在运输过程中基质卷曲和孢子体脱落。
注意:根据空间可用情况,也可将底物连同其培养容器或托盘一并转移,以减少操作步骤。 - 转运 绿色碎石 在阴凉的冷藏箱中最多可存放6小时。部署时间应避开阳光最强烈的时段。若从船上进行部署,应利用遮阴结构,避免在部署过程中受到阳光直射。
- 小心地撒布 绿色碎石 从表面下放到下方的珊瑚礁,或在新地点进行小规模试验时通过水肺潜水(SCUBA)实施。
结果
“绿色砾石”修复技术目前仍处于试点阶段,其他物种的移植后存活数据有限28,且尚未有关于Macrocystis pyrifera的已发表数据。根据本方案所述的野外采集与实验室培养方法,我们在假设开展“绿色砾石”部署之前,检验了两种不同来源海藻种群在特定地点培养条件下的重要性(图5)。繁殖用海藻组织采自美国加利福尼亚州较冷的K1种群(圣克鲁斯,36.60167°N,121.88508°W)和较暖的K4种群(圣地亚哥,32.85036°N,-117.27600°W),并在两种温度下进行培养:(1)12 °C(海藻养殖的标准培养温度,也是K1海域的冬季平均海表温度),以及(2)20 °C(K4海域的夏季平均海表温度,对K1而言相当于4 °C的热浪事件)。所有用于监测海藻生活史阶段发育的载玻片均标记有标准化网格,并以该网格为参照拍摄高分辨率图像,以便通过倒置显微镜和相机随时间观察固定视野区域(每样本N = 5张图像,视野大小为2.479 mm × 1.859 mm)。
孢子形成后24天,通过显微镜图像统计配子体数量(N = 60个样本中的300张图像)。为检验配子体数量的差异,采用基于R语言中glmmTMB包的glmmTMB()函数构建泊松分布的广义线性混合效应模型41,并使用emmeans包中的emtrends()函数进行成对比较42。结果显示,K1与K4种群在配子体对温度变异性响应方面存在显著差异(t = 2.7,p = 0.007)。其中,温度变异性对较温暖环境的K4种群无显著影响(估计值 = -0.01,标准误[SE] = 0.01,置信区间[CI] = [-0.03, 0.01]),但对较冷环境的K1种群具有显著影响(估计值 = -0.06,SE = 0.02,CI = [-0.10, -0.03])(图6A),提示其在耐热性状上可能存在适应性分化。通常认为海带配子体为抗逆阶段43,即其表现出一种通用型表型,具有较强的抗逆性且对环境波动相对不敏感。然而,本结果表明温度变异性在该早期发育阶段已构成显著的选择压力。
孢子形成后32天,统计每张2.5 cm × 7.5 cm载玻片(N = 72个样本)上全长大于约1 mm的可见孢子体数量。为检验可见孢子体数量的差异,采用R语言中glmmTMB包的glmmTMB()函数构建泊松分布的广义线性混合效应模型,并使用emmeans包中的emtrends()函数进行成对比较。结果显示,K1与K4分化群体对温度变异性在孢子体响应上相似(z = 0.92,p = 0.36),其中温度对较温暖环境的K4群体具有显著影响(估计值 = -0.66,标准误 SE = 0.04,置信区间 CI = [-0.74, -0.57]),对较冷环境的K1群体同样具有显著影响(估计值 = -0.85,SE = 0.13,CI = [-1.10, -0.60])(图6B)。在20 °C条件下培养的样本产生的可见孢子体较少(均值 ± SE = 0.4 ± 0.2),显著低于12 °C条件下的样本(均值 ± SE = 82.4 ± 9.8)。该结果表明,孢子体的产生对温度的敏感性高于配子体阶段,且为实现本方案所述的孢子体发育,特定地点的培养温度不得超过15 °C。
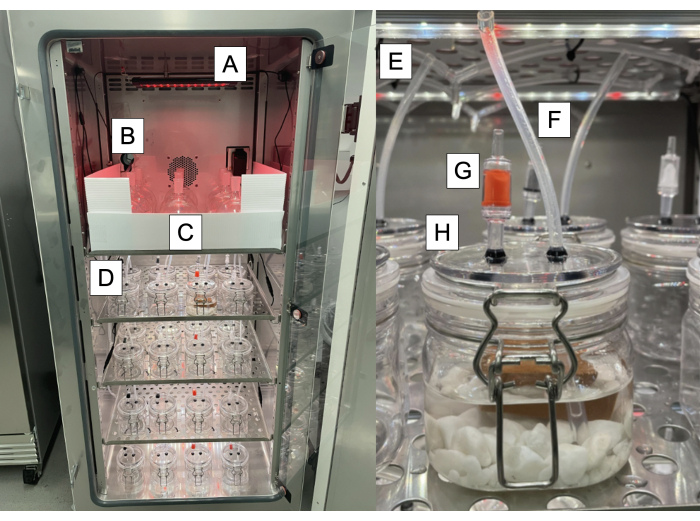
图 1:“绿色砾石” 培养系统示意图。(A)用于营养生长期配子体培养的红光光源。(B)用于电线和管路的通路孔,连接至外部电源或接口。(C)用于遮挡全光谱光源进入红光区域的结构。(D)“绿色砾石” 培养区。(E)全光谱光源。(F)连接至外部过滤空气源的管路。(G)减少空气传播污染的止回阀。(H)可最大限度减少污染的单个培养容器。请点击此处查看此图的放大版本。
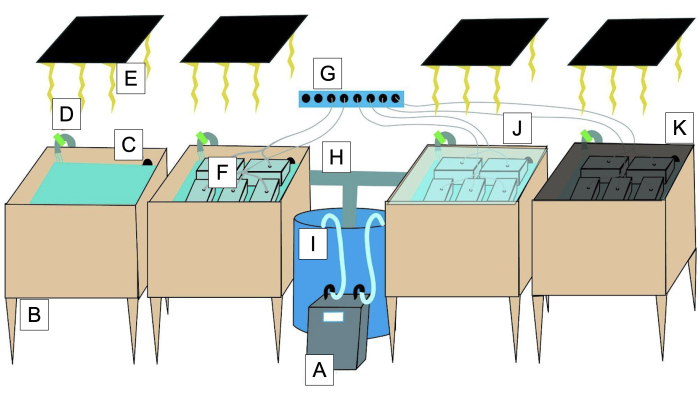
图2示意图 绿色砾石 水浴系统 (A) 带浸入式泵的冷水机(在 I). (B20加仑水浴桶。C) 排空以循环水浴。D水浴循环用阀门。E光源。F2.5 L 绿色碎石 带透明盖和通气孔的容器。G供气源。H) 使用潜水泵循环水的管道。I水浴接收器与冷水机之间通过带有潜水泵的水槽连接。J) 丙烯酸盖子,用于减少水浴蒸发。K) 使用遮阳网调节光照强度。 请点击此处以查看此图的放大版本。
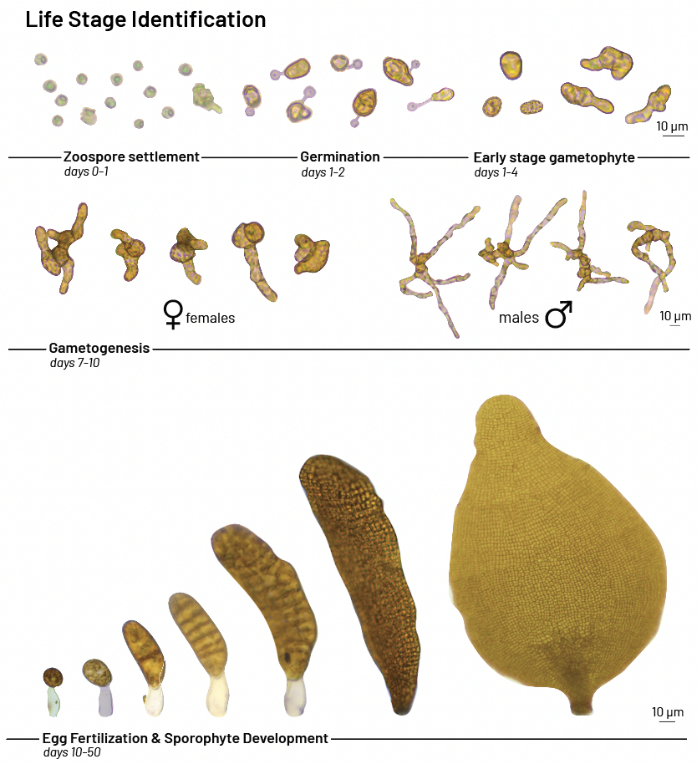
图3:Macrocystis pyrifera 的发育过程。 来自实验室培养试验的 Macrocystis pyrifera 发育生命周期各阶段。请点击此处查看该图的放大版本。
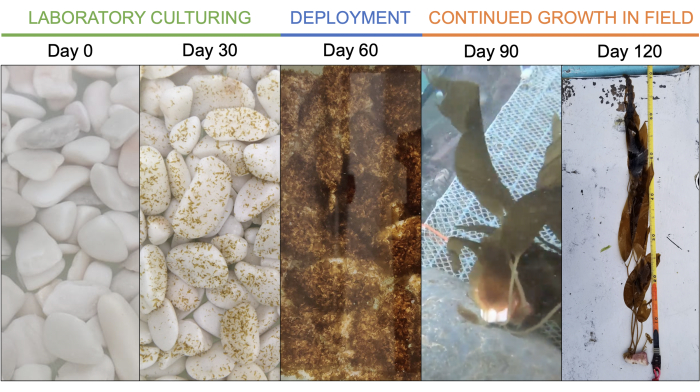
图 4:“绿石”接种Macrocystis pyrifera。将Macrocystis pyrifera接种于“绿石”上,在实验室中培养至孢子体长至1–2 cm。随后将“绿石”部署到野外并继续生长。请点击此处查看此图的放大版本。
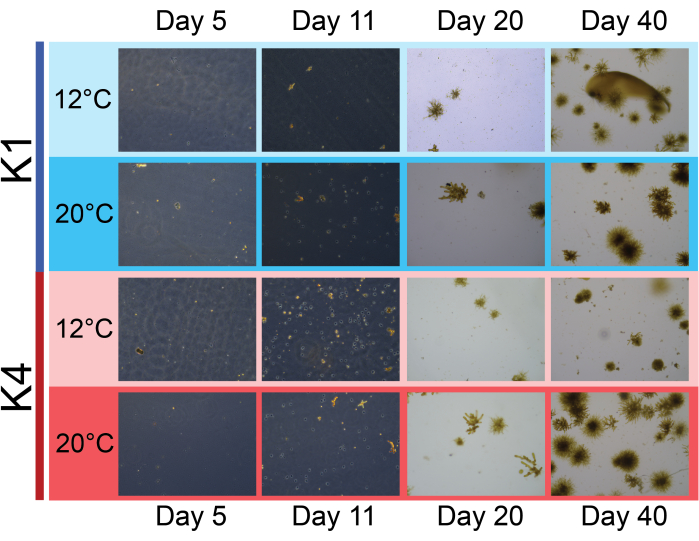
图5:实验时间序列。 本图展示了一个时间序列的示例图像,用于追踪源自加利福尼亚州(美国)两个种群的巨藻(Macrocystis pyrifera)配子体和孢子体在两种不同温度下的实验性生长与发育情况。K1 = 圣克鲁斯,K4 = 圣地亚哥。 请点击此处查看此图的高清版本。
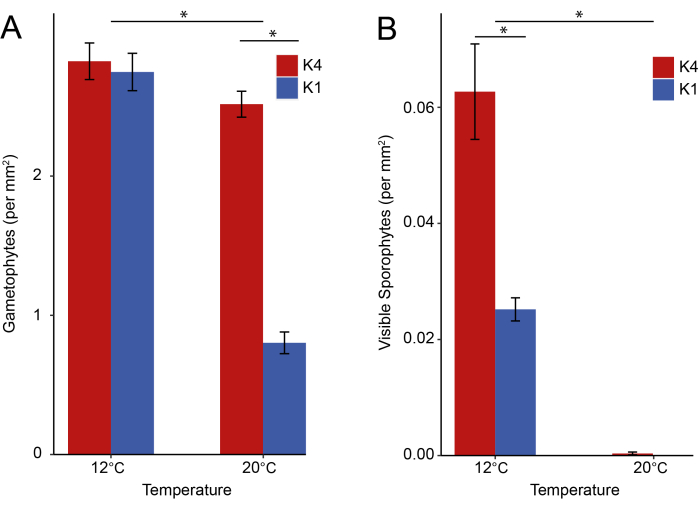
图 6:代表性结果。Macrocystis pyrifera 在 12°C 和 20°C 恒温条件下培养的 K1 圣克鲁斯、圣迭戈及 K4 圣克鲁斯来源种群的生活史阶段。误差线表示均值 ± 1 标准误(SE)。星号(*)表示具有统计学显著性差异(p < 0.05)。(A)第 24 天的配子体(N = 60 个样本的共 300 张图像)。(B)第 32 天可见的孢子体(N = 72 个样本,位于标准化的 2.5 cm × 7.5 cm 区域内)。请点击此处查看该图的放大版本。
补充文件 1. 请点击此处下载该文件。
讨论
人为导致的气候变化正日益威胁全球海洋的健康44,45,46,47,48,已造成严重的生态扰动和生物多样性丧失49,50,51,52。为加快退化生态系统的修复进程,联合国已宣布2021年至2030年为"联合国生态系统恢复十年",同时启动"联合国海洋科学促进可持续发展十年",旨在扭转海洋健康状况恶化的趋势53。响应这一全球行动号召,巨藻林联盟(Kelp Forest Alliance)发起了巨藻林挑战计划,目标是在2040年前恢复100万公顷、保护300万公顷的巨藻林生态系统54。海洋生态修复长期被低估55,而巨藻生态系统相较于珊瑚礁、红树林和海草床等生境,所获得的关注明显不足56。研究表明,退化生态系统的修复在重建海洋生态系统方面是有效的,但平均每公顷成本介于80,000至1,600,000美元之间,中位总成本可能高出两到四倍57。当前及预期的生态损失迫切要求发展可扩展、可行且具有成本效益的巨藻修复方法,作为紧急的保护干预措施。
目前的海带恢复工作采用多种方法相结合的方式,以应对导致海带丧失的特定地点因素,包括成年海带移植、直接播撒游孢子和/或配子体、食草生物控制以及人工礁体的建设11。然而,这些方法需要大量资源,且可扩展性有限。典型的成年海带移植需要潜水员在海底费力地布设人工材料或结构。自下而上的干预措施,例如通过控制竞争者和食草生物来重建沿海岩礁,也受限于人力成本,因为这些生物胁迫因子的水下人工清除或隔离工作劳动强度大11。而“绿砾”('green gravel')技术则克服了这些局限性,仅需从水面进行简单投放,无需水下安装或专业技术,且在相对较低的成本下具备良好的可扩展性28。这一创新方法为海带恢复提供了极具前景的工具,亟需在不同地点和环境中开展广泛试验,以充分释放其潜力32。
尽管在“绿色碎石 已在挪威受保护的峡湾中利用糖海带记录到 Saccharina latissima26,该技术仍处于试点阶段 巨藻 在东太平洋。需要开展更多试验以评估预期存活率 M. pyrifera 在其分布范围内移植。在典型的波浪暴露条件下 M. pyrifera 生长过程中,较细小的砾石可能更容易发生移动和磨损,从而导致移植植株受损。此外,由气囊提供的正浮力 M. pyrifera 可能导致绿色碎石移植体被有效冲离修复区域,因此砾石的尺寸和重量是该物种需要探索的重要因素。在最近的一项初步研究中(2022年5月;墨西哥下加利福尼亚州恩塞纳达),初步实现了野外的初步成功 M. pyrifera 已观察到壶状附着器与周围基质的连接,以及幼体在野外生长两个月后长度达到1.2 m,图4)。这表明在利用“绿色碎石 用于 M. pyrifera 在东太平洋。本视频展示了“绿色碎石 技术与 M. pyrifera 是简化和集中整合修复过程中培养阶段现有实践的宝贵资源,有助于支持针对不同野外条件下修复成效与局限性的研究。
采用“绿色砾石”技术,可以在较小的单个砾石单元上进行播种,其规模可能比使用成年植株的常见移植方法具有更高的成功率。然而,该技术可扩展性的关键在于其简单的水面部署方式,这有助于通过船只恢复大面积海域。在小砾石部署不适用的野外环境中,本方案可调整为在多种基质上移植M. pyrifera,包括较大的砾石甚至小石块、可系于天然或人工水下锚点的绳索,或在暴露程度较高的环境中使用海洋环氧树脂固定或粘接到海床的瓷砖。这些部署方式的调整不会改变M. pyrifera培养所需的设施,但会相应增加部署成本。
人为干扰和气候变化目前正超越自然种群的适应能力,这对旨在将生态系统恢复至历史状态的传统保护措施构成了重大挑战58,59,60,61,62,63因此,保护框架已扩展至包含前瞻性管理,考虑生态系统的恢复力和适应能力64针对森林生态系统中树种的气候变化前瞻性管理措施正在实施中65 并已被提议用于进一步的恢复工作,以增强移植个体的进化潜力66,67尽管这些策略在陆地环境中本质上更容易操控,但已有若干研究开始探索其在海洋环境中的应用62,68,69,70例如,珊瑚礁正面临多种人为压力因素的威胁,这些因素已导致其出现前所未有的衰退71,72针对这些关键基础物种的丧失,人们正 increasingly 倡导采用积极恢复和辅助适应技术,以保护现存的珊瑚礁及其相关功能62,73,74一种技术是将个体迁移至其当前物种分布范围内,以提高对热应激的耐受性75关于冠层形成类巨藻的恢复, 绿色碎石 具有可定制的框架,用于探索辅助适应技术,例如将抗逆基因型个体迁移至脆弱区域、非遗传性操作(如杂交)或对个体进行环境胁迫的驯化62 旨在获得更耐逆的菌株用于生态恢复项目76,77.
利用当地支持来加强生态恢复工作,对于维持海藻生态系统保护的成功至关重要。通过让当地利益相关者参与,可以增强他们对恢复需求的认可度6,50 ,并促进海岸带 stewardship 行为,从而可能带来更多的资金支持,并延长海藻生态系统保护的持续时间。与所有其他海藻恢复方法一样,采用整合了多种生态、社会经济和保护目标的结构化决策框架,将有助于实现海藻生态系统及其所支持社区的最佳结果11。
披露
作者无任何利益冲突需要披露。
致谢
本研究由加州海事拨款巨藻恢复研究计划(R/HCE-17)资助JBL和MESB,美国国家科学基金会研究培训奖(DGE-1735040)资助PDD,大自然保护协会、施密特海洋技术伙伴、可持续海洋联盟、廷克基金会资助AP-L,以及气候科学联盟下加利福尼亚工作组资助RBL和JL。我们感谢加州大学欧文分校的Steven Allison、Cascade Sorte、Samantha Cunningham、Sam Weber和Caitlin Yee;加州大学圣克鲁兹分校的Mark Carr、Peter Raimondi、Sarah Eminhizer、Anne Kapuscinski;大自然保护协会的Walter Heady和Norah Eddy;威斯康星大学密尔沃基分校的Filipe Alberto和Gabriel Montecinos;下加利福尼亚自治大学的Jose Antonio Zertuche-González、Alejandra Ferreira-Arrieta和Liliana Ferreira-Arrieta;MexCal的Luis Malpica-Cruz、Alicia Abadía-Cardoso和Daniel Díaz-Guzmán;MexCalitos潜水团队成员Alejandra Reyes、Monica Peralta、Teresa Tavera、Julia Navarrete、Ainoa Vilalta、Jeremie Bauer和Alfonso Ferreira;以及Nancy Caruso提供的技术建议。我们感谢下加利福尼亚自治大学海洋学研究所提供用于开发水浴系统的设施。我们感谢Ira Spitzer提供水下及无人机视频内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.22 µm 滤膜 | Milipore | SCGPS05RE | 天然海水灭菌 |
| 1 L 玻璃瓶 | Amazon | B07J6JP4D1 | 天然海水灭菌 |
| 1 µm 滤膜(水和空气) | Amazon | B01M1VWUWL | 天然海水灭菌 |
| 1'' PVC 90度弯头 | Home Depot | 203812125 | 选项 2 - 中等规模 - 水浴系统 |
| 10 µm 滤膜 | Amazon | B00D04BG56 | 天然海水灭菌 |
| 20 µm 滤膜 | Amazon | B082WS9NPH | 天然海水灭菌 |
| 3x5mm 管道 | Amazon | B0852HXPN6 | 选项 1 小规模 - 培养箱 |
| 4x4'' 无菌纱布 | Amazon | B07NDK8XM3 | 孢子形成 |
| 4x6mm 管道 | Amazon | B08BCRV1FY | 选项 1 小规模 - 培养箱 |
| 5 µm 滤膜 | Amazon | B082WS9NPH | 天然海水灭菌 |
| 50 mL Falcon 管道 | Amazon | B01M04HGPJ | 孢子形成 |
| 8x10mm 管道 | Amazon | B01MSM3LLZ | 选项 1 小规模 - 培养箱 |
| 空气滤膜 | Thermo Fisher | MTGR85010 | 选项 1 小规模 - 培养箱 |
| 酒精灯 | Amazon | B07XWD9WWC | 孢子形成 |
| 六水合硫酸亚铁铵 ACS 试剂,99% | Sigma | 215406-100G | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 水族级砾石 | Amazon | B07XRCKFBJ | 选项 1 小规模 - 培养箱 |
| 生物素粉末,BioReagent,适用于细胞培养、昆虫细胞培养和植物细胞培养,99% | Sigma | B4639-100MG | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 硼酸,99.8%,10043-35-3,MFCD00011337,BH3O3,61.83,500g | Thermo Fisher | 5090113707 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| D-泛酸钙,≥98.0% (T),C9H17NO5,137-08-6,25g,D-泛酸钙盐,P0012-25G 1/EA | Thermo Fisher | P001225G | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 止回阀 | Amazon | B08HRZR4MM | 选项 1 小规模 - 培养箱 |
| 透明管道 3/8'' - 10 英尺 | Amazon | B07MTYMW13 | 选项 2 - 中等规模 - 水浴系统 |
| 七水合硫酸钴 100g,警告 - 加州 - 致癌危害,93-2749-100G 1/EA | Thermo Fisher | 5090114752 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 带摄像头的复式显微镜 | OMAX | M83EZ-C50S | 监测 |
| 培养瓶 | Thermo Fisher | 07-250-080 | 选项 1 小规模 - 培养箱 |
| 培养灯 | Amazon | B07RRRPJ63 | 选项 1 小规模 - 培养箱 |
| 培养塞 | Amazon | B07DX6J7QD | 选项 1 小规模 - 培养箱 |
| 排水连接器 | Amazon | B00GUZ6CV0 | 选项 2 - 中等规模 - 水浴系统 |
| EDTA CAS 编号:6381-92-6 分子式:C10H14N2O8Na2-2H2O 分子量:372.2 | Thermo Fisher | 50213299 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| Eisco 安全套装量筒组 A 级,ASTM,容量:10 mL、25 mL、50 mL,分度值:0.2 mL、0.5 mL、1.0 mL,硼硅酸盐 3.3 玻璃,可高压灭菌:是,等级:A 级,有刻度:是,误差范围:0.10 mL、0.17 mL、0.25 mL | Thermo Fisher | S81273 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| Eisco 安全套装量筒组 A 级,ASTM,容量:50 mL、100 mL、250 mL,分度值:1.0 mL、1.0 mL、2.0 mL,硼硅酸盐 3.3 玻璃,可高压灭菌:是,等级:A 级,有刻度:是,误差范围:0.25 mL、0.50 mL、1.0 mL | Thermo Fisher | S81275 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| Eisco 安全套装容量瓶组 A 级,ASTM,容量:10 mL、25 mL、50 mL,硼硅酸盐 3.3 玻璃,可高压灭菌:是,等级:A 级,瓶塞材料:玻璃,瓶塞尺寸:9、9、13,瓶塞类型:磨口塞,有刻度:是 | Thermo Fisher | S81271 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 滤膜支架 | Amazon | B07LCKBKCT | 天然海水灭菌 |
| Fisherbrand 量筒,容量:500 mL,分度值:5 mL,硼硅酸盐玻璃,可高压灭菌:是,误差限:±4.0 mL,推荐用途:教育,分度:5 mL,S63460 1/EA | Thermo Fisher | S63460 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| FLEXACAM C1 相机 | Leica | FLEXACAM C1 | 监测 |
| 叶酸,C19H19N7O6,CAS 编号 59303,维生素 M,蝶酰谷氨酸,维生素 B9,叶酸素,叶酸,蝶酰谷氨酸,PteGlu,叶酸,叶酸盐,25g,100781,CHEBI:27470,黄色至橙色,2004190,441.41,OVBPIULPVIDEAOLBPRGKRZSAN | Thermo Fisher | AAJ6083314 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 独立式 20 加仑工具水槽 | Amazon | B094TLH19L | 选项 2 - 中等规模 - 水浴系统 |
| 二氧化锗 99.99 10 克 | Thermo Fisher | AC190000100 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 玻璃量筒,A 级圆底,Eisco,用途:测量液体,容量:1000 mL,分度值:10 mL 白色,CH0344OWT 1/EA | Thermo Fisher | S88442 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 载玻片 | Amazon | B00L1S93PS | 选项 2 - 中等规模 - 水浴系统 |
| 甘油磷酸二钠盐水合物异构体混合物 | Sigma | G6501-100G | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 培养容器 - 3.4 夸脱 - 3.25 升透明容器,带透明盖 | Container store | #10014828 | 选项 2 - 中等规模 - 水浴系统 |
| 生长灯 | Amazon | B086R14MFW | 选项 1 小规模 - 培养箱 |
| 血细胞计数板 | Amazon | B07TJQDKLJ | 孢子形成 |
| 带铰链的塑料罐 | SKS Bottle & Packaging | 40280125.01S | 选项 1 小规模 - 培养箱 |
| 肌醇,研究级,USP/NF 用于细菌学。光学非活性。已测试其在组织培养中的适用性。规格 - 100g 储存条件 - +15°C 至 +30°C 目录编号 - 26310.01 CAS 87-89-8 | Thermo Fisher | 50247745 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| Instant Ocean - 50 克 | Amazon | B000255NKA | 选项 1 小规模 - 培养箱 |
| 倒置显微镜 Leica DMi1 | Leica | DMi1 | 监测 |
| 六水合氯化铁 ACS 试剂,97% | Sigma | 236489-100G | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| Licor 光照度计数据记录仪 | Licor | LI-250A | 监测 |
| 光照/温度 HOBO 数据记录仪 | Amazon | B075X2SWKN | 监测 |
| 150W 灯 | Amazon | B0799DQM9V | 选项 2 - 中等规模 - 水浴系统 |
| 一水合硫酸锰,符合 USP 测试规格 | Sigma | M8179-100G | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 中等大小石块 2-3 英寸,20 磅 | Home Depot | 206823930 | 选项 2 - 中等规模 - 水浴系统 |
| 烟酸,99%,C6H5NO2,CAS 编号 59676,daskil,apelagrin,acidum nicotinicum,akotin,3-羧基吡啶,烟酸,3-吡啶羧酸,烟酸,pellagrin,wampocap,250g,109591,CHEBI:15940,1.4,2004410,293 摄氏度 (559 华氏度),123.11 | Thermo Fisher | AAA1268330 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 对氨基苯甲酸 99.82% 4-氨基苯甲酸,C7H7NO2,CAS 编号:150-13-0,25g,0210256925 1/EA | Thermo Fisher | ICN10256925 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| PVC 胶水 | Amazon | B001D9WRWG | 选项 2 - 中等规模 - 水浴系统 |
| 塑料水阀 | Amazon | B0006JLVE4 | 选项 2 - 中等规模 - 水浴系统 |
| 塑料水阀 | Amazon | B07G5FY7X1 | 选项 2 - 中等规模 - 水浴系统 |
| 精度 1mg 的电子天平 | Amazon | B08DTH95FN | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的材料 |
| 过滤空气用泵 | Amazon | B0BG2BT9RX | 选项 1 小规模 - 培养箱 |
| PVC 管道 1x24'' | Home Depot | 202300505 | 选项 2 - 中等规模 - 水浴系统 |
| 量子光度计 | Apogee Instruments | MQ-510 | 监测 |
| 制冷培养箱 | Thermo Fisher | 15-103-1566 | 选项 1 小规模 - 培养箱 |
| 橡胶垫圈 | Amazon | B07YZD22ZP | 选项 1 小规模 - 培养箱 |
| 盐度折射仪 | ATC | B018LRO1SU | 监测 |
| 遮阳网 6x50 英尺 | Home depot | 316308418 | 选项 2 - 中等规模 - 水浴系统 |
| 硝酸钠 ≥99.0% 硝酸,钠盐,NNaO3,CAS 编号:7631-99-4,500g,1/EA | Thermo Fisher | BP360500 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 通气孔焊接材料 | Amazon | B08R3515SF | 选项 2 - 中等规模 - 水浴系统 |
| 异丙醇喷雾 | Amazon | B08LW5P844 | 孢子形成 |
| 不锈钢剪刀 | Amazon | B07BT4YLHT | 孢子形成 |
| 不锈钢托盘 | Amazon | B08CV33YXG | 孢子形成 |
| 不锈钢镊子 | Amazon | B01JTZTAJS | 孢子形成 |
| 搅拌子 | Amazon | B07C4TNKXB | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的材料 |
| 潜水循环泵 400 GPH | Amazon | B07RZKRM13 | 选项 2 - 中等规模 - 水浴系统 |
| 潜水式球形量子传感器 | Waltz | US-SQS/L | 监测 |
| 红外测温枪 | Infrared Thermometer 749 | B07VTPJXH9 | 监测 |
| 盐酸硫胺素 BioReagent,适用于细胞培养、昆虫细胞培养和植物细胞培养 | Sigma | T1270-25G | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 胸腺嘧啶 99% 2,4-二羟基-5-甲基嘧啶,C5H6N2O2,CAS 编号:65-71-4,25g,157850250 1/EA | Thermo Fisher | AC157850250 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 透明亚克力板 24x48 英寸 | Home Depot | 202038048 | 选项 2 - 中等规模 - 水浴系统 |
| 1''x10 英尺水循环管道 | Amazon | B07ZC1PSF3 | 选项 2 - 中等规模 - 水浴系统 |
| 用于天然海水灭菌的紫外灯 | Amazon | B018OI7PYS | 天然海水灭菌 |
| 真空泵 | Amazon | B087XBTPVW | 天然海水灭菌 |
| 维生素 B12 BioReagent,适用于细胞培养、昆虫细胞培养和植物细胞培养,98% | Sigma | V6629-100MG | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 容量瓶,A 级玻璃,Eisco,带聚丙烯瓶塞,有刻度,白色印刷标记,容量:1000 mL,CH0446IWT 1/EA | Thermo Fisher | S89446 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 容量瓶,A 级玻璃,Eisco,带聚丙烯瓶塞,有刻度,白色印刷标记,容量:500 mL,CH0446HWT 1/EA | Thermo Fisher | S89445 | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
| 水冷机 200-600 GPM | Amazon | B07BHHP71C | 选项 2 - 中等规模 - 水浴系统 |
| 4x6mm 管道用 Y 型分流器 | Amazon | B08XTJKFCH | 选项 1 小规模 - 培养箱 |
| 七水合硫酸锌 BioReagent,适用于细胞培养 | Sigma | Z0251-100G | 用于制备 Provasoli’s 富集海水 (PES) 和培养基添加维生素的化学品 |
参考文献
- Schiel, D. R., Foster, M. S. The Biology and Ecology of Giant Kelp Forests. , Univ of California Press. (2015).
- Smale, D. A., Burrows, M. T., Moore, P., O'Connor, N., Hawkins, S. J. Threats and knowledge gaps for ecosystem services provided by kelp forests: a northeast Atlantic perspective. Ecol Evol. 3 (11), 4016-4038 (2013).
- Eger, A. M., et al. The value of ecosystem services in global marine kelp forests. Nat Comm. 14 (1), 1894(2023).
- Bennett, S., Wernberg, T., Arackal Joy, B., de Bettignies, T., Campbell, A. H. Central and rear-edge populations can be equally vulnerable to warming. Nat Comm. 6 (1), 10280(2015).
- Jueterbock, A., et al. Climate change impact on seaweed meadow distribution in the North Atlantic rocky intertidal. Ecol Evol. 3 (5), 1356-1373 (2013).
- Rogers-Bennett, L., Catton, C. A. Marine heat wave and multiple stressors tip bull kelp forest to sea urchin barrens. Sci Rep. 9 (1), 15050(2019).
- Krumhansl, K. A., et al. Global patterns of kelp forest change over the past half-century. PNAS. 113 (48), 13785-13790 (2016).
- Zimmerman, R. C., Kremer, J. N. Episodic nutrient supply to a kelp forest ecosystem in Southern California. J Mar Res. 42 (3), 591-604 (1984).
- Rothäusler, E., et al. Physiological performance of floating giant kelp Macrocystis pyrifera (phaeophyceae): Latitudinal variability in the effects of temperature and grazing. J Phycol. 47 (2), 269-281 (2011).
- Wernberg, T., Krumhansl, K., Filbee-Dexter, K., Pedersen, M. F. Chapter 3 - Status and trends for the world's kelp forests. World Seas: An Environmental Evaluation (Second Edition). , 57-78 (2019).
- Eger, A. M., Layton, C., McHugh, T. A., Gleason, M., Eddy, N. Kelp restoration guidebook: Lessons learned from kelp restoration projects around the world. TNCKelp Forest Alliance. , (2022).
- Filbee-Dexter, K., et al. Marine heatwaves and the collapse of marginal North Atlantic kelp forests. SciRep. 10 (1), 13388(2020).
- Filbee-Dexter, K., Scheibling, R. E. Sea urchin barrens as alternative stable states of collapsed kelp ecosystems. Mar Ecol Prog Ser. 495, 1-25 (2014).
- Filbee-Dexter, K., Wernberg, T. Rise of turfs: A new battlefront for globally declining kelp forests. BioSci. 68 (2), 64-76 (2018).
- Assis, J., Araújo, M. B., Serrão, E. A. Projected climate changes threaten ancient refugia of kelp forests in the North Atlantic. Glob Change Biol. 24 (1), e55-e66 (2018).
- Davis, T., Champion, C., Coleman, M. Ecological interactions mediate projected loss of kelp biomass under climate change. Divers Distrib. 28 (2), 306-317 (2021).
- Goldsmit, J., et al. Kelp in the eastern Canadian arctic: Current and future predictions of habitat suitability and cover. Front Mar Sci. 18, 742209(2021).
- Ling, S. D., Cornwall, C. E., Tilbrook, B., Hurd, C. L. Remnant kelp bed refugia and future phase-shifts under ocean acidification. PLoS One. 15 (10), e239136(2020).
- Eger, A. M., et al. Global kelp forest restoration: past lessons, present status, and future directions. Biol Rev. 97 (4), 1449-1475 (2022).
- Waylen, K. A., Fischer, A., McGowan, P. J., Thirgood, S. J., Milner-Gulland, E. J. Effect of local cultural context on the success of community-based conservation interventions. Biol Consv. 24 (4), 1119-1129 (2010).
- Vergés, A., et al. The tropicalization of temperate marine ecosystems: climate-mediated changes in herbivory and community phase shifts. Proc Royal Soc. B. 281 (1789), 20140846(2014).
- Zarco-Perello, S., Wernberg, T., Langlois, T. J., Vanderklift, M. A. Tropicalization strengthens consumer pressure on habitat-forming seaweeds. Sci Rep. 7 (1), 820(2017).
- Worm, B., Lotze, H. K. Chapter 21 - Marine biodiversity and climate change. Climate Change (Third Edition). , 445-464 (2021).
- Félix-Loaiza, A. C., Rodríguez-Bravo, L. M., Beas-Luna, R., Lorda, J., de La Cruz-González, E., Malpica-Cruz, L. Marine heatwaves facilitate invasive algae takeover as foundational kelp. Botanica Marina. 65 (5), 315-319 (2022).
- Miller, K. I., Blain, C. O., Shears, N. T. Sea urchin removal as a tool for macroalgal restoration: A review on removing "the spiny enemies". Fron Mar Sci. 9, 831001(2022).
- Westermeier, R., et al. Repopulation techniques for Macrocystis integrifolia (Phaeophyceae: Laminariales) in Atacama, Chile. J Appl Phycol. 26, 511-518 (2014).
- Layton, C., et al. Kelp forest restoration in Australia. Fron Mar Sci. 7, 74(2020).
- Fredriksen, S., et al. Green gravel: a novel restoration tool to combat kelp forest decline. Sci Rep. 10 (1), 3983(2020).
- Projects of the Green Gravel Action Group. Green Gravel Action Group. (n.d.) . , Available from: https://www.greengravel.org/ (2024).
- Fain, S. R., Murray, S. N. Effects of light and temperature on net photosynthesis and dark respiration of gametophytes and embryonic sporophytes of macrocystis pyrifera. J Phycol. 18 (1), 92-98 (1982).
- Westermeier, R., Patiño, D., Piel, M. I., Maier, I., Mueller, D. G. A new approach to kelp mariculture in Chile: production of free-floating sporophyte seedlings from gametophyte cultures of Lessonia trabeculata and Macrocystis pyrifera. Aquac Res. 37 (2), 164-171 (2006).
- Alsuwaiyan, N., et al. A et al. Green gravel as a vector of dispersal for kelp restoration. Fron Mar Sci. 9, 910417(2022).
- Falace, A., Kaleb, S., De La Fuente, G., Asnaghi, V., Chiantore, M. Ex situ cultivation protocol for Cystoseira amentacea var. stricta (Fucales, Phaeophyceae) from a restoration perspective. PloS One. 13 (2), e0193011(2018).
- Redmond, S., Green, L., Yarish, C., Kim, J., Neefus, C. New England seaweed culture handbook. , (2014).
- Provasoli, L., McLaughlin, J. J. A., Droop, M. R. The development of artificial media for marine algae. Arch Mikrobiol. 25, 392-428 (1957).
- Navarro, D., Navarro, D. E. California Kelp Forest Restoration: Science Activity Guide for Teachers. , (2006).
- Alsuwaiyan, N. A., et al. A review of protocols for the experimental release of kelp (Laminariales) zoospores. Ecol Evol. 9 (14), 8387-8398 (2019).
- Lüning, K., Müller, D. G. Chemical interaction in sexual reproduction of several Laminariales (Phaeophyceae): release and attraction of spermatozoids. Z. Pflanzenphysiol. 89 (4), 333-341 (1978).
- Müller, D. G., Maier, I., Gassmann, G. Survey on sexual pheromone specificity in Laminariales (Phaeophyceae). Phycologia. 24 (4), 475-477 (1985).
- Vieira, V. M., Oppliger, L. V., Engelen, A. H., Correa, J. A. A new method to quantify and compare the multiple components of fitness-a study case with kelp niche partition by divergent microstage adaptations to temperature. Plos One. 10 (3), e0119670(2015).
- Brooks, M. E., et al. glmmTMB balances speed and flexibility among packages for zero-inflated generalized linear mixed modeling. The R Journal. 9 (2), 378-400 (2017).
- Russell, L. emmeans: estimated marginal means, aka least-squares means. R package version. 1 (2), (2018).
- Ladah, L. B., Zertuche-González, J. A. Survival of microscopic stages of a perennial kelp (Macrocystis pyrifera) from the center and the southern extreme of its range in the Northern Hemisphere after exposure to simulated El Niño stress. Mar Biol. 152, 677-686 (2007).
- Halpern, B. S., et al. A global map of human impact on marine ecosystems. Science. 319 (5865), 948-952 (2008).
- Halpern, B. S., et al. Spatial and temporal changes in cumulative human impacts on the world's ocean. Nat Comm. 6 (1), 1-7 (2015).
- Halpern, B. S., et al. Recent pace of change in human impact on the world's ocean. Sci Rep. 9 (1), 11609(2019).
- Micheli, F., et al. Cumulative human impacts on Mediterranean and Black Sea marine ecosystems: assessing current pressures and opportunities. PloS One. 8 (12), e79889(2013).
- Portner, H. -O., et al. IPCC, 2022: Summary for policymakers. IPCC. , (2022).
- Butchart, S. H. M., et al. Global biodiversity: Indicators of recent declines. Science. 328 (5982), 1164-1168 (2010).
- Rocha, J., Yletyinen, J., Biggs, R., Blenckner, T., Peterson, G. Marine regime shifts: Drivers and impacts on ecosystems services. Phil Trans Roy Soc. B. 370 (1659), 20130273(2015).
- Worm, B., et al. Impacts of biodiversity loss on ocean ecosystem services. Science. 314 (5800), 787-790 (2006).
- Worm, B., Lotze, H. K. Marine biodiversity and climate change. Climate Change (Third Edition). , Chapter 21 445-464 (2021).
- Waltham, N. J., et al. UN decade on ecosystem restoration 2021-2030-What chance for success in restoring coastal ecosystems. Fron Mar Sci. 7, (2020).
- Kelp Forest Challenge. Kelp Forest Alliance. , Available from: https://kelpforestalliance.com/ (2024).
- Gordon, T. A. C., Radford, A., Simpson, S. D., Meekan, M. G. Marine restoration projects are undervalued. Science. 367 (6478), 635-636 (2020).
- Morris, R. L., et al. Key principles for managing recovery of kelp forests through restoration. BioScience. 70 (8), 688-698 (2020).
- Bayraktarov, E., et al. The cost and feasibility of marine coastal restoration. Ecol Appl. 26 (4), 1055-1074 (2016).
- Breed, M. F., et al. Priority actions to improve provenance decision-making. BioScience. 68 (7), 510-516 (2018).
- Breed, M. F., et al. The potential of genomics for restoring ecosystems and biodiversity. Nat Rev Genet. 20 (10), 615-628 (2019).
- Gurgel, C. F. D., Camacho, O., Minne, A. J. P., Wernberg, T., Coleman, M. A. Marine heatwave drives cryptic loss of genetic diversity in underwater forests. Curr Biol. 30 (7), 1199-1206 (2020).
- Hobbs, R. J., Higgs, E., Harris, J. A. Novel ecosystems: implications for conservation and restoration. Trends Ecol Evol. 24 (11), 599-605 (2009).
- van Oppen, M. J. H., Oliver, J. K., Putnam, H. M., Gates, R. D. Building coral reef resilience through assisted evolution. PNAS. 112 (8), 2307-2313 (2015).
- Perring, M. P., et al. Advances in restoration ecology: Rising to the challenges of the coming decades. Ecosphere. 6 (8), (2015).
- Coleman, M. A., et al. Restore or redefine: Future Trajectories for Restoration. Fron MarSci. 7, 237(2020).
- O'Neill, G. A. Assisted migration to address climate change in British Columbia: recommendations for interim seed transfer standards. Ministry of Forests and Range, Forest Science Program. , Victoria, B.C. (2008).
- Broadhurst, L. M., et al. Seed supply for broadscale restoration: maximizing evolutionary potential. Evol App. 1 (4), 587-597 (2008).
- Vitt, P., Havens, K., Kramer, A. T., Sollenberger, D., Yates, E. Assisted migration of plants: Changes in latitudes, changes in attitudes. Biol Cons. 143 (1), 18-27 (2010).
- Buerger, P., et al. Heat-evolved microalgal symbionts increase coral bleaching tolerance. Sci Adv. 6 (20), 2498(2020).
- Chakravarti, L. J., van Oppen, M. J. H. Experimental evolution in coral photosymbionts as a tool to increase thermal tolerance. Fron Mar Sci. 5, (2018).
- van Oppen, M. J. H., et al. Shifting paradigms in restoration of the world's coral reefs. Global Change Biology. 23 (9), 3437-3448 (2017).
- Harborne, A. R., Rogers, A., Bozec, Y. -M., Mumby, P. J. Multiple Stressors and the Functioning of Coral Reefs. Ann Rev Mar Sci. 9 (1), 445-468 (2017).
- Hughes, T. P., et al. Climate change, human impacts, and the resilience of coral reefs. Science. 301 (5635), 929-933 (2003).
- Anthony, K., et al. New interventions are needed to save coral reefs. Nat Ecol & Evol. 1 (10), 1420-1422 (2017).
- Darling, E. S., Côté, I. M. Seeking resilience in marine ecosystems. Science. 359 (6379), 986-987 (2018).
- van Oppen, M. J. H., Puill-Stephan, E., Lundgren, P., De'ath, G., Bay, L. K. First-generation fitness consequences of inter-populational hybridization in a Great Barrier Reef coral and its implications for assisted migration management. Coral Reefs. 33 (3), 607-611 (2014).
- Coleman, M. A., Goold, H. D. Harnessing synthetic biology for kelp forest conservation1. J Phycol. 55 (4), 745-751 (2019).
- Liboureau, P., Pearson, G. A., Barreto, L., Serrao, E. A., Kreiner, A., Martins, N. Effects of thermal history on reproductive success and cross-generational effects in the kelp Laminaria pallida (Phaeophyceae). Mar Ecol Prog Ser. 715, 41-56 (2023).
重印与许可
