本方案描述了一种在病毒感染的人肠道类器官中进行钙成像的方法,并提供了一种分析策略。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
钙信号是调控几乎所有组织的核心机制。在肠上皮中,钙参与调控分泌活动、肌动蛋白动态、炎症反应、干细胞增殖以及许多尚未明确的细胞功能。因此,绘制肠上皮内钙信号的动态图谱有助于深入理解细胞稳态过程,并揭示对各种刺激的独特响应。人源肠道类器官(HIOs)是一种高通量、来源于人类的肠上皮研究模型,因而成为研究钙动态的理想体系。本文介绍了一种稳定转导HIOs以表达基因编码钙指示剂(GECIs)、进行活细胞荧光显微成像并分析成像数据以有效表征钙信号的实验方案。作为代表性示例,将三维HIOs通过慢病毒转导,使其稳定表达基于绿色荧光蛋白的胞质GECI——GCaMP6s。经基因工程改造的HIOs随后被分散为单细胞悬液,并以单层形式接种培养。在完成分化后,HIO单层细胞被轮状病毒感染和/或用已知可激发钙反应的药物处理。利用配备温控、加湿活细胞成像舱的落射荧光显微镜,可对感染或药物处理的单层细胞进行长期成像。成像完成后,使用免费开源分析软件ImageJ对获取的图像进行分析。总体而言,本研究建立了一条可灵活应用的流程,用于在HIOs中表征细胞信号传导过程。
引言
钙是一种广泛保守的第二信使,在调控细胞生理学中起着关键作用1。由于其电荷强、体积小且在生理条件下溶解度高,钙是调节蛋白质构象的理想分子。这使得钙能够有效地将电化学信号转化为酶活性、转录或转录后水平的改变。内质网(ER)和质膜之间存在严格的钙浓度梯度,形成了强大的驱动力,从而实现胞质钙浓度的快速变化。多种机制(包括缓冲作用和主动运输)共同紧密维持这一梯度。尽管这种维持对正常细胞功能至关重要,但其能量消耗较大,因此在应激状态下尤为脆弱2。
因此,细胞质内钙离子的失调几乎是各种细胞应激的普遍信号。代谢紊乱、毒素、病原体、机械损伤以及遗传干扰均可能破坏钙信号传导。无论刺激因素为何,在全细胞水平上,持续且不受控制的细胞质钙浓度升高均可促进细胞凋亡,并 最终导致坏死3,4。然而,幅度较低或频率较高的细胞质钙水平变化则具有不同的效应2。同样,钙波动的结果也可能因其发生的特定空间微域而异5。因此,监测钙水平可 为动态信号传导过程提供洞察,但这需要具备相对较高的时间和空间分辨率的采样技术。
基因编码的钙离子指示剂(GECIs)是用于活细胞系统中连续采样的有力工具6。其中应用最广泛的GECIs是一类基于绿色荧光蛋白(GFP)的钙离子响应型荧光蛋白,称为GCaMPs7。经典的GCaMP由三个不同的蛋白质结构域融合而成:环状重排的绿色荧光蛋白(cpGFP)、钙调蛋白(calmodulin)和M136。钙调蛋白结构域在结合钙离子后发生构象变化,从而能够与M13相互作用。钙调蛋白与M13的结合会诱导cpGFP发生构象改变,使其在激发后荧光发射增强。因此,钙离子浓度的升高与GCaMP荧光强度的增强呈正相关。这些传感器可定位于细胞质,也可靶向特定细胞器8。
与大多数组织类似,钙离子调控着胃肠道上皮内的多种功能。肠上皮对于营养物质和液体的吸收至关重要,同时还必须形成紧密的屏障和免疫界面,以防止病原体入侵或毒性损伤。钙依赖性信号通路几乎影响所有这些关键功能9,10,11。然而,肠上皮内的钙信号传导仍是一个尚未充分探索的研究领域,具有作为治疗靶点的广阔前景。尽管在活体(in vivo)条件下监测肠上皮内钙动态变化仍面临挑战,人类肠道类器官(HIOs)为实验研究提供了一种可操作的体外(ex vivo)系统12。HIOs 是由人类肠干细胞衍生而来的三维(3D)球状结构,在分化后能够重现天然肠上皮的大部分细胞多样性12。
本方案描述了表达基因编码钙指示剂(GECI)的人类类器官(HIO)的构建方法,并进一步将工程化HIO制备为单层细胞,用于活细胞钙成像。方案以病毒侵染为例,演示了一种破坏钙信号通路的病理干预手段,并提供了量化此类变化的分析方法。
访问受限。请登录或开始试用以查看此内容。
方案
本方案及代表性实验所使用的所有人肠道类器官(HIOs)均来源于贝勒医学院德克萨斯医学中心消化系统疾病类肠体核心实验室获取并保存的人体组织。所有样本的收集均遵循贝勒医学院机构审查委员会批准的方案进行。
1. 材料与试剂的准备
- 用于类器官维持,准备细胞培养处理的24孔板、基底膜基质(BMM)、15 mL离心管和1.5 mL离心管。
- 准备 不含生长因子的完全培养基(CMGF-):向500 mL高级DMEM/F12培养基中加入5 mL 1 M HEPES、5 mL 100倍抗生素-抗真菌剂、5 mL 100倍谷氨酰胺补充剂。
- 准备 含Wnt、R-spondin和Noggin的培养基(WRNE培养基),将CMGF-培养基与Wnt条件培养基等体积混合,加入体积分数10%的Noggin条件培养基、体积分数20%的R-spondin条件培养基、50 ng/mL人表皮生长因子、10 mM烟酰胺、10 nM [Leu15]-胃泌素I、500 nM A-83-01 10 µM SB202190、1× B27 添加剂、1× N2 添加剂以及 1 mM N-乙酰半胱氨酸。
- 用于慢病毒转导,准备胎牛血清(FBS)、0.05% 胰蛋白酶-EDTA(溶于1×磷酸盐缓冲液PBS)、含10% FBS的CMGF-、无菌1× PBS、Polybrene 10 µM Y-27632,慢病毒,高Wnt WRNE + 10 µM Y-27632
- 为生成类器官单层,准备玻璃底10孔细胞培养板、胎牛血清(FBS)、IV型胶原蛋白(1 mg/mL,溶于去离子水(diH₂O))2O)、基底膜基质、含0.5 mM EDTA的1×PBS、含5 mM EDTA的1×PBS、酶解离缓冲液、含10% FBS的CMGF-、WRNE + 10 µM Y-27632
- 对于类器官单层细胞的病毒感染,准备胰蛋白酶、轮状病毒原液、CMGF-、25G针头、无菌1×PBS和无酚红分化培养基。
- 准备 不含酚红的分化培养基,取 500 mL 无酚红细胞培养基中加入 5 mL 100× MEM 非必需氨基酸、5 mL 100× L-谷氨酰胺、5 mL 100 nM 丙酮酸钠和 7.5 mL 1 M HEPES。
- 用于类器官的免疫荧光染色,准备 4% 甲醛(将 16% 甲醛用 1x PBS 稀释)、Triton X-100(0.1% Triton X-100 溶于 1x PBS)、牛血清白蛋白(3% 牛血清白蛋白溶于 1x PBS)、NH4Cl 溶液(50 mM),DAPI(1 µg/mL DAPI 溶液(溶于 1× PBS)
2. 利用基因编码的钙传感器改造类器官
注意:本方案描述了在 24 孔板中每孔接种于 30 μL 基底膜基质(BMM)中的三维人肠道类器官单孔转导步骤13。大多数细胞系每孔约含 400,000 个细胞。应设置一个未转导的孔作为对照。所有试剂和细胞悬液均需置于冰上保存。
- 在最后一次传代后的 2-5 天,从两孔 HIO 中移除维持用 WRNE 培养基。每孔加入 300 μL 的 0.05% 胰蛋白酶-EDTA,并轻轻吹打 5 次以使 BMM 从培养板上脱落。置于 37 °C 培养箱中孵育 4 分钟。
- 每孔加入 500 μL 的 CMGF- + 10% FBS。使用 1 mL 低吸附枪头,通过将 1 mL FBS 上下吹打 2 次进行预包被。FBS 可在多个枪头间重复使用。用预包被的枪头将 HIO 上下吹打 10 次。
- 将每孔内容物转移至各自预包被的 1.5 mL 微量离心管中。用额外的 500 μL CMGF- 冲洗每孔,并将冲洗液加入相应的离心管中。
- 在 4 °C 条件下,以 100 × g 转速在摆动桶离心机中离心 5 分钟。移除上清液及任何残留的基质膜(BMM)。
- 用 1 mL 的 1× PBS 重悬沉淀。将每管内容物分装至两个微量离心管中,共得到 4 个管。在 4 °C 条件下以 100 × g 转速离心 5 分钟。移除上清液。
- 每管再用 1× PBS 重悬一次,并在 4 °C 条件下以 100 × g 转速离心 5 分钟。
- 准备 400 µL 转导培养基和对照培养基(表 1)。将其中两管用 200 µL 对照培养基重悬,另两管用 200 µL 转导培养基重悬。
- 在 37 °C 细胞培养箱中孵育 24 小时。定期使用包被过的枪头上下吹打重悬(例如转导后 2 小时、12 小时、18 小时),以促进均匀转导。
- 24 小时后,在 4 °C 条件下以 100 × g 转速离心 5 分钟。移除上清液。
- 用 500 µL 的 1× PBS 重悬沉淀以洗涤。在 4 °C 条件下以 100 × g 转速离心 5 分钟。移除上清液。
- 使用预冷的 200 µL 枪头,将 4 个沉淀分别用 30 µL BMM 重悬。轻轻吹打以均匀分散。
- 将每管内容物分别接种至 24 孔板的独立孔中。在 37 °C 孵育 10 分钟,待 BMM 凝固后,加入 500 μL HighWnt WRNE + 10 μM Y-27632。
- 让转导后的 HIO 培养 1 周,每隔一天更换一次培养基(HighWnt WRNE + 10 μM Y-27632)。1 周后,通过显微镜检测荧光指示剂的表达情况。若信号较强,可开始药物筛选;若信号较弱,则按上述方法重复转导步骤。
- 待细胞系建立后,通过激动剂处理验证荧光指示剂的功能。100 nM ADP 是用于 GCaMP 验证的可靠激动剂。按以下所述方法对 3D 类器官进行初步验证。
- 传代后,将一孔或多孔类器官以正常密度约 1/3 的比例接种于另一块成像底板的 BMM 中,以避免成像时过度重叠。激动剂处理后不再继续传代这些 HIO,因难以保证无菌条件。
- 让 HIO 在传代后恢复 2-3 天。成像前,更换为不含酚红的分化培养基。
- 使用荧光显微镜,设置激发波长为 488 nm、滤光片为 FITC/GFP 的条件下,每 5 秒采集一次图像,持续运行 3 分钟。成像 30 秒后,加入 100 nM ADP 或溶剂对照。继续成像直至信号恢复至接近基线水平,约 2 分钟。ADP 处理后 GCaMP 荧光出现瞬时约 2 倍的升高,表明转导成功且生物传感器功能正常。 如需更精确评估转导效率,可使用第 3 部分所述方法生成的单层细胞重复激动剂测试并进行成像。
3. 活体荧光成像用 HIO 单层的制备
- 用 IV 型胶原蛋白包被 10 孔成像底板的全部孔。具体操作:将 34 μL 的 1 mg/mL IV 型胶原蛋白与 960 μL 无菌去离子水混合。向每孔加入 95 μL 稀释后的 IV 型胶原蛋白溶液,并在 37 °C 下孵育 0.5–2 小时。
- 从 4 孔 3D HIO 中移除 WRNE 维持培养基。HIO 应在上次传代后 5–7 天进行操作。
注意:1 块 10 孔板通常需要约 1.25 × 10⁶ 个细胞。这通常需要将 2–4 孔 3D HIO 分别以每孔 30 μL BMM 接种,但具体数量会因细胞密度而异。 - 每孔加入 500 μL 1× PBS + 0.5 mM EDTA。使用预包被的 1 mL 枪头,轻柔吹打以使 BMM 从板上脱离。将悬液转移至预包被的 15 mL 圆底离心管中,将相同来源的孔合并至同一管中。
- 用额外的 500 μL PBS + 0.5 mM EDTA 冲洗每孔。在 4 °C 下以 300 × g 离心 5 分钟。弃去上清液及残留的 BMM。
- 使用预包被枪头,将剩余沉淀重悬于 3 mL PBS + 5 mM EDTA 中(注意:此步 EDTA 浓度为第一次洗涤的 10 倍)。
- 在 4 °C 下以 300 × g 离心 5 分钟。弃去上清液。将沉淀重悬于 2 mL 酶解消化缓冲液中。
- 在 37 °C 摇床/水浴中孵育 5 分钟。加入 3 mL CMGF- + 10% FBS,轻柔吹打混匀。
- 在 4 °C 下以 300 × g 离心 5 分钟。弃去上清液。加入 1 mL CMGF-。
- 使用预包被枪头剧烈吹打 80–100 次,通过机械作用将 HIO 分散为单细胞。在 4 °C 下以 300 × g 离心 5 分钟。弃去上清液。
- 将沉淀重悬于 1 mL WRNE + 10 µM Y-27632 中。对 1 mL 悬液进行细胞计数。
- 用 WRNE + 10 µM Y-27632 稀释细胞悬液,使浓度达到 1.25 × 10⁵ 个细胞/100 μL(即 1.25 × 10⁶ 个细胞/mL)。
- 使用 200 μL 移液枪,移除第 1 步中已准备好的板中的胶原溶液(此时胶原已沉降至孔底)。操作时避免枪头接触孔底。
- 使用预包被的 200 μL 移液枪头,每孔加入 100 μL 第 3.11 步的细胞悬液(含 1.25 × 10⁵ 个细胞)。
- 在 37 °C 细胞培养箱中孵育 24 小时。24 小时后,移除所有孔中的培养基,并更换为每孔 100 μL 分化培养基。
注意:此时细胞应已贴附于板上。需注意单层细胞可能尚未汇合或完全平整。 - 将玻片重新放回 37 °C 细胞培养箱中。每 24 小时更换一次分化培养基,直至单层细胞汇合。通常从接种起需 3–5 天。此后,单层细胞即可用于后续实验应用。
4. HIO 单层细胞的病毒感染
- 准备病毒接种物。如有必要,用胰蛋白酶活化病毒储备液。对于轮状病毒,在病毒储备液中加入 10 µg/mL Worthington 胰蛋白酶,并在 37 °C 下孵育 1 小时。
- 使用以下两种方法之一稀释活化后的病毒储备液。
- 若希望使用单一病毒株获得最大数量的感染细胞,将 50 μL 活化病毒储备液与 50 μL CMGF- 混合。
- 若比较多个病毒株,需制备接种物以达到等效的感染复数(MOI)。使用以下公式计算每孔所需病毒储备液的体积。将计算所得体积的病毒储备液用 CMGF- 补足至每孔终体积为 100 μL。
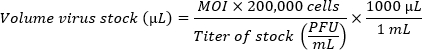
注意:接种于直径为 5.46 mm(96 孔板)的单个 HIO 单层膜约含有 200,000 个细胞。由于单层膜感染效率较低,建议采用较高的 MOI(每个细胞 100 至 100 万个病毒颗粒)。最佳 MOI 需通过实验确定。
- 用 200 μL 移液器轻轻吸出 HIO 单层膜中的培养基,接种 100 μL 病毒接种物或模拟接种物。
- 由于大多数轮状病毒储备液是在 MA104 细胞中扩增的,因此使用未感染的 MA104 细胞裂解物作为模拟接种物。所用体积应与感染孔中病毒储备液的体积相等,并加入 CMGF- 使每孔终体积为 100 μL。
- 对于如轮状病毒14等从基底侧感染细胞的病毒,使用 25G 针头在单层膜表面划痕。最简便的方法是从孔底部到顶部沿单层膜长度方向划一条直线。将针头斜面向上、与移动方向相反,以一定角度轻轻压入单层膜,并沿其长度拖动,形成划痕(图 2A)。
- 在 37 °C 培养箱中孵育 2 小时。移除病毒接种物和模拟接种物,用 1× PBS 轻柔洗涤单层膜一次。
- 加入 100 μL 酚红-free 分化培养基。将载玻片置于 37 °C 培养箱中,直至准备成像。最佳成像时间窗取决于病毒感染的动力学特征。对于轮状病毒,建议在感染后 6–8 小时开始成像。
- 使用以下两种方法之一稀释活化后的病毒储备液。
5. 感染单层细胞的 Ca2+ 成像
- 将台式培养箱预热至 37 °C. 使用加湿的CO₂培养箱培养2 以0.02 L/min的流速通入气体。将带有感染单层细胞的载玻片放入培养箱腔室中,并密封盖子。
- 使用明场(BF)照明和20倍物镜,选择单层细胞中待成像视野的X和Y坐标。最好选择划痕区域可见的位点,因为大多数感染细胞将位于划痕附近。
- 优化成像参数,使用488 nm激发光采集图像。为最小化光毒性,将光源功率设为50%,曝光时间为50 ms。合适的采集参数可能有所不同,应通过多次采集进行优化。确保无像素饱和。根据需要调整曝光时间和光照强度,以确保能够检测到荧光钙探针的完整动态范围。
- 若使用其他荧光染料(例如,荧光标记的病毒),需在这些通道上重复优化。设置成像循环,并在每分钟循环中于选定的每个 X、Y 坐标处采集 488 nm 图像。持续连续采集该循环图像。当使用荧光标记病毒时,每隔 10 秒在相应通道采集一次图像th 循环(即,每10分钟1张图像)。
- 连续采集图像约18小时。若使用的病毒未带有荧光标记,则固定单层细胞并进行免疫荧光染色以识别感染细胞。此步骤应在完成下述成像过程后进行。
- 移除成像培养基,并替换为 100 μL 在1×PBS中加入4%多聚甲醛,室温孵育30分钟。
- 去除固定剂,并用 100 μL 50 mM NH4Cl 孵育 10 分钟。去除 NH4Cl. 用去垢剂处理单层细胞以增加通透性 100 μL 0.1% Triton X-100 的 1x PBS 溶液中,室温孵育 1 小时或4°C 过夜 4 °C.
- 去除通透缓冲液。用封闭液封闭 100 μL 在1×PBS中含3%牛血清白蛋白中孵育1小时。
- 移除封闭液。加入用1x PBS稀释至推荐/优化浓度的一抗。添加 100 μL 每孔加入抗体溶液
- 孵育过夜于 4 °C 轻柔振荡孵育。移除一抗。用1×PBS洗涤3次。
- 加入用1x PBS稀释至推荐/优化浓度的荧光标记二抗。加入 100 μL 每孔孵育2小时,室温条件下。
注:FPBase15 是帮助选择在多重检测中避免串色的二抗的宝贵资源。大多数二抗在1×PBS中以1:1000稀释倍数使用时效果良好。 - 去除二抗。进行下一步操作。 1 µg/mL DAPI 溶液加入 1x PBS 中并添加 100 μL 每孔加入。孵育20分钟。移除DAPI。用1×PBS洗涤3次。
- 保持固定的单层细胞 100 μL 用1×PBS清洗样本以进行成像。将玻片重新放回显微镜载物台上,调用活细胞成像运行时记录的X和Y坐标,依次在对应于染色所用二抗的通道中对每个多位点进行成像。参考活细胞成像时获取的图像,确保捕获相同的位点。
6. 细胞间钙波的定量分析
- 确保已安装仅包含 ImageJ 的 Fiji(FIJI),并配备以下插件:Bio-Formats(在 FIJI 中应已预装,但在 ImageJ 中没有);Cookbook:安装方法为,从 FIJI 菜单中选择 帮助 > 更新 > 管理更新站点,勾选 Cookbook,然后重启 FIJI。
- 将活细胞成像运行生成的数据文件按每个 X、Y 坐标拆分为多个文件。在 Nikon NES Elements 中,选择 文件 > 导入/导出 > 拆分多点,选择导出文件夹及适当的前缀。
- 打开 FIJI,从拆分后的多点文件中加载单个文件。若使用多通道图像,请先拆分通道,然后选择包含 488 nm 通道(GCaMP)图像的窗口。
- 运行 DeltaF Up 功能,以确定每个像素值在相邻时间点之间的变化。操作方式为:选择 Cookbook > T-functions > Delta F Up。
- 滚动浏览图像序列,直至找到显示钙波的图像。在可见钙波的情况下,通过点击 图像 > 调整 > 阈值 设置阈值,调整下限以尽量减少非钙波信号通过阈值的情况。对于使用上述参数获取的 16 位图像,建议从下限阈值 600 开始,并根据需要进行调整。
- 运行粒子分析器以分割钙波,点击 分析 > 分析颗粒。通过调整范围设定钙波的最小面积(单位为 µm2),默认范围为 0 至无穷大。对于使用 20 倍物镜获取的 MA104 细胞图像,建议将下限起始值设为 10,000 µm2,并根据实际情况进行调整。
- 勾选 显示结果 和 清除结果 复选框。在“显示”下拉菜单中选择 轮廓,然后点击 确定。此操作将生成两个输出:一个名为“结果”的窗口,列出检测到的每个钙波及其面积、平均强度、最小强度和最大强度值(基于 ΔF);另一个窗口标题为“[文件名] 的绘图”,包含一个新图像序列,显示分割钙波的轮廓。使用该图像验证钙波检测结果,必要时调整阈值和尺寸范围,并重新检查检测结果。
- 对于批量处理,使用附带的宏脚本(补充代码文件 1)。请按以下步骤操作:
- 如步骤 6.2 所述,将多点数据拆分为单个文件。打开 FIJI,选择 处理 > 批量 > 宏。在“输入”框中,填写包含拆分后多点文件的文件夹路径,“输出”框保持空白。
- 将 补充代码文件 1 中的脚本粘贴到脚本框中,并根据步骤 6.5 和 6.6 优化的参数,调整脚本中的强度阈值和尺寸阈值。
- 点击 处理。处理时间取决于多点数量和计算机处理速度,可能需要 30 分钟或更长时间。处理完成后,数据将写入桌面的一个新电子表格文件,文件名为“重命名我写入后”。输出文件应包含每个多点的钙波计数及钙波参数(面积、平均强度、最小强度、最大强度和强度密度)。
访问受限。请登录或开始试用以查看此内容。
结果
图1A 显示一个含有三维人肠类器官的BMM圆顶 已转导以稳定表达 GCaMP6s。 图1B 显示了同一列类器官在接种后24、48和72小时以单层形式重新接种的图像。为验证GCaMP6s的功能,采用荧光显微镜对单层细胞每2秒成像一次,持续4分钟,并在约20秒后向培养基中加入100 nM ADP。ADP可诱导内质网释放钙离子,从而升高胞质钙浓度。每次曝光时在488 nm通道检测到的荧光强度绘于图中 图1C迹线显示,在加入ADP后,荧光强度从稳定的基线迅速升高,随后逐渐恢复至基线水平。实验包含溶剂对照,以确认该响应为真实的信号转导事件,而非因培养基添加所引起的荧光强度非特异性变化。
对HIO单层进行划痕处理可提高轮状病毒感染效率。尽管划痕方法有多种,但如图2A所示,沿单层长度方向进行单道划痕最有利于获得稳定的感染效果。当使用表达荧光蛋白的轮状...
访问受限。请登录或开始试用以查看此内容。
讨论
胞质内 Ca2+ 水平的改变既可能是上皮组织病理变化的原因,也可能是其结果10,16,17。胞质钙离子浓度升高可直接通过激活钙依赖性氯离子通道 TMEM16A 来驱动分泌过程18,19。TMEM16A 在 Ca2+ 刺激下被激活,介导氯离子从细胞顶膜外排,形成渗透梯度,从而促进液体分泌20,21。此外,肠内分泌细胞内 Ca2+ 水平的升高可触发5-羟色胺(血清素)的释放,进而刺激传入感觉神经元,调节肠神经系统内的活动22。Ca2+ 信号还可调节紧密连接,影响上皮屏障功能
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无竞争性财务利益。
致谢
本研究工作获得了美国国立卫生研究院(NIH)资助项目R01DK115507和R01AI158683(项目负责人:J. M. Hyser)的支持。培训人员的支持来自NIH资助项目F30DK131828(项目负责人:J.T. Gebert)、F31DK132942(项目负责人:F. J. Scribano)和F32DK130288(项目负责人:K.A. Engevik)。我们感谢德克萨斯医学中心消化系统疾病类器官核心实验室提供类器官维持培养基。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 高级DMEM/F12培养基 | Gibco | 12634028 | |
| [Leu15]-胃泌素I | Sigma-Aldrich | G9145 | |
| 0.05% 胰蛋白酶EDTA | Gibco | 25300054 | |
| 0.05% 胰蛋白酶EDTA | Gibco | 25300054 | |
| 1.5 mL 微量离心管 | Fisherbrand | 5408137 | |
| 15 mL 锥形离心管 | Thermofisher Scientific | 0553859A | |
| 16% 甲醛 | Thermofisher Scientific | 28906 | |
| 1 M HEPES缓冲液 | Gibco | 15630080 | |
| 1 M HEPES缓冲液 | Gibco | 15630080 | |
| 1× PBS | Corning | 21-040-CV | |
| 25号针头 | Thermofisher Scientific | 1482113D | |
| A-83-01 | Tocris | 2939 | |
| ADP | Sigma-Aldrich | A2754 | |
| 高级DMEM/F12培养基 | Gibco | 12634028 | |
| 抗生素-抗真菌剂 | Gibco | 15240062 | |
| 抗生素-抗真菌剂 | Gibco | 15240062 | |
| B27添加剂 | Gibco | 17504-044 | |
| 牛血清白蛋白 | FisherScientific | BP1600100 | |
| CellView细胞培养板,聚苯乙烯,75/25 mm,玻璃底,10孔 | Greiner | 543979 | |
| IV型胶原蛋白 | Sigma Aldrich | C5533 | |
| DAPI | Thermofisher Scientific | D1306 | |
| EDTA | Corning | 46-034-CI | |
| 胎牛血清 | Corning | 35010CV | |
| 胎牛血清 | Corning | 35010CV | |
| Fluorobrite培养基 | Gibco | A1896701 | |
| GlutaMAX | Gibco | 35050079 | |
| GlutaMAX | Gibco | 35050079 | |
| 人表皮生长因子 | ProteinTech | HZ-1326 | |
| 慢病毒 | VectorBuilder | (variable) | |
| Matrigel基质胶 | BD Biosceicen | 356231/CB40230C | |
| N2添加剂 | Gibco | 17502-048 | |
| N-乙酰半胱氨酸 | Sigma-Aldrich | A9165-5G | |
| NH4Cl | Sigma-Aldrich | A9434 | |
| 烟酰胺 | Sigma-Aldrich | N0636 | |
| Nunc细胞培养处理24孔板 | Thermofisher Scientific | 142475 | |
| Polybrene | MilliporeSigma | TR1003G | |
| SB202190 | Sigma-Aldrich | S70767 | |
| Triton X-100 | Fisher BioReagents | BP151100 | |
| TrypLE Express酶(无酚红) | Thermofisher Scientific | 12604013 | |
| 胰蛋白酶 | Worthington Biochemical | NC9811754 | |
| Y-27632 | Tocris | 1254 |
参考文献
- Bootman, M. D., Bultynck, G. Fundamentals of cellular calcium signaling: A primer. Cold Spring Harb Perspect Biol. 12 (1), a038802(2020).
- Clapham, D. E. Calcium signaling. Cell. 131 (6), 1047-1058 (2007).
- Danese, A., et al. Cell death as a result of calcium signaling modulation: A cancer-centric prospective. Biochim Biophys Acta Mol Cell Res. 1868 (8), 119061(2021).
- Harr, M. W., Distelhorst, C. W. Apoptosis and autophagy: Decoding calcium signals that mediate life or death. Cold Spring Harb Perspect Biol. 2 (10), a005579(2010).
- Barak, P., Parekh, A. B. Signaling through Ca2+ microdomains from store-operated CRAC channels. Cold Spring Harb Perspect Biol. 12 (7), a035097(2020).
- Nakai, J., Ohkura, M., Imoto, K. A high signal-to-noise Ca(2+) probe composed of a single green fluorescent protein. Nat Biotechnol. 19 (2), 137-141 (2001).
- Erofeev, A. I., Vinokurov, E. K., Vlasova, O. L., Bezprozvanny, I. B. GCaMP, a family of single-fluorophore genetically encoded calcium indicators. J Evol Biochem Phys. 59 (4), 1195-1214 (2023).
- Suzuki, J., Kanemaru, K., Iino, M. Genetically encoded fluorescent indicators for organellar calcium imaging. Biophys J. 111 (6), 1119-1131 (2016).
- Nászai, M., Cordero, J. B. Intestinal stem cells: Got calcium. Curr Biol. 26 (3), R117-R119 (2016).
- Barrett, K. E. Calcium-mediated chloride secretion in the intestinal epithelium: Significance and regulation. Curr Top Membr. 53, 257-282 (2002).
- Xu, J., et al. Calcium-sensing receptor regulates intestinal dipeptide absorption via Ca2+ signaling and IKCa activation. Physiol Rep. 8 (1), e14337(2020).
- Clevers, H. Modeling development and disease with organoids. Cell. 165 (7), 1586-1597 (2016).
- Lin, S. C., Haga, K., Zeng, X. L., Estes, M. K. Generation of CRISPR–Cas9-mediated genetic knockout human intestinal tissue–derived enteroid lines by lentivirus transduction and single-cell cloning. Nat Protoc. 17 (4), 1004-127 (2022).
- Crawford, S. E., Ramani, S., Blutt, S. E., Estes, M. K. Organoids to dissect gastrointestinal virus-host interactions: What have we learned. Viruses. 13 (6), 999(2021).
- Lambert, T. J. FPbase: a community-editable fluorescent protein database. Nat Methods. 16 (4), 277-278 (2019).
- Lai, Y., et al. Inhibition of calcium-triggered secretion by hydrocarbon-stapled peptides. Nature. 603 (7903), 949-956 (2022).
- Chang-Graham, A. L., et al. Rotavirus induces intercellular calcium waves through ADP signaling. Science. 370 (6519), eabc3621(2020).
- Lee, B., et al. Anoctamin 1/TMEM16A controls intestinal Cl− secretion induced by carbachol and cholera toxin. Exp Mol Med. 51 (8), 1-14 (2019).
- Saha, T., et al. Intestinal TMEM16A control luminal chloride secretion in a NHERF1 dependent manner. Biochem Biophys Rep. 25, 100912(2021).
- Mroz, M. S., Keely, S. J. Epidermal growth factor chronically upregulates Ca2+-dependent Cl− conductance and TMEM16A expression in intestinal epithelial cells. J Physiol. 590 (8), 1907-1920 (2012).
- Sui, J., et al. Dual role of Ca2+-activated Cl− channel transmembrane member 16A in lipopolysaccharide-induced intestinal epithelial barrier dysfunction in vitro. Cell Death Dis. 11 (5), 404(2020).
- Bellono, N. W., et al. Enterochromaffin cells are gut chemosensors that couple to sensory neural pathways. Cell. 170 (1), 185-198.e16 (2017).
- Paradis, T., Bègue, H., Basmaciyan, L., Dalle, F., Bon, F. Tight junctions as a key for pathogens invasion in intestinal epithelial cells. Int J Mol Sci. 22 (5), 2506(2021).
- Samak, G., et al. Calcium/Ask1/MKK7/JNK2/c-Src signalling cascade mediates disruption of intestinal epithelial tight junctions by dextran sulfate sodium. Biochem J. 465 (3), 503-515 (2015).
- Deng, H., Gerencser, A. A., Jasper, H. Signal integration by Ca2+ regulates intestinal stem cell activity. Nature. 528 (7581), 212-217 (2015).
- Saurav, S., Tanwar, J., Ahuja, K., Motiani, R. K. Dysregulation of host cell calcium signaling during viral infections: Emerging paradigm with high clinical relevance. Mol Aspects Med. 81, 101004(2021).
- Chang-Graham, A. L., et al. Rotavirus calcium dysregulation manifests as dynamic calcium signaling in the cytoplasm and endoplasmic reticulum. Sci Rep. 9 (1), 10822(2019).
- Hyser, J. M., Collinson-Pautz, M. R., Utama, B., Estes, M. K. Rotavirus disrupts calcium homeostasis by NSP4 viroporin activity. mBio. 1 (5), e00265-e00310 (2010).
- Pham, T., Perry, J. L., Dosey, T. L., Delcour, A. H., Hyser, J. M. The Rotavirus NSP4 viroporin domain is a calcium-conducting ion channel. Sci Rep. 7, 43487(2017).
- Crawford, S. E., Hyser, J. M., Utama, B., Estes, M. K. Autophagy hijacked through viroporin-activated calcium/calmodulin-dependent kinase kinase-β signaling is required for rotavirus replication. Proc Natl Acad Sci U S A. 109 (50), E3405-E3413 (2012).
- Crawford, S. E., Criglar, J. M., Liu, Z., Broughman, J. R., Estes, M. K. COPII vesicle transport is required for Rotavirus NSP4 interaction with the autophagy protein LC3 II and trafficking to viroplasms. J Virol. 94 (1), e01341(2019).
- Pando, V., Iša, P., Arias, C. F., Ló Pez, S. Influence of calcium on the early steps of Rotavirus infection. Virology. 295 (1), 190-200 (2002).
- Hyser, J. M., Estes, M. K. Pathophysiological consequences of calcium-conducting viroporins. Annu Rev Virol. 2 (1), 473-496 (2015).
- Strtak, A. C., et al. Recovirus NS1-2 has viroporin activity that induces aberrant cellular calcium signaling to facilitate virus replication. mSphere. 4 (5), e00506-e00519 (2019).
- In, J. G., Foulke-Abel, J., Clarke, E., Kovbasnjuk, O. Human colonoid monolayers to study interactions between pathogens, commensals, and host intestinal epithelium. J Vis Exp. (146), 59357(2019).
- Hirota, A., AlMusawi, S., Nateri, A. S., Ordóñez-Morán, P., Imajo, M. Biomaterials for intestinal organoid technology and personalized disease modeling. Acta Biomater. 132, 272-287 (2021).
- Cevallos Porta, D., López, S., Arias, C. F., Isa, P. Polarized rotavirus entry and release from differentiated small intestinal cells. Virology. 499, 65-71 (2016).
- Mirabelli, C., et al. Human Norovirus efficiently replicates in differentiated 3D-human intestinal enteroids. J Virol. 96 (22), e0085522(2022).
- Icha, J., Weber, M., Waters, J. C., Norden, C. Phototoxicity in live fluorescence microscopy, and how to avoid it. Bioessays. 39 (8), 28749075(2017).
- Li, J., et al. Engineering of NEMO as calcium indicators with large dynamics and high sensitivity. Nat Methods. 20 (6), 918-924 (2023).
访问受限。请登录或开始试用以查看此内容。
重印与许可
