在本实验方案中,我们描述了一种可从同一只小鼠胚胎中同时获取胎儿脑组织以及高质量、无溶血血清的方法。我们已利用该技术研究母体饮食暴露如何影响杂合子Nf1(神经纤维瘤病1型)小鼠的宏量营养素谱和胎儿神经发育。
本文内容
摘要
摘要
母体饮食诱导的肥胖已被证明会改变子代的神经发育,可能导致认知能力下降、多动以及社交行为障碍。患有临床表现异质性遗传病1型神经纤维瘤病(NF1)的患者可能出现类似的缺陷,但目前尚不清楚母体饮食等环境因素是否会影响这些表型的发展,以及如果存在影响,其潜在机制是什么。为了评估母体致肥胖饮食对NF1相关神经发育系统性因素的影响,我们建立了一种方法,可同时从母鼠(分别饲喂对照饮食与高脂高糖饮食)的胎鼠中收集无溶血的血清以及完整脑组织或经显微解剖获取的特定脑区组织。脑组织可用于冰冻切片或速冻保存,以备后续进行RNA或蛋白质提取;所采集组织的质量通过免疫染色加以验证。血清质量则通过分析宏量营养素谱进行确认。利用该技术,我们发现母体致肥胖饮食在野生型和Nf1杂合子胎鼠中均显著升高了胎儿血清胆固醇水平。
引言
1型神经纤维瘤病(Neurofibromatosis Type 1, NF1)被认为是一种RAS通路病(RASopathy),这是一类由种系遗传突变引起RAS/MAPK(RAt肉瘤病毒/丝裂原活化蛋白激酶)信号通路激活的疾病。NF1 RAS通路病患者可能发生多种不同的临床表现,包括中枢神经系统(视路胶质瘤1,2、高级别胶质瘤3,4)和周围神经系统(丛状神经纤维瘤5,6、恶性周围神经鞘瘤7,8)的良性和恶性肿瘤,以及骨骼发育异常9和皮肤色素异常10(腋窝雀斑、咖啡牛奶斑)。该疾病对认知功能和神经发育的影响正日益受到关注,NF1患者出现学习障碍、多动症和自闭症谱系障碍的发生率较高11,12,13。然而,不同患者在这些表型的发展上存在显著异质性13,14,15,16,17,目前尚不清楚为何部分患者表现出明显的认知障碍,而另一些患者则不受影响。母体饮食诱导的肥胖已被证明在普通人群中同样会影响学习能力和行为表现18,19,20,21,22,23,24,25,26,27,28,提示NF1患者中母体饮食暴露的差异可能是这种临床异质性的来源之一。特别是,肥胖母亲的子女患多动症18,19,20,23,25,26、自闭症19,24,27和执行功能缺陷的风险增加21,23,且全量表智商评分较低22,28。然而,与普通人群相比,NF1患者具有不同的代谢表型,包括肥胖和糖尿病的发生率较低29,30,31,因此尚不清楚他们对饮食刺激是否会表现出类似的反应。
为了解决这些问题,我们希望确定在具有Nf1基因的胎儿后代中,由促肥胖饮食引起的宏量营养素谱改变是否会导致神经发育变化。我们此前已从胎鼠脑组织中成功获取了高质量的全脑及区域显微解剖组织,适用于神经发育相关研究32。然而,由于胎鼠体型小、血容量低,采集胎儿血液具有较大挑战性33。通过断头后重力引流的方式采血,在我们的样本中导致采集血量偏低且溶血严重,这可能影响后续实验结果的解读。既往报道的从胎儿心脏或胸腔血管穿刺抽吸采血的方法33,技术操作难度高,且同样频繁出现溶血现象。因此,我们建立了一种胎儿血清采集方法,该方法采用特制的毛细采血管,可在避免显著剪切应力的情况下实现较高体积的血液采集。
此处,我们介绍一种可同时采集胚胎脑组织和胎鼠血清的方法 Nf1- 暴露于高脂高糖饮食与对照饮食的杂合子幼崽 在子宫内 (图 1 和 补充表 S1)。脑组织经冷冻包埋,用于后续免疫荧光分析,或进行区域性显微解剖后速冻,以用于后续分子生物学实验。获得高质量血清,适用于宏量营养素谱分析等下游应用。利用该方法,我们发现母体高脂高蔗糖饮食暴露可导致野生型(WT)和 Nf1-杂合子幼崽。
方案
本研究中的所有动物实验均遵循美国国立卫生研究院(NIH)指南,并经圣路易斯华盛顿大学机构动物护理和使用委员会批准。动物饲养环境采用标准的12小时光照:12小时黑暗循环,自由获取食物和饮水。
1. 母体饮食
- 在4周龄时,将雌性小鼠置于对照饲料(CD)或致肥饮食(Ob)中饲养。
- 在8至12周龄时,通过每天清晨观察雌鼠阴道栓情况来安排定时交配,以确定准确的取材时间。为验证饮食诱导的肥胖,在交配时称量雌鼠体重。
注意:采用8至12周龄范围进行初次交配设置,是为了确保摄取致肥饮食的雌鼠相比对照组出现超重,而这一差异在8周龄时并不总能达成。发现阴道栓当日记为胚胎第1天(E1),本研究中所有动物均在E19时采集。选择晚期胎儿阶段是由于既往研究已观察到,暴露于致肥饮食的动物在此时期存在神经发育变化(数据未显示)。
2. 胎儿 从母鼠中取出
- 首先,确认母鼠处于妊娠状态(通过腹部形态和饱满度、腹部触诊或胎动判断)。如有疑问,可再次称量雌鼠体重以评估体重增加情况。
注意:妊娠晚期的小鼠体重应至少增加 3–4 g。为提高在目标时间段内成功受孕的几率,可在交配前 3 天每天将雄鼠笼内的脏锯末(含尿液和信息素)添加至雌鼠笼中,以诱导发情34。 - 将母鼠放入麻醉室,室内放置浸有 3 mL 异氟烷的纸巾,注意避免母鼠与浸有麻醉剂的纸巾直接接触。待动物镇静后,将其置于纸巾上,抓住其尾部,将解剖剪置于颈部,用力向上朝头部方向剪断颈椎,实施颈椎脱位处死。或者,在异氟烷镇静后实施断头处死。
注意:此步骤可从母鼠采集血清,方法与下文所述类似,但需使用较大的毛细管。如需采集血清,应选择断头法而非颈椎脱位法。需注意确保在处死前使用异氟烷不会改变目标表型。 - 将母鼠仰卧置于 100 mm 培养皿中。捏起覆盖腹部的皮肤,用解剖剪沿中线做一纵行切口,再做数条与中线切口垂直的附加切口,形成皮瓣,以暴露含有胚胎的子宫。
- 将子宫从腹腔中拉出。用剪刀将子宫与母体分离。将完整胚胎囊("串珠状结构")连同胚胎一起放入盛有冷灭菌 1× 磷酸盐缓冲液(PBS)的培养皿中。将装有胎鼠的培养皿置于冰上。
注意:由于每窝通常包含 6–10 只需采集脑组织和血清的仔鼠,因此需将胎鼠置于冰上以防止组织降解。将仔鼠置于冰上还可确保其充分处死,因为仅靠母鼠处死可能不足以完全终止仔鼠生命。若仅需采集血清,则可在室温下进行采集。
3. 胎儿血清采集
- 使用#5镊子小心解剖,将胚胎从胎膜中取出。用弯头镊子将胚胎转移至培养皿中,并加入新鲜的冷灭菌1×PBS。
- 将动物标本在纸巾上轻轻吸干,以去除残留的羊水和PBS。
- 用手握住动物腹部。使用显微剪在颈部腹侧做切口,进行部分断头处理,确保血管被切断,但连接头部的皮肤仍保持相连。
注意:头部必须保持连接,以便能同时从身体和头部收集血液。 - 将身体以45°角持握,切口朝下。将50 µL微量采血管(毛细管)平行置于母体切口处血滴形成的位置,小心让50 µL毛细管自然充满血液。
注意:可使用两根毛细管或100 µL毛细管,最多可收集约75 µL血液。 - 将头部放入盛有冷灭菌1×PBS的新鲜60 mm培养皿中,用于后续组织采集(第4节)。
- 当血液进入毛细管后,迅速将活塞推入1.5 mL离心管中。轻弹管壁或短暂离心,确保血液沉至管底。
- 对同窝其余胚胎重复上述操作。
注意:保持幼崽处于冰上并快速操作至关重要,以减少死后凝血的风险,避免影响采集量。 - 在室温下使血液凝固30分钟。
- 在4 °C条件下,以16,000 × g 离心20分钟。
- 使用200 µL移液器将血清转移至新的500 µL离心管中,注意不要扰动管底的血细胞沉淀。
注意:血清应呈淡黄色,无红色碎片。每个胚胎可获得15–30 µL血清。 - 将收集的血清在-80 °C条件下保存。
4. 胎儿 脑组织采集
- 通过解剖显微镜观察,用弯头镊夹住吻部,并使用#5镊子小心地从颅骨帽上剥离皮肤,保留其在吻部的连接以便于持握。将#5镊子与颅骨呈45°角,小心刺穿作为发育中颅骨的透明膜,然后将镊子转向与颅骨平行,插入颅骨帽下方,夹紧并向一侧剥离。一侧去除后,用#5镊子夹住剩余部分,向另一侧剥离。
- 用微型勺子轻轻将脑组织从颅骨中取出,并转移至一个含有冷1×PBS的新鲜60 mm培养皿中。
注意:此时可对完整脑组织进行固定和包埋,用于免疫染色。参见先前发表的方法32。 - 若组织需用于其他分子实验而必须速冻,请进一步分离目标区域。以下描述的是围绕侧脑室、第三脑室和第四脑室的室管膜周围组织的分离方法。
- 用弯头镊以非优势手持住脑组织的后脑与前脑交界处。优势手持手术刀,使刀刃与脑表面平行,在皮层中部区域用力下压(图1)。
- 继续保持对后脑的夹持,在后脑前方做第二个切口,将其与前脑分离(图1)。在最前端部分,寻找位于水平面内的两个小的半圆形空腔,即为侧脑室。将弯头镊置于每个脑室中心以固定脑组织,用#5镊子小心剥离其内衬组织,然后转移至一个新的洁净1.5 mL离心管中。
- 在中间部分,于腹侧表面寻找一条细小的线状空隙,即为第三脑室。使用#5镊子小心夹除脑室表面两侧的内衬组织,然后转移至一个新的洁净1.5 mL离心管中。
- 在最后端部分,于后脑中央寻找一条细小的线状空隙,即为第四脑室。用#5镊子从两侧剥离其内衬组织,然后转移至一个新的洁净1.5 mL离心管中。
注意:若后脑切面不整齐,第四脑室组织可能被遮挡和/或破坏。 - 对于步骤4.3.2–4.3.4,在组织放入离心管后,立即迅速将管子放入装有液氮的耐冻容器中。
注意:样品可在液氮中保存,直至其余样本完成解剖。警告:液氮可导致严重冻伤。切勿将手直接伸入液氮,避免溅洒。 - 将冷冻的管子置于干冰上,并将冷冻组织转移至–80 °C冰箱中保存备用。
结果
为展示通过该技术获取的脑组织质量,我们展示了来自 Nestin-CFPnuc 小鼠的胎儿脑组织样本35,按照先前报道的技术对GFAP进行免疫染色32. 巢蛋白+ 细胞排列于侧脑室壁上(图 2A),与GFAP+ 从表面延伸出的丝状结构。在野生型(WT)或Ob暴露小鼠的侧脑室中,我们未观察到CD小鼠的Nestin或GFAP表达存在差异。 Nf1-杂合品系(图2A,B)。接下来,我们评估了显微切割组织的质量。首先进行了蛋白质印迹实验36 针对从对照组(CD)与肥胖暴露(Ob-exposed)小鼠侧脑室分离的显微切割组织中检测管家蛋白 β-actin。所有样本均显示出强烈的 β-actin 表达(图 2C),符合预期。随后,我们根据先前报道的方法从显微切割的组织中分离RNA32分离得到的RNA纯度高(260/280 ≥ 2)且完整性好(RIN值 ≥ 9),表明RNA纯度高且未发生降解图 2D).
随后,我们比较了不同的血清分离方法。使用我们的微量采血管法,通常能够收集到较大量且未发生溶血的血清,而重力引流法和胸腔穿刺法则导致收集的血清体积波动较大,且许多样本出现溶血现象(图3A、B)。为了说明该技术所获得血清的质量,我们根据试剂生产商的说明,使用总胆固醇试剂检测了血清总胆固醇水平。基于既往对人类胎儿的研究,胎鼠的胆固醇水平处于妊娠晚期幼鼠的预期范围内37。与对照饮食(CD)暴露组相比,肥胖饮食(Ob)暴露组的野生型幼鼠(图3C,左)和Nf1杂合子幼鼠(图3C,右)胆固醇水平均升高。需要注意的是,右图展示了两种不同携带患者来源种系突变(R681X、C383X)的Nf1杂合子品系的合并数据,因这两个品系表现出相似的特征32,38,39。
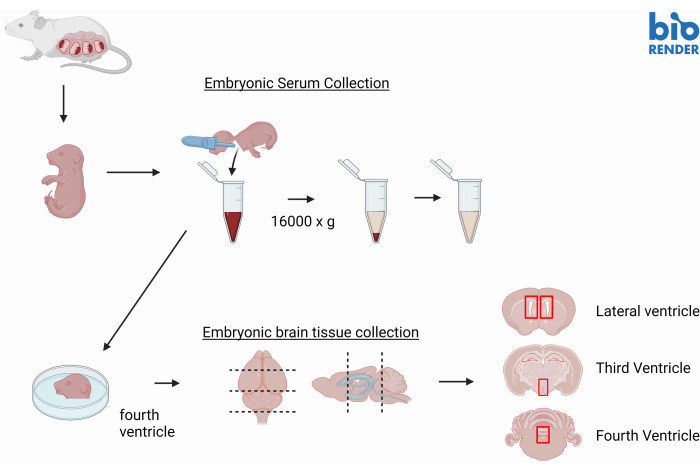
图1:实验流程的图示摘要。首先从怀孕母鼠中分离出仔鼠,随后采集仔鼠的血清。最后,从仔鼠中分离完整脑组织,如有需要,可进一步显微解剖以获取特定脑区。图示由 BioRender.com 制作。请点击此处查看该图的放大版本。
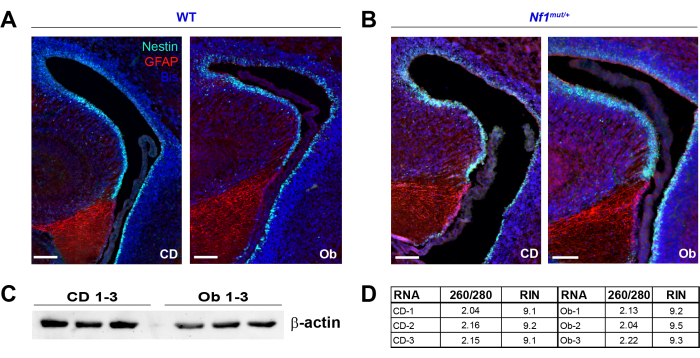
图 2:代表性结果,脑组织。(A)采用本方法获取表达由 Nestin 启动子驱动的核定位青色荧光蛋白的 Nestin-CFPnuc 小鼠的冷冻切片脑组织,并按照先前报道的方法32进行 GFAP(红色)免疫染色。Nestin 阳性细胞通过内源性 Nestin-CFPnuc 表达(绿色)可视化。细胞核用双苯并咪唑复染(蓝色)。CD 与 Ob 暴露的野生型脑组织之间无显著差异。比例尺 = 100 µm。(B)对 Nestin-CFPnuc; Nf1mut/+ 幼鼠进行类似评估。GFAP 与 Nestin-CFP 的分布与野生型相似,且不随饮食条件变化。比例尺 = 100 µm。(C)从侧脑室(LV)显微解剖组织中分离蛋白。按照先前报道的方法36进行 Western 印迹分析,每泳道上样 20 µg 蛋白。所有样本均可检测到强烈的 β-actin 表达。(D)按照先前报道的方法32从显微解剖组织中提取 RNA。通过 260/280 比值和 RIN 值评估 RNA 质量。所有样本均表现出优异的 260/280 比值(≥2)和 RIN 值(≥9),表明成功分离出未降解的高质量 RNA。缩写:CFP = cyan fluorescent protein;GFAP = glial fibrillary acidic protein;WT = wild-type;LV = lateral ventricle;RIN = RNA integrity number。请点击此处查看该图的放大版本。
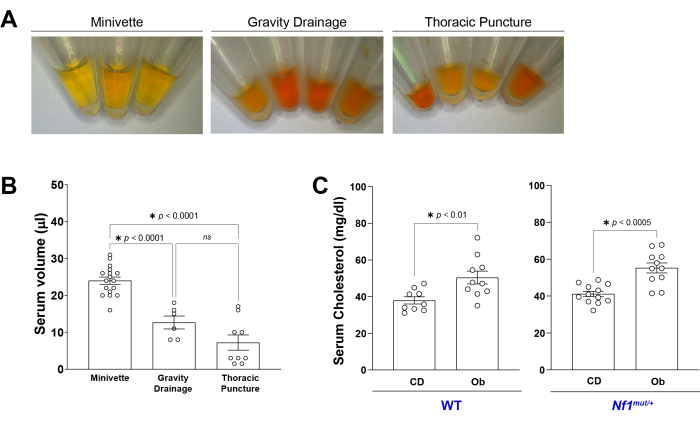
图 3:代表性结果与血清分析。(A)采用上述各种方法采集血清。与重力引流法和胸腔穿刺法相比,使用微量采血管可常规获得未溶血的血清。(B)显示典型的血清采集体积。微量采血管采集可更稳定地获得较大体积的血清。统计学显著性通过单因素方差分析(one-way ANOVA)结合多重比较确定。误差线:标准误(SEM)。(C)检测了对照饮食组(CD)与肥胖诱导饮食组(Ob)暴露的野生型(WT)(左)和Nf1杂合子(右) pooled 胎儿血清中的总血清胆固醇;在两种基因型中,Ob暴露动物均表现出更高的血清胆固醇水平。统计学显著性通过t检验确定。误差线:SEM。缩写:WT = 野生型;CD = 对照饮食;Ob = 肥胖诱导饮食。请点击此处查看该图的放大版本。
补充表 S1:饮食成分。 本文所使用的对照饮食和致肥胖饮食的成分为所示。注意:为了更有效地控制 D12331 中各饮食成分,建议选用低脂、无蔗糖的 D12328 饮食(researchdiets.com)。请点击此处下载该文件。
讨论
小鼠采血的传统方法包括眼球后静脉、尾静脉、隐静脉、面静脉和颈静脉放血40,41,42。然而,由于胚胎个体体积小且血管细弱,这些方法并不适用于胚胎期血液采集。通过断头后重力引流的方式采集血液,在我们的样本中导致采集量低且溶血严重。先前有文献报道,使用改良的20 G针头从胸腔血管引流血液可提高采血量33;但我们发现该技术操作难度较高,且溶血率高,因此不适用于多种后续实验应用。我们的方法通过被动血流采集,降低了因负压抽吸引起的剪切应力所导致的溶血风险。毛细管上的推杆还可快速高效地将血液转移至收集管中,最大限度减少血液与空气接触,限制血凝块的破碎。重要的是,同一动物在采血后还可用于获取完整脑组织或经显微解剖分离的特定脑区组织,从而减少实验所需动物总数。
该方案在实施过程中需要进行若干调整,以优化样本采集的质量和效率。在采集血清时,采血前应轻柔地去除胚胎液体和多余的PBS,因为过量液体可能导致动物体表湿滑,增加体位不佳或不稳定的概率,从而对采血质量产生不利影响。此外,在握持胚胎时手指的位置至关重要,若手指紧邻毛细管,则采血过程中血液可能黏附于戴着手套的手指上。同时,应将毛细管开口置于流动血液的旁边,而非浸入血液中;若毛细管被浸入血液,毛细作用采集过程将受到干扰。最后,必须仔细考虑后续应用需求,以优化血清采集方案。例如,葡萄糖在室温下未经处理的试管中会随时间推移而降解,因此为准确测定葡萄糖水平,可能需要将其采集至含氟化钠或EDTA的试管中43,44。
在采集脑组织时,仔细去除头部两侧的皮肤和透明颅骨对于获得完整的组织提取至关重要。如果仅解剖一侧,尝试取出脑组织时可能会因粘连于颅骨而导致组织撕裂或变形。在对脑组织进行切片时,应通过单次、清晰的切口将前脑与中脑皮层分离,并将中脑皮层与后脑分离。多次切割可能破坏组织的结构完整性,或干扰后续显微解剖的参考定位。最后,样本在固定或速冻前必须始终保持在冰上,以防止样本降解。
尽管我们倾向于使用该方法,因为它能常规收集到高容量且未溶血的血清,但该方法也存在不足之处。虽然与其他技术相比,溶血情况有所减少,但该方法并不能完全消除溶血风险。此外,一旦血液停止流动,毛细管可能被血凝块堵塞,因此在断头后必须迅速操作,以降低因凝血导致采样失败的风险。将样本置于冰上保存(本方案中用于维持样本完整性)可能对某些表型产生不利影响,因此并不适用于所有实验应用。
综上所述,该方法可用于从同一个胎儿中同时分离血清以及完整或区域显微切割的脑组织。该技术可用于研究全身性因素(如由母体饮食引起的宏量营养素谱改变)如何影响神经纤维瘤病1型(NF1)或其他疾病中的神经发育。
披露
作者不存在任何利益冲突。
致谢
N Brossier 获得了由神经纤维瘤病治疗加速计划(NTAP,资助号 #210112)资助的 Francis S. Collins 神经纤维瘤病临床与转化研究学者项目的支持。本出版物部分得到了约翰斯·霍普金斯大学医学院 NTAP 的资助。其内容完全由作者负责,不一定代表约翰斯·霍普金斯大学医学院的官方观点。额外资助来自圣路易斯儿童医院(FDN-2022-1082 至 NMB)以及圣路易斯华盛顿大学糖尿病研究核心(NIH P30 DK020579)。显微成像通过华盛顿大学细胞成像中心(WUCCI)完成,该中心得到了华盛顿大学医学院、华盛顿大学儿童发现研究所和圣路易斯儿童医院(CDI-CORE-2015-505 和 CDI-CORE-2019-813)以及巴恩斯-犹太医院基金会(3770 和 4642)的支持。Nestin-CFPnuc35 小鼠由 Grigori Enikolopov(纽约州立大学石溪分校文艺复兴医学院)慷慨提供,携带 R681X 或 C383X 生殖系突变的 Nf1 杂合小鼠32,38,39 由 David Gutmann(密苏里州圣路易斯华盛顿大学医学院)慷慨提供。图 1 使用 BioRender.com 制作。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| #5/45 镊子 | Dumont | 11251-35 | 尖端形状:45° 角度 |
| 4200 Tapestation | Agilent | G2991BA | 检测 RNA 完整性与质量,测定 RIN 值 |
| 台式液氮容器 | Thermo Fisher | 2122 | 或其他耐低温容器 |
| 对照饲料 | PicoLab | 5053 | 也可使用 Research diets D12328(低脂、低糖)饲料。 |
| 弯头镊子 | Cole Parmer | UX-10818-25 | 尖端形状:90° 弯曲 |
| 解剖刀柄 | Cole-Parmer Essentials | 10822-20 | SS Siegel 型,适配 #10 至 #15 刀片 |
| EMS SuperCut 解剖剪 | Electron microscope sciences | 72996-01 | 5½" (139.7 mm),直刃 |
| GFAP 抗体 | Abcam | ab7260 | 稀释比例 1:350。使用含 0.3 M 甘氨酸的 10% 血清进行封闭。 |
| 玻璃钒碳钢外科刀片,11 号 | MYCO medical | 2001T-11 | 11 号刀片可实现平直切口 |
| 微型实验勺 | Az Scilab | A2Z-VL001 | 不锈钢材质,可高压灭菌 |
| 微型剪刀 | Rubis | 78180-1C3 | 型号 1C300 |
| Minivette POCT 中性管 | Sarstedt | 17.2111.050 | 标称体积:50 µL,无需预处理 |
| Nanorop | Thermo Fisher | 13-400-519 | 测定 RNA 浓度及 260/280 比值 |
| 致肥胖饮食 | Researchdiets.com | D12331 | 高脂、高蔗糖 |
| 总胆固醇试剂 | Thermo Fisher | TR13421 | 比色法检测 |
| β-actin 抗体 | Cell Signaling | 8457 | 稀释比例 1:1,000。 |
参考文献
- Listernick, R., Darling, C., Greenwald, M., Strauss, L., Charrow, J. Optic pathway tumors in children: the effect of neurofibromatosis type 1 on clinical manifestations and natural history. J Pediatr. 127 (5), 718-722 (1995).
- Fisher, M. J., et al. Integrated molecular and clinical analysis of low-grade gliomas in children with neurofibromatosis type 1 (NF1). Acta Neuropathol. 141 (4), 605-617 (2021).
- Cimino, P. J., et al. Expanded analysis of high-grade astrocytoma with piloid features identifies an epigenetically and clinically distinct subtype associated with neurofibromatosis type 1. Acta Neuropathol. 145 (1), 71-82 (2023).
- Lucas, C. -H. G., et al. Multiplatform molecular analyses refine classification of gliomas arising in patients with neurofibromatosis type 1. Acta Neuropathol. 144 (4), 747-765 (2022).
- Fisher, M. J., et al. Management of neurofibromatosis type 1-associated plexiform neurofibromas. Neuro-Oncol. 24 (11), 1827-1844 (2022).
- Packer, R. J., et al. Plexiform neurofibromas in NF1. Neurology. 58 (10), 1461-1470 (2002).
- Evans, D. G. R., et al. Malignant peripheral nerve sheath tumours in neurofibromatosis 1. J Med Genet. 39 (5), 311(2002).
- Prudner, B. C., Ball, T., Rathore, R., Hirbe, A. C. Diagnosis and management of malignant peripheral nerve sheath tumors: Current practice and future perspectives. Neurooncol Adv. 2, Suppl 1 i40-i49 (2020).
- Ma, Y., et al. A molecular basis for neurofibroma-associated skeletal manifestations in NF1. Genet Med. 22 (11), 1786-1793 (2020).
- Ozarslan, B., Russo, T., Argenziano, G., Santoro, C., Piccolo, V. Cutaneous findings in neurofibromatosis Type 1. Cancers. 13 (3), 463(2021).
- Hyman, S. L., Shores, A., North, K. N. The nature and frequency of cognitive deficits in children with neurofibromatosis type 1. Neurology. 65 (7), 1037-1044 (2005).
- Morris, S. M., et al. Disease burden and symptom structure of autism in neurofibromatosis type 1: a study of the International NF1-ASD Consortium Team (INFACT). JAMA Psychiatry. 73 (12), 1276-1284 (2016).
- Geoffray, M. -M., et al. Predictors of cognitive, behavioural and academic difficulties in NF1. J Psychiatr Res. 140, 545-550 (2021).
- Monroe, C. L., Dahiya, S., Gutmann, D. H. Dissecting clinical heterogeneity in neurofibromatosis type 1. Ann Rev Pathol. 12 (1), 53-74 (2017).
- Kehrer-Sawatzki, H., Mautner, V. -F., Cooper, D. N. Emerging genotype-phenotype relationships in patients with large NF1 deletions. Hum Genet. 136 (4), 349-376 (2017).
- Hou, Y., et al. Predictors of cognitive development in children with neurofibromatosis type 1 and plexiform neurofibromas. Dev Med Child Neurol. 62 (8), 977-984 (2020).
- Biotteau, M., et al. Sporadic and familial variants in NF1: an explanation of the wide variability in neurocognitive phenotype. Front Neurol. 11, 368(2020).
- Rodriguez, A., et al. Maternal adiposity prior to pregnancy is associated with ADHD symptoms in offspring: evidence from three prospective pregnancy cohorts. Int J Obes (Lond). 32 (3), 550-557 (2008).
- Andersen, C. H., Thomsen, P. H., Nohr, E. A., Lemcke, S. Maternal body mass index before pregnancy as a risk factor for ADHD and autism in children). Eur Child Adolesc Psychiatry. 27 (2), 139-148 (2018).
- Pugh, S. J., et al. Gestational weight gain, prepregnancy body mass index and offspring attention-deficit hyperactivity disorder symptoms and behaviour at age 10. Bjog. 123 (13), 2094-2103 (2016).
- Mina, T. H., et al. Prenatal exposure to maternal very severe obesity is associated with impaired neurodevelopment and executive functioning in children. Pediatr Res. 82 (1), 47-54 (2017).
- Oken, E., et al. Analysis of maternal prenatal weight and offspring cognition and behavior: Results from the Promotion of Breastfeeding Intervention Trial (PROBIT) Cohort. JAMA Netw Open. 4 (8), e2121429-e2121429 (2021).
- Buss, C., et al. Impaired executive function mediates the association between maternal pre-pregnancy body mass index and child ADHD symptoms. PLOS ONE. 7 (6), e37758(2012).
- Li, Y. -M., et al. Association between maternal obesity and autism spectrum disorder in offspring: a meta-analysis. J Autism Dev Disord. 46 (1), 95-102 (2016).
- Dow, C., Galera, C., Charles, M. -A., Heude, B. Maternal pre-pregnancy BMI and offspring hyperactivity-inattention trajectories from 3 to 8 years in the EDEN birth cohort study. Eur Child Adolesc Psychiatry. 32 (10), 2057-2065 (2023).
- Fast, K., et al. Prevalence of attention-deficit/hyperactivity disorder and autism in 12-year-old children: A population-based cohort. Devl Med Child Neurol. 66 (4), 493-500 (2023).
- Carter, S. A., et al. Maternal obesity and diabetes during pregnancy and early autism screening score at well-child visits in standard clinical practice. Autism. 28 (4), 975-984 (2023).
- West, Z., et al. Relationships between maternal body mass index and child cognitive outcomes at 3 years of age are buffered by specific early environments in a prospective Canadian birth cohort. J Dev Orig Health Dis. 14 (1), 42-52 (2023).
- Gutmann, D. H., et al. Neurofibromatosis type 1. Nat Rev Dis Primers. 3, 17004(2017).
- Martins, A. S., et al. Lower fasting blood glucose in neurofibromatosis type 1. Endocr Connect. 5 (1), 28-33 (2016).
- Martins, A. S., et al. Increased insulin sensitivity in individuals with neurofibromatosis type 1. Arch Endocrinol Metab. 62 (1), 41-46 (2018).
- Brossier, N. M., Thondapu, S., Cobb, O. M., Dahiya, S., Gutmann, D. H. Temporal, spatial, and genetic constraints contribute to the patterning and penetrance of murine Neurofibromatosis-1 optic glioma. Neuro Oncol. 23 (4), 625-637 (2020).
- de Lurdes Pinto, M., et al. Technical Report: Mouse fetal blood collection taking the best out of the old needle-syringe method. Scandinavian Journal of Laboratory Animal Science. 35 (1), 5(2008).
- Musillo, C., et al. Bdnf-Nrf-2 crosstalk and emotional behavior are disrupted in a sex-dependent fashion in adolescent mice exposed to maternal stress or maternal obesity. Transl Psychiatry. 13 (1), 399(2023).
- Encinas, J. M., Vaahtokari, A., Enikolopov, G. Fluoxetine targets early progenitor cells in the adult brain. Proc Natl Acad Sci U S A. 103 (21), 8233-8238 (2006).
- Anastasaki, C., et al. Human induced pluripotent stem cell engineering establishes a humanized mouse platform for pediatric low-grade glioma modeling. Acta Neuropathol Commun. 10 (1), 120(2022).
- Cai, H. -J., Xie, C. -L., Chen, Q., Chen, X. -Y., Chen, Y. -H. The relationship between hepatic low-density lipoprotein receptor activity and serum cholesterol level in the human fetus. Hepatology. 13 (5), 852-857 (1991).
- Toonen, J. A., et al. NF1 germline mutation differentially dictates optic glioma formation and growth in neurofibromatosis-1. Hum Mol Genet. 25 (9), 1703-1713 (2016).
- Guo, X., Pan, Y., Gutmann, D. H. Genetic and genomic alterations differentially dictate low-grade glioma growth through cancer stem cell-specific chemokine recruitment of T cells and microglia. Neuro Oncol. 21 (10), 1250-1262 (2019).
- Parasuraman, S., Raveendran, R., Kesavan, R. Blood sample collection in small laboratory animals. J Pharmacol Pharmacother. 1 (2), 87-93 (2010).
- Meyer, N., et al. Impact of three commonly used blood sampling techniques on the welfare of laboratory mice: Taking the animal's perspective. PLOS ONE. 15 (9), e0238895(2020).
- Diehl, K. H., et al. A good practice guide to the administration of substances and removal of blood, including routes and volumes. J Appl Toxicol. 21 (1), 15-23 (2001).
- Jung, J., Garnett, E., Rector, K., Jariwala, P., Devaraj, S. Effect of collection tube type on glucose stability in whole blood. Ann Clin Lab Sci. 50 (4), 557-559 (2020).
- Bonetti, G., et al. Which sample tube should be used for routine glucose determination. Prim Care Diabetes. 10 (3), 227-232 (2016).
重印与许可
