本方案描述了用于构建合成细胞的无细胞蛋白质合成(CFPS)系统。该方案概述了在不同微区室中的关键步骤及代表性结果,旨在为合成细胞研究领域的各类实验室建立最佳实践,推动合成细胞研发的进展。
本文内容
摘要
摘要
无细胞蛋白合成(CFPS)系统已被广泛用于促进合成细胞的自下而上组装。该系统作为中心法则核心分子机制的载体,是整合与构建多种人工细胞模拟系统理想的底盘平台。尽管CFPS系统在合成细胞构建中应用频繁,但针对特定应用建立定制化且稳健的CFPS系统仍是一项具有挑战性的任务。在本方法学论文中,我们提供了一套全面的CFPS系统操作流程,该流程常规用于合成细胞的构建。本方案涵盖了CFPS系统制备的关键步骤,包括细胞提取物制备、模板准备,以及利用荧光报告蛋白进行常规表达优化。此外,我们展示了将CFPS系统封装于多种微区室中的代表性结果,例如单层液滴、双重乳化囊泡,以及支撑脂双层表面的微腔室。最后,我们阐明了在不同环境中成功组装这些CFPS系统所必需的关键步骤与条件。我们期望本方法能够促进不断扩大的合成细胞研究领域内各实验室建立良好的工作规范,从而加快合成细胞发展的研究进程。
引言
合成细胞或人工细胞的构建已成为一个高度突出的跨学科研究领域,吸引了来自合成生物学、化学和生物物理学领域的科学家们的广泛关注。这些科学家共同致力于构建一种最简生命细胞1,2,3。该领域的快速发展伴随着关键技术的重大进步,例如重组DNA操作技术4、仿生材料5以及用于区室化的微加工技术6,其中包括无细胞蛋白合成(CFPS)方法7。CFPS系统包含了转录和翻译所需的基本细胞机制,为多功能人工细胞的开发与集成提供了基础框架。
尽管无细胞蛋白表达(CFPS)技术常被用于合成细胞的构建,但开发一种稳定且定制化的CFPS系统以组装多种合成细胞体系仍是一项复杂的挑战。目前已有多种CFPS系统可供使用,这些系统来源于原核和真核模式生物8,各自针对合成细胞合成中的特定应用进行了专门优化。除了在转录和翻译中的核心作用外,CFPS系统在其主要组分及相关制备流程上也存在差异。这些差异包括细胞提取物、RNA聚合酶、模板制备方法以及缓冲液组成的不同,主要源于各研究团队为实现蛋白质产量最大化而采取的不同开发路径。
在无细胞蛋白表达系统(CFPS)的各个组分中,细胞提取物是转录和翻译所需的关键酶源,因而也是决定CFPS性能的关键因素9. 大肠杆菌 (E. coli)-基于大肠杆菌的CFPS系统因其作为最被深入理解的原核生物而成为最常用的体系。此外,一种完全重建的CFPS系统,由分别纯化的蛋白质和核糖体组成,称为PURE10,已由上田研究组开发,特别适用于需要清晰背景的应用。如今,甚至 E. coli基于细胞的无细胞蛋白合成系统已日趋多样化,尤其是在提取这些系统的菌株来源方面11 和制备方法12,13RNA聚合酶14,15能源16,17和缓冲系统18,19最常用的菌株包括K12和B株的衍生菌株,例如A1920JM10921,BL21(DE3)22,以及 Rossetta223,以及它们的基因改造对应物。
最初,选择RNase和蛋白酶活性降低的E. coli菌株,以增强mRNA的稳定性以及新合成重组蛋白的稳定性,从而提高最终的蛋白产量24。随后,开发了可实现特定翻译后修饰的E. coli提取物,包括糖基化25、磷酸化26和脂化修饰27,以实现上述翻译后修饰。此外,已加入多种添加剂,如分子伴侣28和化学稳定剂,以促进目标蛋白的正确折叠,推动了无细胞蛋白合成(CFPS)系统的多样化发展。转录过程主要采用具有高持续合成能力的噬菌体T7 RNA聚合酶,尽管SP629等其他聚合酶也已被使用。E. coli内源性RNA聚合酶已被改造,用于基于σ因子的遗传回路原型设计30。最后,多种能量前体31,32,33以及不同的盐类和缓冲液组分19,34,35已得到系统优化,以提高生产效率。
除了无细胞蛋白表达系统(CFPS)本身之外,封装方法以及区室化材料对于成功构建合成细胞也至关重要。目前已开发出多种能够成功包封CFPS反应体系的系统,包括表面活性剂稳定的水/油液滴、脂质/聚合物及其杂合的单层囊泡(直径范围从50 nm到数个μm),以及平面支撑的脂双层。然而,由于CFPS系统含有复杂的分子成分,其封装成功率取决于具体情形,尤其是囊泡的形成。为了提高CFPS封装的成功率和效率,已开发出多种微流控芯片以促进液滴和囊泡的形成36。尽管如此,仍需建立额外的芯片和装置。
本方案详细阐述了一种 E. coli 利用BL21(DE3)菌株的无细胞蛋白表达系统,该菌株是重组蛋白生产中常用的宿主。本方案详细阐述了细胞提取物制备、模板制备以及利用荧光报告蛋白进行标准表达优化的步骤。此外,我们展示了将该无细胞蛋白表达系统封装于多种微区室中所获得的代表性结果,包括单层液滴、双乳液囊泡以及位于支撑脂双层上的微腔室。最后,我们深入探讨了在不同环境条件下成功构建这些无细胞蛋白表达系统所必需的关键操作步骤和必要条件。
方案
1. 提取物制备
- 从甘油菌种中将 E. coli BL21 (DE3) 菌株划线接种至LB(Luria Bertani)琼脂平板,于37 °C 培养至少15小时。
- 从新鲜制备的LB平板上挑取单菌落,接种至装有50 mL LB培养基的三角瓶中,制备过夜预培养物。
- 将5 mL预培养物接种至装有500 mL 2xYTPG培养基的3 L挡板三角瓶中,在37 °C下剧烈振荡培养(转速介于220 rpm至250 rpm之间),当菌液达到对数中期(OD600 ~ 3)时收获菌体。随后将菌液置于冰水混合物中冷却10分钟,于4 °C下以8,000 × g离心15分钟。
注:在此步骤中,根据特定应用需求,2xYTPG培养基中的葡萄糖可省略9,12。 - 将所得菌体沉淀用35 mL预冷的S30缓冲液A重悬,随后于4 °C下以8,000 × g离心15分钟,弃去上清液。
- 重复步骤1.4两次。
注:若不立即使用,菌体沉淀可在-80 °C下保存。 - 将最终菌体沉淀用S30缓冲液B重悬(例如,每1 g菌体沉淀使用1.1 mL S30缓冲液B),并通过French Press在17,000 psi压力下进行一次细胞破碎。
- 使用French Press时,请参照用户手册,将细胞悬液转移至金属破碎室,确保所有组件已正确组装,且破碎室底部阀门处于关闭状态。
- 将组装好的破碎室置于液压平台上,并锁紧安全装置。
- 开启液压泵,开始破碎过程。
- 调节出口阀门,使细胞悬液通过出口管逐滴流入新的50 mL离心管中。调节流速以确保高效破碎,理想情况下为逐滴流出。保持压力高于15,000 psi的下限值。
- 将所得裂解液于4 °C下以30,000 × g离心30分钟,收集上清液。重复离心一次,再次收集上清液。向收集的上清液中加入0.3倍体积的预孵育缓冲液,并在37 °C下轻柔振荡孵育80分钟。
注:尽管已有报道表明,不加预孵育缓冲液的“空孵育”步骤也可提高效率37,38,但使用预孵育缓冲液通常可提高最终产率,具体效果取决于相应的菌株来源。 - 将所得孵育混合物在4 °C下用2 L S30缓冲液C透析2小时,更换一次透析液(2 L新鲜S30缓冲液C),继续透析过夜39。
注:过夜透析的第二步可缩短至约3小时。 - 收集透析后的样品,于4 °C下以30,000 × g离心30分钟,收集上清液,分装至适当体积后立即在液氮中速冻。
注:冷冻样品可在-80 °C下保存至少6个月至1年,且不会显著损失活性。
2. T7 RNA 聚合酶
- 将 pAR1219 质粒转化至 BL21(DE3) star E. coli 感受态细胞中40。
- 将 10 mL 过夜培养物接种至 1 L LB 培养基(含 100 µg/mL 氨苄青霉素)中,于 37 °C 培养至 OD600 达到 0.6–0.8。
- 加入终浓度为 1 mM 的 IPTG 开始诱导,继续诱导 5 小时,随后在 4 °C 下以 8,000 × g 离心 15 分钟收集菌体。细胞沉淀可于 -80 °C 保存数周。
- 用 30 mL T7 缓冲液 A 重悬细胞沉淀,并通过法国压菌器在 15,000 psi 条件下压碎细胞一次。在 4 °C 下以 20,000 × g 离心 30 分钟去除细胞碎片。
- 将上一步所得上清液置于冰上,逐滴加入硫酸链霉素,使终浓度达到 4%(w/v)。短暂冰浴后,在 4 °C 下以 20,000 × g 离心 30 分钟。
- 将上清液经 0.45 µm 滤膜过滤后,使用自动液相色谱系统加载至已用 10 倍柱体积 T7 缓冲液 B 预平衡的强阴离子交换柱(柱体积为 40 mL)中。
- 用 50 倍柱体积的 T7 缓冲液 B 洗脱上样后的色谱柱,并以低盐(50 mM NaCl)和高盐(500 mM NaCl)T7 缓冲液 C 的混合液进行洗脱,建立从 50 至 500 mM NaCl 的线性浓度梯度,流速约为 3 mL/min41。
- 收集洗脱峰组分,并通过 SDS-PAGE 分析。
注:T7 聚合酶在 SDS-PAGE 凝胶上表现为约 100 kDa 的主条带,但仍可见大量杂质蛋白。 - 合并含有 T7 聚合酶的组分,并在 2 L T7 缓冲液 C 中透析过夜。
- 加入甘油使其终浓度达到 10%,然后通过超滤将溶液浓缩至终浓度为 3–4 mg/mL42。
注:若在浓缩过程中出现沉淀,应立即停止操作,并通过离心去除沉淀物。 - 将甘油浓度调整至 50%。分装后用液氮速冻样品,并于 −80 °C 长期保存。
注:少量分装样品也可在 -20 °C 保存至少 1 个月而不损失活性。
3. 缓冲液的配制
- 使用前一天按照表1所示配制缓冲液。
4. 模板设计与制备
- 将目的基因克隆至基于T7启动子的载体中,或扩增含有目的基因的线性PCR产物。
注意:设计原则详见讨论部分。 - 使用质粒提取试剂盒从过夜培养物中提取质粒。
建议:选择包含异丙醇沉淀步骤并随后用70%乙醇洗涤的质粒提取试剂盒。 - 根据微量分光光度计测定结果,将干燥的DNA溶解于少量超纯水中,浓度控制在200 µg/mL至500 µg/mL之间。
- 可选:直接从线性PCR产物表达蛋白。
注意:此情况下需要进行PCR产物纯化步骤。
5. Mg2+ 和 K+ 的优化
- 根据表2中所示的条件配制用于 Mg2+ 浓度筛选的主混合液,或根据表3中所示的条件配制用于 K+ 浓度筛选的主混合液。
- 将主混合液转移至各个微量离心管或V型96孔板中。
- 用移液器将准确体积的 Mg2+ 或 K+ 储备溶液加入各个微量离心管或V型96孔板中,并用超纯水补足体积以完成CFPS反应。将反应体系在37 °C下孵育至少2小时。
注意:若使用V型96孔板,需用塑料封板膜密封以防止蒸发。 - 取2 µL反应混合物转移至黑色96孔板中,使用酶标仪进行荧光检测。
注意:我们使用的荧光酶标仪参数设置如下:激发/发射波长:485/528 nm,增益:50,读板高度:7.00 mm。然而,使用者需根据所用的纯化荧光蛋白建立特定的校准曲线,以优化仪器参数。
6. 包封
- 液滴
- 制备含表面活性剂的氟化油(2% PFPE-PEG 溶于 HFE7500)或通过将脂质溶解于矿物油中制备脂质-矿物油溶液(参见步骤 6.2.1)
- 通过混合试剂2-18,配制总体积为100 µL的CFPS反应体系 表4将CFPS反应液加入至1.5 mL离心管中已预置的500 µL油相中,用力在试管架上振荡50次,以形成细小的(水包油)液滴。于30 °C孵育该离心管以进行反应。
注意:简单的微流控芯片也可用于生成均一的液滴43.
- 巨型单层囊泡(GUVs)
- 配制脂质-矿物油溶液
- 向一个4 mL玻璃小瓶中加入57 µL氯仿,然后加入18 µL浓度为25 mg/mL的1-棕榈酰-2-油酰-甘油-3-磷酰胆碱(POPC)脂质,以制备氯仿脂质溶液,终浓度为8 mM(可使用其他脂质并保持相似的终浓度)。
注意:此混合步骤旨在确保不同脂质的均匀混合。 - 在氩气流下蒸发氯仿15分钟,然后在真空条件下继续蒸发1小时。
- 将所得的干燥脂质溶解于1,500 µL矿物油中,终浓度为400 µM。室温下孵育过夜。
- 向一个4 mL玻璃小瓶中加入57 µL氯仿,然后加入18 µL浓度为25 mg/mL的1-棕榈酰-2-油酰-甘油-3-磷酰胆碱(POPC)脂质,以制备氯仿脂质溶液,终浓度为8 mM(可使用其他脂质并保持相似的终浓度)。
- 形成界面脂质层
- 加入500 µL外层溶液(参见 表5将250 µL脂质-矿物油溶液缓慢铺加到1.5 mL离心管中的外相溶液上方。室温孵育30分钟,以形成稳定的界面脂质层。
- 内溶液的配制
- 将所有试剂混合 表6 将T7RNAP、S30提取物和DNA模板分别作为试剂16-18(见表4)加入预内溶液中,配制成完整的内溶液,冰上保存直至使用。
注意:将包封的蔗糖浓度提高至250 mM以上可能会抑制无细胞翻译44.
- 将所有试剂混合 表6 将T7RNAP、S30提取物和DNA模板分别作为试剂16-18(见表4)加入预内溶液中,配制成完整的内溶液,冰上保存直至使用。
- GUV的形成
- 向含有500 µL脂质矿物油的1.5 mL新离心管中加入50 µL内相溶液,快速吹打混匀,然后剧烈涡旋振荡。
- 将离心管置于冰上10分钟,然后缓慢加入20 µL乳化混合物至6.2.2步骤中1.5 mL离心管油相的顶部。
- 800 × g 离心 g 使用100 × g至 g 至 1000 × g在 4 °C 下孵育 10 分钟,观察试管底部 GUVs 的形成。
注意:可使用更高的特定离心速度;但需考虑离心速度可能影响所形成GUVs的大小45. - 移除上层油相。
- 小心吸取试管底部的 30 µL GUVs。将收集的 GUVs 在 30 °C 下孵育。
注意:不同蛋白质的最佳孵育温度有所不同。 - 使用共聚焦激光扫描显微镜(LSM)监测荧光蛋白的表达。
- 配制脂质-矿物油溶液
- 支撑脂质双层(SLB)
- SLB腔室的制备
- 将七滴硫酸和两滴50%过氧化氢加入每片24 × 24 mm #1.5盖玻片中心,进行Piranha溶液清洗。反应物在盖玻片上孵育至少45分钟,随后用超纯水彻底冲洗。
- 使用光学胶将截短的0.5 mL微量离心管固定在清洗后的盖玻片上,并在紫外灯(365 nm)下照射10分钟使胶固化,从而组装成重建反应室。
- SLB的形成
- 将80 mol% 1,2-二油酰基-sn-甘油-3-磷脂酰胆碱(DOPC)、19.95 mol% 1,2-二油酰基-sn-甘油-3-磷脂-L-丝氨酸(DOPS)和0.05 mol% Atto488-DOPE(1,2-二油酰基-sn-甘油-3-磷脂乙醇胺 = DOPE)溶解于氯仿中,混合均匀后在温和氮气流下吹干,并于真空条件下继续干燥1小时,以彻底去除溶剂。
- 用SLB缓冲液A重悬干燥的脂质膜,得到终浓度为4 mg/mL的脂质溶液。
- 涡旋并超声处理所得样品,直至溶液变澄清。
- 将 SUVs 稀释至 4 mg/mL,加入 130 µL SLB 缓冲液 A,取 75 µL 悬液转移至预形成的反应腔室,于 37 °C 恒温金属块中孵育 1 分钟。向反应腔室中加入 150 µL SLB 缓冲液 A,继续孵育 2 分钟。
- 用 2 mL SLB 缓冲液 B(不含 MgCl 的 SLB 缓冲液 A)洗涤腔室2在进行缓冲液置换至含有0.4% (w/v) BSA的S30缓冲液C以用于CFPS反应之前,需在腔室内保留100 µL缓冲液,以防止形成的SLB干燥。
- 去除残留的 S30 缓冲液 C,小心地将 CFPS 反应混合物加入 SLB 室中。将室置于 30 °C 培育,并在共聚焦激光扫描显微镜下监测表达情况。
- SLB腔室的制备
结果
对于每一批新的细胞提取物和T7 RNA聚合酶,建议对Mg2+和K+浓度进行基础筛选,以确保CFPS系统的最佳性能。在不同条件下,超折叠GFP的荧光可作为CFPS系统总体产量的指标,如图1A、B所示。此外,图1C展示了CFPS系统在不同区室中的平行产量比较,表明封装的CFPS系统具有稳定的性能,尽管在GUVs中产量略有下降,可能受到蔗糖的影响46。此外,CFPS反应已成功封装于液滴(图2)、GUVs(图3)以及SLBs表面(图4)。
图2A 高亮显示乳液滴的形成,当油溶液变得湍急时可明显观察到。使用共聚焦激光扫描显微镜捕获绿色/红色荧光蛋白(GFP 和 mCherry)的表达。 图3 通过简单的乳液转移法,展示了将CFPS反应成功封装于GUVs中的结果。红色通道显示标记的脂质;绿色通道显示超级折叠GFP的表达;黄色通道代表一种惰性荧光染料。 图4A 显示了可沉积CFPS反应的SLB小室。在此小室内,SLB形成于玻璃盖玻片表面,CFPS反应混合物置于预先形成的SLB上方,从而可通过共聚焦激光扫描显微镜进行成像。如图所示 图4B,SLB通过标记的脂质(绿色)进行可视化,而表达的与mCherry融合的小GTP酶Cdc42则显示为品红色。 原位 在显微镜下可观察到mCherry-Cdc42的表达以及其可逆的膜定位过程。然而,所使用的CFPS系统已添加了预nylation修饰体系,具体方法详见近期发表的文献。47.
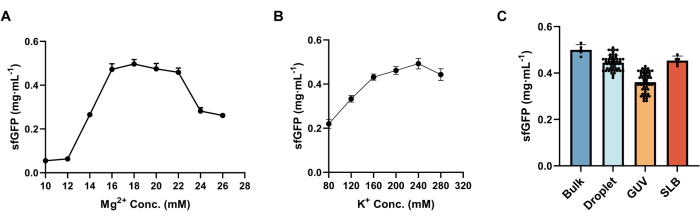
图 1:无细胞蛋白合成(CFPS)系统的优化与比较。 对体相中 CFPS 系统的(A)Mg2+ 浓度和(B)K+ 浓度进行筛选。(C)不同区室中蛋白质表达产量的柱状图。采用酶标仪或共聚焦激光扫描显微镜检测超折叠绿色荧光蛋白(sfGFP)的荧光强度,以确定 CFPS 系统的表达产量。缩略语:CFPS = 无细胞蛋白合成;GFP = 绿色荧光蛋白;sfGFP = 超折叠 GFP;GUV = 巨型单层囊泡;SLB = 支持性脂双层。请点击此处查看该图的放大版本。
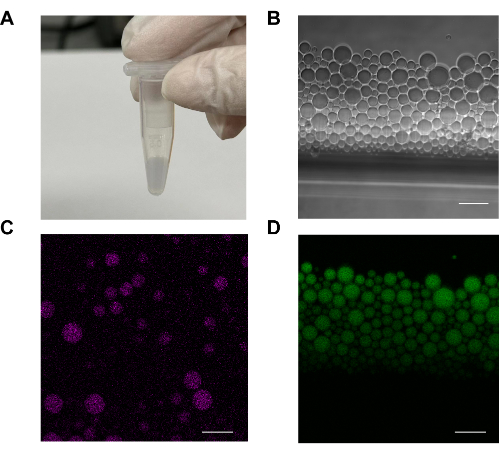
图 2:液滴中的无细胞蛋白合成。(A)表面活性剂稳定的油包水液滴中封装的无细胞蛋白合成(CFPS)反应的照片。(B)明场图像,以及(C,D)通过共聚焦激光扫描显微镜观察到的液滴中(C)mCherry 和(D)超折叠绿色荧光蛋白(superfolder GFP)的CFPS荧光图像。超折叠GFP以绿色显示,mCherry以品红色显示。比例尺 = 20 µm。缩写:CFPS = 无细胞蛋白合成;GFP = 绿色荧光蛋白。请点击此处查看该图的放大版本。

图3:GUV中的无细胞蛋白合成。(A)GUV中包封的CFPS反应照片。(B-D)在POPC GUV中包封的CFPS反应表达超折叠绿色荧光蛋白(superfolder GFP)的荧光图像。(B)脂质双层用0.05%标记的Atto647N-DOPE脂质染色,显示为红色;(C)惰性染料显示为黄色;(D)超折叠GFP显示为绿色。比例尺 = 20 µm。缩写:CFPS = cell-free protein synthesis(无细胞蛋白合成);GFP = green fluorescent protein(绿色荧光蛋白);GUV = giant unilamellar vesicle(巨大单层囊泡);POPC = 1-palmitoyl-2-oleoyl-glycerol-3-phosphocholine;DOPE = 1,2-dioleoyl-sn-glycero-3-phosphoethanolamine。请点击此处查看该图的放大版本。

图 4:在支持性脂双层(SLB)上进行的小GTP酶蛋白Cdc42的无细胞蛋白合成。 (A)通过共聚焦激光扫描显微镜观察Cdc42膜靶向及其依赖RhoGDI的膜提取过程在SLB上的重建示意图。异戊二烯化机制通过富含异戊二烯转移酶的提取物实现,具体方法 elsewhere 有详细描述。47。(B)反应混合物在SLB上发生异戊二烯化前与后的正交视图。(C,D)mCherry-Cdc42在膜上(粉红色)和溶液中(黑色)的荧光强度随时间变化曲线,分别对应(C)膜靶向过程和(D)膜提取过程。比例尺 = 10 µm。(A-D)改编自 Kai 等人47。请点击此处查看该图的放大版本。
表1:缓冲液列表。注意:使用前立即加入β-巯基乙醇和DTT。请点击此处下载该表格。
表2:Mg2+浓度筛选的移液方案。 请点击此处下载该表格。
表3:K+ 浓度筛选的移液方案。 请点击此处下载该表格。
表4:内溶液组成。 请点击此处下载该表格。
表5:外液成分组成。 请点击此处下载该表格。
表6:内液预配制溶液成分。 请点击此处下载该表格。
讨论
本手稿概述了一种改良的无细胞蛋白质合成(CFPS)系统,旨在用于合成细胞平台中的多种微区室,包括油包水液滴、大单层囊泡(GUVs)和固相支持脂双层(SLBs)。我们采用标准的大肠杆菌(E. coli)重组蛋白表达宿主菌株BL21(DE3)作为构建以蛋白质为核心的合成细胞系统的提取物来源。该方法在不同区室中实现了约0.5 mg/mL的蛋白质产量。尽管可使用其他定制的提取物来源菌株,但这些系统主要针对特定类型的蛋白质或代谢活性进行了优化,可能不适用于通用的蛋白质表达。近年来,定量质谱分析技术的进步推动了对细胞裂解液进行蛋白质组学分析的初步研究48,49,特别是在不同制备条件下。
尽管这些研究提供了重要见解,但在已鉴定的蛋白质因子与无细胞蛋白表达系统(CFPS)整体性能之间建立定量相关性仍然具有挑战性。这一空白使得如何对特定批次提取物的性能进行定量评估的问题仍未得到解答。此外,目前尚未见对不同来源菌株进行系统性平行比较的报道。在本研究中,我们采用2xYPTG培养基以提高生物量产量,这是一种在利用内源性RNA聚合酶进行转录时建议转换至2xYPT的策略。尽管有建议提出可将T7聚合酶整合到提取物制备过程中45,但我们选择将S30提取物与T7 RNA聚合酶分别制备,以降低批次间较高的变异程度。
目标蛋白的表达与中心转录/翻译过程密切相关。模板设计的合理性和纯度对于无细胞表达的成功至关重要。除质粒模板外,还可使用通过PCR扩增获得的线性双链DNA,适用于筛选和高通量应用。与传统的模板设计相比 体内 表达在 E. coli,模板设计在 E. coli 无细胞系统简化了表达过程,无需考虑诱导表达的相关因素。无细胞表达模板中唯一必需的元件是T7调控序列。然而,在某些情况下,目标基因的5'端序列可能会影响翻译起始,这取决于相应转录mRNA所形成的二级结构。如果核糖体结合位点位于转录mRNA的稳定茎环结构内部,翻译起始可能受到显著阻碍,导致整体表达水平低下。类似地,连续的稀有密码子也会阻碍表达,应进行优化,其原则与 体内 研究。这可以通过专门用于密码子优化的开源服务器来实现50 以及mRNA二级结构预测51.
关于缓冲体系,我们在实验体系中采用了醋酸盐缓冲液,并添加磷酸肌酸和肌酸激酶作为能量再生的来源。该体系获得了中等水平的表达量和相对较快的动力学特性,这归因于肌酸激酶利用磷酸肌酸催化的单步能量再生反应。尽管一些研究人员已转向谷氨酸缓冲体系,理由是其更接近细胞内的环境52,但在我们现有的实验方案中,并未观察到蛋白质表达产量存在显著差异。然而,近期的蛋白质组学分析表明,不同的缓冲体系与提取物处理方法相结合,可能会影响最终的表达产量19。在能量前体方面,多个研究团队已探索了多种底物,以实现更高的成本效益和表达产量53,54。在本研究所呈现的无细胞蛋白合成(CFPS)体系中,我们有意识地选择了磷酸肌酸和肌酸激酶。这一选择是基于单步反应即可实现高效能量再生的优势,以及该体系不会干扰源自提取物的内源性酶活性。因此,该配置构建了一个简单而稳健的系统,适用于多种微区室环境。
如代表性结果所示,我们成功在三种不同的微区室中实现了蛋白质表达:由半氟化油稳定的油包水液滴、通过乳液转移法形成的巨大单层囊泡(GUVs),以及支撑性脂双层表面。蛋白质表达在不同微区室中的广泛适用性,凸显了我们的无细胞蛋白合成系统(CFPS)在人工细胞构建中的稳健性。在这些包封方法中,乳液液滴技术是一种尤为简便的CFPS系统包封方法,仅需振荡或涡旋即可完成。然而,由于水-油界面的不稳定性,这些液滴通常不够稳定,这一局限性可通过向油相中添加脂质或表面活性剂来改善。尽管经过稳定化的油包水液滴具有良好的实用性,但它们并不能完全模拟天然细胞环境——天然细胞由细胞膜分隔形成两个水相区室。相比之下,尺寸超过1微米的巨大单层囊泡(GUVs)更接近真实细胞的结构。CFPS系统被包封于这些囊泡的脂双层内部,为多种人工细胞系统提供了转录和翻译的分子机制55。
乳液转移法(又称双重乳液法)因其温和的制备过程以及相较于无溶剂方法相对较高的包封效率,成为包封CFPS反应的典型技术。然而,双重乳液囊泡的制备方法可从简单的离心步骤到微流控辅助的乳液转移不等,每种方法均有其相应的优缺点,其他文献对此已有总结36。成功将CFPS系统包封于GUVs中依赖于渗透压的调节以及施加适当的作用力以穿过油-水界面。尽管本文所述的乳液转移法最为简便且无需特殊实验设备,但不同批次所生成GUVs的效率和均一性可能存在差异。此外,所有乳液转移方法都必须处理在形成的双层界面腔内残留的油相,因此需要额外的除油步骤56,这在动力学研究项目中可能带来挑战。
最后,我们展示了在支撑脂质双层(SLB)上成功实现CFPS表达,为需要在脂质生物膜环境中进行蛋白质合成的研究项目提供了一种有价值的方法。通过使用所介绍的CFPS系统,我们成功表征了Cdc4247这一对细胞极性至关重要的中心蛋白分子的可逆膜靶向过程。综上所述,在多种微区室中观察到的稳定中等表达水平及内在的鲁棒性,凸显了该CFPS系统在构建多样化合成细胞系统中的潜力。这一能力还可进一步拓展至多种以蛋白质为中心的模型,最终推动最小细胞的实现。
披露
作者声明,他们不存在任何已知的相互竞争的经济利益或可能被认为影响本文报道工作的个人关系。
致谢
M. Y. 感谢研究生研究基金的资助 &中国江苏省研究生实践创新计划项目(项目编号:KYCX22_2803)。L.K. 感谢中国江苏省高校自然科学研究项目(项目编号:17KJB180003)、中国江苏师范大学自然科学基金(项目编号:17XLR037)、中国江苏省高校优势学科建设工程项目以及中国江苏省特聘教授项目的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1,2-二油酰基-sn二油酰基-甘油-3-磷胆碱(DOPC) | Avanti | 850375P | |
| 1,2-二油酰基-sn-甘油-3-磷酸-L-丝氨酸(钠盐)(DOPS) | Avanti | 840035P | |
| 1,4-二硫苏糖醇(DTT) | Sigma-Aldrich | 1.11474 | |
| 1-棕榈酰-2-油酰-sn-甘油-3-磷脂酰胆碱(POPC) | Avanti | 850457P | |
| 3,5-环磷酸腺苷(cAMP) | Sigma-Aldrich | A9501 | |
| 50 mL 离心管 | Eppendorf | Eppendorf离心管 BioBased | |
| 50% 过氧化氢 | Sigma-Aldrich | 516813 | |
| 乙酸盐 | Sigma-Aldrich | A6283 | |
| 琼脂粉 | Sigma-Aldrich | 05040 | |
| 丙氨酸 | Sigma-Aldrich | A4349 | |
| Amicon 搅拌式超滤池 | 默克密理博 | UFSC05001 | |
| 乙酸铵(NH4OAc) | Sigma-Aldrich | A7262 | |
| 精氨酸 | Sigma-Aldrich | A4474 | |
| 天冬酰胺 | Sigma-Aldrich | A0884 | |
| 天冬氨酸 | Sigma-Aldrich | A5474 | |
| ATP | 罗氏 | 11140965001 | |
| Atto 488 DOPE | Sigma-Aldrich | 67335 | |
| Atto 647N DOPE | Sigma-Aldrich | 42247 | |
| 带导流板的锥形瓶 | 兽牛 | 250 mL,1000 mL | |
| 牛血清白蛋白(BSA) | 罗氏 | 10711454001 | |
| 离心管 | Eppendorf | Eppendorf 离心管 3810X | |
| 离心管架 | Eppendorf | 0030119819 | |
| 化学发光与落射荧光成像系统 | Uvitec | Alliance Q9 Advanced | |
| 氯仿 | Sigma-Aldrich | 288306 | |
| 共聚焦激光扫描显微镜(LSM) | ZEISS | LSM 780 | |
| Countess 细胞计数板载玻片 | 赛默飞世尔科技 | C10283 | |
| 盖玻片 | 赛默飞世尔科技 | Menzel BB02400500A113MNZ0 | |
| 肌酸激酶(CK) | 罗氏 | 10127566001 | |
| 磷酸肌酸(CP) | Sigma-Aldrich | 10621714001 | |
| 培养皿 | 环球 | 90 mm | |
| 半胱氨酸 | Sigma-Aldrich | C5360 | |
| 胞苷5'-三磷酸二钠盐(CTP) | aladdin | C101487 | |
| 透析膜 | 光谱 | 标准RC透析管截留分子量:12-14 kD | |
| E.Z.N.A. Cycle Pure 试剂盒 | Omega Bio-Tek | D6492-01 | |
| 电加热恒温培养箱 | Yiheng仪器 | DHP-9602 | |
| 乙二胺四乙酸(EDTA) | Biosharp | 1100027 | |
| 荧光酶标仪 | BioTek | Synergy 2 | |
| 氟化油 | 苏州中芯科学仪器 | 2%HFE7500 | |
| 亚叶酸 | Sigma-Aldrich | 47612 | |
| 法国压滤器 | G.Heinemann | HTU-DIGI-Press | |
| 葡萄糖 | Sigma-Aldrich | G7021 | |
| 谷氨酸 | Sigma-Aldrich | G5667 | |
| 谷氨酰胺 | Sigma-Aldrich | G5792 | |
| 甘油 | Sigma-Aldrich | G5516 | |
| 甘氨酸 | Sigma-Aldrich | G7126 | |
| 三磷酸鸟苷钠盐水合物(GTP) | 罗氏 | 10106399001 | |
| HEPES | Sigma-Aldrich | H3375 | |
| HiPrep Q FF 16/10 | Cytiva | 28936543 | |
| 组氨酸 | Sigma-Aldrich | H6034 | |
| 异亮氨酸 | Sigma-Aldrich | I5281 | |
| 异丙基-β异丙基-β-D-硫代半乳糖吡喃糖苷(IPTG) | Sigma-Aldrich | I5502 | |
| K2HPO4 | Sigma-Aldrich | P8281 | |
| KH2PO4 | Sigma-Aldrich | P5655 | |
| 亮氨酸 | Sigma-Aldrich | L6914 | |
| 溶菌素 | Sigma-Aldrich | L5501 | |
| 四水合乙酸镁(Mg(OAc)2 ) | Sigma-Aldrich | M5661 | |
| 氯化镁(MgCl2) | Sigma-Aldrich | M2670 | |
| 甲硫氨酸 | Sigma-Aldrich | M8439 | |
| 微型离心机 | Eppendorf | 5424 R | |
| 矿物油 | Sigma-Aldrich | M5904 | |
| Mini-PROTEAN Tetra 电泳系统 | 伯乐(Bio-Rad) | 1645050 | |
| 多功能离心机 | Eppendorf | 5810 R | |
| NaN3 | Sigma-Aldrich | S2002 | |
| 核酸 &核酸与蛋白质紫外检测测量 | IMPLEN | NanoPhotometer N60 | |
| 用于转染级质粒DNA的NucleoBond Xtra Maxi试剂盒 | MACHEREY-NAGEL | 740414.5 | |
| Nunc-Immuno MicroWell 96 孔聚苯乙烯板 | Sigma-Aldrich | P8616 | |
| PCR热循环仪 | Eppendorf | Mastercycler nexus | |
| 蛋白胨 | Sigma-Aldrich | 83059 | |
| 苯丙氨酸 | Sigma-Aldrich | P8740 | |
| 磷酸烯醇式丙酮酸(PEP) | GLPBIO | GC44635 | |
| PMSF | Sigma-Aldrich | PMSF-RO | |
| 聚乙二醇 8000(PEG 8000) | Sigma-Aldrich | 89510 | |
| 乙酸钾(KOAc) | Sigma-Aldrich | P5708 | |
| 氯化钾(KCl) | Sigma-Aldrich | P9541 | |
| 谷氨酸钾(K-glutamate) | Sigma-Aldrich | G1501 | |
| 氢氧化钾(KOH) | Sigma-Aldrich | 221473 | |
| 脯氨酸 | Sigma-Aldrich | P8865 | |
| 丙酮酸激酶(PK) | Sigma-Aldrich | P9136 | |
| 丝氨酸 | Sigma-Aldrich | S4311 | |
| 振动器 | Zhichushakers | ZQZY-AF8 | |
| 氯化钠(NaCl) | Sigma-Aldrich | S5886 | |
| 氢氧化钠(NaOH) | Sigma-Aldrich | S5881 | |
| 蔗糖 | 阿拉丁 | S112226 | |
| 硫酸 | Sigma-Aldrich | 339741 | |
| 注射器滤器 | Jinteng | 0.45 μm | |
| 试管 | 兽牛 | 20 mL | |
| TGX FastCast 丙烯酰胺试剂盒,12% | 伯乐(Bio-Rad) | #1610175 | |
| ThermoMixer | Eppendorf | ThermoMixer C | |
| 苏氨酸 | Sigma-Aldrich | T8441 | |
| Tris 碱 | Sigma-Aldrich | V900483 | |
| tRNA | 罗氏 | 10109550001 | |
| 胰蛋白胨 | Sigma-Aldrich | T7293 | |
| 色氨酸 | Sigma-Aldrich | T8941 | |
| 酪氨酸 | Sigma-Aldrich | T8566 | |
| 三磷酸尿苷三钠盐(UTP) | 阿拉丁 | U100365 | |
| 带循环水系统的真空泵 | 郑州长城科工贸有限公司 | SHB-<图片替代文本"公式 1" src="/files/ftp_upload/66626/66626eq01.jpg" 样式="margin: auto;"/> | |
| 瓦林 | Sigma-Aldrich | V4638 | |
| 涡旋混合器 | Kylin-Bell | Vortex QL-861 | |
| 水纯化系统 | 默克密理博 | 直接超纯水(1型) | |
| 酵母提取物 | Sigma-Aldrich | 70161 | |
| β-巯基乙醇 | Sigma-Aldrich | 444203 |
参考文献
- Elani, Y. Interfacing living and synthetic cells as an emerging frontier in synthetic biology. Angew Chem Int Ed Engl. 60 (11), 5602-5611 (2021).
- Cho, E., Lu, Y. Compartmentalizing cell-free systems: toward creating life-like artificial cells and beyond. ACS Synth Biol. 9 (11), 2881-2901 (2020).
- Silverman, A. D., Karim, A. S., Jewett, M. C. Cell-free gene expression: an expanded repertoire of applications. Nat Rev Genet. 21 (3), 151-170 (2020).
- Zhang, L., Guo, W., Lu, Y. Advances in cell-free biosensors: principle, mechanism, and applications. Biotechnol J. 15 (9), e2000187(2020).
- Lu, Y., Allegri, G., Huskens, J. Vesicle-based artificial cells: materials, construction methods and applications. Mater Horiz. 9 (3), 892-907 (2022).
- Fu, Z., Ochsner, M. A., De Hoog, H. P., Tomczak, N., Nallani, M. Multicompartmentalized polymersomes for selective encapsulation of biomacromolecules. Chem Commun (Camb). 47 (10), 2862-2864 (2011).
- Ayoubi-Joshaghani, M. H., et al. Cell-free protein synthesis: the transition from batch reactions to minimal cells and microfluidic devices. Biotechnol Bioeng. 117 (4), 1204-1229 (2020).
- Yue, K., Chen, J. Y., Li, Y. Q., Kai, L. Advancing synthetic biology through cell-free protein synthesis. Comput Struct Biotechnol J. 21, 2899-2908 (2023).
- Kwon, Y. C., Jewett, M. C. High-throughput preparation methods of crude extract for robust cell-free protein synthesis. Sci Rep. 5, 8663(2015).
- Shimizu, Y., et al. Cell-free translation reconstituted with purified components. Nat Biotechnol. 19 (8), 751-755 (2001).
- Schwarz, D., et al. Preparative scale expression of membrane proteins in Escherichia coli-based continuous exchange cell-free systems. Nat Protoc. 2 (11), 2945-2957 (2007).
- Levine, M. Z., Gregorio, N. E., Jewett, M. C., Watts, K. R., Oza, J. P. Escherichia coli-based cell-free protein synthesis: protocols for a robust, flexible, and accessible platform technology. J Vis Exp. (144), e58882(2019).
- Cole, S. D., Miklos, A. E., Chiao, A. C., Sun, Z. Z., Lux, M. W. Methodologies for preparation of prokaryotic extracts for cell-free expression systems. Synth Syst Biotechnol. 5 (4), 252-267 (2020).
- Shin, J., Noireaux, V. Efficient cell-free expression with the endogenous E. coli RNA polymerase and sigma factor 70. J Biol Eng. 4, 8(2010).
- Mcmanus, J. B., Emanuel, P. A., Murray, R. M., Lux, M. W. A method for cost-effective and rapid characterization of engineered T7-based transcription factors by cell-free protein synthesis reveals insights into the regulation of T7 RNA polymerase-driven expression. Arch Biochem Biophys. 674, 108045(2019).
- Kim, T. W., et al. Prolonged cell-free protein synthesis using dual energy sources: combined use of creatine phosphate and glucose for the efficient supply of ATP and retarded accumulation of phosphate. Biotechnol Bioeng. 97 (6), 1510-1515 (2007).
- Kim, D. M., Swartz, J. R. Regeneration of adenosine triphosphate from glycolytic intermediates for cell-free protein synthesis. Biotechnol Bioeng. 74 (4), 309-316 (2001).
- Liu, Y., Fritz, B. R., Anderson, M. J., Schoborg, J. A., Jewett, M. C. Characterizing and alleviating substrate limitations for improved in vitro ribosome construction. ACS Synth Biol. 4 (4), 454-462 (2015).
- Rasor, B. J., et al. Mechanistic insights into cell-free gene expression through an integrated-omics analysis of extract processing methods. ACS Synth Biol. 12 (2), 405-418 (2023).
- Kim, D. M., Kigawa, T., Choi, C. Y., Yokoyama, S. A highly efficient cell-free protein synthesis system from Escherichia coli. Eur J Biochem. 239 (3), 881-886 (1996).
- Li, J. J., Li, P. X., Liu, Q., Li, J. J., Qi, H. Translation initiation consistency between in vivo and in vitro bacterial protein expression systems. Front Bioeng Biotechnol. 11, 1201580(2023).
- Shrestha, P., Holland, T. M., Bundy, B. C. Streamlined extract preparation for Escherichia coli-based cell-free protein synthesis by sonication or bead vortex mixing. Biotechniques. 53 (3), 163-174 (2012).
- Sun, Z. Z., et al. Protocols for implementing an Escherichia coli based tx-tl cell-free expression system for synthetic biology. J Vis Exp. (79), e50762(2013).
- Zubay, G. In vitro synthesis of protein in microbial systems. Annu Rev Genet. 7, 267-287 (1973).
- Jaroentomeechai, T., et al. Single-pot glycoprotein biosynthesis using a cell-free transcription-translation system enriched with glycosylation machinery. Nat Commun. 9 (1), 2686(2018).
- Katsura, K., et al. Phosphorylated and non-phosphorylated HCK kinase domains produced by cell-free protein expression. Protein Expr Purif. 150, 92-99 (2018).
- Suzuki, T., et al. N-terminal protein modifications in an insect cell-free protein synthesis system and their identification by mass spectrometry. Proteomics. 6 (16), 4486-4495 (2006).
- Chi, H., Wang, X., Li, J., Ren, H., Huang, F. Chaperonin-enhanced Escherichia coli cell-free expression of functional CXCR4. J Biotechnol. 231, 193-200 (2016).
- Endo, Y., Sawasaki, T. High-throughput, genome-scale protein production method based on the wheat germ cell-free expression system. Biotechnol Adv. 21 (8), 695-713 (2003).
- Shin, J., Noireaux, V. An E. coli cell-free expression toolbox: Application to synthetic gene circuits and artificial cells. ACS Synth Biol. 1 (1), 29-41 (2012).
- Jewett, M. C., Swartz, J. R. Mimicking the Escherichia coli cytoplasmic environment activates long-lived and efficient cell-free protein synthesis. Biotechnol Bioeng. 86 (1), 19-26 (2004).
- Ryabova, L. A., Vinokurov, L. M., Shekhovtsova, E. A., Alakhov, Y. B., Spirin, A. S. Acetyl phosphate as an energy source for bacterial cell-free translation systems. Anal Biochem. 226 (1), 184-186 (1995).
- Guzman-Chavez, F., et al. Constructing cell-free expression systems for low-cost access. ACS Synth Biol. 11 (3), 1114-1128 (2022).
- Jewett, M. C., Swartz, J. R. Substrate replenishment extends protein synthesis with an in vitro translation system designed to mimic the cytoplasm. Biotechnol Bioeng. 87 (4), 465-472 (2004).
- Caschera, F., et al. High-throughput optimization cycle of a cell-free ribosome assembly and protein synthesis system. ACS Synth Biol. 7 (12), 2841-2853 (2018).
- Yue, K., et al. Bottom-up synthetic biology using cell-free protein synthesis. Adv Biochem Eng Biotechnol. 185, 1-20 (2023).
- Liu, D. V., Zawada, J. F., Swartz, J. R. Streamlining Escherichia coli S30 extract preparation for economical cell-free protein synthesis. Biotechnol Prog. 21 (2), 460-465 (2005).
- Kim, T. W., et al. Simple procedures for the construction of a robust and cost-effective cell-free protein synthesis system. J Biotechnol. 126 (4), 554-561 (2006).
- McPhie, P. [4] Dialysis. Methods Enzymol. 22, 23-32 (1971).
- Froger, A., Hall, J. E. Transformation of plasmid DNA into E. coli using the heat shock method. J Vis Exp. (6), e253(2007).
- Kai, L., et al. Systems for the cell-free synthesis of proteins. Methods Mol Biol. 800, 201-225 (2012).
- Lobb, R. J., et al. Optimized exosome isolation protocol for cell culture supernatant and human plasma. J Extracell Vesicles. 4, 27031(2015).
- Hori, Y., Kantak, C., Murray, R. M., Abate, A. R. Cell-free extract based optimization of biomolecular circuits with droplet microfluidics. Lab Chip. 17 (18), 3037-3042 (2017).
- Takahashi, H., Ogawa, A. Preparation of a millimeter-sized supergiant liposome that allows for efficient, eukaryotic cell-free translation in the interior by spontaneous emulsion transfer. ACS Synth Biol. 9 (7), 1608-1614 (2020).
- Adir, O., et al. Preparing protein producing synthetic cells using cell free bacterial extracts, liposomes and emulsion transfer. J Vis Exp. (158), e60829(2020).
- Kai, L., Dotsch, V., Kaldenhoff, R., Bernhard, F. Artificial environments for the co-translational stabilization of cell-free expressed proteins. PLoS One. 8 (2), e56637(2013).
- Kai, L., Sonal, H. T., Schwille, P. Reconstitution of a reversible membrane switch via prenylation by one-pot cell-free expression. ACS Synth Biol. 12 (1), 108-119 (2023).
- Foshag, D., et al. The E. Coli S30 lysate proteome: a prototype for cell-free protein production. N Biotechnol. 40, Pt B 245-260 (2018).
- Garenne, D., Beisel, C. L., Noireaux, V. Characterization of the all-E. coli transcription-translation system mytxtl by mass spectrometry. Rapid Commun Mass Spectrom. 33 (11), 1036-1048 (2019).
- Puigbo, P., Guzman, E., Romeu, A., Garcia-Vallve, S. Optimizer: A web server for optimizing the codon usage of DNA sequences. Nucleic Acids Res. 35, Web Server issue W126-W131 (2007).
- RNAfold WebServer. Institute for Theoretical Chemistry, University of Vienna. , Available from: http://rna.tbi.univie.ac.at/cgi-bin/RNAWebSuite/RNAfold.cgi (2024).
- Wiegand, D. J., Lee, H. H., Ostrov, N., Church, G. M. Cell-free protein expression using the rapidly growing bacterium vibrio natriegens. J Vis Exp. (145), e59495(2019).
- Calhoun, K. A., Swartz, J. R. An economical method for cell-free protein synthesis using glucose and nucleoside monophosphates. Biotechnol Prog. 21 (4), 1146-1153 (2005).
- Kim, D. M., Swartz, J. R. Prolonging cell-free protein synthesis with a novel ATP regeneration system. Biotechnol Bioeng. 66 (3), 180-188 (1999).
- Nishimura, K., et al. Cell-free protein synthesis inside giant unilamellar vesicles analyzed by flow cytometry. Langmuir. 28 (22), 8426-8432 (2012).
- Teh, S. Y., Khnouf, R., Fan, H., Lee, A. P. Stable, biocompatible lipid vesicle generation by solvent extraction-based droplet microfluidics. Biomicrofluidics. 5 (4), 044113(2011).
重印与许可
标签
