早产(分娩) < 37周)是一个紧迫的全球健康问题,目前尚缺乏理想的预防和治疗手段。本文介绍了一种通过上行性阴道细菌感染诱导小鼠早产的模型,并阐述了如何分析由此导致的新生儿发病和死亡情况。
本文内容
摘要
摘要
早产仍然是全球新生儿死亡和发病的主要原因,目前可用的预防性治疗手段有限。临床上迫切需要
用于创新干预措施转化的相关且可重复的动物模型
成为现实。目前已存在多种早产小鼠模型,但这些模型无法重现人类早产儿的多种疾病,包括神经病理学改变和
肺损伤,这些是上行感染和早产的典型后遗症。据我们所知,我们已建立了一种模型,该模型是目前唯一能够模拟人类新生儿发生上述疾病情况的模型 在活菌从阴道上行引发早产后呈现。本文展示了 阴道内给予一种生物发光菌株 大肠杆菌 并详细说明了使用免疫组织化学和组织学技术评估神经病理学结果和肺损伤的方法。
引言
早产(PTB;分娩时间< 37周)是全球新生儿死亡的主要原因1,2。早产占所有出生人数的11%,是一个重大的全球性健康问题,其病因复杂且尚未被充分理解,导致难以预测和预防3,4,5。早产存活新生儿可能出现不良的神经发育结局,包括脑瘫、呼吸系统疾病(如支气管肺发育不良,BPD)以及胃肠道紊乱(如坏死性小肠结肠炎,NEC)6,7,8。因此,迫切需要建立具有临床相关性且可重复的动物模型,以研究导致早产的生物学通路,并开发创新性干预措施。
自发性早产存在多种可能的机制,例如蜕膜衰老、母胎耐受性破坏、应激、宫颈长度过短或宫颈损伤9然而,据报道至少有40%的自发性早产与微生物感染相关10,11微生物 从阴道腔经宫颈向上延伸 到子宫的 假设并被广泛接受 由于相关性,作为一种常见的感染途径 羊水分离出的微生物与阴道菌群中定植的微生物之间12,13,14与早产常相关的微生物包括以下种类: 支原体, 解脲支原体, 具核梭杆菌, 和 链球菌属 且大多数病例为多微生物感染15,16.
小鼠常被用于模拟早产(PTB),最常用的方法是给予细菌毒素脂多糖(LPS),可通过子宫内、腹腔内或羊膜内途径给药,以诱导启动分娩所需的炎症水平17。然而,LPS 并不能模拟活体微生物感染,更重要的是,由于 LPS 会引发胎儿死亡,因此在这些模型中无法测量新生儿结局18。近年来,已开发出模拟阴道细菌上行感染的动物模型,但同时重现早产及相关的新生儿结局仍具挑战性19,20,21,22,23,24。
本课题组已建立一种新型的上行性阴道细菌感染、早产及新生儿发病模型,该模型可重现人类早产(PTB)的病理生理过程25。本文演示如何评估幼鼠在母体上行性阴道感染致病性大肠杆菌(Escherichia coli,E. coli)后所出现的神经病理学改变及肺损伤。该模型为研究上行性感染的病理生理机制提供了独特机会,同时也可用于评估早产干预措施对改善新生儿结局的有效性。
方案
实验在英国环境、食品和农村事务部许可证(PAD4E6357)下进行,遵循《动物科学程序法》(1986年)和ARRIVE指南。温度(19–23 °C)、湿度(约55%)以及12小时光照/黑暗循环均严格控制。使用6–12周龄的C57BL/6 Tyrc-2J品系雌性处女小鼠,进行为期16–18小时的夜间定时交配。以发现交配栓为标志,确定为胚胎发育第0.5天(E0.5)。
致病性大肠杆菌 E. coli O18:K1 (A192PP)26 是菌株 A192(DSM. No. 10719)27 经大鼠传代获得的菌株,经改造后携带来自线虫共生菌Photorhabdus luminescens ATCC29999(Hb 菌株)的 lux 操纵子(luxCDABE),并包含一个卡那霉素抗性盒(Km2)28。该菌株被英国危险病原体咨询委员会(ACDP)归类为危险群组 2。操作和处置生物制剂时,应穿戴适当的个人防护装备(PPE),并遵循当地相关指南。
1. 小鼠上行性阴道细菌感染模型
- 制备 E. coli 培养物
- 通过将粉末溶解于蒸馏水(dH₂O)中制备LB(Luria-Bertani)培养基2O) 配制成20%溶液并进行高压灭菌。待LB培养基冷却至室温后,加入50 µg/mL卡那霉素。4 °C保存,可使用于1周内。
- 通过将固体Pluronic F127溶解于无菌磷酸盐缓冲液(PBS)中,制备20% Pluronic F127溶液。涡旋混匀后,于4 °C条件下振荡过夜。
- 向无菌的30 mL通用容器中加入10 mL含抗生素的LB肉汤。取出一管冷冻的甘油菌种保存液 E. coli 从 -80 °C 保存条件下取出。使用无菌移液器吸头,刮取冻存的甘油菌种 E. coli 轻轻蘸取枪头末端,并将枪头直接弹入LB肉汤中。用封口膜密封通用容器,标记为生物危害物,并于37 °C下以200 rpm转速在摇床中过夜培养。
- 次日早晨,将细菌培养物按1:100比例稀释(0.1 mL培养物 + 9.9 mL新鲜LB肉汤),重新置于摇床中于37 °C、200 rpm振荡培养1.5–3小时,期间定期通过测定600 nm处的吸光度监测培养物生长情况。取100 µL培养物,重复加入透明平底96孔板中。使用分光光度计测定吸光度,检测时启用光程校正功能。OD值600 介于0.5和0.7之间表示处于对数生长中期。
- 当OD600 0.5–0.7 时(约 108-9 菌落形成单位 [CFU]),从细菌培养物中取出 100 µL,加入 900 µL 无菌 PBS 中稀释。在 14,000 × g 1分钟,以洗涤细菌沉淀并去除LB肉汤。移除上清液,将细菌沉淀重悬于无菌PBS中,并用无菌PBS稀释1:10,000(至102-3 菌落形成单位(CFU)。
- 在丢弃前,对所有接触过细菌的枪头和容器进行消毒。
- 麻醉
- 在E16.5天,通过吸入异氟烷(5%诱导,1.5%维持,以氧气为载体)对怀孕小鼠进行麻醉。随后转移麻醉气流,然后 将动物固定于鼻罩,使雌性动物呈俯卧位。通过脚趾夹捏反射消失确认麻醉效果,并维持异氟烷浓度为手术所需的最低百分比。
警告:异氟烷对眼睛和皮肤具有刺激性,并对中枢神经系统具有毒性。应穿戴适当的个人防护装备。务必使用废气清除系统。 - 加入20 µL对数中期的 E. coli (1 × 10²-3 将CFU重悬于无菌PBS中)或无菌PBS(载体对照)使用无菌200 µL移液器吸头注入阴道图1). 使用新的无菌200 µL吸头,将20 µL的20% Pluronic F127凝胶送入阴道,以防止细菌泄漏。用无菌纱布蘸取奎宁粉末涂抹于阴户开口处,以阻止小鼠清理细菌悬液。记录处理的日期和时间。
注意:所使用的菌落形成单位(CFU)基于滴定实验确定,以获得预期表型(早产但产生活胎仔鼠)。CFU 可通过系列稀释后在 LB 琼脂平板上接种培养来测定。29. - 将动物单只饲养于独立通风笼具(IVC)中,在将笼具送回饲养室前使其从麻醉中恢复;明确标记该笼具为生物危害物品。持续监测动物,直至其恢复正常行为。
注意:该操作过程不应超过5分钟,动物应在2-5分钟内迅速恢复。
- 在E16.5天,通过吸入异氟烷(5%诱导,1.5%维持,以氧气为载体)对怀孕小鼠进行麻醉。随后转移麻醉气流,然后 将动物固定于鼻罩,使雌性动物呈俯卧位。通过脚趾夹捏反射消失确认麻醉效果,并维持异氟烷浓度为手术所需的最低百分比。
- 妊娠结局的测量
- 设置 通过在每个笼子外部安装一台摄像机来对小鼠进行闭路电视(CCTV)监测,以观察分娩迹象和幼崽产出情况。记录从阴道内给药开始至分娩完成所用的时间,单位为小时。 E. coli 或 PBS(步骤 1.2.2)至第一只幼崽娩出。
- 记录分娩时活产/死亡仔鼠数量,并计算每窝仔鼠的存活率百分比。每天观察母鼠及仔鼠,记录仔鼠出生后7天内的存活情况,并确保母鼠顺利恢复。在此期间进行其他测量,如仔鼠体重和体长。
注意:分娩征兆包括理毛行为增加、原地转圈,以及伸展并踢出后肢。由于这是活细菌感染,母鼠会在感染后逐渐出现症状(通常在处理后24小时)。雌性小鼠应在分娩后恢复健康,但如果其在分娩后仍持续表现出感染症状,未筑巢,或在产后第一天内未哺育幼崽,则应采用一类安乐死方法(如暴露于CO₂)人道处死动物。2 浓度逐渐升高,并通过颈椎脱位确认死亡。
- 生物发光成像
- 细菌接种后,在24 h和48 h对雌性小鼠进行成像,以追踪感染的扩散情况,具体步骤如下所述。在出生后第(P)0天至第14天对仔鼠进行成像,无需麻醉。
- 打开成像软件后, 点击 初始化 并等待 相机达到工作温度 (温度条将变为 绿色和 "锁定")。勾选该复选框 用于 发光成像,以及 确认 激发滤光片 是 设定为 封闭 以及 发射滤光片 设定为 打开.
- 通过吸入麻醉成年雌性 异氟烷(诱导用5%,维持用1.5%) 在氧气中。将动物置于仰卧位 在 生物发光成像仪(配备 加热载台)的同时维持麻醉状态 小鼠。选择 自动 曝光时间或手动设置 曝光时间 (曝光范围: 1分钟 - 5分钟成像完成后,将动物放回笼中,使其从麻醉状态中恢复,然后再送回饲养室。
- 为了定量测量光子辐射度,在小鼠图像上选择感兴趣区域(ROIs),并记录每秒每平方厘米每球面度的光子数(photons∙(second-cm²∙sr)⁻¹)。2)-1∙sr-1).
2. 胎儿和新生儿组织分析
- 围产期组织采集
- 在E18.5天,通过逐渐升高CO浓度处死母鼠2 浓度,并通过颈椎脱位确认死亡后,进行小型剖腹手术以取出子宫;然后用剪刀在子宫上做切口。
- 若采集羊水,需在胎膜上做一个小切口,使用巴斯德吸管或无针头注射器收集液体。
- 用镊子一只手握住子宫外侧胎盘附着的位置,另一只手用弯头镊子轻轻分离组织,将胎盘从子宫内壁上剥离,小心引导连同胎膜和胎盘一起的胎儿从子宫中取出。再次用双手各持镊子,轻轻压住胎盘,并在胎膜与胎盘连接处夹住并拔除胎膜(确保其完全脱落)。
- 现在组织已分离,收集所需的妊娠组织(如子宫、胎盘、胎膜、宫颈和阴道),并解剖胎儿组织 (例如脑、肺和肠道)。
- 立即在干冰或液氮中速冻组织,和/或用多聚甲醛(PFA;4% PBS溶液)固定组织。
- 将速冻组织置于 -80 °C 保存,并将组织固定 24–48 小时;随后在 4 °C 下保存于 30% 蔗糖溶液中。
警告:PFA 具有可燃性,可能引起眼睛、皮肤和呼吸道刺激。配制 4% 溶液时应在生物安全柜中进行,操作时须穿戴适当的个人防护装备。
- 出生后组织采集
- 在P7天,使用异氟烷(5%用于诱导,1.5%用于维持,以氧气为载体)对幼鼠进行麻醉。
- 通过切开右心房并从左心室注入10 mL PBS进行放血和组织灌注。剪下尸体头部,使用无菌剪刀和镊子取出脑组织和肺组织。按照上述方法处理并储存组织。
注意:母体和胎儿的速冻组织可通过qPCR、ELISA和蛋白质印迹法分析炎症因子及其他介质。这些技术的实验方案可从试剂生产商处或其它出版物中获取。25,30,31.
- 胎儿与新生儿脑组织的冷冻切片
- 使用刀片切除小脑,以形成一个平整的表面,并将组织置于干冰上速冻。将冷冻组织用最佳切割温度(OCT)包埋剂固定在样本托上,并在组织表面覆盖一层薄薄的OCT包埋剂。静置冷冻(1–2分钟)。
- 使用设定在 -20 °C 的冷冻切片机,确保杠杆锁定后装入样本架。精细调整组织位置并固定。修整组织,从胼胝体融合处开始在载玻片上收集组织切片,并立即置于干冰上冷冻。每份组织连续切取 50 张 40 µm 的切片。
注意:请小心锋利的刀片。 - 将冷冻切片置于载玻片上,于 -80 °C 保存。
- 免疫组织化学
注意:以下方案可用于鉴定星形胶质细胞(胶质纤维酸性蛋白;GFAP)、小胶质细胞(同种异体移植炎症因子1;IBA-1)和中性粒细胞(淋巴细胞抗原6家族成员G;Ly6G)。抗体信息见于 表1.- 选择每个大脑的五个切片,切片间距为 400 µm,以便评估大脑不同深度的多个脑区。用一滴去离子水对冷冻切片进行复水处理2用两把精细的刷子展开并铺平组织。在风扇下干燥 20–30 分钟。使用疏水性(PAP)笔,在不接触组织的情况下,小心地在其周围画圈。
- 第1天,为一个50 mL比色皿(可容纳15张载玻片)配制4%甲醛(FA):将5.4 mL甲醛加入50 mL 0.1 M磷酸盐缓冲液(PB)中。将载玻片浸入甲醛溶液中固定5分钟,以固定冷冻切片,促进切片与载玻片的黏附,并固定抗原。
警告:甲醇具有可燃性,可引起眼睛、皮肤和呼吸道刺激。配制4%溶液时应在生物安全柜中操作,并穿戴适当的个人防护装备。 - 将0.4 g BSA加入400 mL 0.1 M PB中,配制0.1%牛血清白蛋白(BSA)溶液。将切片浸入0.1 M PB中清洗2次,每次约3秒,随后用BSA溶液清洗1次,每次约3秒。 将载玻片存放于
含有 BSA 的比色皿,待使用时取出。 - 通过用去离子水润湿纸巾来制备湿度箱2O,并将它们放入室中,沥干多余的水分。
- 配制5%山羊血清(50 μL山羊血清加入1 mL缓冲液中) 0.1 M PB 溶液的毫升数)。小心擦干载玻片周围的区域 用滤纸轻轻吸干组织切片,确保PAP 笔式注射器边界完好后,加入 50 μL 的 每组织切片加入溶液 在湿盒中孵育30分钟。
- 用干净的纸巾轻拍载玻片以去除血清,然后加入用 BSA 稀释的一抗(所用抗体及稀释比例见下文) 表1)。4 ℃过夜孵育 oC.
- 第2天,将二抗在小鼠血清中孵育(参见 表1) 37℃孵育30分钟 oC,并加入BSA(1:100稀释)(例如,5 mL BSA + 100 µL 小鼠血清 + 50 µL 二抗)。
- 将切片浸入BSA中洗涤2次(每次约3秒),再在0.1 M PB中洗涤1次。将切片置于含有BSA的比色皿中,用吸水纸轻轻吸干每张组织切片周围的边缘。每张组织切片上加50 µL二抗溶液,在湿盒中孵育1小时。
- 将10 µL A液和10 µL B液加入1 mL 0.1 M PB中,配制0.1%稀释度的亲和素-生物素复合物(ABC)。将切片浸入BSA中2次(每次约3秒),再浸入0.1 M PB中1次,随后将切片置于含有0.1 M PB的比色皿中。用吸水纸轻轻吸干切片,每张切片加50 µL ABC溶液,在湿盒中孵育1小时。
- 配制二氨基联苯胺(DAB)溶液。按每比色皿25 mg称取DAB,溶于50 mL 10 mM PB缓冲液中,用4号滤纸过滤。
警告:DAB 具有健康危害性,可能具有生殖细胞致突变性和致癌性。请穿戴适当的个人防护装备,并安全处置。 - 用 10 mM PB 缓冲液将载玻片漂洗 3 次,每次 3 秒,然后将其放入含有 10 mM PB 缓冲液的比色皿中。加入过氧化氢(H₂O₂)2O2) 加入 DAB 溶液后,立即倒入新的比色皿中(每份加入 16.7 µL H2O2 每比色皿)。将切片移入DAB比色皿中,孵育约3分钟(最长不超过5分钟),期间在显微镜下持续观察染色强度。
警告:H2O2 可能刺激眼睛、皮肤和喉咙。请佩戴适当的个人防护装备。 - 用10 mM PB缓冲液洗涤载玻片一次(3秒),再用去离子水洗涤两次2O,并让切片晾干。将干燥的切片浸入二甲苯中3次。在盖玻片上滴加一滴DPX封片剂,然后将其覆盖在组织切片上,注意避免产生气泡。
警告:二甲苯和DPX具有可燃性,可能引起眼睛、皮肤和呼吸道刺激。应在生物安全柜中操作,接触时务必佩戴手套。
- 尼氏染色
- 第1天,用dH₂O复水并铺展组织2O. 通过将5.4 mL甲醛加入50 mL 0.1 M PB中配制4%甲醛溶液,立即使用。将载玻片在4%甲醛中孵育过夜。
- 第2天,将切片从4% FA转移至70%乙醇(EtOH),并过夜孵育。
- 在50 mL密闭锥形管中,将4 g焦油紫(Cresyl Violet)溶解于40 mL 100% EtOH中,颠倒混匀15 min,随后将该溶液加入360 mL温热的dH₂O中2O,并在搅拌板上混合20分钟。使用前过滤溶液。
- 第3天,按照上述染色步骤进行操作 表2,用DPX封片剂封片。
- 末端脱氧核苷酸转移酶dUTP缺口末端标记(TUNEL)
- 在 dH₂O 中重水化并铺展组织2然后将切片在4% FA中孵育5分钟。将切片转移至H溶液中2O2 和甲醇(CH3OH) (1:10),孵育15分钟。用0.1 M PB缓冲液漂洗切片2次,每次3秒,然后将切片放入含有0.1 M PB缓冲液的比色皿中。
- 在冰上根据制造商说明书配制TUNEL溶液。将溶液加入载玻片上(每张组织切片50 µL),于37℃湿盒中孵育 o2小时,温度为C。
- 孵育1小时后,按照步骤2.4.9所述配制ABC溶液,并在室温下孵育。
- 孵育2小时后,将切片转移至TUNEL终止液(300 mM NaCl,30 mM柠檬酸钠)中,孵育10分钟,随后将切片浸入10 mM PBS溶液中洗涤,每次3秒,重复3次。接着将切片在ABC溶液中孵育1小时。
- 配制硫酸钴溶液(1.55 g无水CoSO₄)4 在 100 mL 的 dH₂O 中2O) 和六水合氯化镍(2.38 g NiCl2·6H2O 在 100 mL 的 dH₂O 中2O) 配制DAB Co-Ni溶液(10 mM PB + 25 mg DAB + 1 mL/100 mL Co + 1 mL/100 mL Ni)。在真空条件下过滤该溶液,并避光保存。在将DAB溶液倒入比色皿前立即加入16.7 µL H2O2 每50 mL比色皿。
- 孵育1小时后,将切片转移至DAB比色皿中,室温下孵育约3分钟,并持续观察染色强度。随后将切片移入含10 mM PB的比色皿中以终止反应。用去离子水浸洗2次,每次3秒。2O,然后在用DPX封片前使组织切片干燥。
- 苏木精和伊红染色(H&E)&E)
- 在 dH₂O 中复水并铺展组织2O,并让切片自然晾干。
- 将切片浸入苏木精染液中染色2分钟。
注意:苏木精可引起眼睛和皮肤刺激。请穿戴适当的个人防护装备。 - 将载玻片在流动的自来水中冲洗5分钟,用酸性酒精脱色1秒,再用自来水冲洗。
- 用0.5%伊红(1.5 g溶于300 mL 95% EtOH)复染30秒。
警告:伊红具有可燃性,可引起眼睛和皮肤刺激。请在生物安全柜中配制溶液,并穿戴适当的个人防护装备。 - 依次使用梯度浓度的乙醇对组织切片进行脱水:50%、70%、95%,最后100%乙醇,每种浓度各处理3分钟。将切片转移至二甲苯中,处理2次,每次5分钟。用DPX封片。
3. 神经病理学与肺损伤的组织学和免疫组织化学评估
注意:可对以下脑区进行评估:大脑皮层、梨状皮层、外囊、纹状体、海马和丘脑(图2)。对于E18.5胚胎脑,还可包括胼胝体,因为此时细胞分化尚未完成,胶质细胞也未迁移至所有脑区。评估者应盲法知晓处理分组。
- TUNEL+ 细胞死亡
- 使用普通显微镜,在20倍放大倍数下双侧计数所有脑区中TUNEL染色阳性的细胞(图2)。
- 每脑区随机选择三个光学视野进行评估,并计算每个脑区的平均细胞数。
- 尼氏染色形态学评估
- 使用彩色相机在1倍放大倍数下拍摄整块组织图像,保存为TIFF文件或其他所需格式。将图像导入ImageJ进行进一步分析。
- 勾画出感兴趣脑区(如皮层和海马)的轮廓,并使用手绘工具进行测量(图2)。
- 为获得组织测量值,应用以下公式:(mm2 × 400 µm) = 体积 × 100(经修订32)。
- 小胶质细胞分支化指数
- 使用配备0.049 mm × 0.049 mm方格的显微镜,在40倍放大倍数下计数方格内IBA-1+细胞胞体的数量(C),以及穿过网格线的平均分支数(B)。对图2所示每个脑区随机选择三个视野进行该操作(见图3)。
- 使用公式(B2/C)计算小胶质细胞分支化指数。
- GFAP染色强度的光学亮度值
- 使用指定软件(材料表)和彩色相机在40倍放大倍数下,每脑区随机采集三个视野图像(图2)。按下Ctrl+H获取显示均值和标准差(SD)的直方图。将均值和SD值记录于电子表格中。同时拍摄仅周围玻璃区域(无组织)的对照图像,并如前记录其均值和SD值。
- 使用以下公式在电子表格中计算光学亮度值(OLV):
OLV = (玻璃的均值 − 玻璃的标准差)− ([每张图像均值 − 每张图像标准差] 的均值)
注:例如:
周围玻璃
均值 ± SD = 143.5 ± 8.56
脑区(例如皮层)
1. 136.7 ± 10.6
2. 140.6 ± 10.4
3. 137.4 ± 11.3
OLV = (143.5 - 8.56) - (均值[(136.7 - 10.6), (140.6 - 10.4), (137.4 - 11.3)])
OLV = 134.94 - 127.47
OLV = 7.47 - 对每只动物每个区域的数值取平均,再对每个实验组进行平均。
- 肺组织形态学评估
- 以40倍放大倍数拍摄H&E切片图像(每张切片三个光学视野,测量每视野内的气腔),保存为TIFF格式(或等效格式),并将图像导入ImageJ。随机选择能代表整个肺切片的视野。
- 使用手绘工具勾画气腔轮廓并记录测量结果(图4A)。计算每视野内三个气腔的平均值,然后计算每张切片三个视野之间的平均值,最终计算每份样本三张切片之间的平均值。
- 肺组织中中性粒细胞浸润
- 使用彩色相机在40倍放大倍数下对每份肺组织切片采集三次样本图像,将原始文件保存为TIFF文件或其他所需格式。将图像导入ImageJ,并手动计数同一肺组织三个视野中的单个中性粒细胞。计算每肺组织的中性粒细胞平均数量。
结果
本方案介绍了一种上行性阴道感染的小鼠模型,并描述了评估新生鼠神经病理学和呼吸系统结局的方法。诱导上行性阴道感染的操作应迅速(在5分钟内完成),小鼠在数分钟内即可恢复。母鼠在接种后约24小时出现感染症状25,包括活动迟缓、竖毛和蜷缩姿势。感染组小鼠的平均分娩时间约为大肠杆菌(E. coli)接种后40.3小时(PBS对照组平均为52.7小时),发生在妊娠第18.5天(E18.5),而PBS对照组则在妊娠第19.5天(E19.5)足月分娩31。每窝活产仔鼠比例因感染而下降(从100%降至71.4%),其出生后7天内的存活率也相应降低(图5)25。当使用生物发光细菌时,可通过成像技术追踪母鼠及仔鼠体内感染的扩散情况。接种后18小时内,可在子宫、胎膜、胎盘以及部分胎儿体内检测到细菌(图6);通过qPCR和ELISA检测发现,这些组织以及围产期仔鼠的脑、肺和肠道等组织中的炎症介质表达上调25,29,31。
采用组织学和免疫组织化学方法,对胎儿和新生仔鼠进行了一系列神经病理学评估,包括形态学、细胞死亡、小胶质细胞活化和星形胶质细胞活化等25,31,33。肺组织也可进行评估(图4 和 图7)。TUNEL染色阳性提示DNA降解,是细胞死亡的晚期阶段34。在孕期暴露于E. coli感染的仔鼠脑中,我们观察到皮层、梨状皮层、外囊、海马和丘脑区域的TUNEL染色显著增加(图8A、B)31。IBA-1标记的小胶质细胞是脑内的常驻免疫细胞,可根据其形态学状态进行分类:分支状形态提示静息表型,而活化和吞噬状态的细胞则呈阿米巴样或圆形35。因此,我们并未仅定量小胶质细胞数量,而是提出一种通过评估其表型来反映其活化状态的策略。与PBS组相比,E. coli处理组仔鼠的外侧皮层和纹状体中IBA1+细胞的分支结构增加(图8C、D)31。GFAP标记的反应性星形胶质细胞通常与炎症和神经系统损伤相关,在E. coli处理组仔鼠的梨状皮层和外囊区域表达增加(图8E、F)31,36,37。尼氏染色可用于评估脑结构的总体形态学变化;焦油紫(Cresyl violet)是一种标准的神经元组织学染色方法,可标记细胞核外RNA颗粒和细胞核。在E. coli处理组中,我们观察到皮层厚度减小(图9)31。同样,H&E染色可分别标记细胞核和细胞质,用于评估肺组织的形态学变化(图4)31。在暴露于E. coli的小鼠中,我们观察到肺泡腔增大,以及Ly6G+中性粒细胞数量增加,提示存在炎症反应(图7)31。
对于数据分析,若数据呈正态分布,则采用非配对 t-检验分析分娩时间。对于活产仔鼠百分比数据,需首先进行反正弦平方根转换,将范围限定在0至1之间的比例分布转换为正态分布,这是进行 t-检验的前提条件之一。仔鼠存活率采用Log-rank(Mantel-Cox)检验进行分析。对于组织学和免疫组织化学分析,根据数据类型及其是否呈正态分布,采用Mann-Whitney U 检验或采用Welsh校正的多次t检验。为确保足够的统计效能,建议每处理组至少使用五只孕鼠。
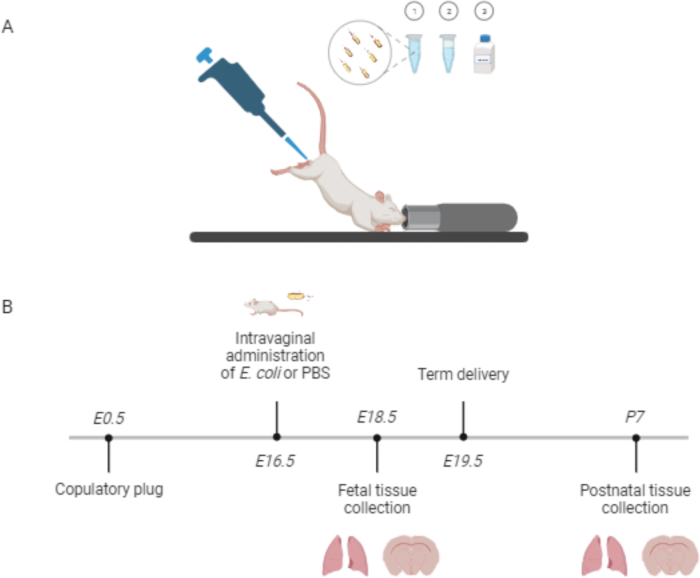
图 1:阴道内给予Escherichia coli及处理时间线,用于在小鼠中诱导早产和新生儿发病。 (A) 使用无菌 200 µL 移液器吸头将E. coli [1] 和 20% Pluronic gel F127 [2] 注入小鼠阴道。将奎宁粉末添加至阴道口 [3]。(B) 在胚胎第 16.5 天将E. coli 送入阴道。可在胎儿期或新生儿期采集肺和脑等组织。缩写:EN = 胚胎第 N 天;PN = 出生后第 N 天;PBS = 磷酸盐缓冲盐水。请点击此处查看该图的放大版本。
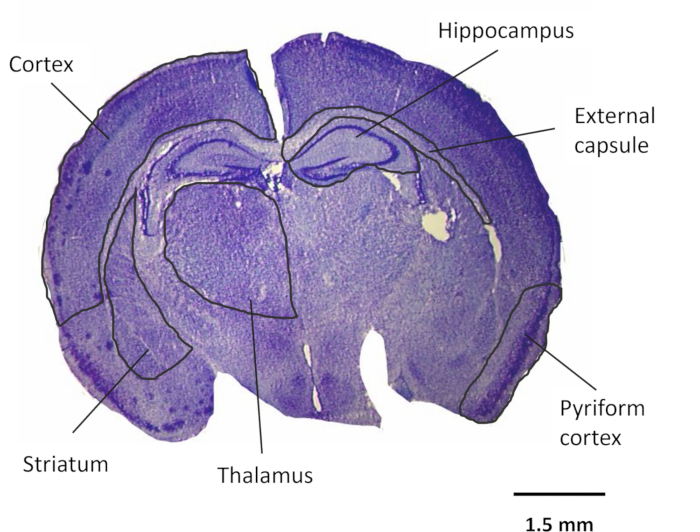
图 2:用于评估神经病理学的脑区。新生幼鼠脑组织尼氏染色示例及可用于评估神经病理学的脑区。所有脑区均可用于TUNEL、IBA-1和GFAP检测。我们选择使用尼氏染色评估皮层和海马的形态学。放大倍数:1x。比例尺 = 1.5 mm。缩写:TUNEL = 末端脱氧核苷酸转移酶dUTP缺口末端标记法;IBA-1 = 同种异体移植炎症因子1;GFAP = 胶质纤维酸性蛋白。请点击此处查看该图的放大版本。
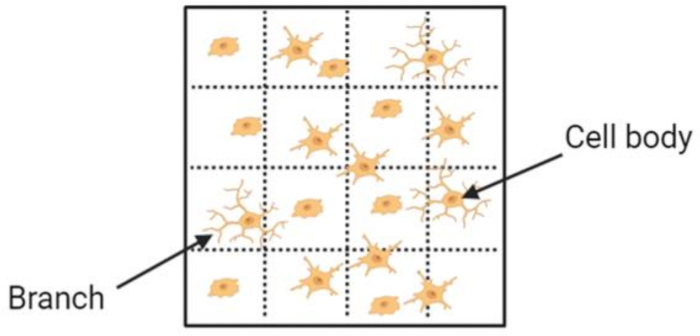
图3:IBA-1阳性染色及分支指数评估。为量化IBA-1+细胞的分支指数,需统计网格内的细胞体数量,以及穿过水平和垂直网格线的平均分支数。缩写:IBA-1 = 同种异体移植物炎症因子1。 请点击此处查看该图的放大版本。
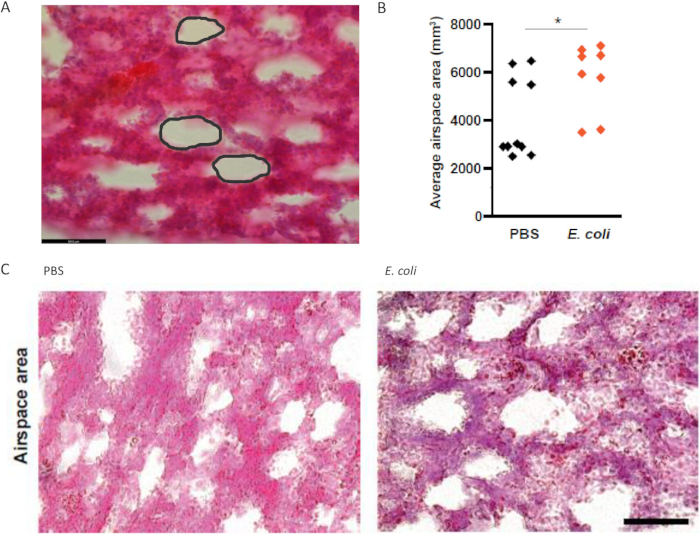
图 4:仔鼠肺部气道空间测量(H&E 染色)。 (A) 使用 ImageJ 中的徒手工具勾勒气道空间并进行测量。(B) 与 PBS 组相比,暴露于 E. coli 的仔鼠气道空间平均面积增加。(C) 子宫内暴露于 PBS 和 E. coli 的仔鼠肺部代表性 H&E 染色图像。放大倍数:40×。比例尺 = 59.5 µm。缩写:H = 苏木精;E = 伊红。n = 2,来自 4 窝仔鼠。*p < 0.05。本图改编自 Boyle 等人31。 请点击此处查看该图的放大版本。
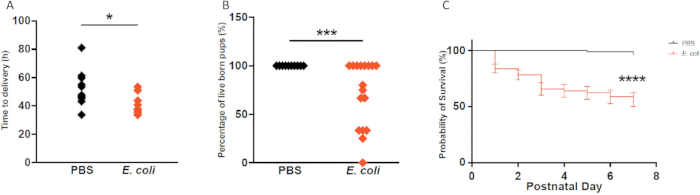
图 5:阴道内接种 E. coli 对分娩时间及仔鼠存活率的影响。(A)在存在 E. coli 的情况下,分娩时间缩短。(B)活产仔鼠的比例显著降低,且(C)暴露于 E. coli 的仔鼠存活率下降。分娩时间:每组 n = 8–10 窝;活产仔鼠:每组 n = 10–17 窝;仔鼠存活率:每组 n = 10–12 窝。*p < 0.05,***p < 0.001。本图改编自 Boyle 等人31。 请点击此处查看此图的放大版本。
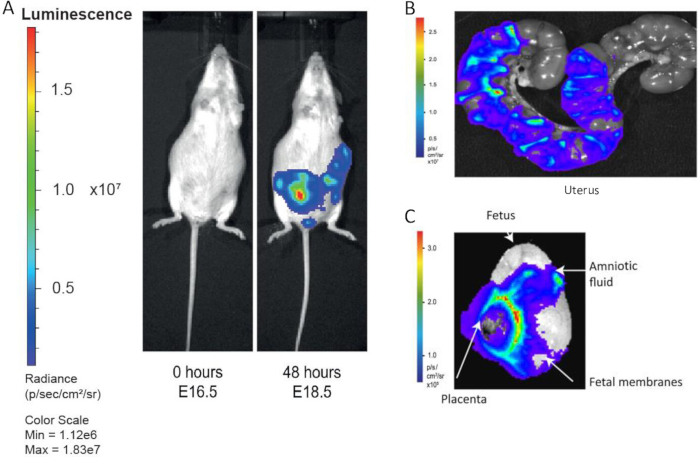
图6:利用生物发光成像监测大肠杆菌(E. coli)的扩散。(A)在48小时内,具有生物发光性的大肠杆菌(E. coli)从阴道上行至子宫角。(B)解剖显示,18小时内子宫角已发生大肠杆菌(E. coli)感染,(C)胎盘和胎儿膜也出现感染。本图改编自 Suff 等人25 和 Boyle 等人31 的研究。请点击此处查看此图的放大版本。
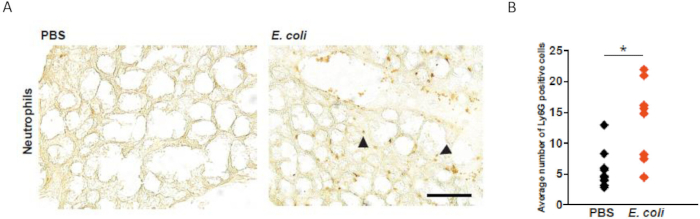
图7:胎儿肺组织中性粒细胞的Ly6G染色。(A)PBS组与E. coli暴露组胎儿肺组织中Ly6G染色(阳性:箭头所示),用于评估中性粒细胞浸润情况。(B)E. coli暴露组胎儿肺组织中Ly6G+细胞的平均数量显著增加。放大倍数:40×。比例尺 = 59.5 µm。每组n = 10,来自5窝胎鼠。*p < 0.05。缩写:Ly6G = 淋巴细胞抗原6复合物基因座G6D。本图改编自Boyle等人的研究31。请点击此处查看本图的高清版本。
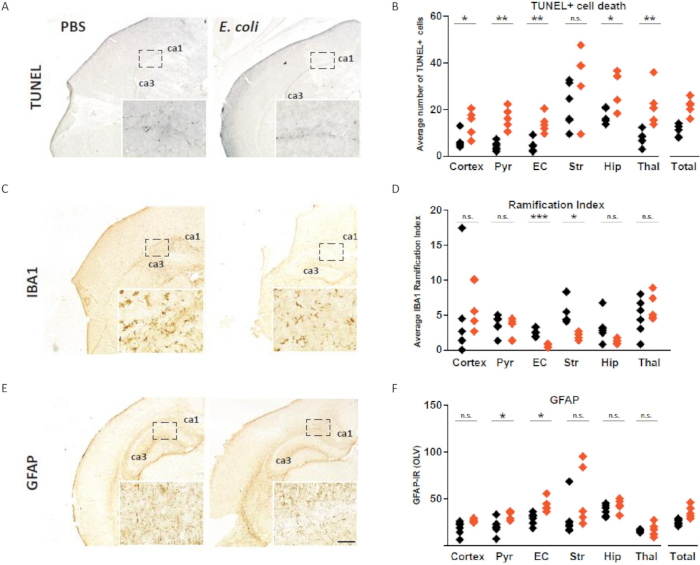
图 8:TUNEL、IBA1 和 GFAP 染色示例。 (A)经 PBS 或 E. coli 处理的新生幼鼠脑组织中用于检测细胞死亡的 TUNEL 染色。(B)在皮层、梨状皮层、外囊、海马和丘脑中,TUNEL+ 细胞的平均数量增加。(C)PBS 组与 E. coli 组中小胶质细胞的 IBA1 免疫组织化学染色。(D)作为小胶质细胞活化指标的分支指数,在 E. coli 处理组幼鼠的外囊和纹状体中升高。(E)星形胶质细胞的 GFAP 染色,(F)在 E. coli 处理组幼鼠的梨状皮层和外囊中表达增加。比例尺 = 59.5 µm。缩写:GFAP = 胶质纤维酸性蛋白;TUNEL = 末端脱氧核苷酸转移酶 dUTP 缺口末端标记法;Pyr = 梨状皮层;EC = 外囊;Str = 纹状体;Hip = 海马;thal = 丘脑;total = 所有区域;CA = 阿蒙角;OLV = 光学亮度值。免疫组织化学分析:每组来自 5 窝,n = 5–7。*p < 0.05,**p < 0.01,***p < 0.001,n.s. — 无显著性差异。本图改编自 Boyle 等人31。 请点击此处查看本图的高清版本。
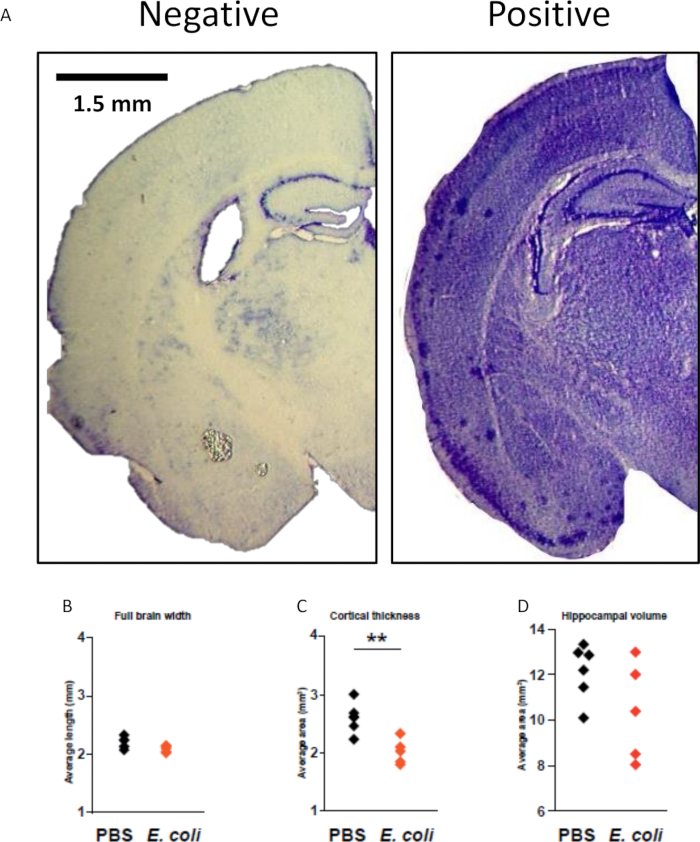
图9:尼氏染色及形态学评估的阳性与阴性示例。(A)对新生幼鼠脑组织进行尼氏染色,以评估组织结构和形态。(B)脑宽度未受影响,但(C)暴露于E. coli的幼鼠皮层厚度降低。(D)海马体积无显著差异。放大倍数:1x。比例尺 = 1.5 mm。每组n = 5–7,来自5窝幼鼠。**p < 0.01。本图改编自Boyle等人的研究31。请点击此处查看该图的高清版本。
| 一抗 | 稀释比例 | 二抗/稀释比例 | 稀释比例 |
| Rabbit anti-GFAP | 1:6000 | Goat anti-rabbit | 1:100 |
| Rabbit anti-IBA1 | 1:1000 | Goat anti-rat | 1:100 |
| Mouse anti-Ly6G | 1:1000 | Goat anti-rabbit | 1:100 |
表1:免疫组织化学所用抗体。
| 步骤 | 试剂 | 时间(分钟) |
| 1 | 尼氏染色液 | 10 |
| 2 | 新鲜蒸馏水 | 2 |
| 3 | 新鲜蒸馏水 | 2 |
| 4 | 70% 乙醇 | 2 |
| 5 | 90% 乙醇 | 2 |
| 6 | 96% 乙醇 | 2 |
| 7 | 含3-5滴冰醋酸的96% 乙醇 | 2-5(需持续观察) |
| 8 | 100% 乙醇 | 2 |
| 9 | 异丙醇 | 2 |
| 10 | 二甲苯 | 2 |
| 11 | 二甲苯 | 2 |
| 12 | 二甲苯 | 2 |
表2:尼氏染色步骤。
讨论
本文描述了一种通过细菌经阴道上行感染诱导早产及新生儿发病的新型小鼠模型。我们选用E. coli K1,因其是新生儿败血症和脑膜炎的常见病因,并可由母体垂直传播给胎儿38,39,40。该模型成功的关键在于使用Pluronic温敏凝胶,该凝胶可防止细菌悬液从阴道泄漏,从而促进感染建立并上行至子宫。由于本模型使用来源于败血症分离株的活菌,因此必须密切监测母鼠状态27。若动物出现拒动、拒食或无法照顾仔鼠(如忽视筑巢和哺乳)等情况,应立即实施人道处死。
通常,与感染相关的症状在分娩后24小时内会消退。还需要注意的是,不同血清型的大肠杆菌(E. coli)及其他细菌菌株对妊娠时长、感染/炎症程度以及新生儿结局的影响各不相同。我们建议在使用新的细菌血清型或菌株时,先进行不同菌落形成单位(CFU)的预实验,以确定产生目标表型所需的最低浓度,并设定严格的伦理终点,以防止动物遭受不必要的痛苦。在递送活体病原体时应格外谨慎;在建立上行性感染模型时,应参考已有文献以确保这些生物体的合理使用。
小鼠品系同样重要,因为它们的免疫系统存在差异。例如,在 C57BL/6 小鼠中进行该模型时,所使用的感染时间和菌落形成单位(CFUs)所产生的结果并不相同。我们选择使用 C57BL/6 Tyrc-2J 小鼠,因为时间进程实验显示,与 CD-1、BALB/c 和 C57BL/6 小鼠相比,该品系表现出显著更高的感染程度。此外,有证据表明黑色毛发会淬灭生物发光信号,而生物发光信号是本模型中一个有用的可测量指标29。细菌接种的最佳妊娠天数也可能因病原体和小鼠品系的不同而有所差异。目前早产前胎膜破裂(PTB)的临床前模型存在极大的异质性;因此,为了获得可重复的结果,必须充分考虑这些变量17。
另一个需要考虑的因素是动物暴露于麻醉剂的时间长度。由于妊娠期间过长时间的麻醉暴露与幼崽的神经毒性相关,因此必须尽量缩短麻醉时间(例如,最长不超过5分钟),并始终设置对照组,使其暴露于相同的环境并接受载体物质处理41,42,43。适用于该模型的其他对照组包括:未处理组、仅进行阴道给予Pluronic凝胶组,以及仅进行麻醉组。
免疫组织化学作为一种实验工具被广泛用于鉴定不同的蛋白质和细胞,可用于表征脑组织的结构与连接性。本文介绍了如何分析与神经炎症及神经系统损伤相关的关键细胞类型,同时提供了评估细胞凋亡的方法以及可用于测量脑和肺组织形态的组织学染色技术。为确保这些实验方案成功实施,需注意若干关键因素:首先应谨慎使用PAP笔,若PAP笔接触组织,染色将失败;而若画圈范围过宽,则切片可能在过夜过程中干燥。同样,湿盒必须保持湿润,以防止切片脱水。
进行尼氏染色时,冰醋酸步骤最为关键,需要持续观察切片。当脑部主要结构变得可见时,应立即把切片转移至乙醇中以终止反应。我们选择评估大脑皮层和海马体,因为在人类早产新生儿及其他动物模型中已有报道显示皮层变薄和海马体积减小,但其他脑区也可用于形态学变化的评估44,45,46,47。此外,还需密切注意DAB染色的显色过程,显色时间应严格控制,并在不同实验间保持一致。
由于免疫组织化学结果难以量化,通常被认为具有主观性,因此数据分析是其最常见的局限性。尽管胶质纤维酸性蛋白(GFAP)分析采用计算机辅助的光密度测量来完成,但染色结果的不一致性仍可能影响这些测量。此外,脑和肺组织形态学评估依赖于观察者主观判断的手工徒手测量。为避免不一致,我们会在短时间内重复这些评估两次。为进一步减少任何偏倚,评估者必须对处理分组保持盲法至关重要。免疫反应性过低也是一个限制因素。信号缺失可能提示目标抗原不存在,也可能源于实验方案失败。为解决这一问题,我们尽可能包含一个可作为阳性对照的组织样本,并在观察到信号微弱或缺失时重复染色步骤,以确保该结果并非由实验误差所致。
除了上述描述的实验方案外,还可通过qPCR和ELISA对母体、胎儿及新生儿组织进行免疫学分析。我们观察到,暴露于感染的动物体内炎症相关的mRNA和蛋白质水平升高25,31,48。我们推测,我们在组织学上所展示的新生儿神经病理学改变可能是胎儿脑、肺和肠道炎症所致25,31。我们已开展的其他神经病理学评估包括使用髓鞘碱性蛋白(MBP)检测髓鞘形成情况,以及使用NeuN标记神经元细胞核25,31。此外,还可检测中性粒细胞和小胶质细胞的其他标志物,以更深入地了解这些细胞在宫内感染暴露后的表型特征和行为变化in utero49,50。另外,还可进行行为学测试,以评估感染对子代的长期影响。
该模型并非没有局限性。例如,我们观察到不同窝及同窝小鼠之间的病理学存在变异。这可能是由于使用了活的细菌,导致感染的扩散无法控制。因此,感染向上蔓延至子宫角的模式和范围各不相同,且常呈不对称分布。另一个局限性在于大肠杆菌(E. coli)的致病性,有时会导致母鼠病情过重而无法照顾幼崽。此外,小鼠并非肺损伤的最佳模型,因为小鼠的肺泡形成发生在出生后,而人类则发生在产前51。我们在采集样本时未能充分膨胀肺组织,这可能影响了实验结果。然而,我们的结果与新生儿支气管肺发育不良(BPD)动物模型中观察到的变化一致52,53。
该模型重现了假定的人类病理状态,即细菌感染从阴道上行至子宫,从而诱发早产。在我们首次发表该模型后,其他研究者已成功复制或建立了类似模型,进一步凸显了该方法的可重复性与相关性19,54。至关重要的是,与其他模型不同,该模型能够表现出早产新生儿常见的多种并发症。这可能归因于所使用的细菌菌株与新生儿败血症具有特异性关联。脂多糖(LPS)是动物模型中最常用于诱导早产的物质,但其对仔鼠具有致死性,因而无法评估新生儿结局18。其他上行感染模型在产生存活仔鼠或展示新生儿发病方面也存在困难19,20,21,22,23,24,55,56。像我们所描述的这类具有临床相关性的动物模型,对于理解早产的病理生理机制以及开发可改善新生儿结局的创新干预措施至关重要。
披露
作者无相关利益冲突披露。
致谢
Escherichia coli K1 A192PP-luxABCDE 由伦敦大学学院 Peter Taylor 教授惠赠。图1 和 图3 使用 BioRender.com 绘制。本研究获得惠康基金会临床 研究职业发展奖学金 222970/Z/21/Z (N.S.)、Action Medical Research 与 Borne 基金会资助 GN2647(N.S.、S.N.W. 和 D.P.),以及 Wellbeing of Women 基金会资助 RG2365 (A.K.B.、N.S.、M.H.、S.N.W. 和 D.P.)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 抗GFAP,兔源 | Agilent Technologies | Z033429-2 | |
| 抗IBA1,兔源 | Wako | 019-19741 | |
| 抗Ly6G,小鼠源 | BioLegend | 127601 | |
| AVT-Horn 184 3CCD相机 | Sony | ||
| 生物素-16-dUTP | Merck | 11093070910 | |
| 硼硅酸盐玻璃矩形盖玻片 | FisherScientific | 12363128 | |
| 焦油紫乙酸盐 | ThermoFisher Scientific | 405760100 | |
| 冷冻切片机 CM1900 | Leica | ||
| 玻璃比色皿 | Merck | BR472700 | |
| 二氨基联苯胺(DAB) | Generon | 40480004-3 | |
| 解剖镊,不锈钢,10 cm,带齿,弯型 | World Precision Instruments Ltd | 15915 | |
| 解剖镊,不锈钢,10 cm,带齿,直型 | World Precision Instruments Ltd | 15914 | |
| 解剖剪,10 cm长,直型 | World Precision Instruments Ltd | 14393 | |
| DPX | Merck | 100579 | |
| 伊红 | Sigma-Aldrich | HT110116 | |
| 4%缓冲甲醛溶液 | Merck | 100496 | |
| 山羊抗兔IgG抗体(H+L),生物素标记 | Vector Laboratories | BP-9100-50 | |
| 山羊抗大鼠IgG抗体(H+L),生物素标记 | Vector Laboratories | BA-9400-1.5 | |
| GraphPad Prism v.8 | GraphPad Software | ||
| H2O2 | Sigma-Aldrich | 7722-84-1 | |
| 苏木精 | Sigma-Aldrich | MHS16 | |
| ImageJ | 美国国立卫生研究院 | ||
| 异氟烷(IsoFlo) | Zoetis | 50019100 | |
| IVIS Lumina II 活体成像系统/活体成像软件 | Perkin Elmer/Revvity | ||
| 显微载片 | VWR | ISO8037/I | |
| Optimas 6.51 | Media Cybernetics Inc. | ||
| 多聚甲醛 | Sigma-Aldrich | 158127 | |
| 磷酸盐缓冲液(PBS) | Thermo Fisher Scientific (Life Technologies) | 14190094 | |
| Pluronic F-127 | Sigma-Aldrich | P2443 | |
| 奎宁 | Scientific Laboratory Supplies | Q0132 | |
| ReadyProbes 疏水屏障笔 | Thermo Fisher Scientific | R3777 | |
| 氢氧化钠 | Honeywell | S8045 | |
| 无水磷酸二氢钠 | FisherScientific | BP329-1 | |
| 蔗糖 | Merck | S9378 | |
| 末端转移酶 | Merck | 3333574001 | |
| VECTASTAIN ABC-HRP试剂盒,过氧化物酶 | Vector Laboratories | PK-4000 | |
| 二甲苯(组织学级) | Sigma-Aldrich | 534056 |
参考文献
- WHO. WHO: recommended definitions, terminology and format for statistical tables related to the perinatal period and use of a new certificate for cause of perinatal deaths. Modifications recommended by FIGO as amended October 14, 1976. Acta Obstet Gynecol Scand. 56 (3), 247-253 (1977).
- Liu, L., et al. Global, regional, and national causes of under-5 mortality in 2000–15: an updated systematic analysis with implications for the sustainable development goals. Lancet. 388 (10063), 3027-3035 (2016).
- Chawanpaiboon, S., et al. regional, and national estimates of levels of preterm birth in 2014: a systematic review and modelling analysis. Lancet Glob Health. 7 (1), e37-e46 (2019).
- Unicef. Levels and trends in child mortality report 2017. , Unicef. (2017).
- Blencowe, H., et al. National, regional, and worldwide estimates of preterm birth rates in the year 2010 with time trends since 1990 for selected countries: a systematic analysis and implications. Lancet. 379 (9832), 2162-2172 (2012).
- Jung, E., et al. The fetal inflammatory response syndrome: the origins of a concept, pathophysiology, diagnosis, and obstetrical implications. Semin Fetal Neonatal Med. 25 (4), 101146(2020).
- Humberg, A., et al. Preterm birth and sustained inflammation: consequences for the neonate. Semin Immunopathol. 42 (4), 451-468 (2020).
- Boyle, A. K., Rinaldi, S. F., Norman, J. E., Stock, S. J. Preterm birth: inflammation, fetal injury and treatment strategies. J Reprod Immunol. 119, 62-66 (2017).
- Romero, R., Dey, S. K., Fisher, S. J. Preterm labor: one syndrome, many causes. Science. 345 (6198), 760-765 (2014).
- Goldenberg, R. L., Culhane, J. F., Iams, J. D., Romero, R. Epidemiology and causes of preterm birth. Lancet. 371 (9606), 75-84 (2008).
- Jones, H. E., et al. Differing prevalence and diversity of bacterial species in fetal membranes from very preterm and term labor. PLoS One. 4 (12), e8205(2009).
- Cobo, T., et al. Characterization of vaginal microbiota in women with preterm labor with intra-amniotic inflammation. Sci Rep. 9 (1), 18963(2019).
- Romero, R., et al. Microbial invasion of the amniotic cavity in patients with suspected cervical incompetence: prevalence and clinical significance. Am J Obstet Gynecol. 167 (4 Pt 1), 1086-1091 (1992).
- Mendz, G. L., Kaakoush, N. O., Quinlivan, J. A. Bacterial aetiological agents of intra-amniotic infections and preterm birth in pregnant women. Front Cell Infect Microbiol. 3, 58(2013).
- DiGiulio, D. B., et al. Prevalence and diversity of microbes in the amniotic fluid, the fetal inflammatory response, and pregnancy outcome in women with preterm pre-labor rupture of membranes. Am J Reprod Immunol. 64 (1), 38-57 (2010).
- DiGiulio, D. B. Diversity of microbes in amniotic fluid. Semin Fetal Neonatal Med. 17 (1), 2-11 (2012).
- Miller, F. A., Sacco, A., David, A. L., Boyle, A. K. Interventions for infection and inflammation-induced preterm birth: a preclinical systematic review. Reprod Sci. , (2022).
- Migale, R., et al. Specific lipopolysaccharide serotypes induce differential maternal and neonatal inflammatory responses in a murine model of preterm labor. Am J Pathol. 185 (9), 2390-2401 (2015).
- Spencer, N. R., et al. Development of a mouse model of ascending infection and preterm birth. PLoS One. 16 (12), e0260370(2021).
- Pavlidis, I., et al. Cervical epithelial damage promotes Ureaplasma parvum ascending infection, intrauterine inflammation and preterm birth induction in mice. Nat Commun. 11 (1), 199(2020).
- Vornhagen, J., et al. Group B streptococcus exploits vaginal epithelial exfoliation for ascending infection. J Clin Invest. 128 (5), 1985-1999 (2018).
- Bernardini, R., et al. Neonatal protection and preterm birth reduction following maternal group B streptococcus vaccination in a mouse model. J Matern Fetal Neonatal Med. 30 (23), 2844-2850 (2017).
- Tantengco, O. A. G., et al. Modeling ascending Ureaplasma parvum infection through the female reproductive tract using vagina-cervix-decidua-organ-on-a-chip and feto-maternal interface-organ-on-a-chip. Faseb J. 36 (10), e22551(2022).
- Randis, T. M., et al. Group B streptococcus β-hemolysin/cytolysin breaches maternal-fetal barriers to cause preterm birth and intrauterine fetal demise in vivo. J Infect Dis. 210 (2), 265-273 (2014).
- Suff, N., et al. Ascending vaginal infection using bioluminescent bacteria evokes intrauterine inflammation, preterm birth, and neonatal brain injury in pregnant mice. Am J Pathol. 188 (10), 2164-2176 (2018).
- Mushtaq, N., Redpath, M. B., Luzio, J. P., Taylor, P. W. Treatment of experimental Escherichia coli infection with recombinant bacteriophage-derived capsule depolymerase. J Antimicrob Chemother. 56 (1), 160-165 (2005).
- Achtman, M., et al. Six widespread bacterial clones among Escherichia coli K1 isolates. Infect Immun. 39 (1), 315-335 (1983).
- Winson, M. K., et al. Engineering the luxCDABE genes from Photorhabdus luminescens to provide a bioluminescent reporter for constitutive and promoter probe plasmids and mini-Tn5 constructs. FEMS Microbiol Lett. 163 (2), 193-202 (1998).
- Suff, N. The use of cervical gene therapy for the prevention of infection-related preterm birth [Ph. D. Thesis]. , University College London. (2017).
- Boyle, A. K., Rinaldi, S. F., Rossi, A. G., Saunders, P. T. K., Norman, J. E. Repurposing simvastatin as a therapy for preterm labor: evidence from preclinical models. Faseb J. 33 (2), 2743-2758 (2019).
- Boyle, A. K., et al. Ascending vaginal infection in mice induces preterm birth and neonatal morbidity. Am J Pathol. 195 (5), 891-906 (2025).
- Kendall, G. S., Robertson, N. J., Iwata, O., Peebles, D., Raivich, G. N-methyl-isobutyl-amiloride ameliorates brain injury when commenced before hypoxia ischemia in neonatal mice. Pediatr Res. 59 (2), 227-231 (2006).
- Rocha-Ferreira, E., et al. Curcumin: novel treatment in neonatal hypoxic-ischemic brain injury. Front Physiol. 10, 1351(2019).
- Kyrylkova, K., Kyryachenko, S., Leid, M., Kioussi, C. Detection of apoptosis by TUNEL assay. Methods Mol Biol. 887, 41-47 (2012).
- Lier, J., Streit, W. J., Bechmann, I. Beyond activation: characterizing microglial functional phenotypes. Cells. 10 (9), (2021).
- Schmidt-Kastner, R., Wietasch, K., Weigel, H., Eysel, U. T. Immunohistochemical staining for glial fibrillary acidic protein (GFAP) after deafferentation or ischemic infarction in rat visual system: features of reactive and damaged astrocytes. Int J Dev Neurosci. 11 (2), 157-174 (1993).
- Pekny, M., Pekna, M. Astrocyte reactivity and reactive astrogliosis: costs and benefits. Physiol Rev. 94 (4), 1077-1098 (2014).
- Witcomb, L. A., Collins, J. W., McCarthy, A. J., Frankel, G., Taylor, P. W. Bioluminescent imaging reveals novel patterns of colonization and invasion in systemic Escherichia coli K1 experimental infection in the neonatal rat. Infect Immun. 83 (12), 4528-4540 (2015).
- Obata-Yasuoka, M., Ba-Thein, W., Tsukamoto, T., Yoshikawa, H., Hayashi, H. Vaginal Escherichia coli share common virulence factor profiles, serotypes and phylogeny with other extraintestinal E. coli. Microbiology (Reading). 148 (Pt 9), 2745-2752 (2002).
- Bonacorsi, S., Bingen, E. Molecular epidemiology of Escherichia coli causing neonatal meningitis. Int J Med Microbiol. 295 (6-7), 373-381 (2005).
- Hartling, L., Liang, Y., Lacaze-Masmonteil, T. Chorioamnionitis as a risk factor for bronchopulmonary dysplasia: a systematic review and meta-analysis. Arch Dis Child Fetal Neonatal Ed. 97 (1), F8-F17 (2012).
- Liang, G., et al. Isoflurane causes greater neurodegeneration than an equivalent exposure of sevoflurane in the developing brain of neonatal mice. Anesthesiology. 112 (6), 1325-1334 (2010).
- Yang, B., et al. Comparison of neurodegeneration and cognitive impairment in neonatal mice exposed to propofol or isoflurane. PLoS One. 9 (6), e99171(2014).
- Schmitz-Koep, B., et al. Decreased cortical thickness mediates the relationship between premature birth and cognitive performance in adulthood. Hum Brain Mapp. 41 (17), 4952-4963 (2020).
- Nagy, Z., Lagercrantz, H., Hutton, C. Effects of preterm birth on cortical thickness measured in adolescence. Cereb Cortex. 21 (2), 300-306 (2011).
- Dimitrova, R., et al. Preterm birth alters the development of cortical microstructure and morphology at term-equivalent age. Neuroimage. 243, 118488(2021).
- Dada, T., et al. Mouse model of intrauterine inflammation: sex-specific differences in long-term neurologic and immune sequelae. Brain Behav Immun. 38, 142-150 (2014).
- Suff, N., et al. Cervical gene delivery of the antimicrobial peptide, human beta-defensin (HBD)-3, in a mouse model of ascending infection-related preterm birth. Front Immunol. 11, 106(2020).
- McKenna, E., et al. Neutrophils: need for standardized nomenclature. Front Immunol. 12, 602963(2021).
- Jurga, A. M., Paleczna, M., Kuter, K. Z. Overview of general and discriminating markers of differential microglia phenotypes. Front Cell Neurosci. 14, 198(2020).
- Jackson, C. M., et al. Pulmonary consequences of prenatal inflammatory exposures: clinical perspective and review of basic immunological mechanisms. Front Immunol. 11, 1285(2020).
- Durrani-Kolarik, S., et al. miR-29b supplementation decreases expression of matrix proteins and improves alveolarization in mice exposed to maternal inflammation and neonatal hyperoxia. Am J Physiol Lung Cell Mol Physiol. 313 (2), L339-L349 (2017).
- Nguyen, L., et al. Sex-differences in LPS-induced neonatal lung injury. Sci Rep. 9 (1), 8514(2019).
- Zhang, Y., Edwards, S. A., House, M. Cerclage prevents ascending intrauterine infection in pregnant mice. Am J Obstet Gynecol. , (2023).
- Kammala, A. K., et al. Extracellular vesicles-mediated recombinant IL-10 protects against ascending infection-associated preterm birth by reducing fetal inflammatory response. Front Immunol. 14, 1196453(2023).
- Tantengco, O. A. G., et al. Inflammatory response elicited by Ureaplasma parvum colonization in human cervical epithelial, stromal, and immune cells. Reproduction. 163 (1), 1-10 (2021).
重印与许可
标签
