由于人体组织获取受限,肌间脂肪组织(IMAT)的生物学特性在很大程度上尚未被探索。本文介绍了一种从冷冻的人类IMAT样本中分离细胞核并构建文库的详细方案,用于单细胞核RNA测序,以鉴定这一独特脂肪储存库的细胞组成。
本文内容
摘要
摘要
肌间脂肪组织(IMAT)是一种相对研究较少的脂肪储存部位,位于肌纤维之间。IMAT 含量随年龄和体重指数(BMI)增加而升高,并与代谢性疾病及肌肉退行性疾病相关;然而,目前对 IMAT 的生物学特性及其与周围肌纤维相互作用的理解仍严重不足。近年来,单细胞和单细胞核 RNA 测序技术已为我们提供了多种人体组织的细胞类型特异性图谱。然而,由于人类活检样本获取的固有困难,人类 IMAT 的细胞组成在很大程度上仍未被探索。除了所获组织量有限外,人类 IMAT 的处理也因其紧邻骨骼肌组织和筋膜而变得复杂。脂肪细胞富含脂质的特性使其难以适用于单细胞分离。因此,单细胞核 RNA 测序是实现单细胞分辨率下高维转录组分析的最佳方法,有望揭示该脂肪库的生物学特性,包括 IMAT 精确的细胞组成。本文中,我们提供了一种针对冷冻人类 IMAT 进行细胞核分离及文库构建以开展单细胞核 RNA 测序的详细实验方案。该方案采用基于液滴的方法,可实现对数千个细胞核的分析,从而具备检测稀有及低丰度细胞类型的能力。
引言
肌间脂肪组织(IMAT)是一种异位脂肪储存库,位于肌纤维之间并环绕肌纤维分布1。正如Goodpaster等人近期综述中详细描述的那样,可利用高分辨率计算机断层扫描(CT)和磁共振成像(MRI)检测IMAT(图1A、B),其分布遍及全身各处的肌纤维周围及内部1。IMAT的含量在个体间差异显著,并受体重指数(BMI)、年龄、性别、种族和久坐行为等因素影响2,3,4。此外,在与肌肉退变相关的病理状态下常可观察到IMAT沉积5,大量研究已证实,肥胖、2型糖尿病、代谢综合征及胰岛素抵抗个体中IMAT质量增加6,7,8,9。然而,IMAT的细胞与生物学特性目前才刚刚开始被揭示。由于IMAT在体内的分布位置和含量存在较大变异,且获取难度较大,因此从这一独特的脂肪储存库中采集样本面临挑战2。此外,样本在采集过程中极易混入骨骼肌(SM)组织,使得不同组织来源的生物学贡献难以区分(图1C)。为此,单核RNA测序(snRNA-seq)技术在过去十年中受到广泛关注,成为一种理想的方法,可在单细胞分辨率水平上区分来源于IMAT和SM的基因表达模式。此外,由于脂肪细胞富含脂滴,体积较大,难以在不破坏细胞完整性的前提下解离为单细胞悬液,因此核分离技术特别适用于脂肪组织研究。最后,该技术有望发现IMAT特异性脂肪细胞的新标志物,揭示不同前体细胞群体的组成与存在情况,并可用于研究正常与病理状态下细胞组成的差异。
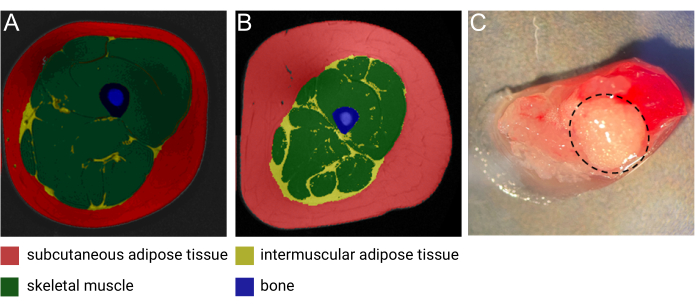
图1:IMAT图像。 来自(A)一名中年瘦削女性和(B)一名中年肥胖男性的代表性磁共振成像(MRI)图像。红色:皮下脂肪组织,黄色:肌间脂肪组织,绿色:骨骼肌,蓝色:骨骼。图像由Heather Cornnell(AdventHealth转化医学研究所)提供。(C)含有IMAT的新鲜组织样本(由黑色虚线圈出)。图像由Meghan Hopf(AdventHealth转化医学研究所)和Bryan Bergman(科罗拉多大学)提供。本图经Goodpaster等人1许可修改。 请点击此处查看此图的放大版本。
已有若干研究利用单细胞(sc)和单核RNA测序(snRNA-seq)10,针对猪、鸡和牛等畜牧业中肉类的肌内脂肪沉积(特别是IMAT)开展了分析。这些研究鉴定出多种脂肪细胞亚群以及IMAT潜在前体细胞的标志物11,12,13;然而,这些细胞组成是否同样存在于人类IMAT中尚不清楚。据我们所知,目前仅有一项研究采用snRNA-seq技术,分析了来自患有髋关节骨关节炎男性患者的、伴有脂肪浸润的人类肌肉组织的细胞异质性14。该研究报道,在大量的肌核细胞群体中存在少量脂肪细胞以及多种纤维-脂肪生成前体细胞(FAP)亚群14。本研究首次建立了一种方法,能够对从人类肌肉组织中手工分离的IMAT进行直接解剖,并利用snRNA-seq技术分析其细胞组成。
重要的是,snRNA-seq 的实验方案需要根据所研究的特定组织进行定制,因为可用组织的数量以及特定组织的物理特性将决定最佳的处理步骤。IMAT 组织的产量通常较少,即使进行超声引导下的活检,往往也不超过 50 mg。因此,对这种稀缺组织进行恰当处理至关重要。我们相信,本实验方案将为研究人类 IMAT 的科研人员提供有价值的参考资源。
方案
本方案所用样本来自肌肉、活动能力与衰老研究(Study of Muscle, Mobility, and Aging,SOMMA)15,,该研究已获得西方机构审查委员会-哥白尼集团(Western IRB-Copernicus Group,WCG)机构审查委员会批准,并遵循《赫尔辛基宣言》进行。所有参与者均签署了书面知情同意书,同意参与本研究。
注意:本方案改编自先前使用100 mg人腹部皮下脂肪组织在基于纳米孔板平台上的方案16。当前方案已优化,适用于50 mg人肌内脂肪组织(IMAT)的细胞核分离及基于液滴平台的文库制备。若需从非人类IMAT或其他脂肪组织库中分离细胞核,可能需要进一步优化本方案。
1. 缓冲液和试剂的配制(表1和表2)
注意:缓冲液需在实验当天新鲜配制,不可重复使用。
- 将离心机预冷至 4 °C。
- 准备匀浆缓冲液和细胞核分离介质。
- 准备两桶冰,并将 2 个 15 mL 圆锥形管预冷。
- 按照 表 1 中列出的顺序,在一个 15 mL 圆锥形管中混合匀浆缓冲液(HB)的所有试剂。置于冰上保存,通过涡旋混合。
- 按照 表 2 中列出的顺序,在一个 15 mL 圆锥形管中混合细胞核隔离介质(NIM)的所有试剂。置于冰上保存,通过涡旋混合。
- 通过将 100 µL Triton X-100 加入 900 µL 无核酸酶水中,配制 10% Triton-X 溶液。涡旋以确保充分混合。室温(RT)保存。
| 试剂 | 体积 (μL) | 终浓度 (mM) | |
| 1x | 2x | ||
| 1 M MgCl2 | 10 | 20 | 5 |
| 1 M Tris Buffer, pH 8.0 | 20 | 40 | 10 |
| 2 M KCl | 25 | 50 | 25 |
| 1.5 M Sucrose (-4oC) | 334 | 668 | 250 |
| 1 mM DTT | 2 | 4 | 0.001 (~1 µM) |
| 100x 蛋白酶抑制剂 | 20 | 40 | 1x |
| Superasin 20 U/µL | 40 | 80 | 0.4 U/µL |
| 无核酸酶水 | 1549 | 3098 | - |
| 总体积 | 2000 | 4000 | - |
表1:匀浆缓冲液(HB)。 置于冰上保存。涡旋振荡混匀。
| 试剂 | 体积 (μL) | 终浓度 (mM) | |
| 1x | 2x | ||
| EDTA | 0.4 | 0.8 | 0.1 |
| Ribolock RNA酶抑制剂 (40U/µL) | 40 | 80 | 0.8 U/µL |
| 1% BSA-PBS (-/-) | 1959.6 | 3919.2 | - |
| 总体积 | 2000 | 4000 | - |
表2:细胞核分离缓冲液(NIM)。 置于冰上保存。使用涡旋振荡器混匀。
2. 冷冻组织的研磨(图2A)
- 设置匀浆工作站。
- 用液氮(LN₂)充满罐体2).
警告:操作 LN 时需谨慎2, 始终佩戴护目镜和低温手套。 - 准备2个研钵、1个研杵、1个微型药匙、1个玻璃Dounce匀浆器和1个用于自动Douncer的不锈钢研杵。
- 设置自动玻璃匀浆器。
- 将烧杯装满冰块,并预冷玻璃匀浆器。
- 用液氮(LN₂)充满罐体2).
- 将液氮加入两个研钵中(每个研钵内含研杵和刮勺)2 使仪器降温。让液氮2 蒸发并重复。
- 仪器冷却的同时,向玻璃匀浆器中加入1 mL HB。
- 用液氮填充两个研钵2 再重复一次,将50 mg IMAT样品倒入其中一个研钵中。
- 使用研杵轻轻按压IMAT组织,将其研磨成小碎片。确保所有组织块均被充分研磨。
- 淋巴结2 在研磨组织时,液氮会缓慢蒸发。当组织被充分研磨后, mortar 中仍应保留约 1/4 至 1/2 的液氮2 左侧,将研钵向研钵边缘倾斜,使研磨后的组织被边缘收集。让液氮2 完全蒸发。
- 最后一次淋巴结之后立即2 组织干燥后,将研碎的组织刮入含有1 mL HB的玻璃Dounce匀浆器中。
3. 粉碎组织的匀浆化
- 使用自动玻璃匀浆器匀浆粉碎的组织。将玻璃匀浆器在不锈钢杵上前后移动,先顺向研磨10次,再反向研磨10次。
- 匀浆后应确保溶液呈浑浊状,且无可见的组织碎片。由于可能混入肌肉组织,溶液常呈现淡粉色。
- 将匀浆液转移至预冷的1.7 mL低吸附离心管中,并置于冰上。
- 用400 µL HB冲洗匀浆器,确保所有样品完全转移,并将冲洗液加入离心管中。
注意:可同时处理两个样品。此时需将HB和NIM的用量加倍。先粉碎并匀浆第一个组织样品,紧接着处理第二个组织样品,以便后续的分离和纯化步骤能够并行进行。
4. 细胞核的分离与纯化(图2B)
- 向匀浆液中加入 14 µL 的 Triton-X(10%),使其终浓度为 0.1%。
- 将离心管置于冰上并避光放置 10–15 分钟,每 3 分钟涡旋一次。
- 在 50 mL 尖底离心管中,用 100 µL 的室温 DPBS 预润湿一个 100 µm 和一个 40 µm 细胞滤筛(每个样品各一个)。
- 将匀浆液通过 100 µm 细胞滤筛进行过滤。
- 用 400 µL 的 HB 冲洗 1.7 mL 离心管,并将冲洗液通过 100 µm 细胞滤筛过滤。
- 接着将溶液通过 40 µm 细胞滤筛进行过滤。
- 将等量的溶液转移至两个预冷的 1.7 mL 低吸附离心管中,每管约含 900 µL。
- 在 4 °C 条件下,以 2700 × g 离心 10 分钟。离心后应可见少量沉淀。
- 弃去上层脂质层及剩余上清液,第一管中保留约 50 µL 溶液。
- 对第二管重复相同操作。
- 通过轻柔吹打 20 次,充分重悬第一管中的沉淀,并转移至一个新的 1.7 mL 低吸附离心管中。避免产生气泡。
- 对第二管重复此操作,并将重悬后的溶液转移至同一管中。
- 加入 500 µL 的 NIM,并用移液器轻轻混匀。
- 将离心管配平后,在 4 °C 条件下以 1000 × g 离心 10 分钟。
- 弃去上清液,保留约 50 µL,然后轻轻吹打至沉淀完全重悬。若管壁残留较多脂质,可选择将重悬的沉淀转移至新的洁净离心管中。
- 加入 200 µL 的 NIM,并通过移液吹打混匀。
5. 细胞核染色与计数(图 2C 和 图 3)
注意:为便于计数,应在自动细胞计数仪上建立“细胞核计数”方案,因为明场和DAPI通道的设置会显著影响计数结果。调整通道参数,确保仅捕获细胞核而排除碎片。务必使明场通道标记的“物体”均具有相应的DAPI染色信号。
- 加入1滴活细胞染色液,置于冰上避光孵育15分钟。
- 用30 µm细胞筛过滤溶液。
- 用移液器吹打混匀核悬液,取10 µL加入细胞计数板。
- 使用自动细胞计数仪对细胞核进行计数。
注意:最佳浓度为1000个细胞核/µL,相当于1.0 × 106/mL。- 确保无细胞核团块存在,否则可能堵塞生成单细胞核液滴的芯片(图3)。
- 若细胞核浓度过低,可在4 °C下以1000 × g离心10分钟,收集沉淀,弃去上清液,并用较小体积重新悬浮。
- 若溶液中碎片较多,可将细胞核悬液用较大体积的NIM缓冲液(例如1 mL)重悬,并再次通过30 µm细胞筛过滤;然后在4 °C下以1000 × g离心10分钟,根据细胞核浓度用适当体积重新悬浮。
- 获得细胞核浓度后,立即进入文库构建的第一步操作。
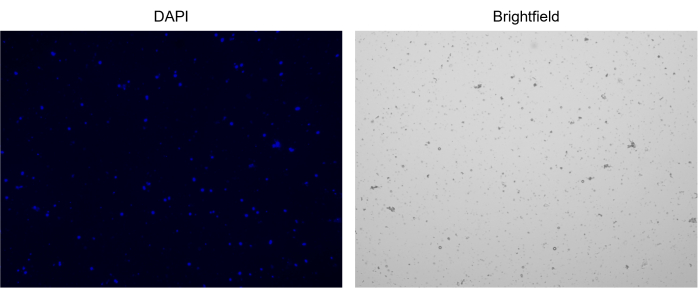
图3:分离细胞核的染色。 细胞计数仪拍摄的经NucBlue/DAPI染色的细胞核图像(左图)及其对应的明场图像(右图)。明场图像中可见少量碎片。此处使用的自动细胞计数仪不支持添加比例尺。 请点击此处查看该图的放大版本。
6. 文库构建与测序参数
- 请参考供应商网页上提供的基于液滴的单核测序文库构建的详细方案17。
- 目标核回收数量为 10,000。然而,对于碎片较多或核结构脆弱的样本,预期回收的核数量可能较低。
- 在文库构建方案的第 2.3 步之后,可将样本在 4°C 下保存最多 72 小时,以便并行处理更多样本。具体操作为:连续两天每天处理两个样本至第 2.3 步,第三天将四个样本从第 3 步开始统一继续进行后续文库构建流程。
- 测序参数:在测序平台上进行测序,目标为每个核获得 50,000 条双端测序读长。
注意:本方案中展示的数据是在 NovaSeq 6000 平台上测序获得的,目标为每个核 50,000 条双端测序读长。
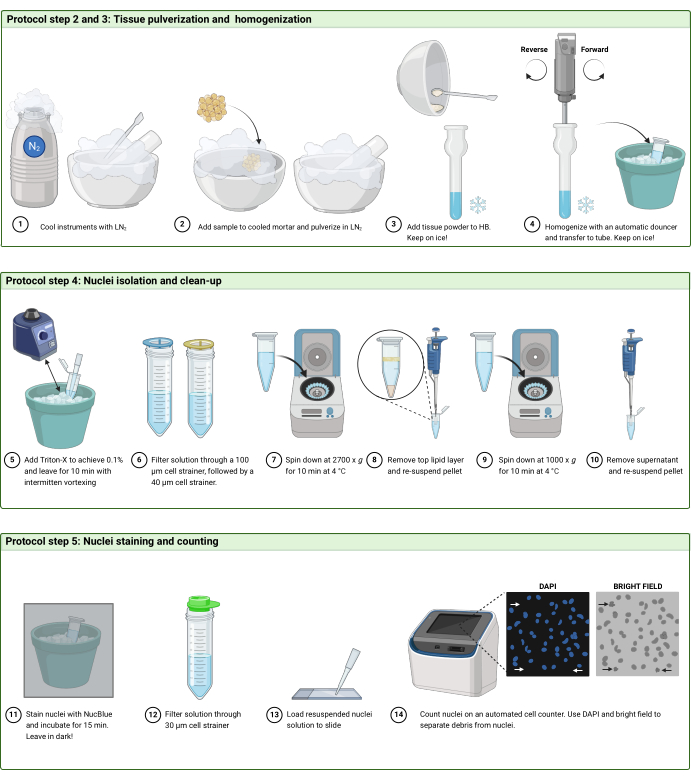
图 2:实验方案流程图。 本图示意了该实验方案中(A)步骤 2 和步骤 3、(B)步骤 4 以及(C)步骤 5 的操作流程。该图由 BioRender.com 制作。 请点击此处查看此图的放大版本。
7. 数据处理与分析
注意:本方案简要介绍了用于处理测序结果数据的部分推荐软件和 R 软件包,重点介绍初始预处理后的步骤(表 3)。本研究提供了通用的质量控制(QC)指标以及一个示例性的均匀流形近似与投影(UMAP)图(见图 4)。然而,生物信息学分析的深入描述不在本方案的范围之内。因此,读者可参考 Heumos 等人近期发表的关于单细胞分析最佳实践的综述18。
- 测序数据的预处理
- 将单核测序读段比对到人类参考基因组 GRCh38。
- 在计数时包含内含子区域的读段。
- 使用 Seurat R 软件包进行数据的质量控制与过滤19。
- 通过将检测到的基因数的 log(10) 值除以检测到的读段数的 log(10) 值,计算细胞复杂性评分。
- 使用直方图或小提琴图绘制最重要的质量控制指标,包括每个细胞核中检测到的基因数量、线粒体读段百分比以及细胞复杂性评分。
- 过滤掉每个细胞核中检测基因数少于 200 或多于 10,000、线粒体读段比例高于 10%、以及复杂性评分低于 0.8 的细胞核。
- 数据标准化并进行降维处理。
- 使用 Seurat 中的 SCTransform 函数,基于 2000 个高变特征基因对数据进行标准化。
- 使用 Seurat R 软件包中的以下函数进行数据聚类:RunPCA、FindNeighbors、FindClusters 和 RunUMAP。
- 绘制 UMAP 图以可视化数据的聚类结果。
- 使用 DoubletFinder R 软件包去除预测的双细胞核(doublets),并对数据重新聚类20。
- 通过已知的细胞类型特异性基因标记物(监督方法)或基于各聚类间前 5 个差异表达最显著的基因(非监督方法)对聚类进行注释。
- 使用 decontX21 评估环境RNA污染程度,并对基因表达矩阵进行环境RNA校正。
- 将原始基因矩阵作为背景输入。
- 保存 Seurat 对象,以便后续进一步分析数据。
注:质量控制与聚类分析的代码可在 补充文件 1 中获取。
| 数据分析流程中使用的软件/R包 | 替代软件/包 | 处理步骤 |
| CellRanger | STARsolo, kallisto | 修剪、比对、映射 |
| Seurat | SingleCellExperiment, Cellranger | 质控、分析与数据探索 |
| DoubletFinder | scds, scdblFinder, Scrublet | 双细胞检测 |
| DecontX | SoupX, CellBender | 背景RNA校正 |
表3:用于数据工作流程的软件/工具。
结果
本实验流程旨在指导处理冰冻的人类骨骼肌内脂肪组织(IMAT)样本,以获得单细胞核分辨率的基因表达谱,从而实现细胞类型的鉴定。此处展示的是来自SOMMA研究中一名参与者的代表性IMAT样本。
对snRNA-seq数据进行分析的第一步是评估数据质量,以识别低质量的细胞核,这些细胞核可能需要从数据集中剔除。重要的是,过滤步骤和阈值应根据手头样本类型和数据集的具体情况来确定,因为常用的评估指标在不同组织和细胞类型之间可能存在差异22,23。图4A展示了用于评估生成的snRNA-seq数据质量的一些关键指标。每个细胞核检测到的基因数量取决于测序深度和细胞类型,但对于高质量的细胞核,该数值通常应高于20018,23。使用本方案生成的数据处于预期范围内,共检测到4662个细胞核,每个细胞核中位基因数为1134个。
评估线粒体读段所占百分比,因为高水平的线粒体污染可能源于受损的细胞核或附着在细胞核上的环境RNA,这提示细胞核质量较差。在本研究展示的数据集中,线粒体读段的中位数百分比为2.65%,远低于文献中常用的5%–20%阈值24,25,26。核糖体读段的百分比在不同细胞类型和组织之间存在差异。然而,由于核糖体基因占比过高可能影响数据的聚类分析,建议检查核糖体读段百分比,并在聚类前考虑从数据集中去除核糖体基因或高比例核糖体基因的细胞核。本方案生成的数据中核糖体读段水平较低,中位数为2.46%,最高为16.5%,因此我们未基于此指标进行过滤。最后,细胞复杂性评分根据检测到的基因数的log(10)值除以检测到的读段数的log(10)值计算得出。高质量的细胞核该评分应高于0.8,本研究所用样本的中位评分为0.92。基于上述质控指标,可决定从数据集中过滤掉哪些细胞核。在分析中,我们选择过滤掉每个细胞核基因数少于200或多于10,000、线粒体读段比例高于10%以及复杂性评分低于0.8的细胞核。
在完成初步的质量评估和过滤步骤后,可生成 UMAP 图以可视化细胞核的聚类情况。聚类基于变异度最高的 2000 个基因,采用 SCT 转换方法进行。初步聚类步骤可用于检查质量控制相关特征是否发生聚集,例如线粒体读数较高的细胞核。此外,某些双细胞(doublet)检测方法需要聚类信息,包括本方案中使用的 DoubletFinder20。DoubletFinder 的预期多重率设为 4.8%,该数值由基于液滴平台的供应商推荐。在去除双细胞后,需评估环境 RNA 污染水平,这在单细胞核制备中尤为常见,因为细胞裂解时胞质 RNA 会释放出来,并被分配至乳液中的凝胶珠(GEMs),并在后续文库构建步骤中被扩增。因此,已开发出多种工具用于校正环境 RNA 污染这一固有问题(见表 3)。我们使用了 R 软件包 decontX21,,该方法利用原始背景矩阵(仅包含空液滴)对基因表达矩阵进行调整,从而增强真实的基因表达特征。
聚类分析及检测低丰度细胞类型的能力取决于细胞核的数量。本研究在经过质控过滤、去除双重态细胞及调整背景RNA后,共检测到3817个细胞核,从中鉴定了IMAT中所有预期的主要细胞类型(图4B)。这些细胞类型包括干细胞、成纤维-脂肪生成祖细胞(FAPs)和成熟脂肪细胞,以及周细胞、平滑肌细胞、免疫细胞、肌肉祖细胞,以及来自骨骼肌细胞污染的肌核。
总体而言,我们已证明该方案可产生高分辨率的单细胞核数据,有助于识别对揭示肌内脂肪组织(IMAT)的生物学特性及其细胞来源至关重要的细胞类型注释。

图4:测序数据的质量评估、聚类及细胞类型注释。(A)用于评估样本及测序性能的关键指标的小提琴图,包括每个细胞核检测到的基因数、线粒体来源读段的百分比、核糖体来源读段的百分比,以及以检测到的基因数的log(10)与检测到的读段数的log(10)之比衡量的细胞复杂性。各指标的中位数以实心框表示。细胞核总数:4662。(B)UMAP图展示单个细胞核的聚类结果,以及过滤后各聚类中细胞类型标志基因的相对基因表达水平的点图(DotPlot)。细胞核数量:3817。请点击此处查看该图的放大版本。
补充文件 1:质控与聚类分析代码。 请点击此处下载该文件。
讨论
使用IMAT存在若干固有挑战。除了其可及性有限之外,样本材料的产量通常也非常稀少,且 "污染" 骨骼肌的污染几乎难以避免。为了获得最佳质量的样本,应在插入活检针时穿透肌筋膜(以确保不采集到皮下脂肪组织),并在取样后立即在显微镜下分离样本,尽可能去除多余的肌肉组织,随后进行 用于组织学处理、速冻等后续操作。这是首个前瞻性采集并从骨骼肌中分离出IMAT样本的方法。相比之下,以往关于IMAT的单核RNA测序(snRNA-seq)数据均来自含有已知脂肪浸润的骨骼肌活检组织混合样本的细胞核分离,而非单独的IMAT组织。
与皮下脂肪组织相比,心外膜脂肪组织(IMAT)的密度更高,因此在细胞核分离过程中对组织进行充分的粉碎至关重要,以释放出组织结构中的细胞核。粉碎不充分可能导致细胞核得率降低,这对于组织量有限的情况尤为不利。此外,准确计算所制备的细胞核悬液中的细胞核数量是关键步骤,以确保上样至芯片用于GEM生成的细胞核数量足够(但不过多)。细胞核过多,或存在较大的细胞核聚集体或碎片,可能导致堵塞,影响最终的cDNA浓度,并进而影响测序结果。在单细胞核制备过程中避免细胞核聚集和碎片较为困难,且受样本质量的影响。通过使用30 µm细胞筛网增加额外的过滤步骤,可减少细胞核聚集和/或碎片的存在。
快速处理样本对于降低RNA降解风险至关重要。在细胞核分离的所有可能步骤中,将溶液保持在冰上或低温环境,并加入足量的RNase抑制剂,可最大限度地减少RNA降解。由于每个样本的处理时间至关重要,建议每次最多处理两个样本。此外,必须小心操作细胞核溶液,避免使细胞核变得过于脆弱。脆弱的细胞核在GEM生成过程中容易破裂,导致样本中出现大量环境RNA。在本实验方案中,为保持细胞核的完整性,省略了使用注射器过滤的步骤(该步骤见于STAR方案16)。
文库构建方法的选择取决于具体的研究问题。我们曾使用过基于液滴和基于纳米孔板的单细胞核测序方法。基于纳米孔板的方法每细胞核可检测到约1200至1600个细胞核,每个细胞核平均检测到约3000至6000个基因16。此外,该方法支持全长转录组测序,可用于分析结构变异、假基因以及剪接异构体27。相比之下,基于液滴的方法可检测超过10,000个细胞核,但每个细胞核检测到的基因数量较低(减少2-3倍)。在本实验方案中,我们选择采用基于液滴的平台之一,因为其更高的细胞核检测数量使我们更有能力识别丰度较低的稀有细胞类型28。
snRNA-seq 的主要局限性在于细胞质内容物的丢失,这将表达分析限制在核转录本范围内。细胞核中的 mRNA 含量比整个细胞低 10 至 100 倍29,这可能会影响组织中所有细胞类型的鉴定。然而,Gupta 等人最近的一项研究发现,与全细胞转录组学相比29,核转录组学在培养的前脂肪细胞和成熟脂肪细胞中检测到了相似的细胞群体以及生物学相关基因的表达谱。在其他细胞类型中也观察到了类似的结果30,31。
单细胞核分离技术具有其独特优势,能够为那些无法适用于单细胞RNA测序(scRNA-seq)的脆弱细胞提供单细胞分辨率的基因表达图谱。此外,该方法可利用冷冻保存的生物样本库样本,且细胞核分离过程无需对组织进行酶解消化,从而避免了酶解可能引发的细胞应激反应,进而影响转录组32。通过使用单细胞核RNA测序(snRNA-seq),我们成功实现了对骨骼肌内脂肪组织(IMAT)中存在的脂肪细胞及其他细胞类型的转录组分析,而若采用scRNA-seq则无法实现,原因在于脂肪细胞富含脂滴,不适用于基于液滴的技术方法。
IMAT 的 snRNA-Seq 一项重要应用是解析在不同代谢状态下 IMAT 的细胞组成及转录差异。此外,snRNA-seq 数据集可用于去卷积 IMAT 的批量 RNA-seq 数据,从而在更大规模上评估细胞组成的差异33。另外,对 snRNA-seq 数据进行拟时序分析可用于识别细胞成熟轨迹,这在诸如 IMAT 等成熟脂肪细胞的细胞来源仍存争议的组织中尤为值得关注。
披露
作者无任何利益冲突需要披露。
致谢
作者谨此感谢科罗拉多大学的 Bryan Bergman 博士,为图 1C 中 MoTrIMAT 研究(R01AG077956)提供了 IMAT 活检图像。我们感谢肌肉、活动能力与衰老研究(Study of Muscle, Mobility and Aging)提供了代表性结果部分所展示数据所来源的 IMAT 样本。国家衰老研究所(NIA)资助了肌肉、活动能力与衰老研究(SOMMA;R01AG059416)及其附属研究 SOMMA AT(R01AG066474)和 SOMMA Knee OA(R01AG070647)。本研究的基础设施支持部分由匹兹堡大学(P30AG024827)和维克森林大学(P30AG021332)的 NIA Claude D. Pepper 老年美国人独立中心以及由国家转化科学促进中心资助的维克森林大学临床与转化科学研究所(UL1 TR001420)提供。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.2 µm Corning 注射器滤器 | Millipore Sigma | CLS431229 | |
| 1.7 mL DNA LoBind 管 | Eppendorf | 22431021 | 低吸附管 |
| 10% Tween 20 | Bio-Rad | 1662404 | |
| 100x 蛋白酶抑制剂 | Thermo Fisher Scientific | 78437 | |
| 10X 磁力分离器 | 10X Genomics | 230003 | |
| 10X 涡旋适配器 | 10X Genomics | 330002 | |
| 15 mL 标准锥形管 | Sarstedt | 6,25,54,502 | |
| 2100 Bioanalyzer | Agilent | G2939BA | |
| 50 mL 离心管 | Sarstedt | 6,25,47,254 | |
| CellRanger | Genomics | N/A | |
| Chromium iX 配件试剂盒 | 10X Genomics | PN1000323 | |
| Chromium iX 控制器 | 10X Genomics | PN1000326 | |
| Chromium Next GEM 芯片 G 单细胞试剂盒 | 10X Genomics | PN1000127 | |
| Chromium Next GEM 单细胞 3' 凝胶珠试剂盒 v3.1 | 10X Genomics | PN1000129 | |
| Chromium Next GEM 单细胞 GEM 试剂盒 v3.1 | 10X Genomics | PN1000130 | |
| Countess 3 自动细胞计数仪 | Thermo Fisher Scientific | AMQAX2000 | 自动细胞计数仪 |
| Countess 细胞计数板载玻片 | Thermo Fisher Scientific | C10228 | |
| DoubletFinder | R | N/A | |
| DPBS(无钙、无镁) | Thermo Fisher Scientific | 14190144 | |
| DTT | Thermo Fisher Scientific | R0861 | |
| 双索引试剂盒 TT A 套组,96 次反应 | 10X Genomics | PN1000215 | |
| Dynabeads MyOne SILANE | 10X Genomics | PN2000048 | |
| Falcon 100 µm 细胞筛 | Corning Life Science | 352360 | |
| Falcon 40 µm 细胞筛 | Corning Life Science | 352340 | |
| 甘油(甘油),50%(v/v)水溶液 | Ricca Chemical Company | 3290-32 | |
| KCl | Thermo Fisher Scientific | AM9640G | |
| 文库构建试剂盒 v3.1 | 10X Genomics | PN1000196 | |
| MACS SmartStrainer(30µm) | Miltenyi Biotec | 130-098-458 | |
| Mastercycler Nexus Gradient 梯度PCR仪 | Eppendorf | 6331000017 | |
| MgCl₂ | Ambion | AM9530G | |
| 研钵和研杵 | Health care logistics | 14075 | |
| NucBlue Live Ready Probes 染色试剂 | Thermo Fisher Scientific | R37605 | |
| 无核酸酶水(非DEPC处理) | Thermo Fisher Scientific | AM9930 | |
| Probumin 牛血清白蛋白(无脂肪酸),粉末 | Sigma-Aldrich | 820024 | |
| Qiagen Buffer EB | Qiagen | 19086 | |
| Ribolock RNase 抑制剂 | Thermo Fisher Scientific | EO0382 | |
| Seurat | R | N/A | |
| 蔗糖 | Sigma-Aldrich | S0389 | |
| SUPERasin 20 U/µL | Thermo Fisher Scientific | AM2695 | |
| ThermoMixer C | Eppendorf | 5382000015 | |
| 组织匀浆器 | Glass-Col | 099C K54 | |
| Tris 缓冲液 pH 8.0 | Thermo Fisher Scientific | AM9855G | |
| Triton X-100 | Thermo Fisher Scientific | AC327372500 | |
| UltraPure 0.5M EDTA pH 8.0 | Gibco | 15575020 |
参考文献
- Goodpaster, B. H., Bergman, B. C., Brennan, A. M., Sparks, L. M. Intermuscular adipose tissue in metabolic disease. Nat Rev Endocrinol. 19 (5), 285-298 (2023).
- Sparks, L. M., Goodpaster, B. H., Bergman, B. C. The metabolic significance of intermuscular adipose tissue: Is IMAT a friend or a foe to metabolic health. Diabetes. 70 (11), 2457-2467 (2021).
- Gallagher, D., et al. Adipose tissue in muscle: A novel depot similar in size to visceral adipose tissue. Am J Clin Nutr. 81 (4), 903-910 (2005).
- Manini, T. M., et al. Reduced physical activity increases intermuscular adipose tissue in healthy young adults. Am J Clin Nutr. 85 (2), 377-384 (2007).
- Addison, O., Marcus, R. L., LaStayo, P. C., Ryan, A. S. Intermuscular fat: A review of the consequences and causes. Int J Endocrinol. 2014, 309570(2014).
- Goodpaster, B. H., et al. Obesity, regional body fat distribution, and the metabolic syndrome in older men and women. Arch Intern Med. 165 (7), 777-783 (2005).
- Goodpaster, B. H., Thaete, F. L., Kelley, D. E. Thigh adipose tissue distribution is associated with insulin resistance in obesity and in type 2 diabetes mellitus. Am J Clin Nutr. 71 (4), 885-892 (2000).
- Goodpaster, B. H., et al. Association between regional adipose tissue distribution and both type 2 diabetes and impaired glucose tolerance in elderly men. Diabetes Care. 26 (2), 372-379 (2003).
- Sachs, S., et al. Intermuscular adipose tissue directly modulates skeletal muscle insulin sensitivity in humans. Am J Physiol Endocrinol Metab. 316 (5), E866-E879 (2019).
- Ford, H., Liu, Q., Fu, X., Strieder-Barboza, C. White adipose tissue heterogeneity in the single-cell era: From mice and humans to cattle. Biology (Basel). 12 (10), 1289(2023).
- Wang, L., et al. Single-nucleus and bulk RNA sequencing reveal cellular and transcriptional mechanisms underlying lipid dynamics in high marbled pork. NPJ Sci Food. 7 (1), 23(2023).
- Li, J., et al. Identification of diverse cell populations in skeletal muscles and biomarkers for intramuscular fat of chicken by single-cell RNA sequencing. BMC Genomics. 21 (1), 752(2020).
- Lyu, P., Qi, Y., Tu, Z. J., Jiang, H. Single-cell RNA sequencing reveals heterogeneity of cultured bovine satellite cells. Front Genet. 12, 742077(2021).
- Fitzgerald, G., et al. MME+ fibro-adipogenic progenitors are the dominant adipogenic population during fatty infiltration in human skeletal muscle. Commun Biol. 6 (1), 111(2023).
- Cummings, S. R., et al. The study of muscle, mobility and aging (SOMMA): A unique cohort study about the cellular biology of aging and age-related loss of mobility. J Gerontol A Biol Sci Med Sci. 78 (11), 2083-2093 (2023).
- Whytock, K. L., et al. Isolation of nuclei from frozen human subcutaneous adipose tissue for full-length single-nuclei transcriptional profiling. STAR Protoc. 4 (1), 102054(2023).
- 10x Genomics. Chromium Single Cell 3' Reagent Kits User Guide (v3.1 Chemistry Dual Index), Document Number CG000315 RevE. , Available from: https://cdn.10xgenomics.com/image/upload/v1668017706/support-documents/CG000315_ChromiumNextGEMSingleCell3-_GeneExpression_v3.1_DualIndex__RevE.pdf (2022).
- Heumos, L., et al. Best practices for single-cell analysis across modalities. Nat Rev Genet. 24 (1), 550-572 (2023).
- Hao, Y., et al. Dictionary learning for integrative, multimodal and scalable single-cell analysis. Nat Biotechnol. 42 (2), 293-304 (2023).
- McGinnis, C. S., Murrow, L. M., Gartner, Z. J. DoubletFinder: Doublet detection in single-cell RNA sequencing data using artificial nearest neighbors. Cell Syst. 8 (4), 329-337 (2019).
- Yang, S., et al. Decontamination of ambient RNA in single-cell RNA-seq with DecontX. Genome Biol. 21 (2), 57(2020).
- Common considerations for quality control filters for single cell RNA-seq data. 10X Genomics. , Available from: https://www.10xgenomics.com/analysis-guides/common-considerations-for-quality-control-filters-for-single-cell-rna-seq-data (2022).
- Luecken, M. D., Theis, F. J. Current best practices in single-cell RNA-seq analysis: a tutorial. Mol Syst Biol. 15 (6), e8746(2019).
- Emont, M. P., et al. A single-cell atlas of human and mouse white adipose tissue. Nature. 603 (7903), 926-933 (2022).
- Hildreth, A. D., et al. Single-cell sequencing of human white adipose tissue identifies new cell states in health and obesity. Nat Immunol. 22 (5), 639-653 (2021).
- Whytock, K. L., et al. Single cell full-length transcriptome of human subcutaneous adipose tissue reveals unique and heterogeneous cell populations. iScience. 25 (8), 104772(2022).
- Probst, V., et al. Benchmarking full-length transcript single cell mRNA sequencing protocols. BMC Genomics. 23 (1), 860(2022).
- CG000148 Rev A Technical Note - Resolving cell types as a function of read depth and cell number. Technical note. 10X Genomics. , Available from: https://assets.ctfassets.net/an68im79xiti/6gDArDPBTOg4IIkYEO2Sis/803be2286bb a5ca67f353e6baf68d276/CG000148_10x_Technical _Note_Resolving_Cell_Types_as_Function_of_ Read_Depth_Cell_Number_RevA.pdf (2018).
- Gupta, A., et al. Characterization of transcript enrichment and detection bias in single-nucleus RNA-seq for mapping of distinct human adipocyte lineages. Genome Res. 32 (2), 242-257 (2022).
- Bakken, T. E., et al. Single-nucleus and single-cell transcriptomes compared in matched cortical cell types. PLoS One. 13 (12), e0209648(2018).
- Wu, H., Kirita, Y., Donnelly, E. L., Humphreys, B. D. Advantages of single-nucleus over single-cell RNA sequencing of adult kidney: Rare cell types and novel cell states revealed in fibrosis. J Am Soc Nephrol. 30 (1), 23-32 (2019).
- Kim, N., Kang, H., Jo, A., Yoo, S. -A., Lee, H. -O. Perspectives on single-nucleus RNA sequencing in different cell types and tissues. J Pathol Transl Med. 57 (1), 52-59 (2023).
- Avila Cobos, F., Alquicira-Hernandez, J., Powell, J. E., Mestdagh, P., De Preter, K. Benchmarking of cell type deconvolution pipelines for transcriptomics data. Nat Commun. 11 (1), 5650(2020).
重印与许可
