本方案描述了在与哺乳动物细胞共培养的条件下,in vitro 培养梅毒病原体Treponema pallidum subsp. pallidum的方法。该方法具有可扩展性,可用于大量生产T. pallidum,并可建立克隆培养物。
本文内容
摘要
摘要
一个多世纪以来,引起梅毒的螺旋形细菌——苍白密螺旋体苍白亚种(Treponema pallidum subsp. pallidum)只能通过接种并从兔睾丸中收获病原体进行传代培养。2018年,我们报道了一种在体外持续培养T. pallidum的方法。该系统采用兔上皮细胞(Sf1Ep细胞)与含血清的组织培养基(称为TpCM-2)共培养。在培养条件下,T. pallidum的倍增时间与自然感染期间估计的时间相近(约33–45小时)。该病原体可在低氧(1.5%)、34 °C的环境中实现连续培养,标准传代周期为1周。本文提供了T. pallidum的培养方案、所需组织培养细胞的培养与维持方法,以及通过极限稀释法构建同基因型菌株的技术。在体外培养T. pallidum的能力为研究和深入了解这一神秘病原体开辟了新的实验途径。
引言
Treponema pallidum 是一种螺旋形细菌(称为密螺旋体),可导致人类和其他灵长类动物感染梅毒及相关疾病。梅毒是一种严重的疾病,对感染者具有长期影响,据估计,全球每年新增梅毒病例超过800万例1。T. pallidum 根据其在人类中引起的疾病类型以及微小的遗传差异,可分为三个亚种:pallidum 亚种(引起性传播疾病梅毒)、pertenue 亚种(引起雅司病)和 endemicum 亚种(引起地方性梅毒或贝杰尔病)2,3。T. pallidum subsp. pertenue 也可感染狒狒、黑猩猩及其他灵长类动物。一种密切相关的生物体 Treponema paraluiscuniculi (也称为 Treponema paraluisleporidarum)可引起兔类和野兔的感染4,5。这些细菌彼此之间亲缘关系极为密切,在基因组水平上的DNA序列相似性超过98%6,7,8。它们各自拥有一个大小约为114万碱基对(Mb)的小型环状染色体。T. pallidum 群的成员仅存在于与其哺乳动物宿主相关联的环境中;因此,它们是专性病原体,依赖宿主物种存活和生长9,10。
在1905年Schaudinn和Hoffman发现T. pallidum后不久,人们便开始尝试在体外培养该病原体11,12。然而,这些努力未能实现该微生物稳定且可重复的生长。因此,对T. pallidum的研究不得不依赖于通过实验性感染实验动物(最常用的是兔)来扩增该病原体13,14。1981年,Fieldsteel等人15建立了一种组织培养系统,可在长达2周的时间内促进T. pallidum菌株的增殖。该系统采用改良的组织培养基(T. pallidum培养基1,TpCM-1),基于Eagle最小必需培养基(MEM)并添加20%胎牛血清(FBS),将T. pallidum与Sf1Ep棉尾兔上皮细胞共培养。其他必要的培养条件包括在34 °C、含1.5% O2和5% CO2的气体环境中孵育9,16。在此系统中,T. pallidum可附着于Sf1Ep细胞,并在紧邻哺乳动物细胞表面的位置进行增殖。尽管进行了多次传代尝试及其他改良,Fieldsteel等人的系统仍未能实现T. pallidum在体外的持续生长。
2018年,我们的实验室报道,使用一种称为TpCM-2的改良培养基(其中以成分更复杂的组织培养基CMRL 1066替代了Eagle's MEM)可提供 T. pallidum 维持长期稳定培养所需的营养物质17截至目前,该改良方法已实现至少5个菌株的稳定、连续培养 T. pallidum 亚种 pallidum (Nichols、SS14、Mexico A、UW231B 和 UW249B)以及一株 T. pallidum 亚种 endemicum (波斯尼亚 A)18,19例如,Nichols菌株目前已实现连续培养 体外 长达6年以上。迄今为止,培养雅司病分离株的尝试(T. pallidum 亚种 pertenue)或 T. paraluiscuniculi 体外培养 未能成功18TpCM-2 系统仍需要 Sf1Ep 细胞、低氧浓度以及在 34 °C 下培养,使得该系统比大多数细菌培养技术更为复杂。然而,这种改良的 T. pallidum 培养系统已有助于进一步明确该细菌的生长需求18,测定抗菌化合物和肽的最小抑菌浓度(MICs)20,21,22,23,24,25从患者组织抽吸物中扩增新菌株26,分离该生物体的克隆群体27,表征 tprK 抗原变异系统27,28,检测基因表达29,并进行突变分析30,31,32.
在此,我们介绍当前用于培养的常用方法 T. pallidum 体外培养我们希望这些信息能够促进该技术更广泛的应用 体外 培养技术在梅毒及相关密螺旋体感染的改进诊断、治疗和预防中的应用。
方案
注意:所有步骤均需使用无菌技术及无菌材料和试剂。建议使用组织培养用超净工作台,以减少 a) 人员接触感染性材料的风险,以及 b) 培养物发生微生物污染的可能性。
1. 建立 Sf1Ep 细胞库
注意:Sf1Ep 棉尾兔上皮细胞可从美国模式培养物集存库(参见材料表)购买冷冻保存的细胞株。Sf1Ep 细胞生长缓慢且代谢率低,这一特性似乎是其能够支持T. pallidum33长期存活与生长的关键因素;因此,不建议使用其他哺乳动物细胞培养物替代。Sf1Ep 细胞并非永生化细胞系,在培养中仅能维持 25–30 代。因此,重要的是应保存低代次 Sf1Ep 细胞的冷冻储备,以供将来使用。在 Sf1Ep 细胞长期培养过程中,偶尔会出现永生化的 Sf1Ep 细胞系(未发表观察结果)。这些细胞系通常生长更快且更易于操作;但有时会失去支持T. pallidum生长的能力。可在螺旋体开始生长减缓时使用并随后更换永生化 Sf1Ep 细胞系。
- 配制 Sf1Ep 细胞培养基,并在 37 °C、5% CO2 的培养箱中预热。
注意:Sf1Ep 细胞培养基由添加了 10% 胎牛血清(FBS)、1× MEM 非必需氨基酸、2 mM L-谷氨酰胺和 1 mM 丙酮酸钠的 Eagle's MEM 组成。(见材料表)。培养基应经过滤除菌,可在 4 °C 下保存最多 2 个月。Sf1Ep 细胞培养基中不应使用抗生素(如青霉素和链霉素),因为即使微量抗生素残留也会干扰T. pallidum的生长。 - 在 37 °C 下快速解冻冷冻保存的 Sf1Ep 细胞,用 70% 乙醇擦拭冻存管外壁。
- 向冻存管中加入 1 mL Sf1Ep 细胞培养基,轻轻混匀。将混合液转移至含有 5 mL Sf1Ep 细胞培养基的无菌 15 mL 圆锥形离心管中,轻轻混匀。
- 在 100 × g 条件下离心 7 分钟,使细胞沉淀。小心吸除并弃去上清液,注意不要扰动细胞沉淀。
- 用 15 mL 新鲜 Sf1Ep 细胞培养基轻轻重悬解冻后的 Sf1Ep 细胞,转移至 T75 组织培养瓶中。
注意:通过离心去除用于冷冻细胞的 DMSO 可提高新解冻 Sf1Ep 细胞的复苏效率。然而,步骤 1.4–1.7 可省略,步骤 3 中解冻的细胞可直接接种至含有 14 mL Sf1Ep 细胞培养基的 T75 组织培养瓶中。过夜培养后,更换一半培养基为新鲜 Sf1Ep 培养基,以稀释残留的 DMSO。 - 将 Sf1Ep 细胞培养物置于标准的加湿组织培养箱中,在 37 °C、5% CO2 条件下培养。对于非通气型组织培养瓶,应适当松开瓶盖以维持培养基的合适 pH 值。
2. Sf1Ep 细胞传代
注意:Sf1Ep 细胞培养的生长情况需使用倒置显微镜结合相差光学系统进行监测。通常情况下,细胞约需一周时间达到接近汇合状态。当细胞汇合度达到约 90% 时,可进行传代、用于 T. pallidum 的培养或制备冻存菌种。通过在培养一周后更换一半培养基,可将培养物的生命周期延长至两周。
- 吸弃培养瓶中的 Sf1Ep 生长培养基。用 5 mL 室温(RT)的无菌 PBS 清洗细胞层,然后吸弃 PBS 洗涤液。
- 向培养瓶中加入 2.5 mL 胰蛋白酶-EDTA 溶液,并拧紧瓶盖。轻轻摇动培养瓶,使胰蛋白酶-EDTA 覆盖细胞层,于 37 °C 培养 5 分钟。
- 轻拍培养瓶,使细胞脱落。在倒置显微镜下观察,确认 Sf1Ep 细胞已充分分散。
- 加入 5 mL Sf1Ep 生长培养基,轻轻摇动培养瓶以混匀胰蛋白酶-EDTA 并终止胰蛋白酶活性。将悬浮的 Sf1Ep 细胞转移至无菌锥形管中。
- 使用血细胞计数板或自动细胞计数仪对细胞进行定量。
- 为维持工作细胞库,取部分细胞混合液(0.5–1.0 mL 或约 8 × 10⁵ 个细胞),转移至含有 15 mL 新鲜 Sf1Ep 培养基的新 T75 组织培养瓶中。
- 用于 T. pallidum 培养时,将细胞用 Sf1Ep 培养基稀释至 0.25–0.5 × 10⁵ 个细胞/mL,并接种至适当的培养容器中(表 1)。
- 如需冻存 Sf1Ep 细胞,于台式离心机中以 100 × g 离心 7 分钟。小心吸除上清液,避免扰动细胞沉淀。将细胞沉淀重悬于含有 10% 组织培养级 DMSO 的 Sf1Ep 培养基中。
- 将 1 mL 细胞悬液分装至每个冻存管中,置于隔热容器(如聚苯乙烯试管架)内,在 -70 °C 至 -80 °C 过夜冷冻,以提高细胞活力,随后将冻存管转移至液氮超低温保存罐中。
3. 培养苍白密螺旋体(T. pallidum)
警告:所有 T. pallidum 亚种和菌株均对人类具有致病性,被归类为生物安全等级2(BSL-2)病原体34。必须采取适当措施以保护操作人员,包括使用手套和其他个人防护装备(PPE),以及对可能接触过 T. pallidum 的表面、材料和液体进行消毒。T. pallidum 在接触70%乙醇或市售消毒剂后可迅速失活。建议在处理含有 T. pallidum 的样本时始终使用层流罩。
注意:T. pallidum 是一种微需氧生物,暴露于大气氧浓度下数小时即可被杀死9,16,35。因此,建议尽量将 T. pallidum 在空气中的操作时间限制在1小时以内。此外,TpCM-2 培养基应在1.5% O2、5% CO2、余量为 N2 的条件下预先平衡,且应避免剧烈搅拌(例如使用涡旋振荡器)。由于 T. pallidum 培养通常在不含抗生素的条件下进行,因此需格外注意防止细菌或真菌污染。Sf1Ep-TpCM-2 培养 T. pallidum 的流程如 图1 所示,包括多个步骤:用 Sf1Ep 细胞接种培养容器、制备 TpCM-2 培养基,以及用 T. pallidum 接种培养物。热灭活胎牛血清(FBS)是培养基中的关键组分,其效果因不同供应商及批次而异19。因此,有必要对 FBS 批次进行预先筛选以评估其有效性。
- 选择合适的培养规模。
注意: T. pallidum 培养可从大规格容器(如75 cm²)扩增2 烧瓶产出约 ~1 x 10⁹ T. pallidum 每孔)加入96孔板(适用于克隆实验)17,18,19,27.- 调整培养规模时,需考虑Sf1Ep细胞的数量 T. pallidum 每种培养接种量以及所需培养基的量,如图所示 表1使用带透气盖的培养瓶,因其可允许气体自由交换,并减少因蒸发导致的液体体积损失。
- 使用6孔板进行初始培养,因为该格式便于设置三个重复孔,并可额外预留孔位以应对微生物污染的情况。
- 实验前1-2天接种Sf1Ep细胞。
- 通过胰蛋白酶消化储备培养物来制备Sf1Ep细胞悬液,具体步骤如2.7所述。
- 使用血细胞计数板或自动细胞计数仪测定Sf1Ep细胞悬液中的细胞浓度。
- 加入适量的 Sf1Ep 细胞和 Sf1Ep 培养基(表1)加入每种培养物中。将培养物置于含5% CO₂的标准组织培养箱中,在37 °C下孵育。2 直至使用。
- 实验前一天制备TpCM-2。
注意:TpCM-2 可在 -20 °C 下制备并保存数月。实验前一天应将培养基在低氧培养箱中解冻并平衡。- 获取TpCM-2各组分的无菌溶液(表2)可购买商用试剂,或使用干粉试剂自行配制并经滤膜除菌。溶液于4 °C保存,可使用长达2个月。MOPS缓冲液需在滤膜除菌前将pH调整至7.5;其余成分或最终的TpCM-2培养基无需调节pH。
注意:建议使用无菌的组织培养级蒸馏水来配制培养基成分。 - 将所列试剂混合 表2 在无菌容器中配制,最后加入二硫苏糖醇(DTT)干粉(以尽量减少其氧化)。根据需要按比例放大(或缩小)各组分用量,以制备所需量的TpCM-2培养基。轻轻混匀后,使用0.22 µm滤器过滤除菌。
- 松开装有 TpCM-2 的烧瓶瓶盖。将培养基置于厌氧(Brewer)罐中,通过抽真空并充入 95% N₂ 和 5% CO₂ 混合气体进行预平衡2,5% CO2 气体混合物三次,然后充入1.5% O₂2,5% CO₂2,平衡 N2 最终抽真空后的气体混合物。用于执行此气体交换过程的系统示例如图所示。 图2.
- 迅速将培养基转移至三气培养箱中,该培养箱设置为提供1.5% O₂的环境。2,5% CO₂2,以及平衡 N2 在34 °C的有氧环境中培养。或者,在按照3.3.3步骤完成气体交换后,将含有培养基的厌氧罐密封,并转移至标准培养箱中。
- 获取TpCM-2各组分的无菌溶液(表2)可购买商用试剂,或使用干粉试剂自行配制并经滤膜除菌。溶液于4 °C保存,可使用长达2个月。MOPS缓冲液需在滤膜除菌前将pH调整至7.5;其余成分或最终的TpCM-2培养基无需调节pH。
- 实验当天早晨,使用倒置显微镜检查Sf1Ep细胞培养物,确保细胞已贴壁且融合度为5%–10%。无菌条件下吸除培养基。
- 用少量预平衡的 TpCM-2(0.2 mL 至 2 mL,根据容器大小而定)短暂冲洗各孔,弃去冲洗液,然后加入适量的 TpCM-2(表1)。将培养板置于1.5% O₂环境中平衡2,5% CO₂2,以及平衡 N2 在34 °C条件下孵育3-4小时,具体操作如前所述。
- 将培养皿转移至超净工作台,并接种适当数量的(表1的 T. pallidum 来自冻存菌种或从新鲜收获的培养物中经胰蛋白酶消化制备的样品(如下所述)。 freshly prepared 或 frozen stock 从感染的兔子中无菌采集13 也可使用。按照 3.3.3 中所述重新平衡平板,并将培养物在 1.5% O₂ 条件下孵育2,5% CO₂2,以及平衡 N2 34 °C 的大气环境。
4. 收获与传代 T. pallidum 培养物
注意:由于培养物中的大多数 T. pallidum 均附着在 Sf1Ep 细胞表面,因此必须将密螺旋体从哺乳动物细胞上解离,才能回收并准确计数这些微生物。此类“收获”操作及传代至新鲜培养物通常在培养第 7 天进行。此处所述方法适用于 6 孔板;胰蛋白酶-EDTA 溶液的用量需根据培养体系的大小相应调整17,19,27。
- 收获时,将培养物从培养箱中取出。使用倒置相差显微镜观察每个孔中的 Sf1Ep 细胞层,记录细胞密度(例如,80% 汇合度)及细胞形态。同时记录 TpCM-2 的颜色;由于 pH 降低,刃天青指示剂通常会由粉红色变为黄色。
- 用单独的移液器将每个孔中的培养基移入无菌的15 mL锥形管中,每孔使用不同的移液器以防止交叉污染。用0.35 mL预热的胰蛋白酶-EDTA溶液冲洗每个孔,并将冲洗液加入培养基中。
- 向每个孔中再加入 0.35 mL 胰蛋白酶-EDTA 溶液,在标准 37 °C 培养箱中孵育 5 分钟;低 O2 此短暂时间内无需控制气氛。
- 观察Sf1Ep细胞是否出现变圆和脱落现象,这同样与解离过程相关 T. pallidum 从哺乳动物细胞中分离。使用倒置显微镜监测此过程,并根据需要延长孵育时间或添加胰蛋白酶-EDTA溶液。可通过轻敲固定培养板侧面(使用塑料试管架或类似物品)以促进解离过程。
- 用移液器吸取保留的培养基,冲洗至孔中以收集解离的细胞 T. pallidum 以及细胞。记录回收的总体积,用于计算每培养物的产量。
- 在大多数实验中,转移一定体积的收获物 T. pallidum 将约1/20的细胞接种至含有新鲜Sf1Ep细胞和TpCM-2的培养板中。在这些情况下,转移约1/20th 培养体积的量(例如,4 mL、6孔板培养使用200 µl);根据具体情况调整该体积的大小 T. pallidum 菌株为快速或慢速生长型。通过在100 x g条件下离心去除接种物中的Sf1Ep细胞。 g 5分钟,但常规转膜时此步骤并非必需。
- 实验平板接种后立即使用抽真空和充气置换法(步骤3.3.3)更换平板内气体环境。将平板置于Brewer厌氧罐中或转移至三气培养箱内,在34 °C条件下培养。
- 列举 T. pallidum 使用 Helber 计数板或类似装置,按照制造商说明书通过暗视野显微镜进行计数。
注意:Helber 计数板是一种经过校准的载玻片和盖玻片,可显著提高细菌计数的准确性和可重复性;该计数板可使用 70% 乙醇和纸巾进行消毒、清洁和干燥,可无限次重复使用。理想情况下,暗视野显微镜应配备 40 倍物镜和 15 倍目镜。对每种培养物进行重复计数,并记录可动和不可动细菌的数量 T. pallidum 并记录任何形态学变化。在无需精确定量和确定运动能力的情况下,也可使用定量PCR(qPCR)17,24. - 在不希望使用胰蛋白酶处理的实验中(例如研究 T. pallidum 蛋白含量),使用含EDTA解离液进行解离 T. pallidum 细胞单层17,19.
注意:解离培养基由胎牛血清(FBS)组成,该血清已用不含氯化钙和氯化镁的磷酸盐缓冲液(PBS)或 Earle's 基本盐溶液(EBSS)进行透析,以去除二价阳离子。 T. pallidum 培养基表 2该步骤可能需要较长时间(长达30分钟)或重复处理才能实现完全解离。
5. 冻存与保存 T. pallidum 培养物
注意:T. pallidum 可在 -70 °C 或更低温度下长期保存,解冻后通常可保持 50%–90% 的活性。
- 冷冻 T. pallidum 收获时加入10%(v/v)甘油,通过轻柔吹打或倒置混匀使甘油均匀分散。随后将混合液分装至螺口冻存管中,每管1–2 mL,并立即将冻存管置于-80 °C超低温冰箱或液氮中2 冷冻机
- 开始 T. pallidum 从冻存菌种开始培养时,首先准备含有 Sf1Ep 细胞和 TpCM-2 的适当培养容器,具体方法见第 3 节。解冻含有该菌种的冻存管 T. pallidum 快速解冻冻存菌种;使用37 °C水浴或加热块时需小心操作,这对此过程很有帮助。
- 然后,将解冻后的样品转移至培养容器中。确保冻存液与Tp-CM2培养基的体积比为1:5或更高,以充分稀释甘油,促进细胞的存活与生长 T. pallidum.
- 在微需氧条件下培养 7 天,并按照第 4 节所述方法转接到新鲜培养基中。
6. 生成 T. pallidum的同基因型克隆
注意:此操作步骤在先前的研究中已有详细描述27。
- 在典型实验中,按照第3节所述方法,准备两个96孔板,每孔接种1000个Sf1Ep细胞,并加入200 µL TpCM-2进行预平衡。
注意:使用多通道200 µL移液器及配套的无菌一次性试剂储液槽可显著简化Sf1Ep细胞的接种、换液和再接种操作。 - 使用暗视野显微镜和Helber计数板对新收获的T. pallidum样品进行定量(步骤4.8)。用TpCM-2将T. pallidum悬液稀释,制备浓度分别为10条密螺旋体/mL和40条密螺旋体/mL的两种样品;每种样品准备10 mL足以完成一个96孔板的接种。作为对照,另准备1 mL浓度为2 × 10³ T. pallidum/mL的稀释液。
- 使用单通道或多通道移液器,将50 µL浓度为10 T. pallidum/mL的悬液加入其中一个已准备好的96孔板的各孔中,但保留两个对照孔不加。对另一个96孔板重复此操作,使用40 T. pallidum/mL的悬液。在每个板的两个对照孔中,加入2 × 103 T. pallidum/mL的稀释液。该过程将使各板的孔中平均含有0.5或2个T. pallidum,同时设置含有100个T. pallidum的阳性对照孔。
注意:在此培养条件下,T. pallidum的铺板效率较低,因此即使接种约2个生物体的孔也通常能获得克隆群体。 - 将96孔板置于低O2气体混合环境中平衡(步骤3.3.3),并在Brewer厌氧罐或三气培养箱中于34 °C培养。
- 在第7天,从每个培养孔中移除100 µL培养基,并补充100 µL新鲜且已平衡的TpCM-2。通过暗视野显微镜观察和计数检测对照孔中T. pallidum的存活率和生长情况,以确认培养条件支持T. pallidum增殖。
注意:务必为每个孔使用新的移液枪头,以防止克隆培养物之间的交叉污染。 - 在第14天,将每个孔的50 µL培养上清液转移至按照步骤6.1准备的新96孔板中。
- 根据需要在第21天和第28天重复交替进行换液和传代操作。
- 使用暗视野显微镜或qPCR26监测每个孔中T. pallidum的存在情况。
注意:由于T. pallidum生长缓慢,且在换液和转移过程中会造成生物体损失,因此接种了0.5或2个T. pallidum的孔通常要到第28天或之后才能通过任一方法检测为阳性。 - 一旦确定阳性孔,将这些孔中的细胞进行胰酶消化并转移至24孔板中进一步扩增。通过分析tprK序列是否以单一序列为主,以及在亲本菌株中呈异质性的位点是否仅存在单一序列,来确认其克隆性27。
结果
使用所述条件, T. pallidum 通常保留>90% 的活动率,并以 33 小时至 45 小时的倍增时间呈对数级增殖,持续约 7 天,随后进入稳定期(图3)。在1周时间内,螺旋体大约经历4-5次倍增(图4)。此外,不同菌株的 T. pallidum 可能以不同的速率生长。SS14群菌株的 T. pallidum 比Nichols组的菌株倍增时间更长17.
培养物的换液可将培养时间延长数天,但Sf1Ep细胞层通常在培养一周后失效。此外,密螺旋体的数量达到约5 × 10⁷/mL的上限。每隔7天传代的培养物通常能持续进行对数期增殖,滞后期极短或无滞后期。处于稳定期的微生物常难以传代。
大多数 T. pallidum 附着在 Sf1Ep 细胞上。然而,足够 T. pallidum 仍留在上清液中,可定期取出培养基样品以检测细胞活力和增殖情况。若需精确量化,应测量所移除培养基的体积,并计数其中的细胞数量 T. pallidum 定量,并将去除的生物体总数加至收获时的最终计数中。
在之前的研究中,每孔接种 2 个 T. pallidum 的克隆效率(每接种一个生物体获得阳性培养的孔数)为 12.5%,每孔接种 0.5 个 T. pallidum 的克隆效率为 6.7%27。因此,在上述两种接种量下,任何阳性孔很可能均来源于单个生物体的扩增。然而,必须通过检测在亲本培养物中具有异质性的位点是否在培养物中呈现均一性,来验证所获得群体的克隆性。证明培养物为同基因型最确凿的方法是全基因组测序27。
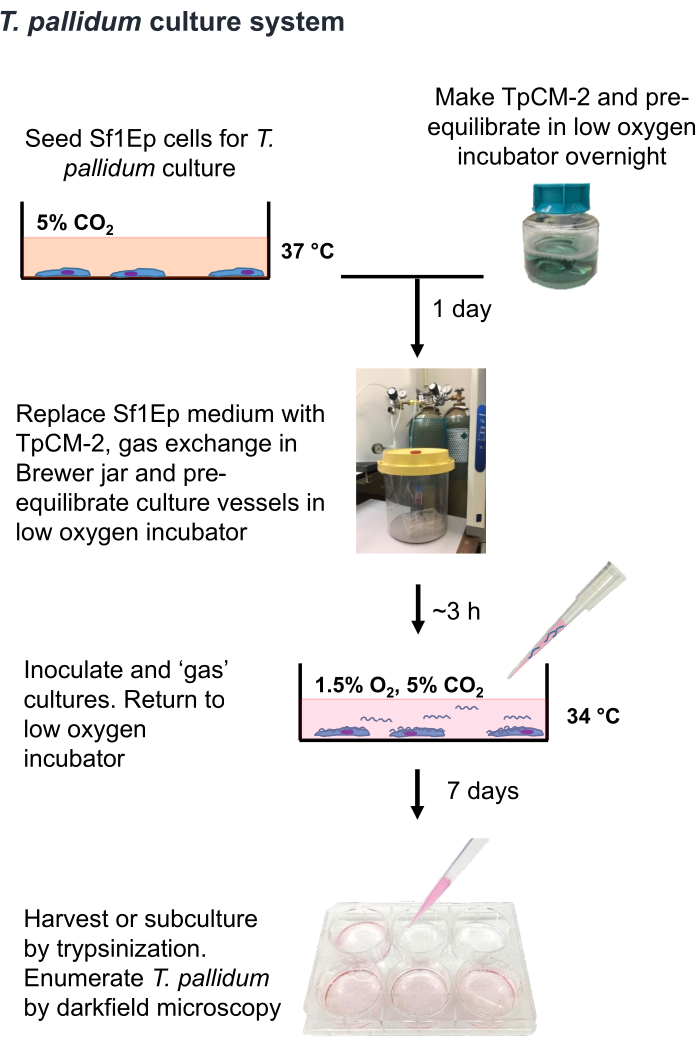
图1:T. pallidum 体外培养流程图。 本图已获 Edmondson 和 Norris(2021)19 许可转载。请点击此处查看此图的放大版本。
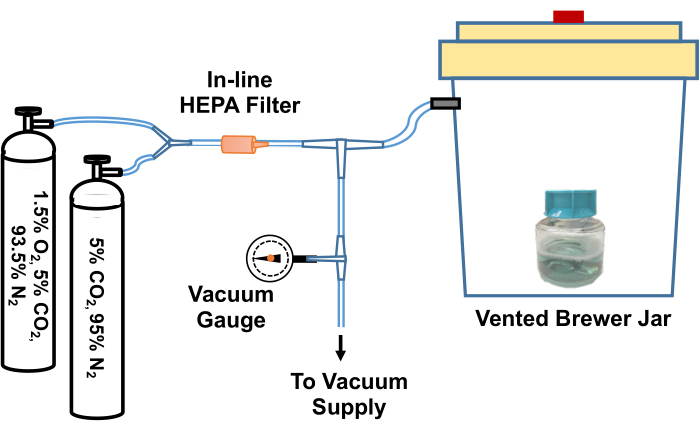
图2系统平衡示意图 T. pallidum 将培养试剂置于低氧环境中。 一个 Brewer 培养罐通气阀通过三通接头连接至真空源(如中央真空系统)和装有定制气体混合物的气瓶(5% CO₂)2,平衡氮气和1.5% O2,5% CO₂2,平衡氮气)。在线真空计用于测量罐内抽取的真空度,将罐内真空度抽至约 -58 kPa。随后,缓慢向已抽真空的罐内重新充入混合气体。Brewer 罐需用 5% CO₂ 混合气体重复充气三次2,用氮气平衡后进行最终抽真空,并重新充入95% N₂2,5% CO₂2,1.5% O₂2将培养物或培养基从罐中取出后,迅速转移至低氧培养箱中。或者,可将 Brewer 罐与第一个三通接头之间的管路夹紧,断开管路与三通接头的连接,然后将整个 Brewer 罐转移至 34 °C 培养箱。本图已获Edmondson和Norris(2021)许可转载。19. 请点击此处以查看此图的放大版本。
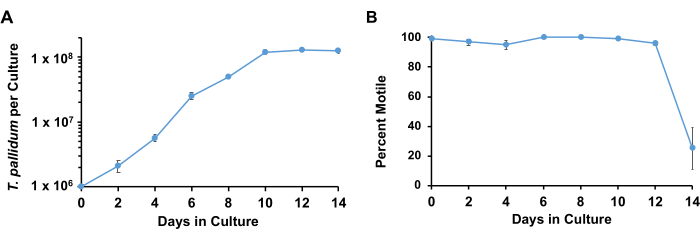
图3:在TpCM-2培养基中与Sf1Ep细胞共培养的T. pallidum的生长曲线。 平行设置三组重复培养,接种T. pallidum。在每个时间点收获重复样本,结果表示为这些培养物的平均值±标准误(SEM)。(A) 每份培养物中T. pallidum的数量变化,以及(B) 运动性百分比。本图经Edmondson等18许可改编。请点击此处查看此图的放大版本。
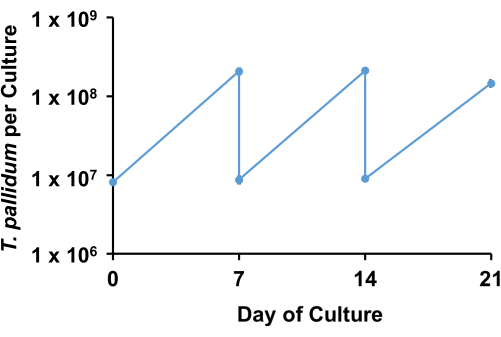
图4传代示例 体外 培养 T. pallidum,Nichols株 平行设置三份培养样本,接种 T. pallidum 并以1:20稀释度每周传代。锯齿状曲线显示了数量变化 T. pallidum 每种培养物及其在每个时间点转移至新培养物的数量。结果表示三次生物学重复的均值 ± 标准误。 请点击此处以查看此图的放大版本。
表1:培养容器的培养基体积和接种比例。 请点击此处下载该表格。
表2:用于梅毒螺旋体(T. pallidum)培养的培养基。 所有培养基在配制后应经滤膜除菌。Sf1Ep培养基可在4 °C下保存长达两个月。TpCM-2通常在使用前一天配制。解离培养基应分装后冷冻保存。请点击此处下载该表格。
讨论
Sf1Ep-TpCM-2 系统是首个可用于促进 T. pallidum 连续 in vitro 培养的方案。该系统较为复杂,原因是该生物体具有极为苛刻的生长需求:1)由于生物合成能力有限,对营养成分有复杂需求;2)尽管对活性氧物种高度敏感,但仍需少量氧气,其具体机制尚不明确9,10,16,36;3)目前仍需 Sf1Ep 细胞的存在。尽管在操作过程中可能有简化步骤的冲动,但在成功建立长期培养之前,仍建议严格遵循本方案的各个步骤,避免擅自修改。随着对 T. pallidum 代谢需求的进一步了解,未来或许能够开发出无需 Sf1Ep 细胞的无细胞培养条件。然而,in vitro 的生长速度可能仍将较慢(最小倍增时间为 33 h 至 46 h,具体取决于菌株)17,18,因为在哺乳动物感染期间,T. pallidum 的估计倍增时间也仅为 30 h 至 33 h37,38。与任何细菌培养一样,建议保存低传代菌种,并使用距离这些原始菌种不超过 10 次传代的 T. pallidum 培养物进行实验,以避免因突变导致的“遗传漂变”及相关表型变化。
Sf1Ep 细胞显然为密螺旋体提供了必要的营养物质或酶活性。然而,它们也会消耗营养物质(如葡萄糖和氧气),并可能产生有毒条件,例如低 pH 值9,16,39。因此,必须在拥有足够数量的 Sf1Ep 细胞以支持 T. pallidum 增殖与防止哺乳动物细胞过度生长及毒性之间取得平衡。高传代次数的 Sf1Ep 细胞通常生长更快,有时会失去支持 T. pallidum 增殖的能力。因此,应监测 Sf1Ep 细胞的传代次数,并定期用低传代的冻存细胞重新替换细胞库。Sf1Ep 细胞的存在也使研究 T. pallidum 的特性(如 DNA、RNA 和蛋白质含量以及酶活性)变得复杂。可通过多次低速离心(100 × g,5 分钟)在一定程度上去除兔源细胞,或更有效地使用 Percoll 或 Hypaque 梯度离心法进行分离40,41。然而,梯度离心法通常仅在 T. pallidum 数量较高时有效。目前,增殖 T. pallidum 的替代方法仅限于感染实验动物(如兔子)13,14。该方法存在伦理问题,且成本日益增加;然而,兔模型在研究 T. pallidum 的致病机制和宿主免疫应答方面非常有用。此外,T. pallidum 在体外培养与兔体内感染过程中,其基因表达、生长或行为可能存在一定差异27。
截至目前,Sf1Ep-TpCM-2 系统已在美国和欧洲至少6个研究团队中建立,并已产出16篇相关论文,研究主题涵盖T. pallidum的基础生物学、遗传学以及对抗菌药物的敏感性等方面。体外培养技术在研究这一神秘病原体方面的价值,将随着应用范围的扩大和未来技术的改进而不断提升。
披露
作者声明无利益冲突。
致谢
本工作由美国国立卫生研究院/国家过敏与传染病研究所资助,资助编号为 R01 AI141958。资助方在研究设计、数据收集与分析、发表决定或稿件撰写过程中均未发挥任何作用。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.5 M EDTA,pH 8.0 | Sigma | E8008 | |
| 10x Earle’s 平衡盐溶液,不含 Mg2+、Ca2+ | Gibco | 14155063 | |
| 15 和 50 mL 圆锥形无菌一次性离心管 | N/A | N/A | |
| 2 mL 冻存管 | Corning | 430659 | |
| 用于 T. pallidum 培养的 6 孔细胞培养板 | Falcon | 353046 | 培养板必须配有低蒸发盖。 |
| 70% 乙醇 | N/A | N/A | |
| 75 cm2 带通气盖的组织培养瓶 | Corning | 43061U | |
| 用于培养基和培养物预平衡的 93.5% 氮气、5% CO2 和 1.5% 氧气 | N/A | N/A | |
| 用于培养基和培养物预平衡的 95% 氮气和 5% CO2 | N/A | N/A | |
| 96 孔低蒸发透明平底组织培养处理微孔板 | Corning Falcon | 353072 | |
| 可调多通道移液器,容量 200 µL | N/A | N/A | 可选,但对克隆操作非常有帮助 |
| 细胞培养级水 | Sigma | W3500 | |
| 不含 L-谷氨酰胺和酚红的 CMRL 1066 | US Biological | C5900-03A | |
| 用于三气和组织培养孵箱的 CO2 | N/A | N/A | |
| 液氮冻存细胞培养储存罐 | N/A | N/A | |
| D-葡萄糖 | Sigma-Aldrich | G6152 | |
| 一次性过滤器单元,0.2 µm,容量 > 100 mL | N/A | N/A | |
| 一次性移液管:25 mL、10 mL、5 mL、抽吸用 | N/A | N/A | |
| DL-二硫苏糖醇 | Sigma-Aldrich | D9779 | |
| D-甘露醇 | Sigma-Aldrich | M1902 | |
| DMSO(无菌细胞培养级) | Sigma-Aldrich | D2650 | |
| Eagle’s MEM | Sigma-Aldrich | M4655 | |
| 胎牛血清,热灭活 | Sigma-Aldrich | F4135 | 强烈推荐此产品。若使用不同品牌或货号,必须预先筛选其对 T. pallidum 培养的兼容性。 |
| 可维持 -70 °C 或 -80 °C 的冷冻柜 | N/A | N/A | 用于 T. pallidum 的储存;也可使用液氮储存 |
| 冻存液(Sf1Ep 培养基 + 10% [v/v] DMSO) | N/A | N/A | |
| 配有合适接头的气体钢瓶 | N/A | N/A | |
| GasPak 150 通气厌氧罐(Brewer 罐) | Fisher Scientific | 11-816 | |
| 甘油 | N/A | N/A | |
| 带 Thoma 刻度的 Helber 计数板 | Hawksley Medical and Laboratory Equipment | 用于定量 T. pallidum | |
| 血细胞计数板 | N/A | N/A | 用于 Sf1Ep 细胞定量 |
| 孵箱气罐切换装置 | NuAire | NU-1550 TankGuard 自动 CO2 孵箱气罐切换装置 | 可选,但对维持适当的 O2 条件非常有帮助。 |
| 带相差光学系统的倒置显微镜 | N/A | N/A | 用于观察 Sf1Ep 细胞培养物 |
| L-谷氨酰胺 | Sigma-Aldrich | G7513 | |
| L-组氨酸 | Sigma-Aldrich | H6034 | |
| MEM 非必需氨基酸 | Gibco | 11140-050 | |
| 带暗场聚光镜的显微镜 | N/A | N/A | 显微镜应配备 40x 物镜和 15x 目镜。 |
| MOPS | Sigma-Aldrich | M3183 | |
| 移液器用多通道适配器 | Integra | 155520 | 可选,但对克隆操作有用 |
| NaHCO3(7.5%) | Sigma-Aldrich | S8761 | |
| 三气孵箱用氮气 | N/A | N/A | |
| 刃天青 | Sigma-Aldrich | R7017 | |
| Sf1Ep(NBL-11)细胞 | 美国模式培养物集存库 | CCL-68 | |
| 丙酮酸钠 | Sigma-Aldrich | S8636 | |
| 无菌 PBS(不含氯化钙和氯化镁) | Sigma-Aldrich | D8537 | |
| 无菌试剂储液槽,50 或 100 mL 规格 | N/A | N/A | |
| T. pallidum 样本,冷冻或新鲜 | 来源于兔感染或体外培养 | ||
| 维持在 37 °C、5% CO2 的组织培养孵箱 | N/A | N/A | |
| 维持在 34 °C、5% CO2、1.5% O2 的三气组织培养孵箱 | Thermofisher | Heracell™ VIOS 160i 三气 CO2 孵箱 | 可选;可使用厌氧罐替代(参见参考文献 17) |
| 胰蛋白酶-EDTA 溶液 | Sigma-Aldrich | T4049 | |
| 真空源(例如,管道真空)、真空管、真空计和连接器 | N/A | N/A | |
| 适用于细胞培养的水,经滤膜除菌、纯化 | Sigma-Aldrich | W3500 | 推荐用于培养基配制;可降低培养变异性 |
参考文献
- Implementing the global health sector strategies on HIV, viral hepatitis and sexually transmitted infections, 2022-2030: Report on progress and gaps. World Health Organization. , Available from: https://www.who.int/publications/i/item/9789240094925 2022-2030 (2024).
- Antal, G. M., Lukehart, S. A., Meheus, A. Z. The endemic treponematoses. Microbes Infect. 4 (1), 83-94 (2002).
- Norris, S. J., Paster, B. J., Smibert, R. M. Bergey's Manual of Systematic Bacteriology. 4, Springer. New York, NY. (2010).
- Lumeij, J. T., Mikalová, L., Šmajs, D. Is there a difference between hare syphilis and rabbit syphilis? Cross infection experiments between rabbits and hares. Vet Microbiol. 164 (1-2), 190-194 (2013).
- Knauf, S., et al. High prevalence and genetic diversity of Treponema paraluisleporidarum isolates in European lagomorphs. Microbiol Spectr. 12 (1), e0177423(2024).
- Šmajs, D., et al. Complete genome sequence of Treponema paraluiscuniculi, strain Cuniculi A: the loss of infectivity to humans is associated with genome decay. PLoS One. 6 (5), e20415(2011).
- Šmajs, D., Norris, S. J., Weinstock, G. M. Genetic diversity in Treponema pallidum: implications for pathogenesis, evolution and molecular diagnostics of syphilis and yaws. Infect Genet Evol. 12 (2), 191-202 (2012).
- Šmajs, D., Strouhal, M., Knauf, S. Genetics of human and animal uncultivable treponemal pathogens. Infect Genet Evol. 61, 92-107 (2018).
- Norris, S. J., Cox, D. L., Weinstock, G. M. Biology of Treponema pallidum: correlation of functional activities with genome sequence data. J Mol Microbiol Biotechnol. 3 (1), 37-62 (2001).
- Radolf, J. D., et al. Treponema pallidum, the syphilis spirochete: making a living as a stealth pathogen. Nat Rev Microbiol. 14 (12), 744-759 (2016).
- Schaudinn, F. R., Hoffman, E. Vorläufiger bericht über das Vorkommen für Spirochaeten in syphilitischen Krankheitsprodukten und bei Papillomen. Arb Gesundh Amt Berlin. 22, 528-534 (1905).
- Schaudinn, F., Hoffmann, E. Über Spirochaetenbefunde im Lymphdrüsensaft Syphilitischer. Deut Med Wochenschr. 31 (18), 711-714 (1905).
- Turner, T. B., Hollander, D. H. Biology of the treponematoses. World Health Organization. , (1957).
- Lukehart, S. A., Marra, C. M. Isolation and laboratory maintenance of Treponema pallidum. Curr Protoc Microbiol. , Chapter 12, Unit 12A.1 (2007).
- Fieldsteel, A. H., Cox, D. L., Moeckli, R. A. Cultivation of virulent Treponema pallidum in tissue culture. Infect Immun. 32, 908-915 (1981).
- Cox, D. L. Culture of Treponema pallidum. Meth Enzymol. 236, 390-405 (1994).
- Edmondson, D. G., Hu, B., Norris, S. J. Long-term in vitro culture of the syphilis spirochete Treponema pallidum subsp. pallidum. mBio. 9 (3), e01153-e01218 (2018).
- Edmondson, D. G., DeLay, B. D., Kowis, L. E., Norris, S. J. Parameters affecting continuous in vitro culture of Treponema pallidum strains. mBio. 12 (1), e03536-e03620 (2021).
- Edmondson, D. G., Norris, S. J. In vitro cultivation of the syphilis spirochete Treponema pallidum. Curr Protoc. 1 (2), e44(2021).
- Edmondson, D. G., Wormser, G. P., Norris, S. J. In vitro susceptibility of Treponema pallidum subsp. pallidum to doxycycline. Antimicrob Agents Chemother. 64 (10), e00979-e01020 (2020).
- Leimer, N., et al. A selective antibiotic for Lyme disease. Cell. 184 (21), 5405-5418 (2021).
- Haynes, A. M., et al. Efficacy of linezolid on Treponema pallidum, the syphilis agent: A preclinical study. EBioMedicine. 65, 103281(2021).
- Houston, S., et al. Identification and functional characterization of peptides with antimicrobial activity From the syphilis spirochete, Treponema pallidum. Front Microbiol. 13, 888525(2022).
- Tantalo, L. C., et al. Antimicrobial susceptibility of Treponema pallidum subspecies pallidum: an in-vitro study. Lancet Microbe. 4 (12), e994-e1004 (2023).
- Hayes, K. A., Dressler, J. M., Norris, S. J., Edmondson, D. G., Jutras, B. L. A large screen identifies beta-lactam antibiotics which can be repurposed to target the syphilis agent. NPJ Antimicrob Resist. 1 (1), 4(2023).
- Tantalo, L. C., Molini, B. J., Bose, M., Klausner, J. D., Giacani, L. In vitro isolation of Treponema pallidum subsp. pallidum from fresh and frozen needle aspirates of primary experimental syphilis lesions. Sex Transm Dis. 50 (3), 180-183 (2023).
- Edmondson, D. G., De Lay, B. D., Hanson, B. M., Kowis, L. E., Norris, S. J. Clonal isolates of Treponema pallidum subsp. pallidum Nichols provide evidence for the occurrence of microevolution during experimental rabbit infection and in vitro culture. PLoS One. 18 (3), e0281187(2023).
- Lin, M. J., et al. Longitudinal TprK profiling of in vivo and in vitro-propagated Treponema pallidum subsp. pallidum reveals accumulation of antigenic variants in absence of immune pressure. PLoS Negl Trop Dis. 15 (9), e0009753(2021).
- De Lay, B. D., Cameron, T. A., De Lay, N. R., Norris, S. J., Edmondson, D. G. Comparison of transcriptional profiles of Treponema pallidum during experimental infection of rabbits and in vitro culture: Highly similar, yet different. PLoS Pathog. 17 (9), e1009949(2021).
- Romeis, E., et al. Genetic engineering of Treponema pallidum subsp. pallidum, the syphilis spirochete. PLoS Pathog. 17 (7), e1009612(2021).
- Phan, A., Romeis, E., Tantalo, L., Giacani, L. In vitro transformation and selection of Treponema pallidum subsp. pallidum. Curr Protoc. 2 (8), e507(2022).
- Romeis, E., et al. Treponema pallidum subsp. pallidum with an artificially impaired TprK antigenic variation system is attenuated in the rabbit model of syphilis. bioRxiv. , 524629(2023).
- Fieldsteel, A. H., Becker, F. A., Stout, J. G. Prolonged survival of virulent Treponema pallidum (Nichols strain) in cell-free and tissue culture systems. Infect Immun. 18, 173-182 (1977).
- U.S. Department of Health and Human Services. Biosafety in Microbiological and Biomedical Laboratories (BMBL) 6th Edition. U.S. Department of Health and Human Services, Centers for Disease Control and Prevention, National Institutes of Health. , (2020).
- Norris, S. J., Miller, J. N., Sykes, J. A., Fitzgerald, T. J. Influence of oxygen tension, sulfhydryl compounds, and serum on the motility and virulence of Treponema pallidum (Nichols strain) in a cell- free system. Infect Immun. 22 (3), 689-697 (1978).
- Cox, C. D., Barber, M. K. Oxygen uptake by Treponema pallidum. Infect Immun. 10 (1), 123-127 (1974).
- Magnuson, H. J., Eagle, H. The minimal infectious inoculum of Spirochaeta pallida (Nichols strain), and a consideration of its rate of multiplication in vivo. Am J Syph. 32, 1-18 (1948).
- Cumberland, M. C., Turner, T. B. The rate of multiplication of Treponema pallidum in normal and immune rabbits. Am J Syph. 33, 201-211 (1949).
- Norris, S. J., Edmondson, D. G. Factors affecting the multiplication and subculture of Treponema pallidum subsp. pallidum in a tissue culture system. Infect Immun. 53, 534-539 (1987).
- Baseman, J. B., Nichols, J. C., Rumpp, O., Hayes, N. S. Purification of Treponema pallidum from infected rabbit tissue: resolution into two treponemal populations. Infect Immun. 10, 1062-1067 (1974).
- Hanff, P. A., Norris, S. J., Lovett, M. A., Miller, J. N. Purification of Treponema pallidum, Nichols strain, by Percoll density gradient centrifugation. Sex Transm Dis. 11, 275-286 (1984).
重印与许可
