本文提供了一种全面的实验方案,利用荧光显微镜检测原代小鼠和人T细胞中的初始局部Ca2+信号(即Ca2+微区)。该方案可为研究免疫细胞内Ca2+信号通路及其功能的科研人员提供重要参考。
本文内容
摘要
摘要
局部的、亚秒级的 Ca2+ 信号被称为 Ca2+ 微区,是一类高度动态且持续时间短暂的 Ca2+ 信号,可导致细胞内全局 [Ca2+]i 升高,并可能已决定 T 细胞的命运。在 T 细胞受体激活后,NAADP 迅速生成,结合于位于内质网和溶酶体等细胞内 Ca2+ 储存库上的 NAADP 结合蛋白(HN1L/JPT2、LSM12)及其相应受体(RyR1、TPC2),进而引发 [Ca2+]i 的相继释放与升高。为了捕捉这些快速且动态发生的 Ca2+ 信号,我们开发了一种高分辨率成像技术,结合使用两种 Ca2+ 荧光探针 Fluo-4 AM 和 FuraRed AM。在后期处理方面,基于 Python 编程语言开发了一种开源的半自动化 Ca2+ 微区检测方法。利用该工作流程,我们能够在高时间与空间分辨率的荧光视频中,可靠地在原代小鼠和人源 T 细胞的亚细胞水平上检测到 Ca2+ 微区。该方法也可应用于其他细胞类型,如自然杀伤(NK)细胞和小鼠神经元细胞系。
引言
所介绍的荧光显微技术能够实现对局部、时间上初始钙(Ca²⁺)信号的可视化观察2+)信号在原代小鼠T细胞中,称为Ca2+ 微结构域。Ca2+ 微区代表高度动态且短暂的Ca2+ 信号事件,为有效的活细胞成像与分析带来挑战1.
由于T细胞中心与外围荧光强度存在相对差异,对其进行活细胞成像具有挑战性,这种差异可归因于其球形形态以及约6-8 µm的较小直径。在受到刺激并形成免疫突触后,T细胞会发生形态学变化,进一步增加了成像难度1。因此,必须采用比率分析方法,该方法可通过记录代表Ca2+染料不同特性的两幅图像,或使用两种Ca2+染料的组合来实现。Ca2+微区具有快速、时间短暂且空间局限的特点,对检测手段提出了较高要求。为了捕捉这些动态变化,所用的Ca2+染料必须具备高基础亮度和高信噪比(SNR),以获得尽可能高的时间和空间分辨率。目前最优的结果是联合使用双波长染料Fura Red和单波长染料Fluo-4。将Fluo-4与Fura Red共负载于细胞中,可缓解双发射波长染料易发生强烈光漂白的问题,并避免双激发波长染料带来的时序延迟,从而适用于快速图像采集。该方法还能更好地呈现细胞形态变化及细微运动。此外,成像系统在空间分辨率方面也面临特殊要求,以实现对源自小簇离子通道甚至单个通道开放所产生的Ca2+信号的可视化1。
Ca2+ 信号在激活 T 细胞内的免疫功能中起着关键作用,包括突触形成以及细胞因子的产生与释放2,3。细胞的特定命运通过不同强度和空间分布的 Ca2+ 信号——即 Ca2+ 微区——进行调控3。值得注意的是,这些局部 Ca2+ 信号早于 T 细胞内广泛升高的细胞内 Ca2+ 水平 ,且 Ca2+ 微区的形成依赖于 Ca2+ 的内流与释放1,4,5。在 T 细胞受体(TCR)/CD3 刺激下,会触发 Ca2+ 释放型第二信使的生成,例如烟酸腺嘌呤二核苷酸磷酸(NAADP)、D-myo-肌醇 1,4,5-三磷酸(IP3)和环状 ADP 核糖(cADPR),导致细胞内 Ca2+ 水平升高至约 1 µM6,7。早期 Ca2+ 信号事件与内质网(ER)等细胞内 Ca2+ 储存库中 Ca2+ 的释放相关,其中主要由兰尼碱受体 1(RyR1)和 IP3 受体(IP3R)介导该信号传导。随后,这一过程触发细胞外 Ca2+ 的内流,并通过库容性 Ca2+ 进入(SOCE)产生全局性 Ca2+ 信号8。此外,在 T 细胞活化过程中还有其他通道参与 Ca2+ 信号传导9,例如 P2X4 和 P2X7 通道介导三磷酸腺苷(ATP)依赖性的阳离子内流,促进细胞内 Ca2+ 升高。值得注意的是,最初的黏附依赖性 Ca2+ 微区(ADCMs)在 TCR 刺激之前即已形成 ,但其 Ca2+ 振幅和频率较低。这些初始的、不依赖 TCR 的 Ca2+ 信号很可能有助于 T 细胞向炎症部位迁移,并使 T 细胞在感染部位为再次刺激做好准备10,11。
通过开发上述局部Ca2+成像方法,我们获得了一种探索T细胞活化过程中早期Ca2+信号起源与意义的新工具。该方法使研究人员能够检测到比以往更为微小、短暂且快速发生的Ca2+信号。 此外,基于Python的分析流程——反卷积、分析、配准、追踪与形态标准化(Deconvolution, Analysis, Registration, Tracking, and Shape normalization, DARTS)——使得分析工具能够被更广泛的研究群体共享使用12。
方案
所有动物实验均经汉堡埃彭多夫大学医学中心机构动物护理和使用委员会批准,并遵循其动物福利指南进行。
1. 从小鼠淋巴结和脾脏中分离原代T细胞
- 根据伦理指南,在无菌条件下取出脾脏/淋巴结,并将其放入含有冰上预冷的Clicks培养基(10% 胎牛血清(FCS)、2 mM L-谷氨酰胺、青霉素/链霉素(P/S)100 U/mL、50 nM β-巯基乙醇)的离心管中。
注意:野生型和基因敲除小鼠T细胞的分离方法相同。 - 将离心机预冷至4 °C。
- 将脾脏和淋巴结置于无菌培养皿中的70 µm细胞筛网上,加入脾脏分离培养基(RPMI培养基 + 7.5% NCS + 1% P/S),总体积为20 mL。
- 使用塑料研磨棒彻底但轻柔地研磨脾脏组织。随后将细胞悬液转移至50 mL离心管中。
注意:此时50 mL离心管中的总体积应为20 mL。脾脏和淋巴结应被完全分散。从此步骤开始所有操作均需在冰上进行。将细胞保持在低温环境中可减缓其代谢活动,防止细胞死亡,确保细胞具有良好的活力和功能完整性,有助于更长时间地维持其生理状态,这对于后续实验的准确性尤为重要。 - 在4 °C下以300 x g 离心5分钟。
- 弃去上清液,并确保将沉淀重悬于2 mL杜氏磷酸盐缓冲液(DPBS)(不含Ca2+和Mg2+)中,转移至新的12 mL离心管。
2. CD4+ T 细胞的阴性筛选
注意:对于CD4的阴性选择+ T细胞,一种含有T细胞分离试剂盒的 FcR阻断剂,抗非CD4的生物素标记抗体+ T细胞和链霉亲和素包被的磁性颗粒被使用。
- 向细胞悬液中加入 T 细胞分离试剂盒中的小鼠 FcR 阻断剂,终浓度为 20 µL/mL。
- 再加入 100 µL 小鼠 CD4+ T 细胞分离混合液(浓度为 50 µL/mL),充分混匀,并在室温(RT)孵育 10 分钟。
- 将包被链霉亲和素的磁性颗粒涡旋振荡 30 秒,取 150 µL 加入细胞悬液中,充分混匀,并在室温(RT)孵育 2 分 30 秒。
- 向细胞悬液中加入 DPBS,补至总体积为 7 mL。用移液器轻柔吹打混匀,然后将样品置于磁力架上,在室温(RT)孵育 2 分 30 秒。
- 随后,轻柔地收集上清液中的富集 T 细胞,并转移至一个新的 12 mL 离心管中。
- 在室温(RT)下以 300 × g 离心 5 分钟。
- 弃去上清液。
- 用 1 mL DPBS 重悬分离并富集的 CD4+ T 细胞,充分吹打混匀。将混合液置于磁力架中,在室温(RT)孵育 2 分 30 秒,以确保无磁珠污染。
- 收集上清液,转移至新的离心管中,并对富集的 T 细胞进行计数。
- 细胞计数时,使用台盼蓝染色,并用自动细胞计数仪进行计数。
注意:最好在分离当天直接接种分离得到的 CD4+ T 细胞并在同日进行成像。然而,原代小鼠 T 细胞可在分离培养基(RPMI 1640 + 10% FCS + P/S)中,于 37 °C、5% CO2 的培养箱内无刺激培养过夜。
3. 小鼠原代 CD4+ T 细胞的加载
注意:为了测量游离胞质 Ca2+ 浓度,在 Ca2+ 成像实验中使用荧光性和膜通透性染料。Fluo-4-乙酰甲氧基酯(AM)与比率型染料 Fura Red-AM 的组合可作为快速检测局部 Ca2+ 信号的指示剂。使用荧光染料时应确保在避光条件下操作。
- 将 2–5 × 10⁶ 个细胞在 300 × g 条件下离心 5 分钟,弃去上清液,然后用 480 µL T 细胞培养基(RPMI 1640,10% FCS)重悬,其中含 10 µM Fluo-4-AM(储存液:[1 mM])和 20 µM Fura Red-AM(储存液:[4 mM])。
- 初始孵育在室温下避光进行 20 分钟,将离心管用铝箔包裹。
注意:初始孵育时间不得超过,因为 Ca2+ 指示剂溶解于 DMSO 中,在低总体积下长时间暴露可能对细胞有害。染料具有光敏感性,因此染色后应始终使细胞避光。 - 初始 20 分钟孵育结束后,向细胞中加入 2 mL T 细胞培养基,并在室温下继续避光孵育 30 分钟。
- 将细胞悬液在室温下以 300 × g 离心 5 分钟。
- 弃去上清液,用 2 mL Ca2+ 测定缓冲液(140 mM NaCl,5 mM KCl,1 mM MgSO4,1 mM CaCl2,20 mM HEPES,1 mM NaH2PO4,5 mM 葡萄糖,pH 7.4)洗涤细胞沉淀,随后在室温下以 300 × g 离心 5 分钟。
- 最后,弃去上清液,用 Ca2+ 测定缓冲液重悬细胞沉淀,调整细胞浓度至每 10 µL 约含 100,000 个细胞。
注意:每次测量使用 10 µL 细胞悬液。避免过度稀释细胞,因为在显微镜下可能需要进一步调整细胞数量以达到最佳测量条件。 - 让细胞再孵育约 20 分钟,以确保染料充分渗入细胞并完成去酯化。测量前将细胞置于冰上并避光保存。
注意:负载染料的原代小鼠 T 细胞在染色后最多可在约 4 小时内使用。
4. 局部 Ca2+ 成像
- 载玻片制备
- 用牛血清白蛋白(BSA,5 mg/mL)和多聚-L-赖氨酸(PLL,0.1 mg/mL)包被显微镜盖玻片(24 mm × 46 mm)(图1A)。先让BSA孵育约20分钟,再加入PLL。
注意:包被有助于细胞黏附。为确保细胞良好黏附,需均匀涂布BSA和PLL,直至无可见条纹。 - 为构建反应腔室,使用硅胶膏将可重复使用的橡胶O型圈粘附到载玻片上(图1B、C)。
注意:也可使用其他载玻片/腔室或培养板,如35 mm载玻片、可重复使用的金属腔室,或8、24或48孔板,用于图像采集。
- 用牛血清白蛋白(BSA,5 mg/mL)和多聚-L-赖氨酸(PLL,0.1 mg/mL)包被显微镜盖玻片(24 mm × 46 mm)(图1A)。先让BSA孵育约20分钟,再加入PLL。
- 蛋白G磁珠(直径10 µm)的抗体包被
- 轻轻混匀蛋白磁珠悬浮液,并转移12.5 µL至新离心管中。
- 将离心管置于磁力架上,去除保存缓冲液,使磁珠迁移至磁铁一侧。用移液器从磁铁对侧小心吸除保存缓冲液。
- 为去除残留的保存缓冲液,加入500 µL PBS-T(PBS,0.1% Tween),涡旋振荡10秒进行洗涤。再次将离心管置于磁力架上,去除缓冲液。
- 为使磁珠包被抗体,将磁珠重悬于7.5 µL PBS-T中,分别加入5 µL抗CD3抗体(0.5 mg/mL)和抗CD28抗体(0.5 mg/mL)。室温下持续混匀孵育30–60分钟。
- 用500 µL PBS-T洗涤包被后的磁珠三次,随后使用磁力架用500 µL Ca2+ 测量缓冲液洗涤一次。
- 将磁珠重悬于200–400 µL Ca2+ 测量缓冲液中。
注意:测量过程中检查磁珠密度,必要时进一步稀释。
- 局部Ca2+成像显微镜检测
注意:成像使用配备氙弧灯作为光源的明场光学显微镜,放大倍数为100倍。采用电子倍增电荷耦合相机,以14位模式、2×2 binning方式采集图像。为记录并分离两种染料的发射波长,使用双通道成像模块,其滤光片参数如下(单位nm:激发,480/40;二向色镜,495;发射1,542/50;发射2,650/57)。成像系统包括图像采集中心和成像软件。- 取10 µL负载细胞滴加至制备好的载玻片上,静置3–5分钟使其贴附。
- 轻柔加入80 µL Ca2+测量缓冲液至载玻片。
- 选择100倍油浸物镜,滴加少量浸油,将载玻片置于显微镜载物台上。
- 在明场模式下调节焦距,仔细选择一个视野,其中包含最多10个彼此不接触的细胞,并采集图像。
注意:重叠或相互接触的细胞后续难以分析。- 打开光源,检查荧光信号及T细胞负载情况,比较两个通道中的细胞,确认其未发生预激活。
- 确保在测量前后分别拍摄明场和荧光通道的视野图像,以检查细胞是否移动及染料负载情况。
- 开始测量,以每5秒1帧的采集速率记录1分钟的基础活性。
- 1分钟后加入10 µL化合物/刺激物(磁珠或激动剂/抑制剂),继续测量3分钟,采集速率为每秒40帧或设备所能达到的最高帧率。
注意:添加磁珠是关键步骤;应确保磁珠加在载玻片上激发光附近区域,同时避免移动载玻片。野生型及P2x4-/-和P2x7-/-小鼠原代CD4+ T细胞在磁珠接触后产生的Ca2+微区的代表性图像见图2。
5. 后处理/数据分析
注意:图像处理与数据分析采用基于 Python 的开源流程 DARTS。该流程由 Woelk 等人12基于 Diercks 等人13的研究开发而成。
- 安装 DARTS 流程
- 安装 Python 3.10.014、anaconda15 和 git16,并使用终端命令 git clone: https://github.com/IPMI-ICNS-UKE/DARTS.git 克隆 GitHub 仓库
- 使用 conda create --name DARTS 创建 conda 环境,并使用 pip install <package>. 安装所有必要的 Python 包。
注意:有关更详细的信息,请参阅 DARTS GitHub 仓库中的安装说明17,18。 - 在使用 Bioformats 之前,请确保已正确安装 Java 运行环境19。
- DARTS 流程的使用
注意:安装完成后,可通过终端窗口启动 DARTS。- 导航至包含 main.py 文件的 DARTS 仓库本地副本目录(cd path/to/DARTS),并确保已激活 conda 环境(conda activate DARTS)。
- 在终端窗口中输入 python main.py 并按 Enter 键执行 DARTS。
- 在图形用户界面(GUI)中,于左上角区域指定源目录和结果目录以及图像格式(见 图 3)。
- 定义测量参数,例如比例尺(微米对应的像素数)、帧率、细胞类型等。可根据具体的图像数据和研究问题构建处理流程。
注意:有关去卷积参数的更多内容,请参阅相应文档20。 - 点击 开始 按钮前,请先将设置保存至计算机。GUI 的更详细说明可在 DARTS 文档中找到。
- Ca2+ 微区成像与微珠接触
注意:对于使用微珠进行局部成像和刺激,以及后续的图像分析,用户需自行定义细胞特异性的微珠接触,以确定感兴趣测量时段的起始点(t = 0)(见 图 4)。微珠接触定义为(刺激性)微珠与目标细胞的接触位点,包括两个要素:(1)微珠接触时间,例如第 300 帧;(2)微珠接触位置相对于细胞中心的位置,例如 1 点钟或 12 点钟方向。当前版本的 DARTS 要求用户手动定义并输入每个微珠接触的信息。请按以下步骤定义微珠接触:- 使用滑块精确定位微珠与目标细胞的接触时间。
- 在右侧选项菜单中选择 bead contact: x, y, t。
- 在图像左侧选择细胞与微珠接触的位置点。
- 选择 Choose cell by clicking a point inside,然后点击被该微珠刺激的细胞,建议点击细胞中心区域。
- 点击 ADD bead contact。
- 对本文件中每个额外的微珠接触重复步骤 5.3.1–5.3.5。定义完所有微珠接触后,点击 Continue 按钮。
- 继续处理其他文件。当处理到最后一个文件时,脚本将自动启动对所有文件的分析。
- 数据分析
- 在结果文件夹中查找处理后的比率图像、每个细胞随时间变化的微区数据(包括定位、幅度、大小)、飞镖图投影的源数据以及其他资源。
- 要生成飞镖图,请进入 DARTS 文件夹内的 /src/analysis/ 目录(路径格式:cd path/to/DARTS/src/analysis),该目录包含脚本 DartboardPlotGUI.py。然后输入 python DartboardPlotGUI.py 并按 enter 键。
- 确保提供必要的信息,并准确选择结果文件夹中的电子表格文件作为生成飞镖图的源文件。
结果
本方案中,我们基于本课题组先前的研究1,13,概述了一种用于成像和分析原代小鼠T细胞中初始Ca2+微区的更新方法。该方法在揭示CRAC通道(如ORAI1、STIM1和STIM2)以及细胞内Ca2+释放通道(如RyR1)在早期Ca2+信号事件中的作用方面发挥了关键作用4。
为此,我们通过成像技术研究了未受刺激的小鼠原代 Orai1-/-、Stim1-/-、Stim2-/-, 和 Ryr1-/- T 细胞中自发性 Ca2+ 微区的形成,并将其与野生型(WT)小鼠原代 T 细胞进行比较。Ca2+ 微区形成的分析包括信号起始速度、Ca2+ 幅值以及共聚焦平面上每单位的信号数量。值得注意的是,除 Stim2-/- T 细胞外,所有基因敲除(KO)T 细胞均表现出局部 Ca2+ 信号显著减少,且与 WT 细胞相比,其基础游离胞质 Ca2+ 浓度降低。这使我们得出结论:Ca2+ 微区的形成与 ORAI1、STIM1 和 RyR1 的相互作用密切相关4。此外,我们成功鉴定并表征了质膜上自发产生的 Ca2+ 微区。这些 Ca2+ 微区的 Ca2+ 幅值为 290 nm ± 12 nm。采用颜色编码方法对 Ca2+ 信号进行可视化,实现了细胞内 Ca2+ 微区的全细胞分布成像。结果进一步揭示了 Ca2+ 微区的快速起始特性,可在毫秒内被检测到,并表明该方法能够检测持续时间为数毫秒的 Ca2+ 信号4。这些自发性 Ca2+ 微区随后被鉴定为依赖黏附的 Ca2+ 微区(ADCM),其形成不仅依赖于 SOCE,还通过 FAK/PLC-γ/IP3 信号通路10 并涉及 P2X4 受体9。此外,该技术在确认双氧化酶 1 和 2(DUOX1/2)为 NAADP 合成酶21,以及 HN1L/JPT222 为新近发现的 NAADP 结合蛋白之一23 的研究中发挥了关键作用。
图2 展示了野生型(WT)以及 P2x4-/- 和 P2x7-/- 小鼠来源的原代 CD4+ T 细胞在与微珠接触后典型的 Ca2+ 微区实例。细胞负载了 Ca2+ 荧光染料 Fluo-4 AM 和 Fura Red AM,并以 25 ms(每秒 40 帧)的采集速率进行成像。为模拟 T 细胞突触的形成,使用包被抗 CD3/抗 CD28 抗体的微珠刺激细胞。利用 DARTS 分析流程,对微珠接触前 1 秒至接触后 15 秒内的初始 Ca2+ 微区形成过程进行了分析。微珠接触后,WT 细胞在刺激后第一秒内在微珠接触位点迅速形成 Ca2+ 微区(图2A)。随后 15 秒内,这些 Ca2+ 微区进一步向细胞其他区域扩展。与 WT 细胞相反,P2x4-/- 和 P2x7-/- 细胞(图2B)在微珠刺激后 Ca2+ 微区的形成减少,其中 P2x4-/- 细胞在微珠接触前的基础水平也较低。这些代表性结果与 Brock 等人先前发表的研究结果一致9,表明在微珠接触后的 15 秒内,WT T 细胞中可观察到明显的 Ca2+ 微区形成,而 P2x4-/- 和 P2x7-/- 细胞每帧信号较弱。此外,P2x4-/- 细胞的信号振幅显著降低,进一步证实了嘌呤能信号在依赖黏附的 Ca2+ 微区形成中的作用。
此外,该方法还可用于可视化人原代CD4+ T细胞中的初始Ca2+微区(图3)。与小鼠原代T细胞类似,初始Ca2+微区在微珠接触位点被诱发。然而,整体Ca2+反应的发生时间尺度似乎与小鼠CD4+ T细胞有所不同。
手动分析局部 Ca2+ 信号并不可行,因为该过程极为耗时,且结果易受研究者主观判断的影响。因此,我们此前在 MATLAB Simulink 中开发了一种算法,利用其图像处理与优化工具箱进行后期处理13,以分析局部 Ca2+ 微区信号。
近期,我们开发了一种新的开源后处理流程 DARTS,用于在高分辨率活细胞成像中分析 Ca2+ 微区,该流程基于软件平台 Python12。在此流程中,用户可根据偏好选择不同的去卷积算法,进行细胞形态归一化以校正细胞形态变化,并定义显微镜和测量相关的特定参数(如尺度、帧率、测量时间)(图 4)。
在选择 Ca 的参数后2+ 微区分析,每次单独测量时会打开一个弹出窗口,用于定义珠粒接触点(图5)。为了确定微珠接触,用户可手动拖动滑块浏览 tiff 文件,逐帧选择微珠接触的图像。通过在微珠接触位置处点击,即可选定微珠接触。图5,由黄色圆环和箭头指示的珠粒与珠粒接触)以及细胞选择。此步骤必须针对每个目标细胞重复进行。最后,应用自动化的图像后处理,并将结果数据汇总后保存至电子表格中。
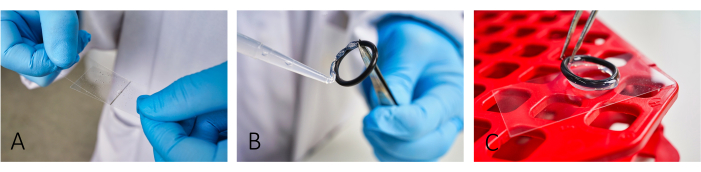
图 1:成像用载玻片制备流程图。(A)使用另一块盖玻片将 BSA 和 PLL 加样并均匀涂布在载玻片上。(B、C)构建反应腔室时,将橡胶 O 形圈用硅脂粘附于载玻片上。确保整个 O 形圈表面覆盖一层薄而均匀的硅脂,以实现腔室的良好密封。请点击此处查看该图的放大版本。
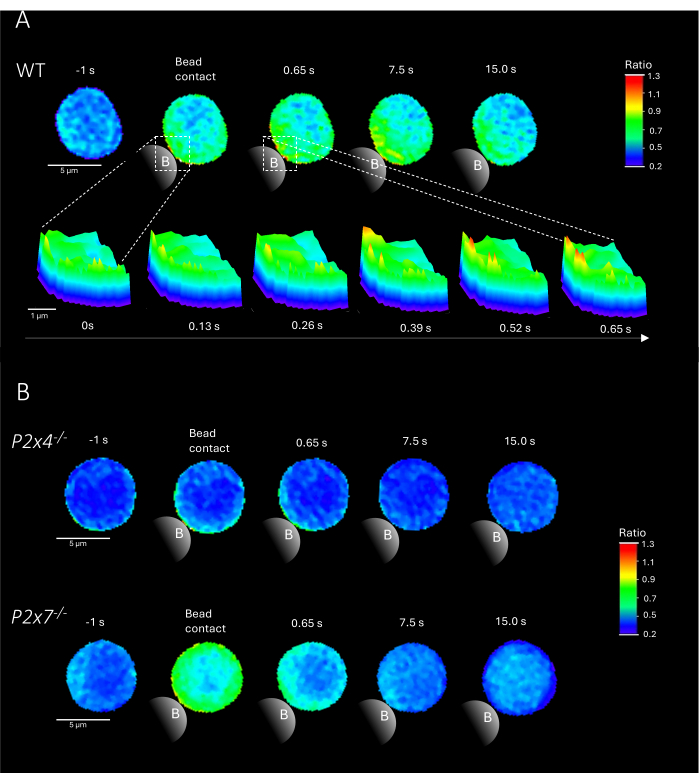
图 2:小鼠原代野生型(WT)(A)、P2x4-/- 或 P2x7-/-(B)CD4+ T 细胞中 T 细胞受体依赖性 Ca2+ 微区的代表性图像。 CD4+ T 细胞经阴性分离后,按上述方法负载 Fluo-4 AM 和 Fura Red。使用 DARTS 分析流程对 T 细胞进行分析,所得细胞图像与先前发表的结果具有可比性9。(A) WT 原代 T 细胞在经抗 CD3/抗 CD28 包被微珠刺激前 1 秒及刺激后至 15 秒的图像(比例尺 5 µm),以及微珠接触区域从 0 秒到 0.65 秒的局部放大 3D 表面图(比例尺 1 µm)。(B) 上排:代表性 P2x4-/- 原代 T 细胞在微珠刺激前 1 秒及刺激后至 15 秒的图像;下排:代表性 P2x7-/- 原代 T 细胞在微珠刺激前 1 秒及刺激后至 15 秒的图像。请点击此处查看此图的放大版本。

图3:TCR刺激后代表性原代人T细胞中的Ca2+微区。 原代人CD4+ T细胞从血沉棕黄层来源的外周血单个核细胞(PBMCs)中通过荧光激活细胞分选(FACS)分离,并按前述方法负载Fluo-4 AM和Fura Red。该图显示了一个原代人T细胞在抗CD3包被微珠刺激前1秒至刺激后15秒的图像(比例尺5 µm),以及在微珠接触区域从6.25秒到7.5秒时间段的放大3D表面图(比例尺1 µm)。请点击此处查看该图的高清版本。
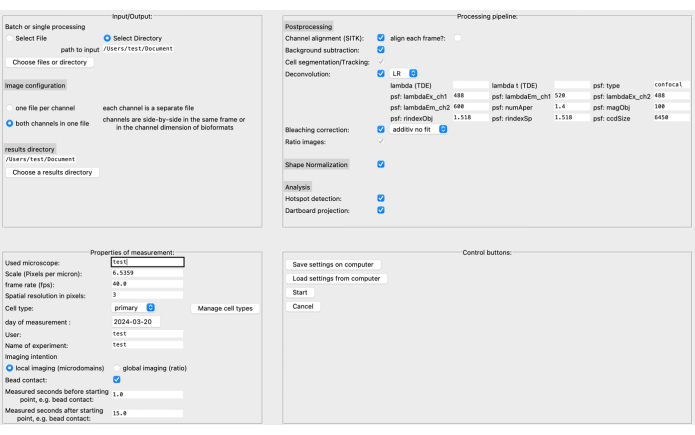
图 4:DARTS 图形用户界面(GUI)。该界面分为四个区域。在输入/输出区域中,需提供关于原始数据的信息,包括源目录和图像配置(每文件两个通道或独立通道),以及结果目录。在测量属性区域中,需描述实验的所有相关信息,例如尺度(微米/像素)、帧率,以及相对于后续确定的起始点的测量时间间隔。接下来,可构建一个包含后处理步骤、形状归一化以及实际分析(微区检测与靶标数据累积)的处理流程。最后,可将设置保存至计算机或从中加载。完成分析设置后,点击开始以继续。欲了解有关设置的更多信息,请访问 https://ipmi-icns-uke.github.io/DARTS/General/Usage.html。请点击此处查看此图的放大版本。
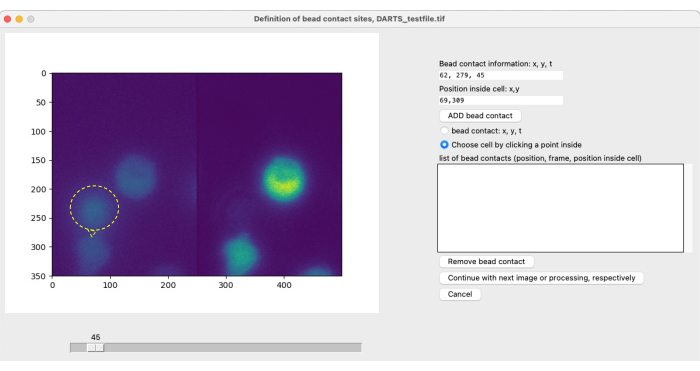
图 5:珠粒接触的手动定义。 如果在实验过程中向细胞添加了珠粒,则必须手动定义珠粒与目标细胞的初始接触时间及接触位置。操作方法是通过滑块逐帧浏览,找到某一时间点 (x,y) 上的位置 t。为自动填充珠粒接触信息字段,用户需在显微镜图像的左侧半部、珠粒接触位置处单击。接下来,为将细胞与珠粒接触相关联,用户需在具有珠粒接触的细胞内部某一位置单击。该操作需通过选择 ADD bead 进行确认。请点击此处查看此图的放大版本。
讨论
我们描述了一种详细的方案,用于对经抗体包被的微珠刺激TCR/CD3后,原代小鼠和人T细胞中局部Ca2+微区进行高分辨率的活细胞成像。此外,我们开发了一种基于Python的用户友好型、开源算法,用于识别和分析局部Ca2+信号。值得注意的是,该方案不仅限于TCR/CD3刺激条件下的Ca2+微区检测,还可适用于其他(免疫)细胞类型,例如NK细胞系(KHYG-1)12,或TCR非依赖性的Ca2+微区10,11。
该方案中的一个关键步骤是刺激磁珠的大小和数量。为了模拟免疫突触,磁珠的尺寸应与细胞相近。因此,对于原代小鼠和人T细胞以及细胞系(Jurkat和KHYG1),我们使用直径为10 µm的磁珠。此外,每个细胞应仅被单个磁珠刺激。因此,一方面加入每张载玻片的磁珠数量应足够,但若视野中磁珠过多,则背景信号会增加,导致无法检测单个激活时间点及接触面。
该方案采用荧光 Ca2+ 染料 Fluo-4 AM 和 FuraRed AM 进行比例式检测,从而实现对数据的校准13。此外,该方案也可适配于其他 Ca2+ 指示剂组合,但在选择时需谨慎考虑 Ca2+ 结合动力学、亚细胞分布以及光漂白特性1。同时,不同细胞类型的染料负载条件需分别开发和优化,但本文所列浓度可作为良好的起始参考。为观察 Ca2+ 微区,Ca2+ 染料的解离常数(Kd)应处于 300–1200 nM 范围内 ,且每帧图像的采集时间应 ≤60 ms。若荧光强度过低,需检查滤光片组,也可尝试将 T 细胞负载的 Ca2+ 染料剂量加倍。然而,Ca2+ 染料可能错误定位至其他细胞器或被囊泡隔离,还可能发挥 Ca2+ 缓冲作用,进而影响 Ca2+ 信号响应。
分析算法的一个局限性在于其假设细胞呈球形;因此,对于具有不同形态的细胞类型,可能需要对分析工具箱进行调整。该算法已成功用于分析原代小鼠T细胞、Jurkat T细胞以及NK细胞系(KHYG-1)中的局部Ca2+微区12 ,并已有效应用于小鼠神经元细胞系(N2a,未发表数据)的Ca2+微区分析。原则上,该实验方案和分析工具箱也可用于分析非球形细胞类型(如HEK293或HeLa细胞),但对于这些细胞类型,无法适用靶盘投影法,因为该方法依赖于 细胞的圆形结构和形状标准化。此外,检测微珠刺激后局部初始Ca2+微区的实验方案可进一步调整,以分析由其他刺激引发的局部Ca2+信号,例如可溶性激活或抑制性化合物,以及黏附依赖性或TCR/CD3非依赖性的Ca2+微区10,11。值得注意的是,相较于可溶性化合物刺激后激活起始点的确定,微珠接触在时间和空间位置上的界定更为明确。
检测钙离子(Ca2+)微区形成的普遍局限在于需要高时空分辨率以及足够高的信噪比(SNR)。目前,本实验系统所达到的分辨率约为0.368 µm的空间分辨率和约每秒40帧(fps)的时间分辨率1。随着相机与探测器技术的最新进展,以及荧光染料性能的不断提升,未来有望实现光学单通道记录,类似于已报道的ORAI-GECI(基因编码的Ca2+指示剂)体系在活细胞成像中利用具有更高时空分辨率的Ca2+指示剂所实现的结果24。
综上所述,本文所述的高分辨率Ca2+微区成像方案及分析工具不仅可用于分析T细胞中的初始局部Ca2+信号,还可适用于其他细胞类型,以解析局部Ca2+信号在这些细胞中的意义。
披露
作者声明,本研究是在不存在任何可被视为潜在利益冲突的商业或财务关系的情况下进行的。
致谢
本工作由德国研究基金会(DFG)(项目编号 335447717;SFB1328,A02 项目资助 B-PD 和 RW;A14 项目资助 ET;项目编号 516286863 资助 B-PD)提供支持。作者感谢献血者以及UKE输血医学科的协作。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| α-CD3 | BD Pharmingen | 553058 | |
| α-CD28 | BD Pharmingen | 553295 | |
| Anaconda | Anaconda | https://docs.anaconda.com/free/anaconda/install/index.html | |
| 牛血清白蛋白 | Sigma-Aldrich | A2058 | |
| 细胞筛 | Biofil | CSS-013-070 | 70 µm 直径 |
| Countess 自动细胞计数仪 | Invitrogen | A49865 | |
| 盖玻片 | Paul Marienfeld GmbH | 101202 | |
| DARTS | GitHub | https://github.com/IPMI-ICNS-UKE/DARTS | |
| Dulbecco’s 磷酸盐缓冲液 | Gibco, Thermo Fisher | 14190144 | |
| EasySep CD4+ T 细胞分离试剂盒 | Stemcell | 19852 | |
| EasySep 磁力多管架 | Stemcell | 18010 | |
| Fluo 4-AM | Invitrogen | F14201 | |
| Fura Red-AM | Invitrogen | F3020 | |
| Gibco RPMI 1640 培养基 | Gibco, Thermo Fisher | 11875093 | |
| Git | GitHub | https://git-scm.com/book/en/v2/Getting-Started-Installing-Git | |
| 浸油 | Leica | 11513859 | |
| 新生牛血清 | Sigma-Aldrich | N4637 | |
| Oracle | Oracle | https://www.oracle.com/de/java/technologies/downloads/ | |
| 青霉素/链霉素 | Gibco, Thermo Fisher | 15240062 | |
| 聚-L-赖氨酸 | Sigma-Aldrich | P4707 | |
| Protein G 磁珠 | Merck | LSKMAGG02 | 10 µm 直径 |
| Python | Python | https://www.python.org/downloads/ | |
| 硅脂(Basylone) | Bayer | 291-1220 | |
| 时间依赖性熵去卷积 | GitHub | https://ipmi-icns-uke.github.io/TDEntropyDeconvolution/General/2-usage.html#input-parameters | |
| Tween | q-biogene | TWEEN201 |
参考文献
- Wolf, I. M. A., et al. Frontrunners of T cell activation: Initial, localized Ca2+ signals mediated by NAADP and the type 1 ryanodine receptor. Sci Signal. 8 (398), 102(2015).
- Taguchi, T., Mukai, K. Innate immunity signalling and membrane trafficking. Curr Opin Cell Biol. 59, 1-7 (2019).
- Trebak, M., Kinet, J. -P. Calcium signalling in T cells. Nat Rev Immunol. 19 (3), 154-169 (2019).
- Diercks, B. -P., et al. ORAI1, STIM1/2, and RYR1 shape subsecond Ca2+ microdomains upon T cell activation. Sci Signal. 11, 0358(2018).
- Cheng, H., Lederer, W. J., Cannell, M. B. Calcium sparks: Elementary events underlying excitation-contraction coupling in heart muscle. Science. 262 (5134), 740-744 (1993).
- Feske, S. Calcium signalling in lymphocyte activation and disease. Nat Rev Immunol. 7 (9), 690-702 (2007).
- Berridge, M. J., Lipp, P., Bootman, M. D. The versatility and universality of calcium signalling. Nat Rev Mol Cell Biol. 1 (1), 11-21 (2000).
- Kummerow, C., Junker, C., Kruse, K., Rieger, H., Quintana, A., Hoth, M. The immunological synapse controls local and global calcium signals in T lymphocytes. Immunol Rev. 231 (1), 132-147 (2009).
- Brock, V. J., et al. P2X4 and P2X7 are essential players in basal T cell activity and Ca2+ signaling milliseconds after T cell activation. Sci Adv. 8 (5), 9770(2022).
- Weiß, M., et al. Adhesion to laminin-1 and collagen IV induces the formation of Ca2+ microdomains that sensitize mouse T cells for activation. Sci Signal. 16 (790), 9405(2023).
- Diercks, B. -P. The importance of Ca2+ microdomains for the adaptive immune response. Biochim Biophys Acta Mol Cell Res. 1871 (5), 119710(2024).
- Woelk, L. -M., et al. DARTS: an open-source Python pipeline for Ca2+ microdomain analysis in live cell imaging data. Front Immunol. 14, 1299435(2024).
- Diercks, B. -P., Werner, R., Schetelig, D., Wolf, I. M. A., Guse, A. H. High-resolution calcium imaging method for local calcium signaling. Methods Mol Biol. 1929, 27-39 (2019).
- Python. Python. , Available from: https://www.python.org/downloads/ (2024).
- Anaconda. Anaconda. , Available from: https://docs.anaconda.com/free/anaconda/install/index.html (2024).
- git. git. , Available from: https://git-scm.com/book/en/v2/Getting-Started-Installing-Git (2024).
- DARTS. DARTS. , Available from: https://github.com/IPMI-ICNS-UKE/DARTS (2024).
- DARTS. DARTS GitHub Repository. , Available from: https://ipmi-icns-uke.github.io/DARTS/ (2024).
- Oracle. , Available from: https://www.oracle.com/de/java/technologies/downloads/ (2024).
- Time-Dependent Entropy Deconvolution. , Available from: https://ipmi-icns-uke.github.io/TDEntropyDeconvolution/General/2-usage.html#input-parameters (2024).
- Gu, F., et al. Dual NADPH oxidases DUOX1 and DUOX2 synthesize NAADP and are necessary for Ca2+ signaling during T cell activation. Sci Signal. 14 (709), 3800(2021).
- Roggenkamp, H. G., et al. HN1L/JPT2: A signaling protein that connects NAADP generation to Ca2+ microdomain formation. Sci Signal. 14 (675), 5647(2021).
- Heßling, L. D., Troost-Kind, B., Weiß, M. NAADP-binding proteins - Linking NAADP signaling to cancer and immunity. Biochim Biophy. Acta Mol Cell Res. 1870 (7), 119531(2023).
- Dynes, J. L., Amcheslavsky, A., Cahalan, M. D. Genetically targeted single-channel optical recording reveals multiple Orai1 gating states and oscillations in calcium influx. Proc Natl Acad Sci U S A. 113 (2), 440-445 (2016).
重印与许可
