本方案建立了提取和量化秀丽隐杆线虫(C. elegans)对挥发性性信息素响应的方法,提供了研究化学通讯及运动轨迹的工具。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
化学通讯在生物体的健康、繁殖和整体福祉中至关重要。理解调控这些信号的分子通路、神经过程及计算机制仍是当前活跃的研究领域。线虫Caenorhabditis elegans 是研究这些过程的有力模型,因为它能产生一种挥发性性信息素。这种信息素由未交配的雌性或精子耗尽的雌雄同体个体合成,可吸引雄性个体。
本方案详细描述了从多种生物中分离挥发性性信息素的方法 秀丽隐杆线虫 品系(野生型品系 N2, daf-22,以及 fog-2)和 C. remanei我们还提供了一种定量分析雄性对挥发性性信息素趋化反应的实验方案。本分析采用趋化指数(C.I.)、到达时间(A.T.)以及轨迹图等指标,以准确比较不同条件下雄性的反应。该方法可实现对不同遗传背景或发育阶段雄性个体间的稳健比较。此外,本文所述实验装置可适用于其他化学吸引物质的探究。
引言
化学通讯与繁殖成功率之间的相互作用是动物界普遍存在的基本原理1,2,3,4,5,6,7,8,9,10。性信息素可触发多种性别二态性行为,这些行为对于寻找配偶、协调求偶过程中的各项步骤以及最终促进物种繁衍至关重要11,12,13,14,15,16,17。尽管在理解信息素信号传导方面已取得显著进展,但调控这些相互作用的分子机制、神经回路及计算过程往往仍未完全阐明18,19,20,21,22,23,24,25,26。
线虫Caenorhabditis elegans 为解析上述问题提供了强有力的模型。值得注意的是,C. elegans 具有一种特殊的繁殖策略——雌雄同体个体既能自体受精,也能与雄性进行异交27,28,29,30,31,32,33。这种灵活性需要一个稳健的通讯系统来传递生殖状态信息。C. elegans 以其特征明确的水溶性信息素——蛔甙(ascarosides)而闻名,这类物质在发育、行为及社会性相互作用中发挥多种作用。近期研究发现了一类独特的挥发性性信息素,由线虫所使用。这类信息素特异性地由性成熟且未交配的C. elegans 和C. remanei 雌虫以及精子耗尽的雌雄同体个体产生,可吸引成年雄虫29,34,35。该吸引信号在产生和感知方面表现出显著的性二型性。这种挥发性性信息素的合成由雌性体细胞性腺调控,其产生动态反映生殖状态:交配后合成立即停止,数小时后重新恢复29,34。
研究线虫性信息素通讯有助于理解化学通讯系统的演化、生殖状态与行为之间的相互作用,以及性二态性神经处理背后的机制24,26,36,37,38,39。研究表明,雄性中的纤毛神经元AWA在信息素检测中起关键作用,其中G蛋白偶联受体SRD-1在雄性信息素感知中发挥重要作用24。C. elegans 是研究动物化学通讯,尤其是性信息素信号传导的理想模式生物,因其依赖嗅觉系统进行配偶搜寻。尽管关于ascaroside信号通路已有大量研究,但挥发性性信息素系统为比较研究提供了独特的机会25,26,36,40,41,42,43,44,45,46,47,48,49,50,
51,52,53,54,55,56,57。此外,C. elegans 作为一种强大的遗传学模式生物,具有基因组完全测序、细胞谱系明确以及嗅觉突变体特征清晰等优势。
然而,参与处理该信息素的完整神经回路、将信息素感知转化为定向求偶搜寻行为的计算机制,以及其生物合成的调控机制,仍有待完全阐明。对这些过程的进一步研究对于理解调控动物通讯和繁殖行为的多样化机制至关重要。鉴定参与信息素合成、分泌和感知的关键基因,有望揭示动物通讯中新的分子参与者。 本文所述的实验方法 为回答这些 问题提供了基础。
访问受限。请登录或开始试用以查看此内容。
方案
1. 雌性和两性个体粗提信息素的提取
- 秀丽隐杆线虫同步化实验方案
- 成年雌性或雌雄同体的准备
- 每日监测培养板,直至出现大量成年雌性/雌雄同体且OP50食物来源耗尽。使用fog-2 C. elegans和野生型C. remanei雌性提取粗制性信息素,并从交配后的雌性中制备同步化卵。
注意:在本实验方案中,C. elegans fog-2突变型XX个体不产生自体精子,因此称为C. elegans雌性。
- 每日监测培养板,直至出现大量成年雌性/雌雄同体且OP50食物来源耗尽。使用fog-2 C. elegans和野生型C. remanei雌性提取粗制性信息素,并从交配后的雌性中制备同步化卵。
- 线虫洗涤与沉淀
- 用M9缓冲液冲洗混合种群板上的成年线虫,将线虫悬液收集至1.5 mL微量离心管中。在1,500 × g下离心0.5–1分钟,使线虫沉淀。
注意:严重污染时的预清洗(可选):若污染严重,让线虫在管中自然沉降,吸除上清液以去除细菌,重复此步骤直至上清液澄清。
- 用M9缓冲液冲洗混合种群板上的成年线虫,将线虫悬液收集至1.5 mL微量离心管中。在1,500 × g下离心0.5–1分钟,使线虫沉淀。
- 漂白处理
- 向线虫沉淀中加入200 µL M9缓冲液。通过将家用漂白剂与1 M NaOH按1:1比例混合制备裂解缓冲液。向混合物中加入500 µL该裂解缓冲液,涡旋10秒,然后暂停,在解剖显微镜下观察裂解情况。重复10秒涡旋与观察的过程,直至成年线虫完全裂解。
- 终止漂白反应并沉淀胚胎
- 当成年线虫裂解为小碎片(但尚未完全溶解)时,立即加入500 µL M9缓冲液以减缓反应。在15,000 × g下离心30–60秒,使胚胎沉淀。
注意:过度裂解可能损伤胚胎。当成年线虫体已分解为小碎片时即应终止反应。在离心和洗涤过程中,裂解反应仍会持续,直至所有裂解缓冲液被彻底清除。
- 当成年线虫裂解为小碎片(但尚未完全溶解)时,立即加入500 µL M9缓冲液以减缓反应。在15,000 × g下离心30–60秒,使胚胎沉淀。
- 用1 mL M9缓冲液洗涤胚胎5次,每次洗涤后在15,000 × g下离心30–60秒,离心后吸除上清液。
- 同步化
- 将胚胎重悬于1.5 mL微量离心管中的800 µL M9缓冲液中。在20 °C下旋转培养12–15小时,使L1期幼虫孵化并因缺乏食物而停滞在L1期。随后在20 °C下释放并培养线虫3天,直至其发育至L4期。
- 成年雌性或雌雄同体的准备
2. 从一龄未交配雌虫中粗提性信息素(图1A)
注意:我们采用先前已建立的方案24,从一龄未交配的fog-2(生殖系雌性化)突变型C. elegans雌虫以及C. remanei野生型雌虫中提取性信息素。
- 成年雌性线虫的准备
- 在信息素提取前1天,挑选并分离约200只L4期的fog-2雌性线虫。为确保仅收集未交配的雌性个体,需按性别仔细分离这些L4期fog-2雌性,并将其分配至三个独立的6 cm OP50 NGM培养皿中。在每个培养皿中央接种少量OP50细菌。
注意:将200只L4期雌性线虫分置于三个独立培养皿中,以避免意外引入雄性线虫。若误挑入雄性,其可能与多个雌性交配,导致次日成虫阶段大多数雌性已被受精。受精后的雌性在精子耗尽前不会释放挥发性性信息素,从而影响提取结果。有限的食物来源可限制雌性线虫活动于培养皿中央较小区域,降低隔离期间逃离培养皿的风险。
- 在信息素提取前1天,挑选并分离约200只L4期的fog-2雌性线虫。为确保仅收集未交配的雌性个体,需按性别仔细分离这些L4期fog-2雌性,并将其分配至三个独立的6 cm OP50 NGM培养皿中。在每个培养皿中央接种少量OP50细菌。
- 提取过程
- 在提取当天(生殖成熟第1天,即线虫从L1期停滞状态释放后第3天),挑取100只未交配、1日龄的fog-2雌性个体,转移至含有1 mL M9缓冲液的微量离心管中。用M9缓冲液清洗雌性线虫5次,以最大限度减少细菌污染,随后将其在100 µL M9缓冲液中于20 °C孵育6小时,以促进信息素在培养基中的生成与积累。
- 对C. remanei雌性进行类似的提取操作:在提取前一天,仅将15–20只L4期雌性分离至三个培养皿中;次日,将5只未交配的雌性个体置于100 µL M9缓冲液中,在25 °C孵育6小时(C. remanei的最适生长温度)58。
注意:C. remanei雌性产生的挥发性性信息素量高于C. elegans雌性,因此仅需5只雌性即可提取出100 µL粗制挥发性性信息素。
- 储存
- 将样品在15,000 × g条件下离心30–60秒,使线虫沉淀。小心吸取上清液(含信息素)转移至洁净离心管中,弃去含有线虫沉淀的原管。将分离得到的上清液保存,用于后续化学趋吸引诱实验。
注意:粗制挥发性性信息素提取物可于-80 °C保存至少1年,建议使用封口膜包裹微量离心管以减少挥发。
- 将样品在15,000 × g条件下离心30–60秒,使线虫沉淀。小心吸取上清液(含信息素)转移至洁净离心管中,弃去含有线虫沉淀的原管。将分离得到的上清液保存,用于后续化学趋吸引诱实验。
- 质量控制
- 使用前应利用N2雄性或him-5雄性进行质量控制检测,以验证提取物的化学趋吸引诱活性(见第4节)。
3. 从6日龄未交配雌雄同体个体中大量提取粗制性信息素(图1A)
- 线虫培养
- 获得约 20 mL 粗提物 秀丽隐杆线虫 性信息素,同步准备二十个含有健康成虫的10 cm NGM平板 秀丽隐杆线虫 (N2 或 daf-22 使用上述漂白方案处理突变型蠕虫,然后用M9缓冲液洗涤5次。
注意:该步骤可准备足量胚胎用于信息素提取。N2:标准野生型 秀丽隐杆线虫 同时产生水溶性蛔甙信息素和非蛔甙类挥发性性信息素的菌株 daf-22 突变体:一种无法产生多种蛔甙信息素的突变体,可用于单独研究非蛔甙类挥发性性信息素。 - 为使线虫同步于L1阶段,将胚胎置于M9缓冲液中旋转孵育12–15小时以 arresting 发育。将处于滞育状态的L1线虫转移至接种了OP50细菌的10 cm NGM培养板,以进行生长与发育。
- 为尽量减少雌雄同体培养板中雄性个体的存在,应在线虫移出后第2天(L4阶段)检查培养板,并移除所有观察到的雄性个体(极为罕见)。
- 发育三天后,观察胚胎出现的情况,以确认线虫已发育为具有生殖能力的成虫。
注意fog-2 突变型雌性 秀丽隐杆线虫 和野生型雌性 C. remanei 不适合用于大量挥发性性信息素的提取。 fog-2 突变体 秀丽隐杆线虫 和 C. remanei 种群中雄性比例较高,且雄性会持续与雌性交配。已受精的雌性不会产生挥发性性信息素。雄性的存在使这些化合物的提取变得复杂。
- 获得约 20 mL 粗提物 秀丽隐杆线虫 性信息素,同步准备二十个含有健康成虫的10 cm NGM平板 秀丽隐杆线虫 (N2 或 daf-22 使用上述漂白方案处理突变型蠕虫,然后用M9缓冲液洗涤5次。
- 线虫清洗与胚胎分离
- 用M9缓冲液反复清洗胚胎,并让其沉降(1 g 离心,直至大部分成虫沉降至管底;重复5-7次。将微量离心管静置于管架中数分钟,使成虫充分沉降,从而实现成虫群体与悬浮于上清液中的胚胎的分离。
- 用移液器吸取分离的成虫,转移到新的接种了OP50的大肠杆菌NGM平板上。
- 重复此清洗过程5-6天,以耗尽自身精子。
注意:提取挥发性性信息素时,应使用5至6日龄的雌雄同体线虫。此时间点可确保其自体精子已基本耗尽,因为具有可利用自体精子的雌雄同体不会产生挥发性性信息素。若在第5或第6天观察到培养板上存在大量死亡或未孵化的胚胎,则表明已到达适宜开始信息素提取的时期。
- 性信息素提取
- 按照第1节所述方法提取性信息素,但需进行修改。
- 而不是加入100 秀丽隐杆线虫 每100 µL雌性个体,根据最终的线虫沉淀体积加入M9缓冲液。每50 µL压紧的线虫沉淀加入1 mL M9缓冲液。
- 质量控制与均质化
- 使用N2雄虫进行化学引诱试验检测信息素提取物的质量控制测试批次 him-5 雄性(见第4节)。
- 将所有批次混合,以制备均一的粗提性信息素,用于需要大量信息素的实验,如筛选或微流控实验。将粗提性信息素提取物分装于50 mL离心管中,用封口膜包裹,于-80 °C保存至少1年,以尽量减少挥发。
- 基于化学趋性实验的滴定法用于粗提性信息素提取物的标准化
- 通过在野生型 N2 和 him-5 雄性线虫上测试每种信息素提取物的系列稀释液,进行滴定实验 秀丽隐杆线虫确定在对照菌株中能够稳定引发显著且可重复趋化反应的最高稀释倍数(最低浓度)。
- 在M9缓冲液中对每种粗提物制备一系列稀释液(例如,1:2、1:4、1:8等)。
- 趋化性实验
- 使用每种稀释度对雄性参考品系进行标准化趋化性实验(见第4节),每个样本设置三个重复,以确保可重复性。比较不同提取批次间的最佳稀释度,以评估信息素浓度的一致性。
注意:这为评估每种提取物的生物活性建立了参考点。在标准性信息素化学趋吸引物测定中,将使用原始未稀释的提取物进行后续实验,滴定步骤仅作为质量控制手段,以确保不同批次间信息素活性的一致性。稀释梯度可根据具体实验需求进行调整。由于标准提取方案通常能稳定获得饱和的粗信息素提取物,因此大多数实验可能无需进行滴定以标准化提取物。建议在一系列相关实验中使用同一批次的粗性信息素,以保持一致性并减少信息素活性的变异性。
- 使用每种稀释度对雄性参考品系进行标准化趋化性实验(见第4节),每个样本设置三个重复,以确保可重复性。比较不同提取批次间的最佳稀释度,以评估信息素浓度的一致性。
4. 挥发性性信息素化学趋性实验
注意:挥发性性信息素趋化吸引实验已根据先前其他趋化吸引研究中建立的方法进行改进24,29,59,60,61。这些修改旨在优化实验检测对挥发性性信息素响应的灵敏度和特异性。这种定制化方法增强了该实验对特定研究需求的适用性。
- 每天观察培养皿,直至成年雌性/雌雄同体线虫数量充足。线虫的健康状况会影响其对性信息素的反应。
- him-5 雄性线虫的制备
- 采用标准的次氯酸钠处理法对 him-5 线虫进行同步化。同步化后,用 M9 缓冲液洗涤线虫 5 次。在实验前一天分离 L4 期雄性线虫;实验前,将一日龄成年雄性线虫从接种细菌的培养皿中转移,并用 M9 缓冲液冲洗,然后将其置于未接种细菌的 NGM 培养皿中,以去除残留细菌,防止实验过程中食物干扰。
注意:实验前饥饿处理时间不得超过一小时,否则会改变线虫的内部状态,影响性信息素趋化实验的结果。因此,若计划在一天内进行超过 10 次实验,应每小时更换一次线虫样本。此外,应交替进行一次实验组实验和一次对照组实验。
- 采用标准的次氯酸钠处理法对 him-5 线虫进行同步化。同步化后,用 M9 缓冲液洗涤线虫 5 次。在实验前一天分离 L4 期雄性线虫;实验前,将一日龄成年雄性线虫从接种细菌的培养皿中转移,并用 M9 缓冲液冲洗,然后将其置于未接种细菌的 NGM 培养皿中,以去除残留细菌,防止实验过程中食物干扰。
- 趋化实验琼脂平板的制备
- 按照相关文献所述方法,制备含 1.5% 琼脂、25 mM NaCl、1.5 mM Tris-碱和 3.5 mM Tris-Cl 的趋化实验平板24。
- 将琼脂在趋化溶液中用微波炉加热至完全溶解。室温下冷却 5 分钟。
- 使用移液器辅助装置,将趋化琼脂溶液均匀分配至培养皿中:每个 10 cm 培养皿加入 30 mL,每个 6 cm 培养皿加入 20 mL。
- 将趋化琼脂溶液倒入培养皿后,在洁净区域打开皿盖至少 40 分钟,使琼脂表面略微干燥。待表面适当干燥后,盖上皿盖。
注意:干燥时间可能因实验室环境的湿度和温度而异。
- 平板储存与实验前准备
- 将制备好的实验平板装盒,置于冷室中最多可保存 1 周。使用前从冷处取出,于室温下平衡超过 1 小时。实验前 20 分钟,在洁净区域打开皿盖,使琼脂表面残留的水分蒸发,确保实验前表面无明显水珠。
- 实验设计与趋化实验
- 进行趋化实验时,在培养皿盖和皿底标记三个不同位置,或使用打印在透明塑料纸上的模板置于培养皿下方或连接解剖显微镜。这些标记包括一个中间圆点(•)作为线虫起始点,一个加号(+)作为实验点(盖上加 2 µL 性信息素,皿上加 2 µL 1 M 叠氮化钠),以及一个减号(-)作为对照点(盖上加 2 µL M9 缓冲液,皿上加 2 µL 1 M 叠氮化钠)(图 2A)。根据培养皿大小和具体实验需求调整各标记之间的距离。通常,对于 6 cm 培养皿,在阳性对照实验中,设定起始点到每个测试物质的固定距离为 1.5 cm。
- 实验操作详细步骤(图 2)
- 在平板上的实验点和对照点各加入 2 µL 1 M 叠氮化钠。
- 用线虫挑取器挑取 20 条健康且自由活动的雄性线虫,并在解剖显微镜下同时释放至起始点。
- 迅速在皿盖上的实验点加入 2 µL 性信息素,在对照点加入 2 µL M9 缓冲液。
- 轻轻盖上皿盖,将实验平板置于显微镜旁安静、温度稳定的环境中。
- 30 分钟后,通过统计各点的线虫数量来评分实验结果。
注意:挑取 20 条线虫的过程不应超过 1–2 分钟,以防止先挑取的线虫因干燥而状态不佳,影响实验结果。从挑取雄虫到盖上皿盖的整个过程应控制在 2 至 5 分钟之间。
- 阳性对照筛选
- 用 1,000 倍稀释的二乙酰溶液(溶于 10% 乙醇和 90% M9 缓冲液)测试雄性线虫,以确认其趋化反应能力。实验开始 30 分钟后评估趋化实验结果。根据线虫所在位置对其在指定点的麻痹状态进行评分:位于对照点的记为“C”,位于实验点的记为“E”,未在任一点的记为“N”(图 2C)。
- 计算趋化指数(C.I.)时,使用以下公式:
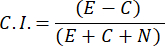
- 仅选择趋化指数 ≥ 0.4 的雄性样本(C.I.,见 图 2C)。后续性信息素实验应使用同一批次的雄性线虫。
注意:为确保实验结果的一致性和可靠性,应进行三次独立实验,每次使用 20 条线虫。通常三次实验足以判断结果的一致性。
5. 化学趋化实验的时间安排与评分指南
- 根据线虫的最终位置评估其化学趋向性反应。通常在实验开始后30分钟结束时,对每个位置的线虫数量进行计数评分。
注意:在实验组和对照组位置使用叠氮化钠可使到达的线虫麻痹,便于准确计数。大多数野生型N2和him-5雄虫在直径6 cm、距离设置为1.5 cm的培养皿中,可在6–8分钟内定位到信息素源。 - 为捕捉趋化效率的缺陷,尤其是检测细微缺陷,建议每隔3–5分钟定期监测实验过程。
注意:频繁观察可记录线虫到达测试点的时间。这种详细追踪能够揭示某些情况,即线虫趋化效率降低,但仍能在观察时间窗口内到达测试点。
6. 可选的修改步骤
- 为了更全面地评估趋化性,可使用位于培养皿上方的相机记录线虫在实验过程中的运动轨迹。
注意:该改进方法能够对线虫的运动模式进行系统分析,从而更深入地了解其化学趋化行为及运动轨迹(图3)。
7. 数据分析
- 趋化指数(Chemoattraction Index, C.I.)的评分与计算
- 执行步骤 4.7.1 和 4.7.2。
- 到达时间图
- 为了对趋化实验进行更全面的分析,建议以 3–5 分钟为间隔监测实验过程,或使用位于培养板上方的摄像机记录线虫在整个实验过程中的运动轨迹。
注意:这些方法不仅可以用于评分线虫到达指定位置的时间,还可用于比较平均到达时间并分析这些时间的分布情况。
- 为了对趋化实验进行更全面的分析,建议以 3–5 分钟为间隔监测实验过程,或使用位于培养板上方的摄像机记录线虫在整个实验过程中的运动轨迹。
- 基于视频的轨迹分析与数据可视化
注意:为分析 C. elegans 在趋化实验中的运动模式,需记录并提取其运动轨迹(参见材料表),并进行进一步分析(图3)。- 设置记录系统。
- 启动新记录,并进入记录设置窗口。
- 定义所需的记录参数:
- 文件前缀:为视频文件选择一个具有描述性的名称(例如,“experiment1_”)。
- 帧率(FPS):选择合适的每秒帧数以捕捉线虫的运动(例如,对于琼脂平板上的线虫选择7.5 FPS,对于游泳状态的线虫选择30 FPS)。
- 持续时间:设定记录的秒数长度(例如,大规模趋化实验为 1,800 秒 [30 分钟])。
- 优化图像质量:调节光照强度,确保线虫在背景中清晰可见,并微调焦距以获得清晰的线虫图像。
- 准备实验平板:首先将对照溶液滴加至指定的对照点。然后小心挑取线虫,并轻轻将其释放到平板中心。待线虫稳定后,将性信息素溶液施加到指定的实验点。
- 放置平板:小心地将含有线虫的平板置于记录区域中央,以最大化捕捉范围。
- 为减少趋化实验过程中线虫所受的压力,可考虑以下两种方法。
- 单条线虫实验:将线虫放置于实验平板上,使其适应环境 5 分钟后,再在指定距离(根据线虫当前位置确定)加入性信息素溶液。
注意:此方法可最大限度减少操作干扰,并给予线虫适应新环境的时间。 - 大规模趋化实验:让线虫在平板上自然沉降并分散 5 分钟。在此适应期结束后,在指定固定位置加入信息素溶液。在后续视频分析中,测量每条线虫起始位置与信息素源之间的距离,并据此分组进行进一步分析。
- 单条线虫实验:将线虫放置于实验平板上,使其适应环境 5 分钟后,再在指定距离(根据线虫当前位置确定)加入性信息素溶液。
- 视频分析流程
- 导入与设置:将录制的视频导入软件中。配置序列信息(如帧率);指定成像尺度(每单位长度对应的像素数)。
- 图像调整:为优化线虫检测效果,调整检测阈值,直至绿色标记紧密包围线虫轮廓,同时避免捕获背景噪声或伪影。此外,应用背景平滑算法以减少图像中的噪声和不均匀性,增强线虫与背景之间的对比度。尝试不同的平滑程度,以在降噪与保留线虫细节之间取得最佳平衡。
注意:理想的阈值应覆盖线虫身体的大部分区域,同时排除无关元素。 - 检测参数优化:选择一条代表性线虫以自动生成检测参数。通过目视检查 5–10 个随机帧来验证检测准确性。若检测结果不理想,可手动调整检测参数,必要时重新调整图像设置,待检测稳定后开始追踪。
- 轨迹追踪结果的校对与修复:自动追踪完成后,对手动生成的轨迹进行人工校对。若在校对过程中发现不一致之处,使用修复功能纠正轨迹,并执行以下操作:连接:将被错误分配不同标识符但属于同一条线虫的轨迹片段连接起来。分割:将被错误分配相同标识符但属于不同线虫的轨迹片段分离开来。
注意:目标是确保在整个追踪期间,每个唯一标识符(编号)始终对应同一条线虫。
示例:若某条线虫在一段时间内标记为“3”,随后被错误标记为“7”,则修复功能应将这两个片段合并至标识符“3”下。相反,若两条线虫在某段时间内均被标记为“12”,则修复功能应将该片段拆分为两条独立轨迹,各自拥有唯一标识符。通过仔细校对并实施必要的修复,可显著提高追踪数据的准确性和可靠性。 - 结果可视化与导出:利用软件进行可视化和基础分析。将数据导出为 CSV 文件,以便使用自选工具或代码进行进一步分析。本方法提供了一段基础代码(参见 https://github.com/edmondztt/pheromone-traj-analysis.git),可根据五个关键参数可视化线虫运动轨迹(图3)。时间:轨迹的进展过程,以颜色编码表示自实验开始以来的时间流逝。与信息素的距离:每个时间点上线虫与信息素源之间的距离。速度:线虫在每个点的速度,也可反映转向和停止事件。直线性:线虫路径的直线程度。方向正确性:线虫运动方向与信息素目标方向的一致性?该代码为理解线虫行为提供了基础可视化手段,可根据需要进行定制和扩展,以实现更深入的分析。
注意:这种高级方法通过详细描述线虫对性信息素的导航轨迹,为传统趋化指数提供了全面的替代方案。它能够在不依赖任意设定的导航终点和时间窗口的情况下理解运动模式,从而更深入地揭示实验的行为动力学特征。数据在 20 帧范围内取平均值,可根据具体实验需求调整,以滤除因身体扭动引起的运动干扰。
访问受限。请登录或开始试用以查看此内容。
结果
对挥发性性信息素感知缺陷型菌株在趋化吸引实验中的轨迹分析
该趋化吸引实验能够可靠地区分野生型与突变型 C. elegans 对挥发性性信息素的响应差异。him-5 雄性个体的实验结果始终表现出对信息素源强烈的趋化性。这一点体现在较高的趋化指数(C.I.)上(图2),通常超过0.5,表明其对信息素源具有明显偏好。相反,信息素受体突变体 srd-1 的实验结果 consistently 呈阴性。srd-1 雄性个体的趋化指数通常接近于零24,证实了该实验方法能够有效检测趋化反应的缺失。
在非理想实验条件下,多种因素可能影响实验结果。例如,信息素浓度过低可能导致 him-5 雄性线虫反应微弱,而污染或操作不当则可能引起两种品系线虫出现不可预测的运动行为。这些情况会导致 him-5 雄性线虫的趋化指数(C.I.)值偏低,并可能导致
访问受限。请登录或开始试用以查看此内容。
讨论
本方案提供了一种从秀丽隐杆线虫(C. elegans)中提取挥发性性信息素的可靠方法,同时建立了一种稳健的化学趋化吸引实验,用于检测雄性个体的化学趋化反应。更多详细信息可参见 WormLab 用户指南(见材料表);如需可视化线虫运动轨迹的基础代码,请参见方案第 7.3.8.5 节。本方案中有多个关键步骤对实验结果至关重要。首先,必须仔细同步线虫种群,以控制其年龄和生殖状态,确保能够成功从处雌性个体或精子耗尽的雌雄同体个体中提取挥发性性信息素29,34。其次,需进行多次洗涤步骤,以彻底去除细菌,最大限度减少可能干扰后续趋化实验中信息素信号的污染。接下来,实验参数的选择,如吸引剂浓度、培养皿尺寸和实验持续时间,均会影响实验结果,必须根据具体的实验目标进行优化和调整。
准确的干燥时间和一致的测试点间距对于获得可靠的趋化性实验结果至关重要。湿润的培养板会显著影响趋化指数。如果琼脂表面残留一层水膜,毛细作用力可能会将线虫困在...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无利益冲突。
致谢
我们感谢周挺涛博士为本研究中所用轨迹可视化设计并编写代码。本工作获得以下资助:R01 NS113119(PWS)、陈氏高级博士后奖学金以及天桥脑科学研究院(Tianqiao and Chrissy Chen Institute for Neuroscience)。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10 cm 培养皿 | Falcon | 25373-100 | Falcon 细菌学培养皿 100 × 15 mm |
| 6 cm 培养皿 | Falcon | 25373-085 | Falcon 细菌学培养皿 60 × 15 mm |
| C. remanei (EM464) | CGC | ||
| 离心机 | Eppendorf | centrifuge 5418 | 任何品牌均可使用。 |
| 趋化性检测平板 | 自制溶液 | N/A | 1.5% 琼脂、25 mM NaCl、1.5 mM Tris-碱、3.5 mM Tris-Cl |
| 胆固醇 | Alfa Aesar | 57-88-5 | |
| 解剖显微镜 | Leica | LeicaMZ75 | 任何品牌均可使用。 |
| E. Coli OP50 | CGC | ||
| 乙醇 | Koptec | 64-17-5 | |
| fog-2(q71) (JK574) | CGC | ||
| him-5(e1490)(CB4088) | CGC | ||
| 家用漂白剂 | Clorox 杀菌漂白浓缩液 | 漂白剂 | |
| M9 缓冲液 | 自制溶液 | N/A | 3 g KH2PO4, 11.3 g Na2HPO4.7H2O, 5 g NaCl, H2O 定容至 1 L。高压灭菌灭菌。冷却至室温后加入 1 mL 1 M MgSO4。 |
| 无水硫酸镁,粉末 | Macron | M1063-500GM-EA | |
| 微波炉 | TOSHIBA | N/A | 任何品牌均可使用。 |
| N2 | CGC | ||
| NaOH | Sigma-aldrich | S318-3 | 1 M |
| NGM 平板溶液 | 自制溶液 | N/A | 2.5 g 蛋白胨、18 g 琼脂、3 g NaCl,H2O 定容至 1 L。高压灭菌灭菌。高压灭菌完成后(2 h),等待培养基温度降至 65 °C。置于 65 °C 热板上搅拌。然后依次加入以下成分,每加一种间隔 5 分钟,以避免结晶:1 mL CaCl2 (1 M)、1 mL MgSO4 (1 M)、25 mL K3PO4 (1 M, pH=6)、1 mL 胆固醇(5 mg/mL 溶于乙醇)。 |
| 封口膜 | Bemis | 13-374-10 | Bemis Parafilm M 实验室包裹膜 |
| 蛋白胨 | VWR | 97063-324 | |
| 移液器助吸器 | Drummond Scientific | 4-000-100 | 任何品牌均可使用。 |
| 塑料纸 | Octago | 防水丝网印刷喷墨透明胶片 | https://www.amazon.com/Octago-Waterproof-Transparency-Printing-Printers/dp/B08HJQWFGD |
| 氯化钾 | Sigma-aldrich | SLBP2366V | |
| 磷酸钾 | Spectrum | 7778-77-0 | |
| 移液器 | Eppendorf | SKU: EPPR4331; MFG#: 2231300006 | 20 - 200 µL、100 - 1000 µL,任何品牌均可使用。 |
| 旋转混合仪 | Labnet | SKU: LI-H5500 | Labnet H5500 Mini LabRoller 双向旋转混合仪。任何品牌均可使用。 |
| 氯化钠 | VWR | 7647-14-5 | |
| 磷酸氢二钠 | Sigma-aldrich | SLCG3888 | |
| Tris-碱 | Sigma-aldrich | 77-86-1 | |
| Tris-Cl | Roche | 1185-53-1 | |
| 胰蛋白胨 | VWR | 97063-390 | |
| 涡旋振荡器 | Scientific industries | Vortex-Genie 2 | 任何品牌均可使用。 |
| WormLab 系统 | MBF Bioscience | N/A | https://www.mbfbioscience.com/help/WormLab/Content/home.htm; https://www.mbfbioscience.com/products/wormlab/ |
| 线虫挑取针 | 自制 | N/A | 由铂金和玻璃移液管尖端制成 |
参考文献
- Audesirk, T. E. Chemoreception in Alphysia californica. Iii. Evidence for pheromones influencing reproductive behavior. Behav Biol. 20 (2), 235-243 (1977).
- Traynor, K. S., Le Conte, Y., Page, R. E. Jr Queen and young larval pheromones impact nursing and reproductive physiology of honey bee (Apis mellifera) workers. Behav Ecol Sociobiol. 68 (12), 2059-2073 (2014).
- Cowley, J. J., Wise, D. R. Pheromones, growth and behaviour. Ciba Found Study Group. 35, 144-170 (1970).
- Epple, G. Pheromones in primate reproduction and social behavior. Adv Behav Biol. 11, 131-155 (1974).
- Levinson, H. Z. Possibilities of using insectistatics and pheromones in pest control. Naturwissenschaften. 62 (6), 272-282 (1975).
- Roelofs, W. Manipulating sex pheromones for insect suppression. Environ Lett. 8 (1), 41-59 (1975).
- Marchlewska-Koj, A. Pheromones and mammalian reproduction. Oxf Rev Reprod Biol. 6, 266-302 (1984).
- Keverne, E. B. Neuroendocrinology briefings 11: Pheromones and reproduction. J Neuroendocrinol. 12 (11), 1045-1046 (2000).
- Rekwot, P. I., Ogwu, D., Oyedipe, E. O., Sekoni, V. O. The role of pheromones and biostimulation in animal reproduction. Anim Reprod Sci. 65 (3-4), 157-170 (2001).
- Gomez-Diaz, C., Benton, R. The joy of sex pheromones. EMBO reports. 14 (10), 874-883 (2013).
- Shorey, H. H., Gaston, L. K., Jefferson, R. N. Insect sex pheromones. Adv Pest Control Res. 8, 57-126 (1968).
- Bruce, H. M. Pheromones and behavior in mice. Acta Neurol Psychiatr Belg. 69 (7), 529-538 (1969).
- Shorey, H. H., Bartell, R. J. Role of a volatile female sex pheromone in stimulating male courtship behaviour in Drosophila melanogaster. Anim Behav. 18 (1), 159-164 (1970).
- Bobadoye, B., et al. Evidence of aggregation-sex pheromone use by longhorned beetles (coleoptera: Cerambycidae) species native to Africa. Environ Entomol. 48 (1), 189-192 (2019).
- Saunders, J. R. Sex pheromones in bacteria. Nature. 275 (5682), 692-694 (1978).
- Schulz, S., Toft, S. Identification of a sex pheromone from a spider. Science. 260 (5114), 1635-1637 (1993).
- Finnegan, D. E., Chambers, J. Identification of the sex pheromone of the guernsey carpet beetle, Anthrenussarnicus mroczkowski (coleoptera: Dermestidae). J Chem Ecol. 19 (5), 971-983 (1993).
- Vaillancourt, L. J., Raudaskoski, M., Specht, C. A., Raper, C. A. Multiple genes encoding pheromones and a pheromone receptor define the b beta 1 mating-type specificity in Schizophyllum commune. Genetics. 146 (2), 541-551 (1997).
- Ludewig, A. H., Schroeder, F. C. Ascaroside signaling in C. elegans. WormBook : the online review of C. elegans biology. , 1-22 (2013).
- Sakai, N., et al. A sexually conditioned switch of chemosensory behavior in C. elegans. PLoS One. 8 (7), e68676(2013).
- Sengupta, S., Smith, D. P. How Drosophila detect volatile pheromones: signaling, circuits, and behavior. Neurobiology of chemical communication. Mucignat-Caretta, C. , CRC Press. (2014).
- Zhang, Y. K., Reilly, D. K., Yu, J., Srinivasan, J., Schroeder, F. C. Photoaffinity probes for nematode pheromone receptor identification. Org Biomol Chem. 18 (1), 36-40 (2019).
- Aprison, E. Z., Ruvinsky, I. Dynamic regulation of adult-specific functions of the nervous system by signaling from the reproductive system. Curr Biol. 29 (23), 4116-4123.e3 (2019).
- Wan, X., et al. SRD-1 in AWA neurons is the receptor for female volatile sex pheromones in C. elegans males. EMBO Rep. 20 (3), e46288(2019).
- Peckol, E. L., Troemel, E. R., Bargmann, C. I. Sensory experience and sensory activity regulate chemosensory receptor gene expression in Caenorhabditis elegans. Proc Natl Acad Sci U S A. 98 (20), 11032-11038 (2001).
- Jang, H., et al. Neuromodulatory state and sex specify alternative behaviors through antagonistic synaptic pathways in. C. elegans. Neuron. 75 (4), 585-592 (2012).
- Liu, K. S., Sternberg, P. W. Sensory regulation of male mating behavior in Caenorhabditis elegans. Neuron. 14 (1), 79-89 (1995).
- Chasnov, J. R., Chow, K. L. Why are there males in the hermaphroditic species Caenorhabditis elegans. Genetics. 160 (3), 983-994 (2002).
- Chasnov, J. R., So, W. K., Chan, C. M., Chow, K. L. The species, sex, and stage specificity of a Caenorhabditis sex pheromone. Proc Natl Acad Sci U S A. 104 (16), 6730-6735 (2007).
- Susoy, V., et al. Natural sensory context drives diverse brain-wide activity during C. elegans mating. Cell. 184 (20), 5122-5137.e17 (2021).
- Barriere, A., Felix, M. A. High local genetic diversity and low outcrossing rate in Caenorhabditis elegans natural populations. Curr Biol. 15 (13), 1176-1184 (2005).
- Click, A., Savaliya, C. H., Kienle, S., Herrmann, M., Pires-Dasilva, A. Natural variation of outcrossing in the hermaphroditic nematode Pristionchus pacificus. BMC Evol Biol. 9, 75(2009).
- Anderson, J. L., Morran, L. T., Phillips, P. C. Outcrossing and the maintenance of males within C. elegans populations. J Hered. 101 (suppl_1), S62-S74 (2010).
- Leighton, D. H., Choe, A., Wu, S. Y., Sternberg, P. W. Communication between oocytes and somatic cells regulates volatile pheromone production in Caenorhabditis elegans. Proc Natl Acad Sci U S A. 111 (50), 17905-17910 (2014).
- White, J. Q., et al. The sensory circuitry for sexual attraction in C. elegans males. Curr Biol. 17 (21), 1847-1857 (2007).
- Fagan, K. A., et al. A single-neuron chemosensory switch determines the valence of a sexually dimorphic sensory behavior. Curr Biol. 28 (6), 902-914.e5 (2018).
- Lipton, J., Kleemann, G., Ghosh, R., Lints, R., Emmons, S. W. Mate searching in Caenorhabditis elegans: A genetic model for sex drive in a simple invertebrate. J Neurosci. 24 (34), 7427-7434 (2004).
- Frady, E. P., Palmer, C. R., Kristan, W. B. Jr Sexual attraction: Sex-specific wiring of neural circuitry. Curr Biol. 22 (22), R953-R956 (2012).
- Liu, Q., et al. Two preputial gland-secreted pheromones evoke sexually dimorphic neural pathways in the mouse vomeronasal system. Front Cell Neurosci. 13, 455(2019).
- Ludewig, A. H., et al. Pheromone sensing regulates Caenorhabditis elegans lifespan and stress resistance via the deacetylase sir-2.1. Proc Natl Acad Sci U S A. 110 (14), 5522-5527 (2013).
- Golden, J. W., Riddle, D. L. A pheromone influences larval development in the nematode Caenorhabditis elegans. Science. 218 (4572), 578-580 (1982).
- Butcher, R. A., Fujita, M., Schroeder, F. C., Clardy, J. Small-molecule pheromones that control dauer development in Caenorhabditis elegans. Nat Chem Biol. 3 (7), 420-422 (2007).
- Jeong, P. Y., et al. Chemical structure and biological activity of the Caenorhabditis elegans dauer-inducing pheromone. Nature. 433 (7025), 541-545 (2005).
- Butcher, R. A., Ragains, J. R., Kim, E., Clardy, J. A potent dauer pheromone component in Caenorhabditis elegans that acts synergistically with other components. Proc Natl Acad Sci U S A. 105 (38), 14288-14292 (2008).
- Aprison, E. Z., Ruvinsky, I. Counteracting ascarosides act through distinct neurons to determine the sexual identity of C. elegans pheromones. Curr Biol. 27 (17), 2589-2599.e3 (2017).
- Aprison, E. Z., Ruvinsky, I. Sex pheromones of C. elegans males prime the female reproductive system and ameliorate the effects of heat stress. PLoS Genet. 11 (12), e1005729(2015).
- Izrayelit, Y., et al. Targeted metabolomics reveals a male pheromone and sex-specific ascaroside biosynthesis in Caenorhabditis elegans. ACS Chem Biol. 7 (8), 1321-1325 (2012).
- Kaplan, F., et al. Ascaroside expression in Caenorhabditis elegans is strongly dependent on diet and developmental stage. PLoS One. 6 (3), e17804(2011).
- Pungaliya, C., et al. A shortcut to identifying small molecule signals that regulate behavior and development in Caenorhabditis elegans. Proc Natl Acad Sci U S A. 106 (19), 7708-7713 (2009).
- Srinivasan, J., et al. A modular library of small molecule signals regulates social behaviors in Caenorhabditis elegans. PLoS Biol. 10 (1), e1001237(2012).
- Srinivasan, J., et al. A blend of small molecules regulates both mating and development in Caenorhabditis elegans. Nature. 454 (7208), 1115-1118 (2008).
- Choe, A., et al. Ascaroside signaling is widely conserved among nematodes. Curr Biol. 22 (9), 772-780 (2012).
- Von Reuss, S. H., et al. Comparative metabolomics reveals biogenesis of ascarosides, a modular library of small-molecule signals in C. elegans. J Am Chem Soc. 134 (3), 1817-1824 (2012).
- Choe, A., et al. Sex-specific mating pheromones in the nematode panagrellus redivivus. Proc Natl Acad Sci U S A. 109 (51), 20949-20954 (2012).
- Hsueh, Y. P., Mahanti, P., Schroeder, F. C., Sternberg, P. W. Nematode-trapping fungi eavesdrop on nematode pheromones. Curr Biol. 23 (1), 83-86 (2013).
- Hong, M., et al. Early pheromone experience modifies a synaptic activity to influence adult pheromone responses of C. elegans. Curr Biol. 27 (20), 3168-3177.e3 (2017).
- Ryu, L., et al. Feeding state regulates pheromone-mediated avoidance behavior via the insulin signaling pathway in Caenorhabditis elegans. EMBO J. 37 (15), e98402(2018).
- Diaz, S. A., Lindström, J., Haydon, D. T. Basic demography of Caenorhabditis remanei cultured under standard laboratory conditions. J Nematol. 40 (3), 167(2008).
- Bargmann, C. I. Chemosensation in C. elegans. WormBook : the online review of C.elegans biology. , 1-29 (2006).
- Margie, O., Palmer, C., Chin-Sang, I. C. elegans chemotaxis assay. JoVE: J Vis Exp. (74), e50069(2013).
- Bargmann, C. I., Hartwieg, E., Horvitz, H. R. Odorant-selective genes and neurons mediate olfaction in C. elegans. Cell. 74 (3), 515-527 (1993).
访问受限。请登录或开始试用以查看此内容。
重印与许可
