本研究介绍了一种简单、用户友好的比率型FRET检测方法,用于检测和定量评估DNase活性,并展示了其在弱核酸酶分析中的应用。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
本实验方案描述了一种简单且灵敏的比率型荧光共振能量转移(FRET)检测方法,用于检测和定量评估脱氧核糖核酸酶(DNase)活性。比率型FRET测量利用供体与受体发射信号的比值进行分析。该检测方法采用一种钉状、双标记的38聚体FRET寡核苷酸探针作为实时DNA切割传感器,用于检测单链DNA断裂。该方法的主要应用是定量评估反应条件(如pH值、温度和缓冲液组成)对DNase活性的影响。由于该方法能够检测到即使非常微弱且缓慢的DNA切割,因此特别适用于需要长时间观察的弱核酸酶活性研究,以及pH值对DNase活性影响的研究。本比率型FRET方案的这些特定优势通过其在白细胞弹性蛋白酶抑制剂(LEI)DNase活性检测与分析中的应用得到了充分展示。
引言
比率荧光法是一种分析方法,通过利用荧光信号的比值,而非仅依赖单一信号的强度1,2。采用比值的优势在于可实现内部校准,并补偿多种随机因素,例如样品和探针浓度的变化、仪器参数波动等。这有助于提高荧光探针的准确性和灵敏度。
在 Förster 偿能量转移(FRET)探针的特定背景下,“比率型”一词指的是测量基于 FRET 供体与受体荧光团这对组合所发出的两个发射信号的比值。为了定量目标分析物的活性,比率型 FRET 探针采用受体/供体发射强度的比值(在某些情况下,也可使用相反的供体/受体比值)。该比值与 FRET 效率直接相关,提供了一种自校正机制,可最大限度地减少背景噪声,并校正激发条件和探针浓度变化所带来的影响3。
近年来,比率法的一些有趣应用包括用于检测循环肿瘤DNA(ctDNA)的比率电化学生物传感器4,5、用于FRET检测细胞凋亡吞噬阶段的布朗运动驱动生物纳米机器6,以及用于快速FRET标记和分析吞噬清除过程的研究7。本研究中描述的比率FRET方法适用于DNase活性的定量评估。该检测基于FRET荧光对发射信号的比值进行测量。由于该方法能够检测到即使微弱且缓慢的DNA切割,因此特别适用于需要较长观察时间的弱核酸酶活性研究,以及在不同pH条件下的实验。
本文通过比值型FRET检测法在研究弱核酸酶——白细胞弹性蛋白酶抑制剂(LEI)的DNase活性中的应用,展示了该方法的一些特定优势。报告中包含详细的实验方案、逐步操作说明以及比值型数据分析方法的描述。
比率型FRET探针描述
该比率型FRET探针是一种自互补的38聚体DNA寡核苷酸,携带FAM-TAM(荧光素-四甲基罗丹明)作为供体-受体FRET荧光对。其序列为5'-AAGGGT(TAM) CCTGCTGCAGGACCCTTAACGCATTATGCGT(FAM)T-3'。该自杂交的38聚体形成一种 staples 状构象,包含两个分别由23和15个核苷酸组成的相连发夹结构,使两个荧光基团之间的距离为23.8 Å。此距离显著小于该荧光对的福斯特半径,R0 = 55 Å8。这种空间排布对应于从供体到受体极高的能量转移效率7:EFRET = 0.993477。因此,当在FAM的激发波长(488 nm)下照射时,该FRET探针在受体TAM的发射波长(580 nm)处发射荧光,而FAM的发射(525 nm)则被抑制。
图1A展示了由UNAFold预测的探针二级结构,由于发夹结构顶端弯曲较紧而产生空间位阻,因此在两个发夹顶端均形成较小的环。DNA断裂通过FRET探针检测的示意图见图1B,图中显示DNase对寡核苷酸探针的切割使其FRET荧光对发生分离,这种分离导致探针中两种荧光团的发射光谱发生显著变化。图1C展示了探针在切割前后其发射光谱的变化,结果表明DNase II切割探针后FRET荧光对的分离使525 nm处的供体荧光强度(ID 525 nm)显著增强,同时使580 nm处的受体荧光强度(IA 580 nm)明显降低。图1D展示了聚丙烯酰胺凝胶电泳(PAGE)结果及对应的FRET比值。DNase II对探针的切割产生了两条较宽的条带,分别对应于12-16聚体的FAM(绿色)片段和20-24聚体的TAM(红色)片段,表明38聚体探针在T23附近、即两个发夹连接区域两侧发生了随机切割。
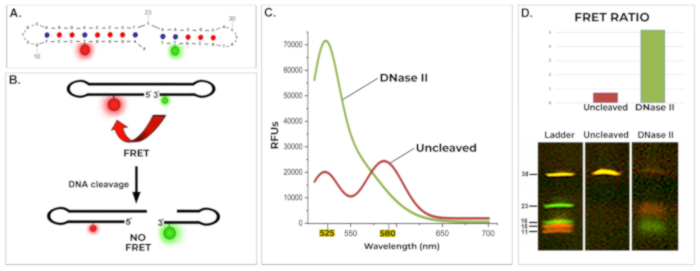
图 1:比率型 FRET 探针的结构与工作原理。(A)由 UNAFold 预测生成的 FRET 探针二级结构。(B)FRET 探针工作原理示意图。该比率型 FRET 探针为一种 staples 形状的 38-mer 寡核苷酸,其上标记有 FRET 供体(FAM)和受体(TAM),两者间距为有效的 FRET 距离 23.8 Å,确保 >99% 的 FRET 效率。当 DNase 切割该寡核苷酸探针时,FRET 配对被分离,导致 FRET 消失。(C)FRET 探针在 DNase II 介导切割前后的发射光谱。切割前,FAM 的发射被抑制,而 TAM 的发射较强;DNase 介导的切割使 FAM 与 TAM 分离,恢复 FAM 发射(525 nm 峰值),并消除 TAM 发射(580 nm 下降)。λexcitation = 488 nm。(D)FRET 探针在 DNase II 切割前后的比率检测与电泳分析。上图:FRET 比率(RD/A = ID 525 nm / IA 580 nm),用于定量反映探针状态。红色:未切割;绿色:经 DNase II 切割。下图:与荧光数据对应的变性 PAGE 凝胶。DNase II 切割产生 FAM 标记的片段(12–16 nt,绿色)和 TAM 标记的片段(20–24 nt,红色),表明切割位点位于发夹结构之间的连接区域,邻近 T23。未切割对照组显示黄色荧光。Ladder:对应于 38-mer 探针 5′ 和 3′ 片段的 FAM 和 TAM 标记寡核苷酸,荧光标记位于原始位置。反应条件:10 mM 醋酸钠缓冲液(pH 5.2),1 pmol/µL FRET 探针,0.0033 U/µL DNase II,37 °C 下反应 24 小时。RD/A = ID 525 nm/IA 580 nm;λexcitation = 488 nm。UNAFold 条件:1 µM FRET 探针,10 mM Na+,0 mM Mg2+,37 °C。 请点击此处查看该图的放大版本。
尽管各个测试发射光谱的变化显而易见,但对大量发射光谱进行定量比较时,需要一个更便于使用且紧凑的定量参数。这一角色由FRET比率承担。所介绍的荧光方法属于比率型分析方法,这类方法依赖于FRET配对组分荧光发射的直接(双通道)比率来进行定量评估2,9。
该方法利用供体/受体发射光的比值(RD/A = ID 525 nm / IA 580 nm),该比值与FRET效率相关,可定量表征38-mer的状况(断裂或完整)。ID / IA 比值提供了一种自归一化机制,能够内在地校正探针浓度、激发光强度和光漂白等因素的波动3。该方法仅适用于供体和受体连接在同一探针内的FRET探针,且其比值已知且恒定。因此,该方法无需考虑受体的直接激发或供体串扰问题2。探针中固定的供体-受体化学计量比确保了供体/受体发射光比值不受上述因素变化的影响,直接反映探针的状态。因此,供体-受体发射光比值提供了一个具有内建信号归一化的定量DNA切割参数2,3。
该检测采用 ID / IA 比值(而非相反的 IA / ID 比值),因为该比值可描述探针切割后FRET的终止,因而与DNase活性变化方向一致——随着切割增加而升高。这一点在图1D中得到说明,该图展示了比值型探针在DNase II切割前后其FRET比值及PAGE电泳结果,均对应于图1C中的光谱。为了展示该比值型FRET检测方法的便捷性、时间经济性和操作简便性,本研究将其应用于发现并分析一种弱核酸酶——白细胞弹性蛋白酶抑制剂(LEI)的DNase活性。
弱核酸酶 LEI
蛋白酶抑制剂LEI在天然状态下具有亚稳态,即拓扑结构不平衡。这一特性对其抑制机制至关重要。当靶标蛋白酶切割LEI的反应位点环(RSL)时,该蛋白酶抑制剂分子会发生剧烈的构象变化,从而在机械上将蛋白酶拉伸至失活状态。10,11值得注意的是,这一过程还会断裂并拉伸LEI分子本身,暴露出其天然折叠结构中被掩盖的隐蔽性DNase位点,从而将LEI转化为具有活性的内切核酸酶L-DNase II(LEI衍生的DNase II)11,12酸性条件下,LEI 在硫酸中于 pH 2 环境下过夜孵育可导致其变性与断裂,从而暴露出隐蔽的 DNase 位点。10,13利用该FRET分析研究LEI表明,强烈化学变性处理和靶向酶切并非暴露LEI潜在核酸酶活性所严格必需的步骤。
本文所述的比率型FRET方法及其操作流程揭示了正常非变性LEI中固有的微弱DNase活性。由于该检测方法适用于在不同酸性pH条件下进行长时间观察,从而实现了对未切割LEI内在核酸水解能力的发现与分析。
访问受限。请登录或开始试用以查看此内容。
方案
通过比率型荧光共振能量转移评估脱氧核糖核酸酶活性
该方法适用于可溶性蛋白质的核酸切割特性检测与分析。为了考察所研究DNase的pH依赖性,该实验程序可同时在一系列pH值条件下评估DNase的活性。该技术可用于研究微弱且反应缓慢的核酸酶活性。本研究中所用试剂与设备的详细信息列于材料表中。
1. 准备荧光测定系统的孵育混合物组分
- 在 所需的 pH 范围内配制缓冲溶液。对于 pH 6.8 至 8.0 范围,使用 Tris-HCl 或磷酸盐缓冲液。由于 Tris-HCl 缓冲液具有较高的稳定性且对酶活性干扰较小,因此在生理 pH 条件(pH 7.2 至 8.0)下应优先选用。
注意:磷酸盐缓冲液适用于该 pH 范围,但由于其缓冲能力的限制,在较高 pH 值(>7.5)下适用性较差。
对于 pH 4.2 至 7.2 范围,使用乙酸盐或柠檬酸盐缓冲液。乙酸盐缓冲液在较低 pH 条件下效果良好,可低至 pH 4.2。
注意: 柠檬酸盐缓冲液可在稍高 pH 值(pH 5.6 至 7.2)下使用,并具有良好的缓冲能力。这些缓冲液适用于在酸性至中性条件下研究 DNase 活性。本研究中对 LEI 的核酸酶活性分析使用了 10 mM 乙酸钠缓冲液,pH 范围为 4.8 至 6.5。 - 将蛋白样品在每种缓冲液中稀释至适当浓度。当样品中活性完全未知时,应制备一系列不同稀释度的蛋白溶液。最佳稀释度取决于 DNase 活性的强弱,需通过实验测试多个蛋白浓度来确定。
注意:本研究中对 LEI 超弱核酸酶活性的分析采用的蛋白浓度为 1 µM。- 使用高浓度缓冲液时,务必检测最终溶液的 pH,因为高浓度缓冲液在稀释后 pH 可能发生变化。
- 在无核酸酶水中配制比率型 FRET 探针溶液。FRET 探针浓度应接近 1 µM(1 pmol/µL)。避免使用过高的探针浓度。
在使用前迅速加热并冷却探针溶液,以确保不利的碱基配对完全解离。
注意:本研究中对 LEI 核酸酶活性的分析使用了浓度为 1 µM(1 pmol/µL)的 FRET 探针,溶剂为无核酸酶水。
2. 使用比率型FRET探针作为底物诱导DNase反应
- 为每个待测 pH 条件,在 96 孔板中准备三个孔,并分别为阳性对照和阴性对照各准备三个额外的孔。
- 在用于 pH 梯度实验的每个孔中,加入以下组分:
70 μL 无核酸酶水
10 μL 10X 缓冲液(可选择合适的缓冲液)
10 μL 含蛋白质的样品
10 μL 比值型探针溶液(储存浓度为 10 pmol/μL)
注意: 本研究中用于检测 LEI 在酸性 pH 下核酸酶活性的 10X 缓冲液成分为:100 mM 醋酸钠,pH 5.2 - 在每个阳性对照孔中,加入以下组分:
79 μL 无核酸酶水
10 μL 10X DNase II 缓冲液(100 mM 醋酸钠,pH 5.2)
0.33 μL DNase II(储存浓度为 1 U/μL)
10 μL 比值型探针溶液(储存浓度为 10 pmol/μL)
注意:在酸性 pH 条件下的研究应使用 DNase II 作为阳性对照。当评估接近 pH 7(特别是 pH 6.5–8)的 DNase 活性时,应改用 DNase I 及其相应缓冲液(例如:10 mM Tris-HCl、2.5 mM MgCl2、0.5 mM CaCl2,pH 7.6),而非 DNase II 和醋酸盐缓冲液。 - 在每个阴性对照孔 中,用无核酸酶水替代蛋白质样品。
- 在用于 pH 梯度实验的每个孔中,加入以下组分:
- 通过将探针溶液加入含有不同 pH 值下 DNase 蛋白的反应体系中,启动 DNase 反应。
注意:充分混匀所有样品,同时避免产生气泡。对于具有活性的 DNase 样品,应尽可能同时启动所有反应。对于活性极弱的样品(如 LEI),严格的时间控制则不那么关键。
注意:为确保一致的孵育时间,特别是在处理活性较高的核酸酶时,应根据每次测量所需时间依次加入样品。例如,若每次测量耗时 10 秒,则第二个样品应在第一个样品加入后 10 秒再加入。
3. 孵育
- 将待研究的DNase与比率型FRET探针在37°C水浴或温控培养箱中孵育不同时间。采用多个时间点并以规律的取样间隔进行取样,以准确评估酶的 turnover 速率并最小化假象。本研究中对LEI超弱核酸酶活性的分析采用了24小时孵育,以检测缓慢的核酸酶反应。
注意:最佳孵育时间需通过预实验确定,因其取决于所研究DNase的活性强度。活性较强的核酸酶完成探针切割所需时间极短,因此可从15–30分钟的孵育开始。若样品浓度过高导致反应过快,应降低蛋白质浓度;若样品蛋白活性较弱,可根据需要延长孵育时间。
4. 信号归一化至相同pH条件
- 通过加入 100 μL 的 250 mM Tris-HCl(pH 8.0)终止所有孵育反应。此步骤还可使所有样品的 pH 值均一化。
注意:在比较不同初始 pH 条件下启动的反应时,pH 均一化步骤尤为重要。该操作可确保探针片段完全分离,从而最大化其基于 FRET 的信号。此外,探针的 FAM 荧光基团在酸性 pH 下荧光发射减弱,在 pH 8.0 时达到最佳状态。对于离子强度高于本研究中所用样品的样本,可能需要使用更高浓度(>250 mM)和更高 pH(>8.0)的均一化溶液,以实现有效的 pH 调整。
注意:碱性 pH 可有效抑制酸性核酸酶(如 LEI)的活性,本研究已证实这一点。对于中性或碱性核酸酶,应在信号检测前确定并采用相应的特异性失活方法。
5. 荧光信号检测与FRET比率计算
- pH 值平衡步骤完成后,立即使用荧光分光光度计记录供体和受体荧光染料的发射光谱。在 96 孔板中直接进行测量,以 488 nm 激发供体荧光染料,同时检测 525 nm(供体)和 580 nm(FRET 来源的受体信号)处的发射信号。
- 利用记录的荧光强度评估每个样品中的 DNase 活性。采用适当的统计学方法分析数据并评估显著性。
注意:使用以下公式计算 FRET 比值:RFRET = 525 nm 处的供体发射强度 / 580 nm 处的受体发射强度。在本实验中,DNA 切割使荧光染料彼此分离,从而破坏 FRET,导致供体发射增强而受体发射减弱。这一变化使 FRET 比值(RFRET)升高,该比值可作为 DNase 活性的指标。
6. 基于PAGE的切割验证
- 通过变性聚丙烯酰胺凝胶电泳(PAGE)验证FRET探针的切割情况14. FRET探针及其切割产物带有荧光标记,无需额外染色即可观察。
注意:在代表性研究中,LEI 介导的 38-mer FRET 探针的切割通过变性 PAGE 确认(参见 图2分析结果显示,LEI 产生了 6-8 个核苷酸的 FAM 标记片段和 15-16 个核苷酸的 TAM 标记片段,符合在发夹结构两个顶端附近发生切割的特征。该片段模式与 DNase II 产生的片段谱型不同。- 将每个样品的 15 µL 加样至 20% 变性 PAGE 凝胶中。
- 运行凝胶电泳1小时 h 在 100 五
- 使用配备高分辨率彩色相机的凝胶成像系统获取凝胶图像。
注意:代表性研究中的图像使用数码单反相机拍摄。
访问受限。请登录或开始试用以查看此内容。
结果
本代表性研究重点阐述了比率型FRET方法在研究需要长时间观察的缓慢酶促反应中的特定优势。具体而言,该应用展示了利用比率型FRET系统检测和分析LEI固有的DNase活性。本研究的结果如图2所示。
利用该方法,我们证明了LEI在弱酸性条件下表现出DNase活性,且无需通过切割或暴露于剧烈化学处理等方式进行酶活化。via 我们确定,这种核酸水解活性是LEI的内在特性,在pH ≤ 5.5的溶液中即可检测到。尽管其活性强度适中,但具有高度稳定性,最适pH范围为4.8至5.2,与DNase II家族成员相似15。然而,与DNase II不同的是,该活性在pH高于5.5时迅速终止,并且其寡核苷酸切割模式也不同于DNase II。
访问受限。请登录或开始试用以查看此内容。
讨论
本研究展示了利用比率型FRET技术检测和评估脱氧核糖核酸酶(DNase)活性的方法,所用蛋白为弱核酸酶——白细胞弹性蛋白酶抑制剂(LEI)。该方法为评估蛋白质和生物分子的DNase特性提供了一种便捷且定量的手段。其实验方案简单直接,数据分析过程简便。该检测使用一种38聚体的FRET探针,可在多种酸性pH条件下长时间孵育而保持稳定。正如我们所证明的,这种稳定性使该方法能够检测到即使微弱且缓慢的DNA切割活性。此类稳定性相较于其他基于探针的方法(如分子信标19,20, 具有明显优势,因为分子信标 在长时间孵育以及低或高pH条件下稳定性较差
比率型FRET检测法可系统评估影响DNase活性的实验参数,包括pH、离子条件、缓冲液组成和温度。该检测方法的另一个有益特征是能够通过PAGE平行重分析来验证比率型数据。FRET探针在其3’和5’末端均带有荧光标记,便于明确识别切割片段的来源及切割位点。
该技...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本研究获得了美国国立卫生研究院(NIH)下属国立普通医学科学研究所授予的R01 GM148812基金、美国国立卫生研究院(NIH)下属国家癌症研究所授予的R21 CA255979基金,以及美国国立卫生研究院(NIH)下属国家老龄化研究所授予的R21 AG073887和R21 AG071978基金(以上项目均由V.V.D.负责)。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 96 孔板 | Falcon | 353219 | |
| DNA FRET 探针 | IDT DNA | 5’-AAG GGT(TAM)CCT GCT GCA GGA CCC TTA ACG CAT TAT GCG T(FAM)T- 3’;FAM – 荧光素-dT; TAM – 四甲基罗丹明-dT。 | |
| DNase II | Sigma Aldrich | D8764 | |
| EVOLT 数码单反相机 | Olympus | E500 | |
| 带电源的凝胶电泳装置 | Bio-Rad | ||
| LEI | Novoprotein | CJ01 | |
| LiCOR 凝胶成像系统 | LiCOR | ||
| 无核酸酶水 | Invitrogen | 10977015 | |
| 预制 PAGE 凝胶 | Invitrogen | EC68852 | |
| 乙酸钠缓冲液 pH 5.2 | Sigma Aldrich | S2899-100ML | |
| 荧光分光光度计 | Tecan | Saffire 2 |
参考文献
- A guide to ratiometric fluorescence. , AZoM. https://www.azom.com/article.aspx?ArticleID=16081 (2018).
- Müller, S. M., Galliardt, H., Schneider, J., Barisas, B. G., Seidel, T. Quantification of Förster resonance energy transfer by monitoring sensitized emission in living plant cells. Front Plant Sci. 4, 413(2013).
- Lakowicz, J. R. Principles of fluorescence spectroscopy. , Springer Science & Business Media. (2006).
- Chai, H., Tang, Y., Guo, Z., Miao, P. Ratiometric electrochemical switch for circulating tumor DNA through recycling activation of blocked DNAzymes. Anal Chem. 94 (6), 2779-2784 (2022).
- Liu, G., Ma, X., Tang, Y., Miao, P. Ratiometric fluorescence method for ctDNA analysis based on the construction of a DNA four-way junction. Analyst. 145 (4), 1174-1178 (2020).
- Minchew, C. L., Didenko, V. V. Nanoblinker: Brownian motion powered bio-nanomachine for FRET detection of phagocytic phase of apoptosis. PLoS One. 9 (9), e108734(2014).
- Didenko, V. V. Express FRET labeling and analysis of phagocytic clearance. Methods Mol Biol. 1644, 3-11 (2017).
- Domingo, B., Sabariegos, R., Picazo, F., Llopis, J. Imaging FRET standards by steady-state fluorescence and lifetime methods. Microsc Res Tech. 70 (12), 1010-1021 (2007).
- Lee, M. H., Kim, J. S., Sessler, J. L. Small molecule-based ratiometric fluorescence probes for cations, anions, and biomolecules. Chem Soc Rev. 44 (13), 4185-4191 (2015).
- Torriglia, A., Leprêtre, C., Padrón-Barthe, L., Chahory, S., Martin, E. Molecular mechanism of L-DNase II activation and function as a molecular switch in apoptosis. Biochem Pharmacol. 76 (11), 1490-1502 (2008).
- Padron-Barthe, L., Leprêtre, C., Martin, E., Counis, M. F., Torriglia, A. Conformational modification of serpins transforms leukocyte elastase inhibitor into an endonuclease involved in apoptosis. Mol Cell Biol. 27 (11), 4028-4036 (2007).
- Torriglia, A., Martin, E., Jaadane, I. The hidden side of SERPINB1/leukocyte elastase inhibitor. Semin Cell Dev Biol. 62, 178-186 (2017).
- Torriglia, A., et al. L-DNase II, a molecule that links proteases and endonucleases in apoptosis, derives from the ubiquitous serpin leukocyte elastase inhibitor. Mol Cell Biol. 18 (6), 3612-3619 (1998).
- Summer, H., Grämer, R., Dröge, P. Denaturing urea polyacrylamide gel electrophoresis (Urea PAGE). J Vis Exp. (32), e1485(2009).
- Lauková, L., Konečná, B., Janovičová, Ľ, Vlková, B., Celec, P. Deoxyribonucleases and their applications in biomedicine. Biomolecules. 10 (7), 1036(2020).
- Minchew, C. L., Didenko, V. V. Dual detection of nucleolytic and proteolytic markers of lysosomal cell death: DNase II-type breaks and cathepsin D. Methods Mol Biol. 1554, 229-236 (2017).
- Nucleases (DNases and RNases). , Sigma-Aldrich. https://www.sigmaaldrich.com/US/en/products/protein-biology/proteins-and enzymes/nucleases (2025).
- Altairac, S., Zeggai, S., Perani, P., Courtois, Y., Torriglia, A. Apoptosis induced by Na+/H+ antiport inhibition activates the LEI/L-DNase II pathway. Cell Death Differ. 10 (5), 548-557 (2003).
- Li, J. J., Geyer, R., Tan, W. Using molecular beacons as a sensitive fluorescence assay for enzymatic cleavage of single-stranded DNA. Nucleic Acids Res. 28 (11), E52(2000).
- Ma, C., Tang, Z., Huo, X., Yang, X., Li, W., Tan, W. Real-time monitoring of double-stranded DNA cleavage using molecular beacons. Talanta. 76 (2), 458-461 (2008).
访问受限。请登录或开始试用以查看此内容。
重印与许可
