该方案展示了一种在转基因小鼠心脏中对内在心肌神经元进行光遗传学刺激的方法。所述方法用于研究心脏神经元快速激活的动力学过程 离体 灌流心脏以及胆碱能与儿茶酚胺能活性之间的相互作用。
本文内容
摘要
摘要
胆碱能和儿茶酚胺能激活之间的平衡对于维持心脏健康至关重要。通过在心脏自主神经元中选择性表达通道视紫红质-2(ChR2),可利用光遗传学技术研究这两条通路之间的相互作用。此类光遗传学在心脏中的应用,能够以时空特异性的方式研究神经递质的内在释放。本方法展示了一种在灌注小鼠心脏中对心脏神经元进行特异性光遗传刺激的离体(ex vivo)方法。通过繁育转基因小鼠,使其全身的胆碱乙酰转移酶(ChAT)或酪氨酸羟化酶(TH)神经元表达ChR2。制备了一个封装在硅胶弹性体中的微型LED(465 nm),用于刺激支配窦房结的右心房神经元。该微型LED连接至函数发生器,设置为输出10 Hz、脉宽30 ms的脉冲波。确认表达ChR2的小鼠心脏被取出后,在Langendorff系统上进行逆行灌注,循环使用Krebs-Henseleit溶液。使用LabChart软件记录心电图(ECG)、温度和冠状动脉流量。待心脏状态稳定后,将微型LED置于右心房,并测试其对心率的最佳响应效果。该方法的一个应用实例是:在光遗传激活ChAT-ChR2小鼠心脏、引起胆碱能神经递质(乙酰胆碱)内在释放的同时,向灌注液中逐步增加外源性儿茶酚胺能神经递质(去甲肾上腺素)。本文展示了在同时激活胆碱能和儿茶酚胺能通路时心率发生的变化。该方法提供了一种有价值的实验手段,可用于研究灌注心脏中突发性内在自主神经元激活的动力学特征,以及心脏胆碱能与儿茶酚胺能活动之间的相互作用。
引言
光遗传学是一种将光敏蛋白(视蛋白)导入特定细胞群体的方法。该技术能够实现对特定细胞和组织进行时空精确调控,而这种调控无法通过电刺激或化学手段实现1。在过去15年中,光遗传学在心脏领域的应用日益广泛2。在心肌细胞或神经元中,对兴奋性视蛋白(如阳离子通道视紫红质-2(ChR2))进行光刺激可导致细胞去极化,从而引起心律改变3。利用Cre-lox系统在特定细胞群体中选择性表达视蛋白的方法有两种:病毒转导4和转基因动物杂交育种5。通过杂交育种,可利用细胞特异性启动子在特定自主神经元中选择性表达ChR2,例如在胆碱能或儿茶酚胺能神经元中表达6。可将一个携带floxed ChR2基因的亲本与另一个在特定启动子(如酪氨酸羟化酶(TH,儿茶酚胺能神经元)或胆碱乙酰转移酶(ChAT,胆碱能神经元))控制下表达Cre重组酶的亲本进行交配。其后代将在全身的TH或ChAT神经元中表达ChR27。
通过在特定神经元群体(例如胆碱能或儿茶酚胺能神经元)中利用启动子驱动ChR2的表达,可研究心脏对自主神经元急性激活的功能性反应。通过改变光刺激脉冲的间隔和强度,可调控表达ChR2的神经元的去极化速率,从而研究不同水平的神经激活如何调节心脏功能8。在本方法中,为简化描述,“神经元”将泛指所有通过光遗传学手段被激活的细胞体、轴突和/或轴突投射。此外,还可将光刺激与化学激活相结合,通过引入药物或神经递质来探究其对心律和心肌收缩力的同步影响9。例如,可将光遗传学胆碱能刺激与外源性去甲肾上腺素(NE)注射结合,以考察心脏中自主神经同时激活的影响。使用离体灌注心脏进行此类研究具有优势,可提供一个高度可控的实验平台,用于研究光激活引起的功能性变化10。在严格控制温度、氧合状态和灌注压的同时,可连续监测心电图形态、心率以及冠状动脉血流速率的变化。
本实验方案的目的是介绍一种用于激活小鼠心脏中特定自主神经元群体以研究心率变化的实验方法。同时介绍了在灌注心脏中用于光遗传学激活的微型LED装置的构建与使用方法。实验采用表达ChR2的胆碱能或儿茶酚胺能神经元小鼠,将其心脏取出后以恒定压力逆行灌注含氧的Krebs-Henseleit溶液。对右心房(RA)神经元中表达的ChR2以10 Hz频率、30 ms脉冲宽度进行光刺激。通过RR间期计算瞬时心率,并监测光刺激期间的心率变化。本文还描述了一个示例实验,即在对内源性光遗传学ChAT神经元进行光刺激的同时,通过外源性去甲肾上腺素激活β-肾上腺素能通路,以研究心率动力学变化。
方案
所有动物实验方案均经乔治·华盛顿大学动物护理与使用委员会批准,并遵循美国国立卫生研究院《实验动物护理与使用指南》。
1. 微型LED光源的构建
- 在通风良好的区域,于解剖显微镜下,将两根长度至少为 20 cm 的绝缘铜线裸露端焊接至 465 nm 微型 LED 的接触点(图 1)。通过将 LED 连接到电源并开启,测试焊接是否成功。
- 剪去 200 µL 滤芯吸头底部约 1 cm。使用小直径棒将滤芯推出。将带导线的微型 LED 插入吸头中,使 LED 与吸头末端齐平。将滤芯重新装入吸头顶部,以固定 LED 和导线,然后用瞬干胶将 LED 边缘与吸头粘合。待瞬干胶完全干燥。
- 按 10:1 的比例混合硅橡胶基质与固化剂,充分搅拌均匀。使用真空腔或离心方法去除混合物中的气泡。
- 取一个 0.5 mL 离心管,在管壁划痕以便后续取出 LED(如需要,可在管内壁涂抹润滑剂)。用胶带包裹管外壁,防止泄漏。向管内倒入约 0.2 mL 硅橡胶混合物,然后将微型 LED 吸头插入管中,确保 LED 与管底之间至少留有 1 mm 的空隙。若产生气泡,可轻敲离心管于硬质表面以去除气泡。
注意:可在插入 LED 前预先在吸头表面涂覆一层硅橡胶,以减少气泡形成。 - 将装有微型 LED 的离心管直立放入 50 °C 的实验室烘箱或培养箱中,静置至少 8 小时或过夜。操作烘箱时需佩戴耐热手套。待硅橡胶完全固化后,将 LED 从离心管中取出。若橡胶仍发黏,需重新放回烘箱继续固化。
- 完全固化后,使用精密美工刀去除 LED 尖端多余的橡胶材料,残留厚度不得超过 1 mm。对 LED 进行适当的封装可最大限度减少光刺激过程中对组织的热效应。
- 使用光功率计测定 LED 的光输出功率。开启光功率计,并将波长设置为 465 nm。将 LED 与光电二极管功率传感器对准,通过函数发生器开启 LED。光功率计将显示以瓦特(W)为单位的读数。通过将功率读数除以光照面积(0.88 mm2)计算辐照度。
注意:为有效激活 ChR211,理想的辐照度应约为 2.4 mW/mm2。
2. 实验准备
- 根据先前发表的研究方法繁育小鼠,使其在胆碱能神经元(ChAT-ChR2)或儿茶酚胺能神经元(TH-ChR2)中表达 ChR212(图2)。通过基因型鉴定方法确认实验所用小鼠中 TH-Cre 或 ChAT-Cre 的表达,具体方法如前所述12。
- 准备至少 225 mL 的 Krebs-Henseleit(KH)溶液(单位:mM:118 NaCl,4.7 KCl,1.25 CaCl2,0.57 MgSO4,25 NaHCO3,1.17 KH2PO4,6 葡萄糖),使用 0.2 µm 硝酸纤维素膜滤器过滤。在通入 95% O2 和 5% CO2 气体饱和后,将 pH 调整至 7.4。
- 实验前用纯化水冲洗 Langendorff 灌流系统,并在开始实验前清除所有残留水分。
- 在循环 KH 溶液前,向系统中加入一个 10 µm 的膜滤器。开启水浴装置,设定温度以维持灌流液温度为 37 °C,流速控制在 2–5 mL/min。
- 向灌流系统中加入 175 mL KH 溶液并开始循环。用 95% O2 / 5% CO2 混合气体对溶液进行鼓泡,以确保充分氧合。
注意:KH 溶液的循环体积因系统而异,取决于管道和储液罐的尺寸。 - 通过使用夹闭阀阻断灌流系统的液体流动,并按下流量计上的 归零按钮,对流量计进行校准。
- 准备生理数据采集软件(如 LabChart),设置 12 个通道:心浴温度、主动脉灌流液温度、I–III 导联心电图及四个额外的计算导联、心率计算、流速以及函数发生器输出(用于追踪 LED 脉冲)。
- 利用预留的心率通道,在 LabChart 中使用周期性测量功能检测 I 导联小鼠心电图以计算心率。LabChart 的心电轴扩展模块使用 I 导联和 II 导联计算 III、aVR、aVL 和 aVF 导联。
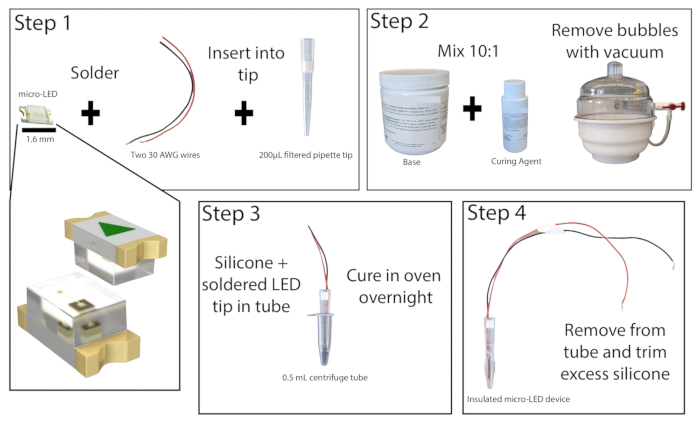
图1:微型LED的构建。构建微型LED光源的步骤简要概述。将两根导线焊接到微型LED上,并插入一个200 µL的移液枪头中,然后用超级胶水固定(步骤1)。以10:1的比例混合硅胶弹性体,并置于真空腔中去除气泡(步骤2)。将硅胶弹性体倒入微量离心管中,插入带有微型LED的移液枪头,并静置过夜使其固化(步骤3)。将绝缘处理后的微型LED从管中取出,并修剪多余的硅胶(步骤4)。请点击此处查看该图的放大版本。
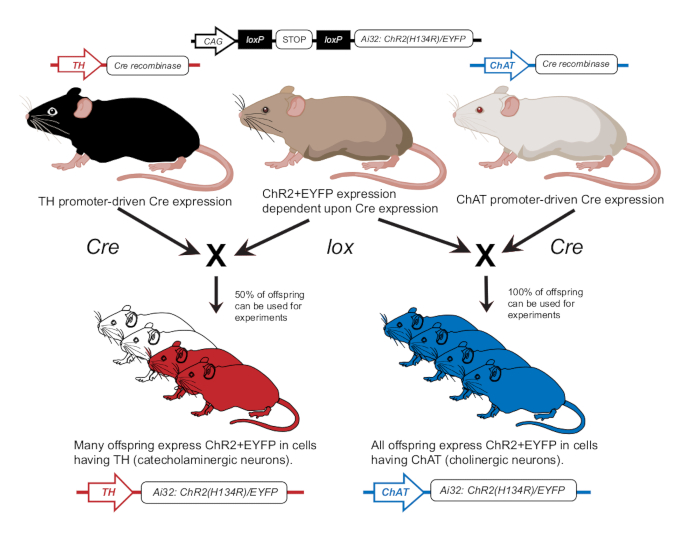
图2:转基因小鼠繁育方案。携带lox依赖性ChR2基因的亲代小鼠与携带Cre启动子的另一只小鼠进行杂交。携带酪氨酸羟化酶(TH)Cre启动子的亲代小鼠将产生杂合子后代,其中50%的个体在儿茶酚胺能细胞中表达ChR2。携带胆碱乙酰转移酶(ChAT)Cre启动子的亲代小鼠将产生纯合子后代,其中100%的个体在胆碱能细胞中表达ChR2。表达情况通过基因分型确认。本图经许可修改自12。请点击此处查看该图的放大版本。
3. 心脏切除与灌注
- 切除前,使用1 mL注射器通过腹腔注射给予250单位肝素(约8 U/g)。继续操作前至少等待10分钟。
- 将一只成年小鼠放入麻醉诱导舱中,给予约4%异氟烷,待其呼吸频率变慢且加深后,将小鼠从舱中取出,通过脚趾夹捏测试确认痛觉反射消失,随后实施颈椎脱位。
- 用镊子夹住剑突,使用手术剪剪开腹腔。小心剪开膈肌以打开胸腔。剪断肋骨以暴露心脏和肺。轻柔地夹住肺部,切除心脏和肺。
- 将心脏放入盛有肝素化KH液的培养皿中。去除肺脏及大块脂肪组织。将清理后的心脏置于2nd 在解剖显微镜下(放大倍数设为2倍)的肝素化KH液培养皿中,定位主动脉,用精细镊子将其套入灌流插管。使用4-0丝线将心脏固定在插管上。
注意:插管操作可在冰上进行,以降低心脏的代谢活性。 - 通过插管灌注一次肝素化克雷布斯-亨西尔(KH)液,以清除冠状动脉中的血液,然后再将心脏接入灌流系统。
- 将插管的心脏连接至灌注系统,并置于盛有灌注液的PDMS培养皿中。根据爱因斯坦三角法,将心电图针状电极插入PDMS培养皿中。13. 将心脏至少稳定5分钟。
- 将心脏旋转,使左心房暴露,用显微自开剪刀在左心房上剪一个约1 mm的孔。通过切口插入一根直径为1 mm的导管至左心室,以释放其中滞留的灌注液。
注意:使用解剖显微镜观察心脏可能有助于更顺利地完成此步骤。 - 将心脏旋转,使右心房(RA)朝上,以便照射窦房结(SA结)图3).
- 根据需要调整心电图电极,将电极移近心脏或浸入灌流液中,以获得合适信噪比的信号。设置参数可能因所用心电图采集硬件和软件而异。本方法采用Einthoven Goldberger模块,增益设为2000,截止滤波器为500 Hz,软件设置包括电源滤波器和1000 Hz采样频率。
4. 光遗传学激活
- 将微LED器件连接至函数发生器,并设置函数发生器输出脉冲波,参数如下:频率10 Hz,脉冲宽度30 ms,峰峰值振幅10Vpp。
- 将微LED轻柔地放置在窦房结(SA结)上。避免用力按压微LED,否则可能导致心率和心脏功能下降。
- 开启函数发生器,观察光刺激引起的心率变化。心率的即时变化表明有效激活。儿茶酚胺能激活引起心率呈指数上升10,而胆碱能激活则导致心率立即下降8。
- 关闭函数发生器,使心率恢复至激活前水平。
- 若光遗传激活引起的心率变化小于100 bpm,应重新调整微LED位置,以更有效地照射右心房(RA)的神经元。必要时可重复操作。
5. 实验步骤与数据分析
- 为了验证内在光遗传学胆碱能刺激能够抑制去甲肾上腺素(NE)介导的外源性β-肾上腺素激活这一假设,需在通风橱中配制10 µM和100 µM的NE储备液。
- 通过注射端口向灌流系统加入单次剂量的NE。当心率升高达到平台期后,开启微LED照射约10秒,随后关闭光源,并监测心率的变化。
- 待心率恢复至窦性心律后,增加NE剂量,并重复光遗传学刺激。对每个NE剂量均重复此过程。
- 实验结束时,关闭气体供应,将心脏从系统中取出,并根据需要将其保存在固定液中。
- 根据需要,使用去离子水或洗涤剂冲洗灌流系统的储液罐和管路,并彻底干燥系统以防止霉变。
- 保存LabChart文件,并导出心率信号和心电图通道数据,用于离线分析和图形展示。
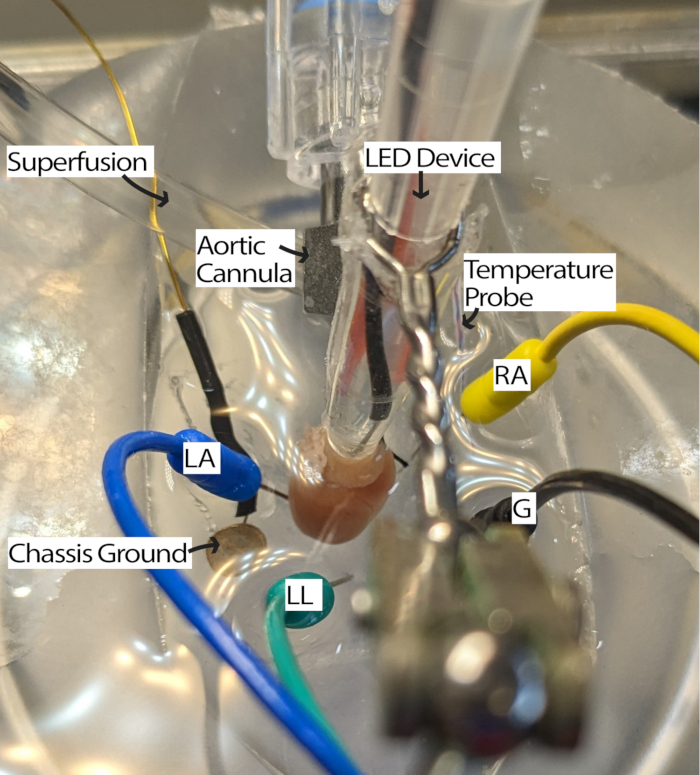
图3:小鼠心脏灌流装置示意图。 显示了安装LED装置和心电图电极的小鼠心脏插管模型。设有底盘接地以减少周围电子设备的噪声干扰。心电图针状电极的放置依据爱因托芬三角(Einthoven's triangle)确定。缩写:LA = 左臂;RA = 右臂;LL = 左腿;G = 接地。请点击此处查看此图的放大版本。
结果
Langendorff 恒压灌流系统(图 4)若维持适当的氧合、温度和冠状动脉流量,应能够在超过一小时的时间内保持小鼠心脏心率至少达到 300 次/分钟。在此系统中,主动脉灌流液温度依赖于冠状动脉流量,因此当流速变化时,可能需要调节水浴温度,以维持主动脉温度在 37 °C。小鼠心脏的冠状动脉流量通常在 1.5–4.5 mL/min 范围内,具体取决于心脏大小。在流速波动期间维持灌流液温度为 37 °C,对于保持心脏功能的稳定性至关重要,尤其在恒压灌流中尤为重要。所描述的灌流系统通过灌流液液柱高度设计,可维持 70 mmHg 的静水压力。这一压力通过调节泵速实现,使顶部储液器持续有液体溢出。灌流液中可添加 20 µM 血管扩张剂克罗卡林(cromakalim),以改善并维持正常或超常的冠状动脉流量,确保心肌充分氧合14。
以10 Hz频率和30 ms脉宽对ChAT-ChR2小鼠心脏中的胆碱能神经元进行光刺激,应导致心率几乎立即下降。在灌注良好的心脏中,有效光刺激胆碱能神经元应引起心率降低至少100 bpm。图5显示,当微LED开启时,心率立即下降75 bpm,并持续下降,直至最大降幅达135 bpm。在关闭微LED后半秒内,心率上升至175 bpm,随后逐渐恢复至刺激前水平。通过六导联心电图展示刺激前、刺激期间及刺激后RR间期的变化(图5B)。导联aVR、aVL和aVF由LabChart软件根据导联I和II计算得出。
对TH-ChR2小鼠心脏中的儿茶酚胺能神经元进行光刺激,相较于胆碱能神经元的光刺激,引起的心率变化更为缓慢(呈指数型)。这可能是由于β1-肾上腺素能激活需要通过cAMP激活PKA的第二信使系统,进而使靶蛋白磷酸化,而毒蕈碱激活则不需要该过程。图6展示了在10秒内心率上升了135 bpm。在光照关闭后,还需额外10秒才能恢复至正常的窦性心律。如果微LED未妥善绝缘,可能会加热心脏,导致心率升高。这种由加热引起的心率反应强度低于TH-ChR2刺激,因此心率变化不那么显著。
该方案的一个应用是利用光遗传学刺激使神经元去极化,从而释放内源性神经递质,同时在灌流液中加入外源性神经递质。图7A展示了在ChAT-ChR2小鼠心脏中,内源性乙酰胆碱的释放情况,并在灌流液中添加了去甲肾上腺素(NE)的推注剂量。在未添加NE的情况下,光刺激导致心率下降超过100 bpm,并在整个刺激期间维持该下降水平;而在灌流液中加入高剂量NE(2000 nM)后,光刺激期间心率最大下降仅为40 bpm,且心率在光照关闭前即开始迅速回升,几乎恢复至刺激前水平。该结果表明,ChAT神经元光刺激引起的心率光遗传学抑制无法完全抵消高剂量NE所致的心率升高,导致心率抑制持续时间缩短,心率下降幅度减小(图7B)。这些结果与先前在大型动物中的研究一致,后者表明在同时刺激迷走神经和星状神经节时会出现进行性房室结传导阻滞12,13。
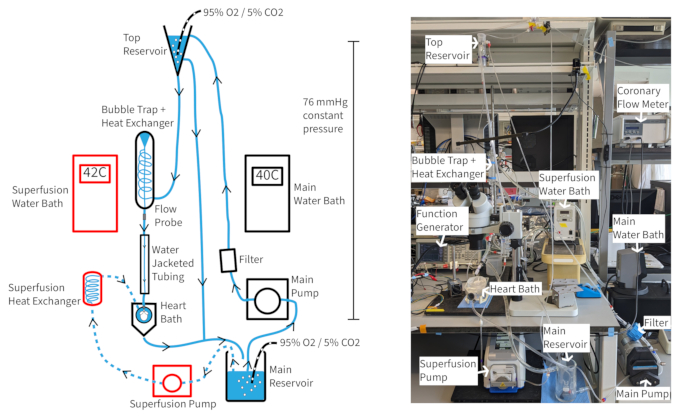
图4:实验装置。灌注系统示意图。 箭头表示灌注液的流动方向。虚线表示 superfusion 灌注液,组件以红色边框标出。 请点击此处查看该图的放大版本。
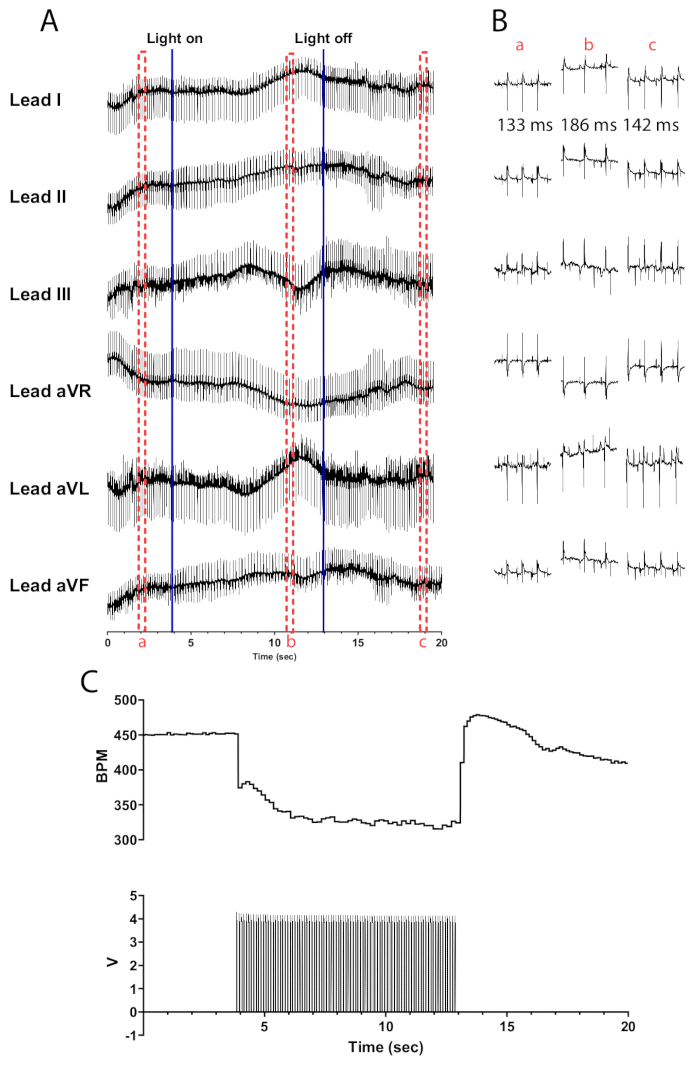
图5:典型的胆碱能光刺激反应。(A) ChAT-ChR2光遗传激活期间的6导联心电图。实心蓝色线条表示微LED的开启/关闭。红色虚线框标示了(B)片段对应的时间。 (B) 光刺激前(a)、期间(b)和之后(c)的半秒心电图信号片段。各段均显示了RR间期。 (C) 心率(上图)与函数发生器的脉冲波形(下图)同步显示。光刺激开始前心率起始于450 bpm,在持续8秒的光刺激后下降至315 bpm,并在光刺激结束后7秒恢复至410 bpm。 请点击此处查看该图的高清版本。
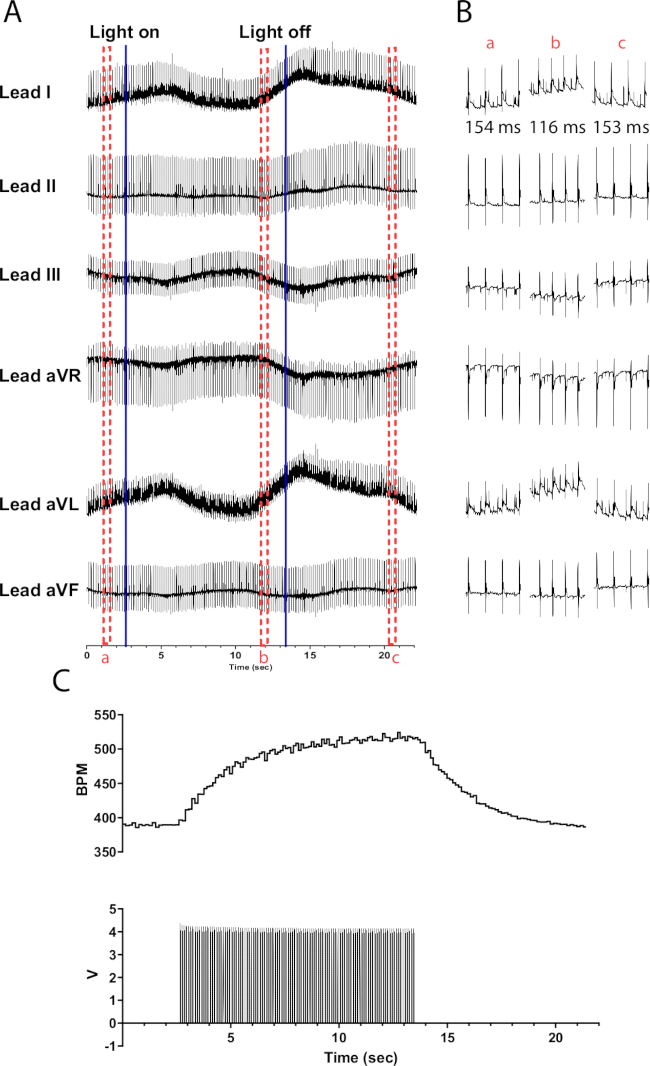
图 6:代表性儿茶酚胺能光刺激反应。(A) TH-ChR2 光遗传激活期间的 6 导联 ECG。实心蓝线表示微 LED 的开启/关闭。红色虚线框标示了(B)片段的对应时间。(B) 光刺激前(a)、期间(b)和之后(c)的半秒 ECG 信号片段。各段均显示 RR 间期。(C) 心率(上图)与函数发生器的脉冲波形(下图)同步显示。心率从 390 bpm 开始,在光刺激持续 10 秒后升至峰值 525 bpm,并在光刺激结束后 8 秒恢复至 390 bpm。请点击此处查看该图的放大版本。
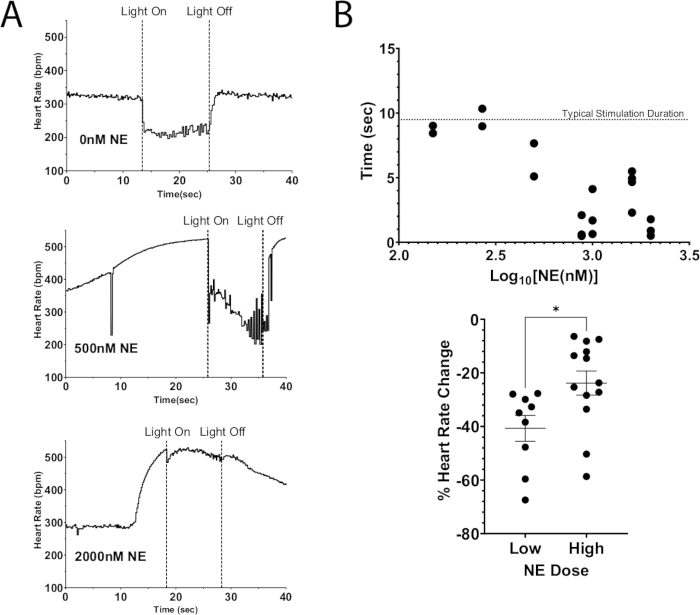
图7:外源性去甲肾上腺素存在下的胆碱能光遗传刺激。 (A) 在向灌流液中添加不同剂量去甲肾上腺素(NE)的情况下,进行 ChAT-ChR2 光遗传刺激时的心率反应。当心率因 NE 达到最大增幅后,开启微LED持续约10秒。即使在高剂量 NE 条件下,仍可实现心率抑制,但随着 NE 剂量增加,抑制持续时间缩短。 (B) 心率保持抑制状态的持续时间。接近10秒的刺激时间通常在整个刺激期间维持完全抑制。 (C) 在高剂量 NE 条件下,光刺激引起的心率下降程度较低于低剂量 NE 条件。低剂量 NE 导致心率平均下降40%,而高剂量仅下降25%。采用非配对t检验评估统计学显著性。数据以均值标准误表示,* p < 0.05。 请点击此处查看此图的放大版本。
讨论
对固有心脏自主神经元进行光遗传学刺激,所产生的心率反应程度与刺激迷走神经或星状神经节的电刺激相当14,15。然而,对离体灌注心脏进行电刺激无法轻易实现对特定神经元群体的靶向。药物激活虽可靶向特定受体,但缺乏空间特异性,且其反应时间依赖于冠状动脉血流速度。光遗传学激活具有响应近乎瞬时、可靶向特定神经元群体以及能够调节光刺激强度等优势16。在本实验方案中,我们还阐述了如何构建一种结构简单、成本低廉的光源,用于光刺激固有心脏神经元。
深入理解心脏内神经系统的影响将有助于更好地诊断和治疗心血管疾病。ChR2 的选择性表达使得能够检验与特定神经群体在疾病过程中活动相关的新假设。通过这种方法,可以研究遍布心脏的各类神经群体,例如肺静脉周围或心室内的固有心脏神经节。例如,在心肌梗死的小鼠模型中,随着梗死区域的演变以及神经元发生转分化,对固有自主神经元进行光刺激可能有助于探究梗死边缘区组织的电生理变化17。在本实验方案中,我们描述了另一个示例:通过光遗传学与药理学手段相结合,对胆碱能和儿茶酚胺能通路同时激活时的心脏急性反应进行可控实验,从而能够考察独特的剂量反应关系。这种同时激活的现象与溺水过程中出现的“自主神经冲突”有关,但其机制迄今尚未完全阐明18。此外,在具备适当光源、染料和滤光片组合的条件下,本方案还可与心脏光学标测技术结合,用于研究自主神经元刺激对心脏电生理及神经-心脏心律失常机制的急性影响19,20,21。
在使用本方案研究离体灌注心脏的内在心脏神经系统时,需考虑若干重要概念。小鼠心脏对灌注环境的微小变化十分敏感。密切监测心率有助于识别冠状动脉灌注问题,这些问题可能导致心肌氧合不足、缺血以及心脏功能不良。本方案建议在主储液罐和顶部储液罐中均对灌注液进行氧合,以减少潜在问题。将氧合管路完全浸入液体中,有助于确保灌注液中的最佳氧含量。可使用紫外手电筒照射心脏,观察NADH荧光以提示缺氧/缺血情况,并据此调整氧合条件19,20。在恒压灌注过程中,灌注液温度受冠状动脉流速的影响。若冠状动脉流速下降,由于靠近主动脉插管的管路中发生冷却效应,主动脉灌注液温度也可能下降,从而导致心率降低。提高灌注液水浴温度有助于逆转此问题。本方案还采用表面灌流回路以维持心脏浴槽温度为37 °C。若心脏浴槽温度下降,可能需要增加表面灌流流速。微LED是引起心脏温度变化的另一潜在来源,因为在光刺激期间右心房(RA)温度可能上升。若包埋装置的硅胶弹性体过薄,微LED可能发热并加热窦房结,导致心率意外升高。在野生型心脏上测试微LED光源有助于评估其加热程度。微LED在30秒内引起的心率升高不应超过10%。若出现此情况,应更换硅胶弹性体。
本研究的目的是 离体 离体灌注心脏实验旨在通过可控变量重建接近生理条件的环境,但该方法存在局限性22晶体液灌注液是这些实验的标准选择;然而,在高应激条件下,它可能限制向线粒体的氧气输送23,24此外,灌注液中缺乏本应自然存在的循环激素 体内另一个局限性在于,微LED的光照强度变化及其位置可能导致神经刺激存在局部差异,因此在启动实验方案前,通常需要调整微LED在心脏上方的位置。
综上所述,本方案介绍了一种在灌注小鼠心脏中对心脏神经元进行特异性光遗传学刺激的离体(ex vivo)方法。通过构建微发光二极管(micro-LED)光源,用于刺激右心房的神经元。该方法的一个应用实例结合了在ChAT-ChR2小鼠心脏中光遗传激活期间内源性乙酰胆碱的释放,并同时增加外源性去甲肾上腺素(NE)的浓度。文中展示了在胆碱能与儿茶酚胺能系统同时激活时心率发生的变化。本方案描述了一种有价值的实验方法,可用于研究灌注心脏中固有自主神经元快速激活的动力学过程,以及心脏胆碱能与儿茶酚胺能活动之间的相互作用。
披露
无任何利益冲突需要声明。
致谢
本工作由以下机构资助: NIH R01 HL144157 致 MWK,NIH R01 HL144157 至EE和MWK,以及美国国立卫生研究院(NIH)R01项目HL147279和 HL146169 资助 MWK 和 DM,以及柯林斯杰出学者奖 RR 获得博士后奖学金。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| #3c 镊子(x2) | Dumont | 11231-20 | |
| 0.2 μm 硝酸纤维素膜滤器 | Whatman | 7182-004 | 用于过滤KH溶液 |
| 0.5 ml 微量离心管 | Ultra Cruz | sc-200269 | |
| 10 μm Nuclepore 膜滤器 | Whatman | 111115 | 用于系统过滤 |
| 模拟培养箱 | Qunicy Labs | 12-140 | |
| 主动脉插管 | Harvard Apparatus | 73-2798 | |
| 任意波形发生器 | Tektronix | AFG3021B | |
| 编织丝线缝合线 4-0 | Surgical Specialties Look | SP116 | |
| CaCl2 | Sigma-Aldrich | C1016 | |
| 弯止血钳 | Ted Pella | 53065 | |
| 爱因托芬-戈德伯格模块 | Hugo Sachs Elektronik | 73-1778 | |
| 30AWG 柔性硅胶导线 | BNTECHGO | 619317716902 | |
| 葡萄糖 | Sigma-Aldrich | G8270 | |
| 重型弯虹膜镊 | Aesculap | OC022R | |
| 肝素钠注射液 | Sagent | 400-30 | |
| 虹膜剪 | Ted Pella | 13215 | |
| 异氟烷溶液 | Covetrus | 029405 | |
| KCl | Sigma-Aldrich | P3911 | |
| KH2PO4 | Sigma-Aldrich | P9791 | |
| LabChart 8 | ADInstruments | 数据采集软件 | |
| MgSO4 | Sigma-Aldrich | M7506 | |
| 显微解剖剪 | WPI | 504520 | |
| 微型LED | Dialight | 598-8091-107F | |
| NaCl | Sigma-Aldrich | S9625 | |
| NaHCO3 | Sigma-Aldrich | S6014 | |
| 光功率计 | Thorlabs | PM100D | |
| PowerLab 8/35 | ADInstruments | PL3508 | |
| 自开式精密剪刀 | Excelta | 366 | |
| 单动物麻醉机 | E-Z Systems | EZ-108SA | |
| 焊接站 | Weller | WES51 | |
| SureOne 滤芯吸头 | Fisherbrand | 02-707-478 | |
| SYLGARD 184 硅橡胶弹性体试剂盒 | DOW | 04019862 | |
| 组织镊 | Ted Pella | 13220 | |
| 管路流量系统 | Transonic | TS410 |
参考文献
- Deisseroth, K., et al. Next-generation optical technologies for illuminating genetically targeted brain circuits. J Neurosci. 26 (41), 10380-10386 (2006).
- Entcheva, E., Kay, M. W. Cardiac optogenetics: a decade of enlightenment. Nat Rev Cardiol. 18, 349-367 (2021).
- Ambrosi, C. M., Klimas, A., Yu, J., Entcheva, E. Cardiac applications of optogenetics. Prog Biophys Mol Biol. 115 (2-3), 294-304 (2014).
- Pinol, R. A., Bateman, R., Mendelowitz, D. Optogenetic approaches to characterize the long-range synaptic pathways from the hypothalamus to brain stem autonomic nuclei. J Neurosci Meth. 210 (2), 238-246 (2012).
- Zeng, H., Madisen, L. Mouse transgenic approaches in optogenetics. Prog Brain Res. 196, 193-213 (2012).
- Sauer, B. Inducible gene targeting in mice using the Cre/lox system. Methods. 14 (4), 381-392 (1998).
- Hedrick, T., et al. Characterization of channelrhodopsin and archaerhodopsin in cholinergic neurons of Cre-lox transgenic mice. PLoS One. 11 (5), 1-15 (2016).
- Moreno, A., et al. Sudden heart rate reduction upon optogenetic release of acetylcholine from cardiac parasympathetic neurons in perfused hearts. Front Physiol. 10, 1-11 (2019).
- Habecker, B. A., et al. Molecular and cellular neurocardiology in heart disease. J Physiol. , (2024).
- Wengrowski, A. M., et al. Optogenetic release of norepinephrine from cardiac sympathetic neurons alters mechanical and electrical function. Cardiovas Res. 105 (2), 143-150 (2015).
- Williams, J. C., et al. Computational optogenetics: empirically-derived voltage- and light-sensitive channelrhodopsin-2 model. PLoS Comput Biol. 9 (9), e1003220(2013).
- Moreno, A., Kowalik, G., Mendelowitz, D., Kay, M. W. Optogenetic control of cardiac autonomic neurons in transgenic mice. Meth Mol Biol. 2191, 309-321 (2021).
- Einthoven, W., Fahr, G., de Waart, A. On the direction and manifest size of the variations of potential in the human heart and on the influence of the position of the heart on the form of the electrocardiogram. Am Heart J. 40 (2), 163-211 (1950).
- Giles, A. V., et al. Paradoxical arteriole constriction compromises cytosolic and mitochondrial oxygen delivery in the isolated saline-perfused heart. Am J Physiol Heart Circ Physiol. 315 (6), H1791-H1804 (2018).
- Wallick, D. W., Martin, P. J., Masuda, Y., Levy, M. N. Effects of autonomic activity and changes in heart rate on atrioventricular conduction. Am J Physiol. 243 (4), H523-H527 (1982).
- Entcheva, E. Cardiac optogenetics. Am J Physiol Heart Circ Physiol. 304 (9), H1179-H1191 (2013).
- Wang, L., et al. Cardiac sympathetic nerve transdifferentiation reduces action potential heterogeneity after myocardial infarction. Am J Physiol Heart Circ Physiol. 318 (3), H558-H565 (2020).
- Shattock, M. J., Tipton, M. J. Autonomic conflict: a different way to die during cold water immersion. J Physiol. 590 (14), 3219-3230 (2012).
- Sacconi, L., et al. KHz-rate volumetric voltage imaging of the whole Zebrafish heart. Biophys Rep. 2 (1), 100046(2022).
- Asfour, H., Swift, L. M., Sarvazyan, N., Doroslovacki, M., Kay, M. W. Signal decomposition of transmembrane voltage-sensitive dye fluorescence using a multiresolution wavelet analysis. IEEE Trans Biomed Eng. 58 (7), 2083-2093 (2011).
- Nyns, E. C. A., et al. Optogenetic termination of ventricular arrhythmias in the whole heart: towards biological cardiac rhythm management. Eur Heart J. 38 (27), 2132-2136 (2017).
- Ripplinger, C. M., et al. Guidelines for assessment of cardiac electrophysiology and arrhythmias in small animals. Am J Physiol Heart Circ Physiol. 323 (6), H1137-H1166 (2022).
- Swift, L. M., Kay, M. W., Ripplinger, C. M., Posnack, N. G. Stop the beat to see the rhythm: excitation-contraction uncoupling in cardiac research. Am J Physiol Heart Circ Physiol. 321 (6), H1005-H1013 (2021).
- Asfour, H., et al. NADH fluorescence imaging of isolated biventricular working rabbit hearts. J Vis Exp. (65), e4115(2012).
重印与许可
