本文介绍了通过免疫印迹法简洁评估细胞外囊泡(EVs)中自噬体标志物LC3-II水平的方法。对EVs中LC3-II水平、自噬溶酶体形成以及omegasome形成的分析表明,当自噬体与溶酶体融合受阻时,STX6在释放LC3-II阳性EVs中具有新的作用。
本文内容
摘要
摘要
(大)自噬是一种基本的细胞降解途径。在此过程中,称为自噬体的双层膜囊泡包裹细胞质内容物,随后与溶酶体融合以实现降解。除了经典的降解功能外,自噬相关基因还调控一种分泌途径,涉及炎性分子、组织修复因子和细胞外囊泡(EVs)的释放。值得注意的是,在影响脑和脊髓的神经退行性疾病中,致病性蛋白在细胞间传播的过程凸显了理解这一现象的重要性。最近的研究表明,肌萎缩侧索硬化症和额颞叶变性中的关键蛋白——43 kDa反式激活反应DNA结合蛋白(TDP-43),可通过富含自噬体标志物微管相关蛋白1A/1B轻链3B-II(LC3-II)的细胞外囊泡以自噬依赖的方式释放,尤其是在自噬体与溶酶体融合受阻时更为显著。
为了阐明LC3-II阳性细胞外囊泡(EV)形成与释放的潜在机制,必须建立一种简便且可重复的方法,用于评估细胞内和细胞外的LC3-II阳性囊泡。本研究提供了一种详细的实验方案,通过差速离心法分离细胞和EV组分,并利用免疫印迹法检测其中的LC3-II水平。巴佛洛霉素A1(Baf)作为一种抑制自噬体-溶酶体融合的试剂,被用作阳性对照,以提高细胞内和细胞外LC3-II阳性囊泡的水平。肿瘤易感基因101(TSG101)则作为多泡体的标志物。应用该方案发现,在Baf处理的细胞中,通过siRNA介导的突触融合蛋白6(STX6)基因敲低——该基因是散发性克雅氏病的遗传风险因素——可显著增加EV组分中的LC3-II水平,但对TSG101水平无明显影响。这些结果表明,STX6可能在自噬体-溶酶体融合受损的条件下,负向调控LC3-II通过EV的细胞外释放。结合已有的自噬评估方法,该方案为研究特定分子在LC3-II阳性EV形成与释放过程中的作用提供了重要依据。
引言
TAR DNA结合蛋白43(TDP-43)是一种广泛表达的异质性核核糖核蛋白,参与调控外显子剪接、基因转录和mRNA稳定性,这些功能对细胞存活至关重要1,2。在肌萎缩侧索硬化症(ALS)和额颞叶变性(FTLD)等神经退行性疾病中,原本位于细胞核内的TDP-43蛋白异常积聚于细胞质中。这种定位改变导致TDP-43在细胞核中功能丧失,同时在细胞质中产生毒性获得性功能。TDP-43的病理性积聚始于脑和脊髓的特定区域,并以类似朊病毒的方式在这些区域间扩散,该过程与疾病进展密切相关3。然而,TDP-43病理在脑和脊髓中扩散的确切机制仍不清楚。
TDP-43 通过细胞外囊泡(EVs)分泌,且在肌萎缩侧索硬化症(ALS)和TDP-43蛋白病相关的额颞叶变性(FTLD-TDP)患者的血浆及脑脊液(CSF)中检测到升高的TDP-43水平4,5,6。来自确诊为ALS和FTLD患者的脑脊液可诱导人胶质瘤细胞内源性TDP-43的细胞内错误定位和聚集7。因此,通过EVs释放到细胞外的TDP-43可能介导了TDP-43病理在细胞间的传播。
自噬是一种高度保守的细胞降解机制,其过程涉及将不需要的物质包裹在双层膜囊泡(即自噬体)中,自噬体以LC3为标志。这些自噬体与溶酶体相关膜蛋白1(LAMP1)阳性的溶酶体融合,形成自噬溶酶体(LC3+/LAMP1+),从而导致其内容物的降解8。组织学分析表明,在散发性肌萎缩侧索硬化症(ALS)患者神经元中,包裹包涵体的自噬体出现积聚9。一些家族性ALS和额颞叶变性伴TDP-43蛋白病(FTLD-TDP)的致病基因与自噬调控相关10,11,12。这些发现提示,ALS和FTLD-TDP患者的自噬功能受到抑制。
先前的研究表明,当自噬体-溶酶体融合受到抑制时,TDP-43 会通过携带自噬体标志物 LC3-II 的细胞外囊泡(EVs)分泌13。自噬-溶酶体通路的失调不仅可能导致 TDP-43 在细胞内积聚,还可能促进 TDP-43 通过 EVs 向细胞外释放14。然而,目前尚不清楚携带 LC3-II 的 EVs 是如何被释放的,以及这一过程在 TDP-43 病理扩散中的重要性如何。
EVs 分为大 EVs(直径为 100 至 1000 nm),由细胞表面出芽产生;以及小 EVs(直径为 50 至 150 nm),由晚期内体膜向内出芽(即外泌体)和高尔基体产生。为了分别收集大 EVs 和小 EVs,我们进行连续离心,分别在 20,000 × g 和 110,000 × g 条件下离心收集沉淀。P1 EV 组分(20,000 × g 沉淀)用于收集大 EVs,P2 EV 组分(110,000 × g 沉淀)用于收集小 EVs15。通过免疫印迹检测连续离心获得的大 EVs 和小 EVs 中 LC3-II 水平的方法稳定且可重复16。除了分析 EVs 中的 LC3-II 水平外,分析自噬溶酶体和 omegasome 的形成有助于理解自噬失调如何导致 LC3-II 阳性 EVs 的释放。本文研究表明,当自噬体-溶酶体融合受阻时,SNARE 蛋白 syntaxin 6(STX6)在 LC3-II 阳性 EVs 释放过程中发挥抑制作用,而 STX6 通常促进转运囊泡向靶膜移动17。
方案
1. 从 HeLa 细胞培养基中制备细胞、P1 和 P2 EV 组分
- 从 HeLa 细胞培养基中制备 P1 和 P2 EV 组分
- 第 1 天
- 使用细胞计数仪计数细胞,并将 1 × 10⁶ 个细胞接种至含有培养基的 6 cm 培养皿中,培养基成分为 DMEM 高糖培养基、10% FBS 和 1% 青霉素/链霉素。将细胞在 37 °C、5% CO2 及受控湿度条件下孵育 24 小时。
- 第 2 天(可选)
- 制备 20 µM 的 siRNA 溶液。
- 在低吸附离心管中混合 100 µL 低血清培养基和 3 µL siRNA,制备 溶液 A。
- 在低吸附离心管中混合 100 µL 低血清培养基和 5 µL 转染试剂,制备 溶液 B。
- 将 溶液 A 与 溶液 B 混合,室温(RT)孵育 5 分钟。
- 将 溶液 A 与 溶液 B 的混合物加入 HeLa 细胞培养用培养基中。将细胞在 37 °C、5% CO2 及受控湿度条件下孵育 24 小时。
- 第 3 天
- 用 PBS 洗涤细胞,并在 37 °C、5% CO2 及受控湿度条件下,加入 500 µL 0.25% 胰蛋白酶和 1 mM EDTA 溶液处理 5 分钟。
- 向细胞中加入 2.5 mL 培养基,使用带有 200 µL 吸头的巴斯德移液管制备单细胞悬液。
- 使用细胞计数仪计数细胞,并将 1 × 10⁶ 个细胞接种至 10 cm 培养皿中。将细胞在 37 °C、5% CO2 及受控湿度条件下孵育 24 小时。
注:为进行免疫印迹分析所需的培养基中 EV 的收集,至少需准备 1 × 10⁶ 个细胞。
- 第 4 天
- 制备培养基(见步骤 1.1.1.1),其中添加溶剂(DMSO)或 100 nM 巴佛洛霉素 A1(Baf)。
- 用含溶剂或 100 nM Baf 的培养基处理细胞,并在 37 °C、5% CO2 及受控湿度条件下孵育 24 小时。
- 第 5 天
- 收集 10 cm 培养皿中的全部培养基,转移至 15 mL 离心管中,在 4 °C 条件下以 3,000 × g 离心 10 分钟,以去除细胞碎片。
注:10 cm 培养皿中剩余的细胞将用于第 1.2.1 节。 - 为分离 P1 EV 组分,将 3,000 × g 离心后的上清液转移至离心管中,然后在 4 °C 条件下以 20,000 × g 离心 1 小时。
- 为分离 P2 EV 组分,将 20,000 × g 离心后的上清液转移至超速离心管中,然后在 4 °C 条件下以 110,000 × g 离心 1 小时。
- 用实验室擦拭纸擦去离心管内壁多余的水分,将沉淀用 50 µL 2x 上样缓冲液 [2.5% SDS、125 mM Tris-HCl 缓冲液(pH 6.8)、30% 甘油、10% 2-巯基乙醇、0.4% 溴酚蓝] 重悬,制备 P1 EV 组分。
- 倾去上清液,用实验室擦拭纸擦去超速离心管内壁多余的水分,然后将沉淀用 50 µL 2x 上样缓冲液重悬,制备 P2 EV 组分。
- 将 P1 和 P2 EV 组分在金属浴中 100 °C 孵育 10 分钟。
注:在 20,000 × g 和 110,000 × g 离心后,切勿振荡离心管,以免意外丢弃沉淀。倾倒上清液时倾斜离心管后,应保持管体位置固定,防止沉淀再次浸入残留上清液中。
- 收集 10 cm 培养皿中的全部培养基,转移至 15 mL 离心管中,在 4 °C 条件下以 3,000 × g 离心 10 分钟,以去除细胞碎片。
- 第 1 天
- 从培养的 HeLa 细胞中制备细胞组分
- 第 5 天
- 将 10 cm 培养皿中的培养基转移至 15 mL 离心管后,用 PBS 洗涤 10 cm 培养皿中的细胞,并在 37 °C、5% CO2 及受控湿度条件下,加入 2 mL 0.25% 胰蛋白酶和 1 mM EDTA 溶液处理 5 分钟。
- 向细胞中加入 8 mL 生长培养基,然后使用带有 200 µL 吸头的巴斯德移液管吹打细胞,制备单细胞悬液。
- 将细胞悬液转移至 15 mL 离心管中,在 4 °C 条件下以 1,000 × g 离心 10 分钟。
- 用移液器吸除上清液,向细胞沉淀中加入 PBS,然后在 4 °C 条件下以 1,000 × g 离心 5 分钟。
- 用移液器吸除 PBS,并在含 1% 萨尔科西尔的 1 mL A68 缓冲液 [10 mM Tris-HCl 缓冲液,pH 7.5,0.8 M NaCl,1 mM 乙二醇双(β-氨基乙基醚)-N,N,N,N-四乙酸(EGTA)] 中超声处理细胞沉淀。
- 使用 BCA 蛋白检测试剂盒测定细胞裂解液的蛋白浓度。
- 将 300 µL 细胞裂解液与 100 µL 4x 上样缓冲液混合,在金属浴中 100 °C 孵育 10 分钟,制备细胞组分。
- 第 5 天
2. 免疫印迹分析
- 通过 SDS-PAGE 分离各样品中的等量蛋白质18。
- 将分离后的蛋白质转移至聚偏二氟乙烯(PVDF)膜上。
- 转移完成后,用封闭剂在室温下封闭膜 20 分钟。
- 将封闭后的膜在含有 10%(v/v)小牛血清的 Tris 缓冲液中,与指定的一抗在室温下孵育过夜。
- 用 Tris 缓冲液洗涤膜 5 秒,然后在室温下与生物素标记的二抗孵育 2 小时。
- 用 Tris 缓冲液洗涤膜 5 秒,然后在室温下与试剂盒中的溶液 A 和溶液 B(各 0.4% v/v)的 Tris 缓冲液孵育 1 小时。
- 用 PBS 洗涤膜,然后在含有 0.04%(w/v)二氨基联苯胺、0.8%(w/v)NiCl2·6H2O 和 0.3%(v/v)H2O2 的 PBS 中孵育,以进行条带的比色检测。
注意:也可采用化学发光法检测信号。 - 使用扫描仪对膜图像进行数字化,并使用 Fiji 软件进行密度分析。
- 在 Fiji 中打开数字化图像,点击 Image | Type | 8-bit 将 RGB 彩色图像转换为 8 位图像。
- 点击 矩形工具,通过拖动调整矩形大小以包围条带区域,然后点击 Analyze | Gels | Select First lane 确定待分析的条带。
- 将矩形移至第二条及后续条带位置,并通过点击 Analyze | Gels | Select Next Lane 依次确定待分析条带。
- 识别到最后一条带后,点击 Analyze | Gels | Plot Lanes 对矩形区域进行密度扫描测量。
- 用直线包围条带的信号区域,点击 魔棒工具,并在区域内点击以计算条带的信号强度。
3. 自噬体和自噬溶酶体数量的分析
- 第1天
- 使用细胞计数仪对HeLa细胞进行计数,并将1 × 10⁵个表达LAMP1-GFP和mCherry-LC3的HeLa细胞接种至3.5 cm培养皿中。于37 °C、5% CO2及恒定湿度条件下培养24小时。
- 第2天(可选)
- 在3.5 cm培养皿中执行第1.1.2节所述步骤。
- 第3天
- 弃去3.5 cm培养皿中的培养基。
- 用PBS洗涤细胞,加入400 µL含0.25%胰蛋白酶和1 mM EDTA的溶液,于37 °C、5% CO2及恒定湿度条件下孵育5分钟。
- 向细胞中加入1.6 mL生长培养基,使用巴斯德移液管吹打制成单细胞悬液。
- 使用细胞计数仪对细胞进行计数,并将1 × 10⁴个细胞接种至8孔腔室盖玻片上。于37 °C、5% CO2及恒定湿度条件下培养24小时。
注:根据第3.4.2节所述,分别用DMSO或Baf处理,为对照组和STX6敲低细胞各准备两个腔室孔。
- 第4天
- 准备不含酚红的生长培养基(无酚红DMEM,含10% FBS和1%青霉素/链霉素),其中分别加入溶剂(DMSO)或100 nM Baf(溶于DMSO)。
- 将原培养基更换为不含酚红并含有溶剂或100 nM Baf的培养基,孵育4小时。
注:为评估Baf对自噬体和自噬溶酶体数量的影响,需设置经溶剂处理的细胞作为对照组。 - 在观察前,用0.33 µg/mL Hoechst 33342对细胞核染色30分钟。
- 使用共聚焦激光显微镜配备60倍物镜进行活细胞成像,并采集十个不同的视野图像。
- 在Fiji中打开RGB合并图像,点击图像 | 颜色 | 拆分通道,将其拆分为红、绿、蓝三个独立的图像通道。
- 对每张图像的红、绿信号,通过点击图像 | 调整 | 阈值设置固定阈值。
- 点击分析 | 分析颗粒,统计红或绿信号阳性的区域数量。勾选汇总框,点击确定,记录计数结果,以识别与自噬体和溶酶体相关的囊泡。
- 为将绿色图像叠加到红色图像上,点击编辑 | 粘贴控制,将传输模式设为AND。复制绿色图像并粘贴至红色图像上进行合并,以突出显示红绿信号双阳性的区域。
- 为识别自噬溶酶体数量,点击分析 | 分析颗粒,统计红绿信号双阳性区域的数量。勾选汇总框,点击确定,记录计数部分的数值,以识别与自噬体和溶酶体相关的囊泡。
- 将自噬溶酶体和自噬体的总数除以细胞总数,计算每个细胞中自噬溶酶体和自噬体的数量。
注:在三次独立实验中,每组至少计数35个细胞。
4. 成泡沫体形成的分析
- 第1天
- 使用细胞计数器计数HeLa细胞数量,并将1 × 10⁵个细胞接种至3.5 cm培养皿中。在37 °C、5% CO2及湿度控制条件下培养24小时。
- 第2天(可选)
- 执行第1.1.2节中描述的步骤。
- 第3天
- 按照步骤3.3.1–3.3.2所述方法制备单细胞悬液。
- 使用细胞计数器计数细胞,并将1 × 10⁵个细胞接种至3.5 cm培养皿中。在37 °C、5% CO2及湿度控制条件下培养24小时。
- 第4天
- 在低吸附离心管中混合1 µg pEGFP-C1-hAtg13质粒、3 µL DNA转染试剂和100 µL低血清培养基。将混合物孵育20分钟,然后加入培养基中。
- 在37 °C、5% CO2及湿度控制条件下继续培养细胞24小时。
- 第5天
- 按照步骤3.3.1–3.3.2所述方法对细胞进行胰酶消化处理。
- 向细胞中加入2.5 mL完全培养基。使用巴斯德移液管吹打混匀,制备单细胞悬液。
- 使用细胞计数器计数细胞,并将1 × 10⁴个细胞接种至 8孔盖玻片中。在37 °C、5% CO2及湿度控制条件下培养24小时。
- 第6天
- 按照步骤3.4.1–3.4.4,使用共聚焦激光显微镜对第4.5.3步所得细胞进行活细胞成像。采集十个不同的图像帧。
- 按照步骤3.4.4.1–3.4.4.3,将RGB合并图像拆分为红色、绿色和蓝色各通道图像,对每张图像中的绿色信号设定统一阈值,并测定GFP信号强度。记录总面积部分的数值,以确定GFP-ATG13的信号强度。
- 将总信号强度除以检测的细胞数,计算单个细胞的信号强度。
注意:在三次独立实验中,每次至少计数34个细胞。
- 按照步骤3.4.1–3.4.4,使用共聚焦激光显微镜对第4.5.3步所得细胞进行活细胞成像。采集十个不同的图像帧。
结果
如先前研究所示,Baf处理增加了EV富集组分中TSG101(P1:P < 0.01,P2:P = 0.012,通过EZR19中的双因素方差分析确定)和LC3-II(P1:P < 0.01,P2:P < 0.01,通过EZR19中的双因素方差分析确定)的水平。值得注意的是,Baf处理还增加了EV组分中STX6的水平(P1:P < 0.01,P2:P < 0.01,通过EZR19中的双因素方差分析确定)(图1A),提示STX6可能是EV的组分之一。在EV组分中未检测到增殖细胞核抗原(PCNA)。对细胞组分中STX6的免疫印迹分析显示,STX6的siRNA敲低使其水平降低了一半(图1B)。STX6敲低在对照和Baf处理条件下,均未影响细胞组分和EV组分中的TSG101水平(图1C)。然而,在对照处理条件下,STX6敲低增加了细胞组分中的LC3-II水平,但在Baf处理条件下则无此效应。STX6敲低在Baf处理条件下还增加了EV组分中的LC3-II水平(图1D)。这些结果表明,即使敲低效率并不显著,用于通过免疫印迹检测EV中LC3-II的方法也具有足够的灵敏度。此外,这些结果提示,STX6敲低可增加细胞内自噬小体数量,并在Baf处理条件下增强自噬小体相关囊泡的胞外释放。
为了进一步研究敲低STX6是否影响细胞内自噬小体和自噬溶酶体的数量,使用自噬小体标志物mCherry-LC3和溶酶体标志物LAMP1-GFP对自噬小体和溶酶体进行可视化观察。共聚焦活细胞成像显示,在表达LAMP1-GFP和mCherry-LC3的HeLa细胞中存在GFP和mCherry阳性囊泡(图2A)。自噬溶酶体被鉴定为GFP和mCherry双阳性囊泡,而自噬小体被鉴定为GFP阴性、mCherry阳性囊泡。STX6敲低在对照处理条件下增加了自噬小体和自噬溶酶体的数量(图2B、C)。然而,在Baf处理条件下,STX6敲低对自噬小体和自噬溶酶体数量无显著影响(图2B、C)。
为了确定由于STX6基因敲低导致的细胞内自噬体数量增加是否源于自噬体形成的增强,我们通过检测omegasome(自噬体形成所必需的过程)标志物GFP-ATG13的信号强度来评估omegasome的形成。共聚焦活细胞成像提供了GFP-ATG13的整合图像,表明omegasome的形成(图3A)。STX6基因敲低降低了GFP-ATG13的信号强度(经EZR19中双因素方差分析确定,P = 0.023)。在载体处理条件下,STX6基因敲低对GFP-ATG13信号强度无显著影响;但在Baf处理条件下,该信号显著降低(图3B)。综上所述,这些结果表明,STX6基因敲低增加了LC3-II阳性囊泡的释放,从而导致自噬体相关囊泡的积累。

图1:在对照或STX6 siRNA转染的HeLa细胞中,经溶剂或Baf处理后,细胞、P1和P2组分的免疫印迹结果。 HeLa细胞在转染对照或 STX6 siRNA。细胞P1(20,000 × g 沉淀)和 P2(110,000 × g 沉淀)组分被分离出来。A各组分的代表性免疫印迹图像,显示 STX6、TSG101、LC3 和 PCNA。B-D) 密度测定分析用于(BSTX6,(C) TSG101,以及(D) 通过免疫印迹图像对 LC3-II 进行分析。信号强度相对于对照组或 STX6 经siRNA转染并用溶剂或Baf处理的细胞。柱状图表示均值±标准误(N = 3)。*表示P < 0.05,**表示P < 0.01,***表示P < 0.001。 < 0.05,通过双尾非配对检验 t-test 在 Excel 中进行。缩写:STX6 = syntaxin 6;Baf = bafilomycin A1;DMSO = 二甲基亚砜 TSG101 = 肿瘤易感基因101;LC3 = 微管相关蛋白1A/1B轻链3B;PCNA = 增殖细胞核抗原;S.E.M. = 均值的标准误 请点击此处以查看此图的放大版本。

图2:在载体处理和Baf处理条件下,转染对照或STX6 siRNA的共表达Lamp1-GFP和mCherry-LC3的HeLa细胞的共聚焦图像分析。(A) 稳定表达LAMP1-GFP和mCherry-LC3的HeLa细胞转染对照或STX6 siRNA 48小时,随后用DMSO或400 nM Baf处理4小时。比例尺 = 20 µm。(B,C) 使用Fiji软件对(B)自噬体(LAMP1-GFP阴性、mCherry-LC3阳性点状结构)和(C)自噬溶酶体(LAMP1-GFP和mCherry-LC3双阳性点状结构)进行定量分析。柱状图数据以均值±标准误(S.E.M.)表示(N = 3)。*表示P < 0.05,基于Excel中的双尾非配对t-检验。缩写:Lamp1 = 溶酶体相关膜蛋白1;LC3 = 微管相关蛋白1A/1B轻链3B;STX6 = 胞吐复合蛋白6;Baf = 溴莫匹林A1;GFP = 绿色荧光蛋白;S.E.M. = 均值标准误。请点击此处查看该图的放大版本。
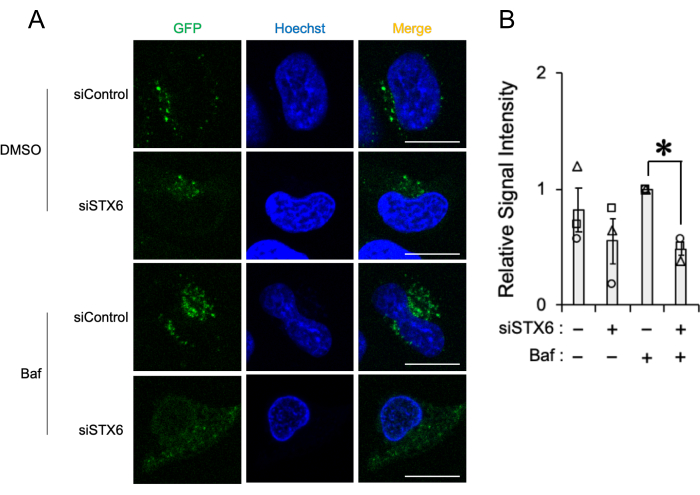
图3:表达GFP-ATG13的HeLa细胞经对照或STX6 siRNA转染后,在溶剂处理或Baf处理条件下的共聚焦成像。(A)HeLa细胞先转染对照或STX6 siRNA,随后转染pEGFP-C1-hAtg13,并用DMSO或400 nM Baf处理4小时。比例尺 = 20 µm。(B)通过将各条件下的信号强度归一化至经Baf处理的对照siRNA转染细胞的信号强度来确定相对信号强度。柱状图显示了均值 ± S.E.M.(N = 3)。* 表示使用Excel进行双尾非配对t检验时P < 0.05。缩写:hAtg13 = 人自噬相关基因13;STX6 = syntaxin 6;Baf = 巴佛洛霉素A1;DMSO = 二甲基亚砜;S.E.M. = 标准误。请点击此处查看该图的放大版本。
补充图 S1:转染对照 siRNA 并经 Baf 处理的 HeLa 细胞的全细胞、P1 和 P2 组分的免疫印迹分析。 HeLa 细胞转染对照 siRNA 后,用 100 nM Baf 处理 24 小时。随后制备各组分:全细胞组分、P1(20,000 × g 沉淀)和 P2(110,000 × g 沉淀)。代表性免疫印迹图像显示 ULK1 和 PCNA 在各组分中的水平,用于比较。缩写:Baf = bafilomycin A1;ULK1 = unc-51 like autophagy activating kinase 1;PCNA = proliferating cell nuclear antigen。 请点击此处下载该文件。
讨论
免疫印迹研究揭示了细胞组分、富含微囊泡的P1细胞外囊泡(EV)组分以及富含外泌体的P2 EV组分中LC3-II和TSG101的水平。活细胞成像用于观察自噬体、自噬溶酶体和omegasomes,以探究STX6基因敲低是否影响自噬过程。这些综合结果表明,STX6基因敲低会影响LC3-II阳性EV的释放,可能与自噬通路的失调有关。该方法的一个关键优势在于能够区分来源于不同途径的大、小EV。利用针对微囊泡、外泌体或高尔基体的特异性标志物进行流式细胞术分析,可进一步阐明STX6基因敲低如何影响LC3-II阳性囊泡的释放。
然而,免疫印迹研究的一个局限性在于,尚不清楚在Baf处理条件下,STX6 敲低后EV组分中LC3-II水平的升高是由于释放的LC3-II阳性囊泡数量增加,还是每个EV中LC3-II水平升高所致。为了区分这两种可能性,可通过纳米颗粒追踪分析或流式细胞术分析对囊泡进行计数,以确定LC3-II阳性囊泡的数量是否增加,或每个囊泡中的LC3-II水平是否升高。
该实验方案中的一个关键步骤是对培养基进行分级分离,以制备细胞外囊泡(EV)组分。EVs 在离心管中表现为微小的沉淀物。为了制备可比的 EV 组分,离心后必须仔细转移或弃去上清液,以避免稀释 EV 沉淀物中的蛋白质浓度。为检测细胞组分对 EV 组分的污染情况,本研究比较了细胞质蛋白 unc-51 样自噬激活激酶 1(ULK1)和核蛋白 PCNA 在不同组分间的表达水平(补充图 S1)。细胞组分中的蛋白质浓度通常反映细胞数量,但细胞内蛋白质浓度会受到细胞周期阶段20或蛋白质稳态失衡21的影响。自噬对于维持蛋白质稳态至关重要22。通过 STX6 沉默或 Baf 处理导致的自噬失调可能会影响蛋白质浓度,且该影响与细胞数量无关。
通过siRNA转染实现STX6基因的敲低,通过DNA转染实现GFP-ATG13的过表达。转染效率受细胞类型、密度和数量的影响。siRNA序列的有效匹配也可能影响敲低效率。当转染效率较低时,需进行相应调整。
目前的结果表明,在巴佛洛霉素(Baf)处理条件下,STX6 敲低增加了EV组分中自噬小体标志物LC3-II的水平,但不影响TSG101的水平。这提示当自噬小体-溶酶体融合受到抑制时,STX6抑制来源于自噬小体的囊泡释放,但不影响来源于多泡体(MVBs)的囊泡释放。
STX6 敲低在生长条件下也增加了细胞内 LC3-II 水平,表明 STX6 调控自噬过程。事实上,STX6 敲低增加了自噬小体和自噬溶酶体的数量,但并未促进omegasome的形成。自噬溶酶体的成熟可引发自噬性溶酶体重建23。STX6 可能介导了自噬溶酶体的成熟过程,其功能缺失可能导致未成熟自噬溶酶体数量增加,从而因抑制自噬性溶酶体重建而扰乱自噬小体与溶酶体的融合。
Baf处理增加了EV组分中的STX6水平,即使其表达被下调。先前的研究表明,当溶酶体功能受到抑制时,与自噬体相关的囊泡会以EV形式释放13,14。已知STX6定位于与自噬体相关的囊泡,例如含有A族链球菌(GAS)的类似自噬体的空泡24。因此,当自噬体-溶酶体融合受到抑制时,STX6可能定位于作为EV释放的自噬体相关囊泡上。
TDP-43 病理的扩散与肌萎缩侧索硬化症(ALS)和TDP-43蛋白病相关的额颞叶变性(FTLD-TDP)的进展密切相关3。尽管目前尚不清楚 TDP-43 病理如何在脑和脊髓中扩散,但细胞外囊泡(EV)通路可能介导了这一过程。先前的研究表明,自噬-溶酶体通路的失调会导致含有 TDP-43 的 LC3-II 阳性细胞外囊泡的释放13。本研究提示,当自噬体-溶酶体融合受到抑制时,STX6 在调控细胞外囊泡释放中发挥一定作用。通过免疫印迹法检测细胞及细胞外囊泡组分中 LC3-II 水平的方法,将在未来的研究中具有重要参考价值。
披露
作者声明,他们对本文内容不存在利益冲突。
致谢
本工作获得了日本科学技术振兴机构(JSPS)KAKENHI [资助号 23K06837](日本东京)和武田科学基金会(日本大阪)向 Y.T. 提供的资金支持。作者感谢英国剑桥大学医学研究所 David C. Rubinsztein 博士提供 HeLa 细胞。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.25 % 胰蛋白酶 EDTA | Fujifilm Wako | 201-16945 | |
| 10 cm 培养皿 | Thermo Fisher Scientific | 150464 | |
| 15 mL 离心管 | Thermo Fisher Scientific | 339650 | |
| 200 μL 移液枪头 | Nippon Genetics | FG-301 | 移液 |
| 2-巯基乙醇 | Nacalai Tesque | 21417-52 | 用于 样品缓冲液的试剂 |
| 3,3'-二氨基联苯胺四盐酸盐 | Nacalai Tesque | 11009-41 | 用于 DAB 溶液的试剂 |
| 3.5 cm 培养皿 | Thermo Fisher Scientific | 150460 | |
| 6 cm 培养皿 | TrueLine | TR4001 | |
| 铝块恒温浴(干式恒温仪) | EYELA | 273860 | |
| 抽滤器 | SANSYO | SAP-102 | 吸取溶液 |
| Avanti JXN-30 | Beckman Coulter | B34193 | |
| 巴佛洛霉素 A1 | Adipogen | BVT-0252 | |
| 生物素标记的山羊抗兔 IgG 抗体 | Vector Laboratories | BA-1000 | 免疫印迹二抗 |
| 生物素标记的马抗小鼠 IgG 抗体 | Vector Laboratories | BA-2000 | 免疫印迹二抗 |
| Blocking One | Nacalai Tesque | 03953-95 | 用于免疫印迹的封闭剂 |
| 溴酚蓝 | Nacalai Tesque | 05808-61 | 用于 样品缓冲液的试剂 |
| 小牛血清 | cytiva | SH30073.03 | |
| CanoScan LiDE 220 | Canon | CSLIDE220 | 扫描仪 |
| Centrifuge 5702 R | eppendolf | 5703000039 | |
| 双腔计数板 | Bio-Rad | 1450015J | 细胞计数 |
| Digital Sonifier 450 | BRANSON | ||
| 二甲基亚砜 | nacalai tasque | 09659-14 | 溶剂 |
| DMEM 高糖培养基 | Nacalai Tesque | 08458-45 | 培养基 |
| 无酚红 DMEM 培养基 | Nacalai Tesque | 08489-45 | 培养基 |
| EGTA | Dojindo | 348-01311 | 用于 A68 溶液的试剂 |
| Excel | Microsoft | version 16.16.27 | 统计分析 |
| EZR | Reference No. 24 | version 1.68 | 统计分析 |
| FBS | Sigma | 173012 | 培养基 |
| Fiji | NIH | 图像分析工具 | |
| 甘油 | Nacalai Tesque | 09886-05 | 用于 样品缓冲液的试剂 |
| Hoechst33342 | Dojindo | H342 | |
| 过氧化氢 | Fujifilm Wako | 080-0186 | 用于 DAB 溶液的试剂 |
| Kimwipe S-200 | NIPPON PAPER CRECIA | 62011 | 清洁擦拭纸 |
| 低吸附离心管 | Nippon Genetics | FG-MCT015CLB | siRNA 和 DNA 转染 |
| LSM780 共聚焦激光显微镜 | Carl Zeiss | ||
| 单克隆小鼠抗 LC3 抗体 | MBL | M186-3 | 免疫印迹一抗 |
| 氯化镍(II)六水合物 | Fujifilm Wako | 149-01041 | 用于 DAB 溶液的试剂 |
| N-月桂酰肌氨酸钠盐 | Nacalai Tesque | 20117-12 | |
| Optima XE-90 超速离心机 | Beckman Coulter | A94471 | |
| Opti-MEM I 减血清培养基 | Thermo Fisher Scientific | 31985-070 | siRNA 和 DNA 转染 |
| pEGFP-C1-hAtg13 | Addgene | 22875 | |
| 青霉素/链霉素 | Nacalai Tesque | 26253-84 | 培养基 |
| Pierce BCA 蛋白检测试剂盒 | Thermo Fisher Scientific | 23225 | |
| 多克隆兔抗 PCNA 抗体 | BioAcademia | 70-080 | 免疫印迹一抗 |
| 多克隆兔抗 syntaxin 6 抗体 | ProteinTech | 10841-1-AP | 免疫印迹一抗 |
| 多克隆兔抗 TSG101 抗体 | ProteinTech | 28283-1-AP | 免疫印迹一抗 |
| 多克隆兔抗 ULK1 抗体 | ProteinTech | 20986-1-AP | 免疫印迹一抗 |
| 聚偏二氟乙烯膜 | Milliore | IPVH00010 | 用于免疫印迹的试剂 |
| R | R development core team | version 4.4.1 | 统计分析 |
| RNAiMAX | Thermo Fisher Scientific | 13778 | siRNA 转染试剂 |
| siRNA STX6 | Thermo Fisher Scientific | HSS115604 | 用于转染的 siRNA |
| 氯化钠 | Nacalai Tesque | 31320-05 | 用于 Tris 缓冲液和 A68 溶液的试剂 |
| 十二烷基硫酸钠 | Fujifilm Wako | 192-13981 | 用于 样品缓冲液的试剂 |
| SPARK 微孔板读板仪 | TECAN | ||
| Stealth RNAi 阴性对照双链体,Med GC | Thermo Fisher Scientific | 12935300 | siRNA 转染 |
| 蔗糖 | Fujifilm Wako | 193-00025 | 用于 A68 溶液的试剂 |
| TC20 自动细胞计数仪(带热敏打印机) | Bio-Rad | 1450109J1 | 细胞计数 |
| 恒温仪 | TOKYO RIKAKIKAI | MG-3100 | 孵育 |
| TransIT-293 | Mirus Bio | MIR 2700 | DNA 转染试剂 |
| TransIT-LT1 | Mirus Bio | MIR2300 | DNA 转染试剂 |
| 三羟甲基氨基甲烷 | Nacalai Tesque | 35406-75 | 用于 Tris 缓冲液、样品缓冲液和 A68 溶液的试剂 |
| 0.40% 台盼蓝染液 | Bio-Rad | 1450021 | 细胞计数 |
| 超透明开口离心管,16 x 96 mm | Beckman Coulter | 361706 | 用于收集 P1 EV 组分 |
| 超透明离心管,14 x 89 mm | Beckman Coulter | 344059 | 用于收集 P2 EV 组分 |
| Vectastain ABC 标准试剂盒 | Vector Laboratories | PK-4000 | 免疫印迹 |
| 洗瓶 | As One | 1-4640-02 | 洗涤膜 |
| μ-Slide 8 孔高壁板 | ibidi | 80806 |
参考文献
- Tanaka, Y., Hasegawa, M. Profilin 1 mutants form aggregates that induce accumulation of prion-like tdp-43. Prion. 10 (4), 283-289 (2016).
- Mehta, P. R., Brown, A. L., Ward, M. E., Fratta, P. The era of cryptic exons: Implications for als-ftd. Mol Neurodegener. 18 (1), 16(2023).
- Kawakami, I., Arai, T., Hasegawa, M. The basis of clinicopathological heterogeneity in tdp-43 proteinopathy. Acta Neuropathol. 138 (5), 751-770 (2019).
- Chatterjee, M., et al. Plasma extracellular vesicle tau and tdp-43 as diagnostic biomarkers in ftd and als. Nat Med. 30 (6), 1771-1783 (2024).
- Kasai, T., et al. Combined use of csf nfl and csf tdp-43 improves diagnostic performance in als. Ann Clin Transl Neurol. 6 (12), 2489-2502 (2019).
- Iguchi, Y., et al. Exosome secretion is a key pathway for clearance of pathological tdp-43. Brain. 139 (Pt 12), 3187-3201 (2016).
- Ding, X., et al. Exposure to als-ftd-csf generates tdp-43 aggregates in glioblastoma cells through exosomes and tnts-like structure. Oncotarget. 6 (27), 24178-24191 (2015).
- Mizushima, N., Levine, B. Autophagy in human diseases. N Engl J Med. 383 (16), 1564-1576 (2020).
- Sasaki, S. Autophagy in spinal cord motor neurons in sporadic amyotrophic lateral sclerosis. J Neuropathol Exp Neurol. 70 (5), 349-359 (2011).
- Ling, S. C., Polymenidou, M., Cleveland, D. W. Converging mechanisms in als and ftd: Disrupted rna and protein homeostasis. Neuron. 79 (3), 416-438 (2013).
- Nguyen, D. K. H., Thombre, R., Wang, J. Autophagy as a common pathway in amyotrophic lateral sclerosis. Neurosci Lett. 697, 34-48 (2019).
- Tanaka, Y., et al. Possible involvement of lysosomal dysfunction in pathological changes of the brain in aged progranulin-deficient mice. Acta Neuropathol Commun. 2, 78(2014).
- Tanaka, Y., et al. Dysregulation of the progranulin-driven autophagy-lysosomal pathway mediates secretion of the nuclear protein tdp-43. J Biol Chem. 299 (11), 105272(2023).
- Tanaka, Y., Ito, S., Suzuki, G. TDP-43 secretion via extracellular vesicles is regulated by macroautophagy. Autophagy Rep. 3 (1), (2024).
- Ratajczak, M., Ratajczak, J. Extracellular microvesicles/exosomes: discovery, disbelief, acceptance, and the future. Leukemia. 34 (12), 3126-3135 (2020).
- Tanaka, Y., Kozuma, L., Hino, H., Takeya, K., Eto, M. Abemaciclib and vacuolin-1 decrease aggregate-prone tdp-43 accumulation by accelerating autophagic flux. Biochem Biophys Rep. 38, 101705(2024).
- Dingjan, I., et al. Endosomal and phagosomal snares. Physiol Rev. 98 (3), 1465-1492 (2018).
- Tanaka, Y., et al. Progranulin regulates lysosomal function and biogenesis through acidification of lysosomes. Hum Mol Genet. 26 (5), 969-988 (2017).
- Kanda, Y. Investigation of the freely available easy-to-use software 'EZR' for medical statistics. Bone Marrow Transpl. 48 (3), 452-458 (2013).
- Cookson, N. A., Cookson, S. W., Tsimring, L. S., Hasty, J. Cell cycle-dependent variations in protein concentration. Nucleic Acids Res. 38 (8), 2676-2681 (2010).
- Plate, L., et al. Small molecule proteostasis regulators that reprogram the ER to reduce extracellular protein aggregation. eLife. 5, e15550(2016).
- Mizushima, N. The role of mammalian autophagy in protein metabolism. Proc Jpn Acad Ser B Phys Biol Sci. 83 (2), 39-46 (2007).
- Nanayakkara, R., et al. Autophagic lysosome reformation in health and disease. Autophagy. 19 (5), 1378-1395 (2023).
- Nozawa, T., Minowa-Nozawa, A., Aikawa, C., Nakagawa, I. The STX6-VTI1B-VAMP3 complex facilitates xenophagy by regulating the fusion between recycling endosomes and autophagosomes. Autophagy. 13 (1), 57-69 (2017).
重印与许可
