本方案描述了一种高效的甘蓝叶肉原生质体系统。通过测试多种缺氧处理条件,该系统表现出低氧响应基因的高水平激活,有助于研究植物对淹水胁迫耐受性的遗传与分子机制 十字花科 蔬菜
本文内容
摘要
摘要
随着气候变化导致强降雨增多,白菜作为一种重要作物 十字花科 蔬菜,由于洪水引发的低氧胁迫,面临严重的产量损失。为揭示甘蓝类蔬菜耐涝性的分子机制,亟需建立一种多功能的遗传功能研究平台,以克服甘蓝类植物难以转化的特性。本研究建立了一种甘蓝原生质体瞬时表达系统及相应的原生质体低氧诱导方案。该方案通过优化酶解条件,实现了从甘蓝叶片中高效分离高产量、高完整性的原生质体,转染效率超过40%。为减轻处理前可能存在的低氧影响,使用氧气气体对W5溶液进行鼓泡,以提高溶解氧水平。测试了多种调节氧浓度的化学试剂及生理学除氧处理方法,包括EC-Oxyrase、OxyFluor、亚硫酸钠和氧吸收剂包。双荧光素酶检测结果显示,厌氧呼吸响应基因的启动子 BoADH1 和 BoSUS1L 在低氧处理后,卷心菜原生质体中的基因被激活,其中以氧气吸收剂处理后的诱导水平最高。综上所述,卷心菜原生质体瞬时表达系统结合低氧处理,展现出一种高效且便捷的研究平台,可用于卷心菜低氧响应相关基因功能及分子机制的研究。
引言
全球气候变化加剧了洪涝灾害,使其成为全球范围内日益严峻的问题。近几十年来,洪涝事件的发生频率呈上升趋势,导致农作物大量减产1,2。甘蓝(Brassica oleracea var. capitata L.)是一种具有重要全球意义的蔬菜作物,易受强降雨不利影响,因此有必要培育耐涝甘蓝品种,以确保极端天气条件下生产的可持续性。因此,深入了解甘蓝响应洪涝胁迫的分子机制对于应对这一挑战至关重要。
为了理解植物在淹水条件下基因调控的机制,转基因品系被广泛用于基因功能研究。然而,该方法受限于高昂的成本、耗时的转化与继代培养过程,以及许多作物物种中较低的转化效率,因此需要开发替代性方法。基于原生质体的瞬时表达系统作为一种灵活且高效的替代方案,已在植物分子研究中得到广泛应用。这些系统有助于研究启动子活性、响应环境信号的信号通路、蛋白质-蛋白质或蛋白质-DNA相互作用,以及蛋白质的亚细胞定位3。原生质体瞬时表达系统的建立不仅已在模式植物中报道4,5,也在甘蔗6、香石竹7、Phalaenopsis 兰花8和茄子9等具有重要经济价值的作物中实现。此外,这些系统已在木本植物中成功应用,包括Camellia oleifera10和Populus trichocarpa11。然而,将原生质体系统应用于研究淹水诱导低氧胁迫下叶菜类蔬菜的实验方案仍较为有限。因此,本研究建立了一套整合性实验方案,旨在为希望利用甘蓝原生质体瞬时表达系统研究低氧响应的研究人员提供参考。
为了在细胞水平上实现淹没诱导的低氧响应,以往的研究已采用多种耗氧方法来模拟低氧环境。这些方法包括使用EC-Oxyrase、OxyFluor、亚硫酸钠以及耗氧袋。EC-Oxyrase通常用于人源细胞系12和拟南芥(Arabidopsis)原生质体的厌氧处理13。OxyFluor被发现可有效减轻活性氧在活细胞荧光成像过程中引起的光漂白现象14,15。亚硫酸钠已被用于线虫的厌氧处理16,最近还与染色质免疫共沉淀(ChIP)实验17等技术结合,应用于水稻原生质体。主要用于厌氧细菌培养的氧气吸收包18,也被证明可在厌氧条件下有效诱导玉米原生质体中ZmPORB1启动子的激活19。
本研究旨在建立一种高效的甘蓝原生质体分离与瞬时表达技术流程。随后,通过双荧光素酶报告基因检测系统评估厌氧响应基因启动子活性,以检验多种氧气调控处理的效果。本研究所开发的实验方案预计将为未来芸薹属(Brassica)系统中与淹水或低氧胁迫相关的研究提供重要支持。
方案
本研究使用了两种 commercially available 的卷心菜(B. oleracea var. capitata)品种:‘Fuyudori’ 和 ‘228’。图1 展示了实验方案的工作流程示意图。本研究中所用试剂和设备的详细信息列于材料表中。
1. 甘蓝幼苗的准备
- 使用商业植物基质将‘Fuyudori’和‘228’白菜种子播种于48孔穴盘(长49 cm × 宽28 cm × 高5 cm)的圆形方孔(直径4.5 cm × 深4.5 cm)中。将种子埋入培养基质中,深度约为1 cm。
- 在22 °C条件下,于人工气候室中培养白菜幼苗,光照周期为16小时光照/8小时黑暗。光照期间维持光照强度为100 µmol m-2·s-1(使用白色荧光灯管)。
- 生长2–3周后,选取处于两叶期的白菜幼苗用于后续的叶肉原生质体分离。
注意:建议选用两叶期的白菜幼苗,即第二片真叶已完全展开,而第三片真叶尚未展开且长度短于1 cm(图2A)。为使白菜幼苗的发育阶段保持同步,由于‘Fuyudori’与‘228’的生长速度不同,需提前约2天播种‘Fuyudori’种子。此调整可确保在目标发育阶段时白菜植株的生长和成熟程度一致。
2. 甘蓝原生质体的分离
- 配制12.5 mL酶溶液(表1每次原生质体分离前)
- 预先将含有10 mM MES(pH 5.7)和0.6 M甘露醇的溶液加热至55 °C。加入1.5% Cellulase R10和0.75% Macerozyme R10后,继续在55 °C下保温10分钟。
- 待酶溶液冷却至室温(25 °C)后,加入 10 mM CaCl₂2 和0.1%牛血清白蛋白(BSA)。使用0.22 µm注射器滤器将配制好的酶溶液过滤除菌至9 cm培养皿中。
注意:预热溶液可提高酶的溶解度并灭活蛋白酶。不同类型的纤维素酶消化效果存在差异。Cellulase R10 与 Macerozyme R10 的组合适用于甘蓝原生质体的分离。
- 从5到8株新展开的甘蓝幼苗上采集第二对真叶,用锋利的剃须刀片将其切成0.5–1.0 mm宽的条状。立即将叶片条转移至 freshly prepared enzyme solution 中。
注意:选择处于合适生长阶段的健康且指定部位的白菜叶片至关重要。白菜幼苗在两叶期时,其第二片新展开的真叶可获得最高的原生质体分离效率。不建议使用过熟的植株、子叶或衰老叶片进行原生质体分离。将5至12片充分展开的真叶置于12.5 mL酶解液中,可成功制备白菜原生质体。原生质体分离所需的叶片数量取决于实验所需原生质体的数量。通常,从5至8片叶片获得的原生质体足以满足后续实验操作。 - 暗处真空浸润30分钟后(图2B), 使白菜叶片条保持浸没在酶溶液中(图2C在室温避光条件下继续孵育4-16小时。
注意:不同甘蓝品种的酶解时间可能存在差异,应根据具体基因型进行优化。例如,由于‘Fuyudori’的叶片较厚,其消化时间(16 h)比‘228’(4 h)更长。 - 将含有原生质体的溶液与等体积的W5溶液混合稀释,W5溶液包含2 mM MES(pH 5.7)、154 mM NaCl、125 mM CaCl₂2,5 mM KCl 和 5 mM 葡萄糖(见 表1 以终止酶消化反应。
- 轻轻摇晃或使用轨道摇床释放原生质体悬液。将细胞悬液通过70 µm细胞筛过滤至50 mL锥形管中。
注意:分离得到的原生质体能够通过70 µm细胞筛网,而未消化的植物碎片则被筛网截留并从悬浮液中去除。细胞筛网可重复使用,清洗后可保存在75%乙醇中,但在使用前必须用W5溶液充分冲洗,以彻底去除残留的乙醇。 - 离心原生质体溶液,150 x g 4 °C下离心2分钟,然后小心吸除上清液。 沿锥形管管壁以约1 mL·s⁻¹的流速加入10 mL W5溶液,轻柔洗涤沉淀的原生质体-1. 以 150 x g 离心试管 g 4 °C下离心2分钟,重复此洗涤步骤一次,以确保彻底去除酶溶液。
- 将原生质体重悬于W5溶液中,置于冰上孵育30分钟。冰上孵育结束后,用移液器每次吸取1 mL上清液,直至完全去除上清。
- 将原生质体重悬于预冷的 MMG 溶液中,该溶液由 4 mM MES(pH 5.7)、0.4 M 甘露醇和 15 mM MgCl 组成2 (参见 表1 用于制备。
- 使用血细胞计数板测定原生质体浓度,并将最终浓度调整至 4 x 10⁵ 原生质体·mL-1 使用 MMG 溶液。
3. 原生质体转染
- 混合总体积为10 µL的质粒(5-10 µg)(补充文件 1) 加入 100 µL 原生质体(4 x 10⁴ 原生质体)置于冰上放置10分钟。
注意:对于转染级质粒纯化,采用 commercially available plasmid kit(商品化质粒提取试剂盒),按照制造商说明书操作。大约 4 x 10⁴ 原生质体通常用于双荧光素酶报告基因检测。对于较大规模的实验,可获得更大量的原生质体用于转染。具体而言,约 2 x 10⁵ 转染了10 µg质粒的原生质体表现出经过验证的转染效率,范围为30%至40%。 - 加入等体积(110 µL)新配制的PEG溶液(参见 表1 用于制备)含40%聚乙二醇4000(PEG4000)、0.1 M CaCl₂的溶液2,将0.2 M的甘露醇加入原生质体溶液中并轻轻混匀。
- 将原生质体混合物在室温避光条件下孵育10分钟,然后加入440 µL W5溶液以终止反应。
- 将转染的原生质体在150 x g 4 °C下离心2分钟,将沉淀重悬于750 µL富氧W5溶液中。将重悬的原生质体转移至预先用1% BSA包被的6孔组织培养板中。
注意:用于细胞孵育的 W5 溶液必须 使用氧气浓缩器通入氧气 (约90%氧气)连接至曝气石曝气5分钟(图2D)。经过此氧化过程后,最终 W5 溶液中的溶解氧浓度从 7.84 mg·L-1 升高1 ± 0.05 mg·L-1 至 29.18 mg·L-1 ± 0.43 mg·L-1,通过溶解氧测定 氧浓度计。重悬转染后原生质体所用W5溶液的体积取决于所使用的组织培养板类型。对于12孔或24孔细胞培养板,建议减少W5溶液的体积,以减轻因孔较深导致孵育过程中产生的缺氧应激。进行BSA包被时,每孔加入1 mL 1% BSA溶液,静置10 s使孔壁包被。随后弃去各孔中的BSA溶液,并重新加入W5溶液。该操作旨在利用BSA形成临时的非黏附表面,有效防止原生质体在后续实验步骤中黏附于培养板的塑料表面。
4. 卷心菜原生质体的低氧处理
- 在原生质体转染后立即进行化学或物理诱导的低氧处理。
注意:建议在原生质体转染后立即实施低氧处理。原生质体长时间培养可能会减弱后续的低氧响应。- 对白菜原生质体进行化学诱导低氧时,将OxyFluor、EC-Oxyrase和亚硫酸钠加入W5原生质体溶液中。
注意:在两种测试的白菜品种中,使用0.6 units·mL-1 EC-Oxyrase、0.6 units·mL-1 OxyFluor和1 g·mL-1亚硫酸钠的W5溶液条件可有效诱导BoADH1和BoSUS1L启动子 (图3A),同时对原生质体完整性造成的损伤较小。 - 对于耗氧袋诱导的低氧处理,将两个氧气吸收包放入3.5 L的厌氧罐中以建立低氧环境。
- 对白菜原生质体进行化学诱导低氧时,将OxyFluor、EC-Oxyrase和亚硫酸钠加入W5原生质体溶液中。
- 在4 °C条件下,以150 x g离心2 min收集经低氧处理的原生质体。用液氮速冻收集的原生质体,并储存在-80 °C冰箱中以备后续检测。
5. 双荧光素酶检测
- 按照生产商说明书进行双荧光素酶报告基因检测,仅作轻微修改。
- 用 50 µL 1× 被动裂解缓冲液重悬白菜原生质体,并涡旋振荡 10 秒。
- 将破碎的原生质体在冰上孵育 10 分钟,然后在 4 °C 下以 10,000 × g 离心 10 分钟,收集上清液。
- 向微孔板的每个孔中加入 20 µL 细胞裂解物。向孔中加入 100 µL 荧光素酶检测试剂 II,使用微孔板读数仪测定萤火虫荧光素酶活性。
- 向每个孔中加入 100 µL 商业化的检测试剂,使用微孔板读数仪测定海肾荧光素酶活性。
结果
本研究成功开发了一种利用卷心菜原生质体的瞬时表达系统(参见 图1 用于工作流程)。从生长2至3周、大小适宜的甘蓝真叶中分离原生质体(图2A)从商品甘蓝品种‘Fuyudori’和‘228’中利用纤维素酶/离析酶消化及暗处真空浸润法获取图2B, C)。为了减轻原生质体在孵育期间因浸没而经历的缺氧条件,使用连接至氧气机的气石曝气装置对 W5 溶液进行氧合(图2D)。该过程使 W5 溶液中的溶解氧浓度显著升高,从 7.84 mg·L-1 ± 0.05 mg·L-1 至 29.18 mg·L-1 ± 0.43 mg·L-1 氧气鼓泡5分钟后。原生质体分离完成后,得率为1.04 × 10⁷ 对于“Fuyudori”为 4.00 x 10⁶ 原生质体·g−1 '228' 经过一夜消化后的鲜重(图 2E)。随后,利用GFP作为报告基因评估PEG介导转染方法的转化效率,结果表明,在两个甘蓝品种中,原生质体转染效率均超过40%(图 2F),从而证实了该系统的可行性。
此外,将白菜厌氧呼吸响应基因的启动子构建体 BoADH1p::Luc 和 BoSUS1Lp::Luc 载体(图3A)导入白菜原生质体中作为报告系统,以评估多种处理的低氧诱导效果。同时,在该瞬时表达体系中应用了多种调节氧气的处理方式。结果显示,除亚硫酸钠外,所有耗氧处理均成功在白菜原生质体中诱导出低氧响应(图3B)。具体而言,经EC-Oxyrase和OxyFluor处理后,BoADH1 启动子活性分别比对照组升高约2.6倍和3.2倍,而使用氧气吸收袋处理时,活性显著升高超过7.0倍(图3B)。类似地,BoSUS1L 启动子活性在EC-Oxyrase和OxyFluor处理后分别上升约1.7倍和1.8倍,而氧气吸收袋处理则诱导其活性大幅增加超过5.6倍(图3B)。这些结果表明,在该白菜原生质体实验体系中,氧气吸收袋在建立低氧环境方面表现出更优的效能。

图1:原生质体分离流程的图示。 本图展示了从卷心菜叶片组织中分离原生质体的逐步操作过程。该流程以可视化方式呈现,以帮助清晰理解实验步骤。请点击此处查看该图的放大版本。

图2:甘蓝叶片组织中原生质体的分离。(A)展示商用甘蓝品种‘Fuyudori’和‘228’在推荐生长阶段的外观。选取两叶期甘蓝的第二片新展开的完全真叶(箭头所示)用于原生质体分离。比例尺:2 cm。(B)使用真空泵和干燥器对甘蓝叶条进行真空渗透处理,酶解消化前需进行30分钟的渗透。(C)展示甘蓝叶条在酶解消化过程中的状态。叶片组织完全消化共需4–16小时。比例尺:3 cm。(D)照片显示使用连接至气石的氧气浓缩器以提高W5溶液中的溶解氧浓度。比例尺:5 cm。(E)从‘Fuyudori’和‘228’两种甘蓝中,每克鲜重(FW)均获得超过4.00 × 10⁶个叶肉原生质体,并在显微镜下观察。比例尺:200 µm。(F)利用组成型表达的GFP报告基因,显示两种甘蓝基因型原生质体的转染效率均高于40%。比例尺:200 µm。 请点击此处查看该图的放大版本。
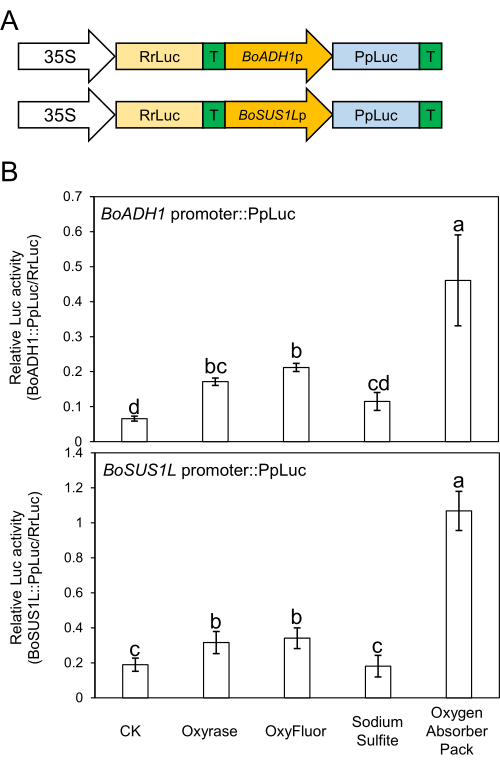
图 3:缺氧条件下大白菜原生质体的低氧响应。(A)使用低氧响应基因构建体 BoADH1 和 BoSUS1L 启动子作为报告基因,以评估‘Fuyudori’大白菜原生质体的低氧响应。(B)将总计 5 µg 的报告质粒转染至‘Fuyudori’大白菜原生质体中,转染前原生质体在通氧的 W5 溶液中孵育,随后暴露于低氧处理 4 小时。通过向 W5 溶液中添加 EC-oxyrase(0.6 units·mL-1)、OxyFluor(0.6 units·mL-1)和亚硫酸钠(1 g·mL-1)以在孵育期间降低氧气水平。氧气吸收剂包装处理则是将两个氧气吸收袋置于 3.5 L 的厌氧罐中进行。“CK”组代表未进行任何低氧处理的对照组。处理结束后,收集原生质体进行双荧光素酶检测。每个数值表示 n = 4 的平均值 ± 标准差(SD)。不同字母表示基于单因素方差分析(ANOVA)及 LSD 事后检验的显著差异(P < 0.05)。请点击此处查看该图的放大版本。
表1:酶解液、W5溶液和MMG溶液的配制。 请点击此处下载该表格。
补充文件1:原生质体转染所用质粒的详细信息。 请点击此处下载该文件。
讨论
本方案介绍了一种从两种商用甘蓝品种中分离原生质体的简化方法。该方法的有效性主要通过两个关键的质量控制参数进行评估:有活力原生质体的产量和原生质体转染效率。采用本方案后,原生质体产量超过4.00 × 10⁶ 原生质体·克−1·两种甘蓝品种的叶肉组织鲜重(FW)图 2E,F)。该产量与其他物种中报道的结果相当,包括茄子、康乃馨、甘蔗和 油茶(Camellia oleifera),其中原生质体产量范围为 2.5 x 10⁶ 至 1.4 × 10⁷ 原生质体·克−1·FW6,7,9,17这些结果表明,该方案在不同遗传背景下具有潜在的适用性 B. oleracea
该方案的成功取决于多个关键因素。首要的是在适宜的生长阶段选用健康白菜幼苗的指定叶片图2A)。使用过老或不健康的植株可能导致原生质体质量较差。此外,需仔细将叶片组织切成0.5–1.0 mm宽的条状,并避免使用钝刀片压碎组织。酶解过程持续4–16小时,是另一个关键步骤。酶解时间短于4小时可能导致消化不完全,而超过16小时则可能引起细胞应激。值得注意的是,叶片较厚的基因型(如‘Fuyudori’)可从延长的酶解时间中获益,以最大化原生质体产量。相比之下,‘228’仅需4小时即可完成完全消化。此外,较宽范围的酶解时间可为实验安排提供更大的灵活性。例如,4小时酶解可使原生质体分离及后续瞬时转化检测在同一天内完成;而16小时酶解则允许 傍晚开始酶解,并可在次日完成后续步骤,这在应用本方案时可提高便利性。此外,由于原生质体较为脆弱且易受机械应力损伤,因此在整个原生质体分离过程中必须轻柔操作。
为了模拟代表淹水胁迫的厌氧条件,本实验方案采用常见的除氧剂和耗氧袋来建立低氧环境。为提高系统的有效性,使用氧气机对W5溶液进行氧合(图2D),旨在降低白菜原生质体在预处理孵育期间的背景低氧响应信号。5分钟的氧合过程可使溶解氧浓度从7.84 mg·L-1 ± 0.05 mg·L-1显著升高至29.18 mg·L-1 ± 0.43 mg·L-1,表明该方法在缓解低氧条件方面具有显著效果。在本研究使用的各种除氧方法中,除氧剂小包表现出更优的性能,可诱导两个厌氧响应核心基因的最高启动子活性(图3)。此外,该方法还具有可扩展性的额外优势,可通过在单个厌氧罐中使用耗氧袋同时处理多个样品,而无需将除氧剂逐一添加至每块细胞培养板。综上所述,除氧剂小包 为评估白菜原生质体在低氧条件下的响应提供了一个便捷且高效的平台。
尽管该方案具有多项优势,但必须承认其局限性,尤其是卷心菜原生质体的转染效率相对较低。虽然该效率尚未达到拟南芥(Arabidopsis5)报道的90%,但仍足以支持后续启动子活性研究的顺利开展(图3),表明该体系在功能分析方面具有重要潜力。
鉴于甘蓝作为重要蔬菜作物的全球性意义,将本实验方案与低氧处理及遗传分析技术相结合,有望进一步揭示甘蓝在淹水条件下基因调控机制的深层信息。这些研究结果可能加速耐涝甘蓝品种的培育进程,从而应对极端天气频发和洪涝事件日益增多所带来的迫切需求。
披露
作者声明无竞争利益。
致谢
本工作由国家科学技术委员会(MOST 111-2313-B-002-029- 和 NSTC 112-2313-B-002-050-MY3)资助。对于图1,实验图标来源于 BioRender.com。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 2-(N-吗啉代)乙磺酸 (MES) | PhytoTech Labs | M825 | 用于酶溶液配制 |
| 228 粒卷心菜种子 | Takii & Co., Ltd. (Kyoto, Japan) | ||
| 50 mL 圆锥形离心管 | SPL Life Sciences | 50050 | 用于酶溶液配制 |
| 6 孔细胞培养板 | Alpha Plus | 16106 | 用于原生质体孵育 |
| 70 μm 细胞筛 | Sorfa | SCS701 | 用于原生质体过滤 |
| 9 cm 培养皿 | Alpha Plus | 16001 | 用于酶解消化 |
| 厌氧罐 | HIMEDIA | Anaerobic Jar 3.5 L | 用于低氧处理 |
| 牛血清白蛋白 | Sigma-Aldrich | A7906 | 用于 W5 溶液配制及培养板包被 |
| 氯化钙 | J.T.Baker | 131301 | 用于 W5 溶液和 PEG 溶液配制 |
| 纤维素酶 R10 | Yakult | 用于酶溶液配制 | |
| 干燥器 | Tarsons | 402030 | 用于真空渗透 |
| D-葡萄糖 | Bioshop | GLU501 | 用于 W5 溶液配制 |
| 溶解氧测定仪 | Thermo Scientific | Orion Star A223 | 用于氧气浓度测定 |
| D-甘露醇 | Sigma-Aldrich | M1902 | 用于酶溶液、PEG 溶液和 MMG 溶液配制 |
| 双荧光素酶报告基因检测系统 | Promega | E1960 | 用于双荧光素酶报告基因检测 |
| EC-Oxyrase | Oxyrase Inc. | EC-0005 | 用于低氧处理 |
| 富誉斗利卷心菜种子 | Kobayashi Seed Co., Ltd. (Kakogawashi, Japan) | ||
| 高速冷冻离心机 | Hitachi | CR21GIII | 用于原生质体收集 |
| 离析酶 R10 | Yakult | 用于酶溶液配制 | |
| 氯化镁 | Alfa Aesar | 12315 | 用于 MMG 溶液配制 |
| 微量离心机 | Hitachi | CT15RE | 用于原生质体收集 |
| 微孔板 | Greiner | 655075 | 用于双荧光素酶报告基因检测 |
| 微孔板读数仪 | Molecular Devices | SpectraMax Mini | 用于双荧光素酶报告基因检测 |
| Millex 0.22 μm 注射式滤器 | Merck | SLGP033RS | 用于酶溶液配制 |
| 无油真空泵 | Rocker | Rocker 300 | 用于真空渗透 |
| OxyFluor | Oxyrase Inc. | OF-0005 | 用于低氧处理 |
| 氧气吸收剂包 | Mitsubishi Gas Chemical Company | AnaeroPack, MGCC1 | 用于低氧处理 |
| 氧气浓缩器 | UTMOST PERFECT | AII-X | 用于 W5 溶液中通氧 |
| 植物培养基质 | Klasmann-Deilmann | Potgrond H substrate | 用于卷心菜幼苗制备 |
| 质粒大提试剂盒 | QIAGEN | 12145 | 用于转染级质粒 DNA 的纯化 |
| 聚乙二醇 4000 | Fluka | 81240 | 用于原生质体转染 |
| 氯化钾 | J.T.Baker | 304001 | 用于 W5 溶液配制 |
| 剃须刀片 | Gillette | 用于卷心菜叶片条制备 | |
| 氯化钠 | Bioshop | SOD002 | 用于 W5 溶液配制 |
| 亚硫酸钠 | Sigma-Aldrich | S0505 | 用于低氧处理 |
| 水浴锅 | Yihder | BU-240D | 用于酶溶液配制 |
参考文献
- Tanoue, M., Hirabayashi, Y., Ikeuchi, H. Global-scale river flood in the last 50 years. Sci Rep. 6 (1), 36021(2016).
- Voesenek, L. aC. J., Bailey-Serres, J. Flood adaptive traits and processes: An overview. New Phytol. 206 (1), 57-73 (2015).
- Sheen, J. Signal transduction in maize and Arabidopsis mesophyll protoplasts. Plant Physiol. 127 (4), 1466-1475 (2001).
- Chen, S., et al. A highly efficient transient protoplast system for analyzing defense gene expression and protein-protein interactions in rice. Mol Plant Pathol. 7 (5), 417-427 (2006).
- Yoo, S. -D., Cho, Y. -H., Sheen, J. Arabidopsis mesophyll protoplasts: A versatile cell system for transient gene expression analysis. Nat Protoc. 2 (7), 1565-1572 (2007).
- Wang, Q., et al. Optimization of protoplast isolation, transformation, and its application in sugarcane (Saccharum spontaneum L). Crop J. 9 (1), 133-142 (2021).
- Adedeji, O. S., et al. Optimization of protocol for efficient protoplast isolation and transient gene expression in carnation. Sci Hortic. 299, 111057(2022).
- Lin, H. -Y., Chen, J. -C., Fang, S. -C. A protoplast transient expression system to enable molecular, cellular, and functional studies in Phalaenopsis orchids. Front Plant Sci. 9, (2018).
- Wang, Y., et al. A highly efficient mesophyll protoplast isolation and PEG-mediated transient expression system in eggplant. Sci Hortic. 304, 111303(2022).
- Lin, Z., et al. Development of a protoplast isolation system for functional gene expression and characterization using petals of Camellia oleifera. Plant Physiol Biochem. 201, 107885(2023).
- Guo, J., et al. Highly efficient isolation of Populus mesophyll protoplasts and its application in transient expression assays. PLOS One. 7 (9), e44908(2012).
- Gottschald, O. R., et al. TIAR and TIA-1 mRNA-binding proteins co-aggregate under conditions of rapid oxygen decline and extreme hypoxia and suppress the HIF-1α pathway. J Mol Cell Biol. 2 (6), 345-356 (2010).
- Cho, H. -Y., Chou, M. -Y., Ho, H. -Y., Chen, W. -C., Shih, M. -C. Ethylene modulates translation dynamics in Arabidopsis under submergence via GCN2 and EIN2. Sci Adv. 8 (22), eadm7863(2022).
- Boudreau, C., et al. Excitation light dose engineering to reduce photo-bleaching and photo-toxicity. Sci Rep. 6 (1), 30892(2016).
- Shcherbakova, D. M., Cox Cammer, N., Huisman, T. M., Verkhusha, V. V., Hodgson, L. Direct multiplex imaging and optogenetics of Rho GTPases enabled by near-infrared FRET. Nat Chem Biol. 14 (6), 591-600 (2018).
- Jiang, B., et al. Sodium sulfite is a potential hypoxia inducer that mimics hypoxic stress in Caenorhabditis elegans. J Biol Inorg Chem. 16 (2), 267-274 (2011).
- Lin, C. -C., et al. SUB1A-1 anchors a regulatory cascade for epigenetic and transcriptional controls of submergence tolerance in rice. PNAS Nexus. 2 (7), pgad229(2023).
- Zhang, X., et al. Bis-molybdopterin guanine dinucleotide modulates hemolysin expression under anaerobiosis and contributes to fitness in vivo in uropathogenic Escherichia coli. Mol Microbiol. 116 (4), 1216-1231 (2021).
- Liu, N., et al. The light and hypoxia-induced gene zmPORB1 determines tocopherol content in the maize kernel. Sci China Life Sci. 67 (3), 435-448 (2024).
重印与许可
