本文介绍了一项在iDiv Ecotron中开展的研究。iDiv Ecotron是陆地微宇宙实验舱,可对地上和地下环境条件进行精确控制,用于研究植物历史和土壤历史对沿植物多样性梯度的草地群落生态系统功能的独立及交互影响。
本文内容
摘要
摘要
全球生物多样性的丧失促使了许多研究,这些研究通过实验性地改变植物物种丰富度,并检验其对生态系统功能的影响。此类实验通常表明,地上和地下生物多样性与陆地生态系统功能之间存在正相关关系。此外,这种关系随时间推移趋于增强,表现为高多样性植物群落功能的提升以及低多样性植物群落功能的下降。人们推测,高多样性与低多样性植物群落中多营养级群落的构建过程及生物相互作用的差异,可能通过改变植食者群落的结构与功能,并驱动植物群落中物种的表型可塑性或微进化响应,从而影响植物的生长表现。为了厘清群落历史中这些复杂因素的相互作用,我们将这些效应分解为植物历史和土壤历史两个方面。植物历史是指植物在其群落中经历过去非生物和生物选择压力所产生的一切植物水平上的响应;而土壤历史则指在不同植物多样性条件下,由植物-土壤相互作用遗留下来的全部非生物和生物土壤特性。我们在Ecotron(一种陆地中型生态系统实验装置,可控制地上和地下环境条件)中建立了一项生物多样性实验,以检验生物多样性-生态系统功能关系的增强是否归因于土壤历史、植物历史,或二者共同作用的结果。我们构建了一个包含1、2、3和6种草本植物物种的植物多样性梯度,并在每种植物物种丰富度水平上,采用因子嵌套设计设置了土壤历史和植物历史处理。代表性结果展示了Ecotron实验中目标处理的成功建立,观察到了植物历史和土壤历史对植物初期发育和最终生长的影响。此外,我们提供了针对个体响应变量的数据分析案例。我们阐述了研究目标与方法,以全面评估实验处理对多种功能指标的响应,从而最终验证核心假设。
引言
在过去三十年中,随着人们对生物多样性丧失的担忧日益加剧,大量研究致力于通过实验手段调控植物物种丰富度,以探究其对生态系统功能的影响1,2。实验研究表明,植物多样性与生态系统功能之间存在正相关关系1,且这种关系通常随时间推移而增强3,4,5,6,7,8,9。这一发现具有重要意义,表明基于年轻或新建立的群落所得出的实验结果可能低估了生物多样性丧失的后果,同时也凸显了保护古老且物种丰富的生态系统的必要性10。
生物和非生物过程随时间发生的变化——这些变化只能通过长期实验观察到——是生物多样性对生态系统功能产生放大效应的可能解释之一。高植物多样性已知与土壤碳和养分浓度的增加3,9,11,12,13、资源互补性的优化3,8,14、植物间生态位分化的增强15、各营养级互利共生体的积累10,16,以及通过更强的自上而下调控机制减轻病原体和植食性动物的威胁17,18,19相关。相反,低植物多样性则与植物防御投资增加的选择压力以及资源利用效率降低相关10,20,21,22。综上所述,高多样性与低多样性植物群落中多营养级群落构建及生物相互作用的差异,被认为可通过改变消费者群落的结构与功能,并驱动植物物种在群落水平上的表型可塑性或微进化变化,从而影响植物表现23,24,25,26。为了厘清群落历史的复杂交互作用,这些效应被分解为两个重要组成部分:植物历史和土壤历史。植物历史指植物在其所属群落中经历的过去非生物和生物选择压力所引发的所有植物响应;而土壤历史则指由植物-土壤相互作用所形成的全部非生物和生物土壤特性23,24,27,28。这两个组分 increasingly 被认为是长期生物多样性效应的关键驱动因素29,30,31。
实验性田间研究在现实环境条件下以及大空间尺度上,为土壤和植物历史的长期效应提供了宝贵的见解32,33。然而,田间实验易受多种不可控外部因素的影响,例如天气波动、自然干扰以及与其他生物的相互作用。相比之下,小规模的微宇宙实验虽然在反映自然生态系统复杂性和动态性方面存在局限,但能够对温度、光照和水分等非生物因素实现精确控制34。为了结合这两种方法的优势,一种名为“Ecotron”的新型实验设施于20世纪90年代出现(例如英国Silkwood的Ecotron34;法国蒙彼利埃的Ecotron35;比利时哈瑟尔特的Ecotron36)。Roy等人(2021)37将Ecotron定义为一种由可重复的封闭单元组成的实验设施,旨在容纳生态系统样本,能够在模拟地上和地下环境条件的同时,实现对生态系统过程的同步自动化测量。因此,Ecotron能够整合研究复杂的生态系统过程、多营养级相互作用以及生态系统功能。它可在一系列独立的中型生态系统舱内容纳来自多个营养级的多种地上和地下生物,从而实现对地上和地下系统环境条件的精确控制与监测37,38。
本研究在iDiv Ecotron38,39中开展了一项实验,称为“耶拿生态otron实验”(图1 和 图2),旨在检验不同植物物种丰富度群落中生物多样性-生态系统功能(BEF)关系是否受到土壤历史、共享植物历史或二者共同作用的调节。iDiv Ecotron专为多营养级生物多样性实验而设计,重点关注陆地生态系统中地上与地下相互作用的联合研究38,39,40。该系统包含24个完全相同的实验单元,称为“生态单元”(EcoUnits)(图2F、G),每个单元可在相互隔离的区室中容纳最多四个独立的生态系统(图2K),从而在最小化环境变异影响的同时构建复杂且接近自然的生态系统。其关键优势之一是在受控环境条件下建立多个完整的土壤单体(图2A–C)的重复,使得能够测量复杂的生态系统过程,包括植物-植物和植物-土壤反馈效应,而这些过程在小规模的微宇宙实验中通常难以捕捉38,39。
在欧洲,半自然草原是最具生物多样性和复杂性的陆地生态系统之一,提供重要的生态系统服务。然而,自20世纪初以来th 近一个世纪以来,这些粗放管理的草地因土地利用变化而面临日益加剧的威胁,使其成为生物多样性保护与研究的重点。全球持续时间最长的关于粗放管理草地生物多样性的实验之一是 Jena Experiment32,33,位于德国耶拿(50.951°N,11.621°E,海拔139米;网站:https://the-jena-experiment.de)。该实验始于2002年,旨在研究草地植物多样性与生态系统功能之间的关系,特别关注养分循环和营养级相互作用。32,33在iDiv Ecotron中安装JenaTron实验时,我们采用了基于性状的实验方法41 (TBE),是2010年启动并于2021年完成的耶拿实验(Jena Experiment)的一个组成部分。2022年,在TBE中选取了23个样地,用于在iDiv Ecotron内建立一个植物多样性梯度,涵盖1至6个物种,跨越24个植物群落。这些群落包含6种草地植物,与耶拿实验的主实验所用植物重叠,代表了3种禾本科植物(Anthoxanthum odoratum L., Dactylis glomerata L., Holcus lanatus L.) 和三种杂类草物种(Leucanthemum vulgare 聚集体, Plantago lanceolata L. 和 Ranunculus acris L.;参见 表1 有关每个植物多样性水平的植物物种组成和重复次数的详细信息,请参见)。这些物种在欧洲半自然草原中广泛分布且常共同存在,此外它们在时间资源获取特征上存在差异,因此非常适合作为研究植物物候等时间资源利用模式的综合实验材料。4124 种植物组合被随机分配至所有 EcoUnit图1C),每个EcoUnit进一步划分为四个区室,以容纳土壤历史和植物历史处理的因子组合。
土壤历史(图1A)通过从耶拿实验(Jena Experiment)中挖掘共计96个土壤单体来确定。该试验地的土壤为富含养分的冲积平原土壤,分类为中性潜育土(Eutric Fluvisol),由粉砂质河流沉积物发育而成32,33。有关耶拿实验土壤剖面中土壤pH值、土壤质地变化以及有机质含量的详细信息,可参见Lange等(2023)9。在96个土壤单体中,有48个来自22个TBE样地,每个样地挖掘两个单体,涵盖单一种植、两种和三种物种混合种植处理。此外,另有四个单体取自一个八物种样地,该样地将在JenaTron实验中作为六物种混合处理使用。这48个土壤单体(深度:0.8 m;直径:0.5 m)自2010年以来一直含有特定样地的定居群落,因此代表了特定植物群落的土壤历史(+SH)。其余48个单体则来自四个自2002年耶拿实验启动以来一直保持无植被覆盖的裸地样地,因此缺乏任何特定植物群落的土壤历史(-SH)。从每个裸地样地中共挖掘12个单体。两种土壤历史处理(+SH;-SH)与两种植物历史处理进行因子组合,即种植预先培育的植物,使其反映TBE中特定植物群落的组成,并以相同密度栽植,单株间距为6 cm。
植物历史(图1B)通过来自耶拿实验物种库中所选植物物种的两种不同种子来源建立:第一种来源为自2010年以来经历群落特异性历史的植株所采集的种子,对应于挖掘土壤单体的精确性状基础实验(TBE)样地(+PH)。这些种子根据物种的开花物候于2019年5月至9月间采集,确保每个物种和样地至少采集5个个体。采集后,种子经清理并储存在-20°C,直至耶拿特龙实验(JenaTron Experiment)启动。第二种种子来源为从商业种子供应商获得的种子,该供应商提供具有区域来源的种子。这些种子用于2010年建立TBE样地,因此代表在耶拿实验中无群落特异性选择历史的植物(-PH),并自2010年起储存在-20°C直至耶拿特龙实验开始。这六种多年生植物的两种历史类型于2022年2月至5月期间,在位于德国莱比锡的iDiv研究温室(51.330°N, 12.393°E, 海拔120米)的四个培养室中进行预培养。
在每个植物物种丰富度水平下,土壤历史(SH)和植物历史(PH)的因子组合在24个生态单元(EcoUnits)中的每一个内产生了四种处理方式:(1)有土壤历史、有植物历史(+SH/+PH),(2)有土壤历史、无植物历史(+SH/-PH),(3)无土壤历史、有植物历史(-SH/+PH),以及(4)无土壤历史、无植物历史(-SH/-PH;图1C)。JenaTron实验的主要目标是探究生物多样性与生态系统功能之间增强关系的成因,究竟是源于土壤历史、植物历史,还是二者共同作用的结果。我们假设,具有共同植物和特定土壤群落历史的植物群落将表现出最强的生物多样性-生态系统功能(BEF)关系,而实验性排除土壤历史、植物历史或两者,可能对植物多样性与生态系统功能之间的正向关系产生不利影响。最终,如果土壤历史或植物历史能够改变植物物种丰富度与生态系统功能之间的关系,这将对本地保存群落及新近恢复群落的保护与监测工作提供重要的参考依据。
方案
注意:在所有实验步骤中,必须提供适当的人体防护装备(例如,头盔、手套、背心、安全鞋等)。
1. 土壤:制备、挖掘与安装
- 土壤来源、样地选择与准备(2022年2月)
- 从耶拿实验(Jena Experiment)田间试验点选取两个土壤来源:
- 选取23个TBE样地,这些样地已维持特定植物群落12年,以涵盖1、2、3和6个物种的植物多样性梯度。将这些样地指定为JenaTron实验处理组“具有植物群落特异性土壤历史”(+SH)。
- 选取4个裸地样地,其土壤性质与TBE样地相同(pH、砂含量等),但自2002年以来一直无植被覆盖。将这些样地指定为JenaTron实验处理组“无植物群落特异性历史”(-SH)。
- 使用小型挖掘机轻轻移除所有选定样地上层5 cm的土壤,以使不同土壤历史处理组之间的条件保持一致。
- 从耶拿实验(Jena Experiment)田间试验点选取两个土壤来源:
- 土壤单体采挖(2022年3月)
- 在每个样地设置单体提取装置,将切割系统安装在一个空的钢制圆筒上,并将其插入提取装置中(图2A)。
- 启动装置,切割系统将围绕钢制圆筒外壁旋转,在土壤中切出凹槽,同时提取装置将钢制圆筒压入该凹槽。与此同时,使用小型挖掘设备在钢制圆筒侧面挖掘一个坑(图2B)。
- 当钢制圆筒完全嵌入土壤后,进入侧坑,通过安装临时底板,在钢制圆筒底缘处切断单体,并使用单体提取装置将其从挖掘坑中吊出(图2C)。
- 从钢制圆筒上拆下切割系统,安装临时顶板,利用连接在小型挖掘机上的吊装装置将单体吊起并翻转倒置。
- 安装水分吸力系统(2022年3月)
- 拆下底板,用铲子移除约5 cm厚的土层,并将其保存以备后续使用。
- 将一圈水分吸力探针(8根蜡烛通过聚氯乙烯[PVC]软管连接)嵌入石英粉中,用去离子水(VE)润湿,并用先前移除的土壤回填钢制圆筒底部。
- 将水分吸力探针环的PVC端部连接到底板上,并用螺栓固定。
- 使用小型挖掘机上的吊装装置将钢制圆筒重新扶正,单独标记,用胶带密封圆筒壁上的开口,并用塑料薄膜包裹圆筒以保护其在运输过程中不受损。
- 用卡车将土壤单体运送到位于德国巴特劳赫施泰特的亥姆霍兹环境研究中心(UFZ)实验站的iDiv Ecotron设施(51.392°N, 11.876°E, 海拔116 m)。
- 安装土壤传感器(2022年4月)
- 拆包后,使用定制钢刀通过圆筒壁上的开口,在土壤单体中三个不同深度(9.5 cm、21.5 cm和43.5 cm)水平切割出与传感器精确匹配的孔。
- 将土壤传感器放入孔中,使用木棍将其调整至正确位置,并用定制密封塞封住开口并拧紧。
- 将土壤单体安装至EcoUnit中(2022年4月)
- 小心地将每个EcoUnit的技术部件和上部结构从下部结构上抬起(图2G)。将下部结构运输至装有完整土壤单体并配备土壤传感器的钢制圆筒处。
- 将每个钢制圆筒连接到吊装装置,用叉车吊起,并将连接到底板的吸力蜡烛环接上连接器。
- 将四个土壤单体分别吊入24个EcoUnit的每个下部容器中(图2F),其中两个具有相同的植物群落特异性土壤历史(+SH),另两个无植物群落特异性土壤历史(-SH)。将土壤传感器的电缆穿过地面容器的开口引出。
- 用螺钉将钢制圆筒固定在下部结构上,随后通过预先安装的连接器,将每个圆筒的水分吸力蜡烛环连接到EcoUnit的水分吸力系统。
- 使用叉车将装有 土壤单体的容器运送到一个大厅(24 m × 24 m)内。
- 小心地将每个EcoUnit的技术部件和上部结构(含子单元之间的内壁 [图2K])重新放回到下部结构之上。
- 将全部24个EcoUnit排列成三行,每行由两组各四个EcoUnit组成,共形成六个区组。确保每行内各区组中心间距为6 m,行间间距为8.2 m。在每个区组中,将四个植物多样性水平(1、2、3和6)随机分配给四个EcoUnit,尽可能保证所有EcoUnit间物种的均匀分布。
2. 植物:准备与培养装置
- 物种与种子材料的选择
- 从耶拿实验(Jena Experiment)的物种库中选择以下六种植物物种:Anthoxanthum odoratum L. (Poaceae)、Dactylis glomerata L. (Poaceae)、Holcus lanatus L. (Poaceae)、Leucanthemum vulgare agg. (Asteraceae)、Plantago lanceolata L. (Plantaginaceae) 以及 Ranunculus acris L. (Ranunculaceae)。
- 针对每个物种,选择来自两个不同种子来源的种子材料:
- 使用自2010年起在耶拿实验TBE样地中生长的植株所产生的种子(具有植株历史,+PH)。
- 使用2010年启动TBE时来自区域种子供应商的原始种子材料(无植株历史,-PH)。
- 基质制备(2022年2月)
- 从耶拿实验田间试验点所选样地采集具有样地特异性的土壤,装入20 L塑料箱中,并在4 °C条件下储存,直至用于植物培养。
- 将各样地特异性土壤分别通过4 mm孔径筛网过筛。过筛前,先将四个裸地样地的土壤混合均匀。
- 为去除不需要的生物体,将石英砂装入不锈钢容器中,在干燥烘箱中于200 °C加热4小时。
- 按体积比3:1将样地特异性土壤与石英砂混合,并使用塑料铲将土壤-砂混合物填入多穴育苗盘中(总计n = 152)。
- 对每个育苗盘进行单独标记,并将其置于温室中,设置昼夜周期为16小时/18 °C和8小时/12 °C,保持60%–70%相对湿度(RH)的中等湿度条件。
- 根据需要浇水,保持育苗盘裸露两周,以促进土壤种子库萌发。期间对所有育苗盘进行两次除草,清除不需要的幼苗。
- 播种操作(2022年3月–4月)
- 根据各物种特有的萌发时间确定播种顺序,具体如下:
- 在其他草本植物播种前2周播种R. acris
- 在禾本科植物A. odoratum、D. glomerata和H. lanatus播种前1周,播种P. lanceolata和L. vulgare。
- 除R. acris外,所有物种均直接播种于多穴育苗盘中具有样地特异性的土壤-砂基质(3:1)中,每穴播种2至3粒种子。成功萌发后,使用弹簧钢镊子将所有物种间苗至每穴仅保留一株幼苗。
- 将R. acris种子置于培养皿中的滤纸上,用赤霉素溶液(1000 mg·L−1)润湿以打破休眠状态(图2D),并在该条件下孵育24小时。
- 将R. acris种子转移至用去离子水(VE)润湿的滤纸上,直至其萌发。当种子达到胚根阶段时,使用弹簧钢镊子将其幼苗移栽至已准备好的多穴育苗盘中具有样地特异性的土壤-砂基质(3:1)中。
- 根据需要使用去离子水对所有植株进行浇水,并在运输至iDiv Ecotron之前一直保留在温室中(图2E–H)。
- 根据各物种特有的萌发时间确定播种顺序,具体如下:
- 种植操作(2022年5月)
- 为所有土壤单体设计个体化的种植方案,需满足以下特征:
- 确保植物群落内各物种个体数量均衡。
- 保持每株植物个体与其邻近个体之间6 cm的距离。
- 在不同Ecounit之间随机化种植模式,但在子单元内部保持一致。
- 使用定制的种植模板在土壤单体上标记每株植物个体的精确位置。使用不同颜色的塑料牙签进行标记,为每个物种分配特定颜色。标记完成后移除模板(图2I)。
- 在一周内使用直径为4 cm的球茎种植器将预培养的植株种植到所有土壤单体上(共5280株植物个体;图2J)。
- 为所有土壤单体设计个体化的种植方案,需满足以下特征:
3. 实验流程
- 为期三周的建植阶段(2022年5月):
- 在初次种植后两周内,替换所有未存活的个体(n = 124 [2.35%])。
- 打开光源,并将光照周期设置为16/8小时的昼夜循环。 为模拟实验开始时当地春末夏初的自然日照长度,通过在一小时内将光照强度从100%逐渐调暗至75%,再在下一小时内降至0%,以模拟黄昏过程(100%光照强度:约370 μmol/(m²·s))。黎明过程则按相反模式调节光照。
- 使用土壤水分测定仪,将表层土壤含水量调整至体积比20%(± 3%)。
- 将初始灌溉量设定为每个小区每12小时450 mL。
- 连接空气和土壤传感器,以全程监测温度和湿度。
- 实验阶段(2022年6月至10月)
- 根据自然季节变化,自8月至10月每两周将日长缩短一小时,以反映当地从夏末至秋季的日照长度变化。
- 7月将灌溉量增至每12小时650 mL,8月进一步增至每12小时750 mL,以适应植株的水分需求变化。
- 使用镊子在子叶阶段持续清除不需要的幼苗,以维持植物密度并尽量减少对土壤结构的干扰。
- 按照粗放管理草甸的标准管理方式,对地上生物量进行两次收割,用剪刀将植株剪至距土壤表面3 cm处。
结果
为了初步了解该方法在检验植物和土壤历史对生物多样性-生态系统功能关系的独立及交互作用方面的有效性,我们首先评估了JenaTron实验为期3周的建立阶段后两个代表性生态单元(EcoUnit)的照片,此时处理效应已迅速显现(图3)。除了植物群落高度和颜色的处理特异性差异外(图3A),我们还观察到R. acris开花时间存在处理特异性差异。具体而言,无植物历史种子培育的植株似乎比具有Jena实验群落特异性植物历史种子培育的植株更早开花(图3B)。
为了评估iDiv Ecotron中新建群落是否准确反映了原始野外群落,通过比较JenaTron实验与TBE样地之间物种特异性的营养生长植株高度,来表征植物最终发育状况。在JenaTron实验中,于2022年7月底第一次收获前,测定每个24个群落及处理组合中每种植物物种3个个体最高营养叶的高度,并取其平均值作为植株高度。在TBE中,于2012年7月测定每个样地内每种植物物种3个个体最高营养叶的高度,并取其平均值作为营养生长植株高度。iDiv Ecotron中测得的植株高度与Jena实验野外样地的数据表现出高度相关性(补充图1)。
为了进一步提供数据分析的案例研究,我们对iDiv Ecotron中的植物营养生长期高度进行了更详细的分析。我们重点关注物种水平和群落水平的分析,并检验植物历史、土壤历史和植物多样性是否影响植物的营养生长。为此,我们采用了线性混合效应模型(LMM),并通过方差分析(ANOVA,I型平方和;详细的ANOVA结果见补充表1)对结果进行总结。在样地水平上,响应变量为植物营养高度的平均值以及植物高度的变异系数(CV = 标准差/均值 × 100)。固定效应包括植物多样性(数值型)、植物和土壤历史处理及其交互作用;随机效应包括Ecotron大厅区组内嵌套的EcoUnit。在物种水平上,固定效应中还额外加入了物种本身及其与植物多样性和历史处理的交互作用。数据经过转换(植物高度取对数,高度CV取平方根)以满足模型假设。分析使用R软件(版本4.3.1)42及nlme包进行线性混合效应模型分析43。结果表明,不同物种在植株高度上存在显著差异,禾本科植物高于杂类草(图4,补充图2)。在所有物种中,土壤历史对植物高度具有显著正向影响(F(1,66) = 11.11,P = 0.001),而植物历史和多样性则无显著影响(F(1,66) = 0.22,P = 0.64 和 F(1,17) = 1.52,P = 0.23;图4)。在群落水平上,植物多样性对平均高度无显著影响(F(1,17) = 0.01,P = 0.91;图5A),但显著增加了群落内植物高度的变异系数(F(1,17) = 14.29,P = 0.002;图5B)。植物历史和土壤历史对植物高度变异系数均无显著影响(F(1,68) = 0.55,P = 0.46;F(1,68) = 0.09,P = 0.76;图5)。我们已将数据和R脚本上传至耶拿实验数据库(https://doi.org/10.25829/QN9R-J839)。

图1:JenaTron实验的设置。(A)土壤历史(SH)通过从耶拿实验(JE)中完整挖掘96个原状土柱来建立,其中一半(n = 48)取自23个已维持特定群落12年的样地(+SH),另一半(n = 48)取自4个自2002年耶拿实验开始以来一直保持无植被的裸地(-SH)。(B)植物历史(PH)通过六种植物物种各自的两种种子来源建立:一种为自2010年起在耶拿实验中与土柱相同样地上生长的植株所采集的种子(+PH),另一种为2010年最初用于田间播种这些群落的原始种子(-PH)。(C)在iDiv Ecotron的每个EcoUnit中,植物历史和土壤历史在不同植物多样性水平(1、2、3和6)下独立交叉,形成四种处理:(1)+SH/+PH,(2)+SH/-PH,(3)-SH/+PH,和(4)-SH/-PH。请点击此处查看该图的放大版本。

图2:位于德国巴特劳赫施泰特的亥姆霍兹环境研究中心(UFZ)研究站的iDiv Ecotron装置。(A)野外土壤单体挖掘设备,(B)野外土壤单体挖掘过程,(C)野外挖掘坑,(D)在温室中,将毛茛(Ranunculus acris)种子材料置于培养皿中的滤纸上,并用赤霉素溶液润湿进行预处理,(E)在温室中使用特定样地土壤基质于多孔培养板中对植物进行预培养,(F)iDiv Ecotron大厅中的生态单元(EcoUnits),(G)一个实验单元(“EcoUnit”)的技术设备示意图(改编自Eisenhauer等(2019)23 和Schmidt等(2021)38),(H)运输至iDiv Ecotron后的JenaTron实验中所有待种植个体所在的培养板,(I)使用种植模板在土壤单体上标出每个植物个体的种植物种特异性位置,(J)使用球茎种植器在土壤单体上种植植物个体,(K)一个EcoUnit中带有内壁的四个渗滤仪。 请点击此处查看该图的放大版本。

图3:24个EcoUnit中的两个代表性单元,每个单元在植物和土壤历史的所有处理组合中承载一个群落。(A)包含3个物种混合(A. odoratum、H. lanatus 和 P. lanceolata)的EcoUnit,不同处理在群落植被高度和颜色上表现出特异性差异。(B)包含R. acris单一种植的EcoUnit,显示植物历史依赖的开花时间差异。请点击此处查看此图的放大版本。
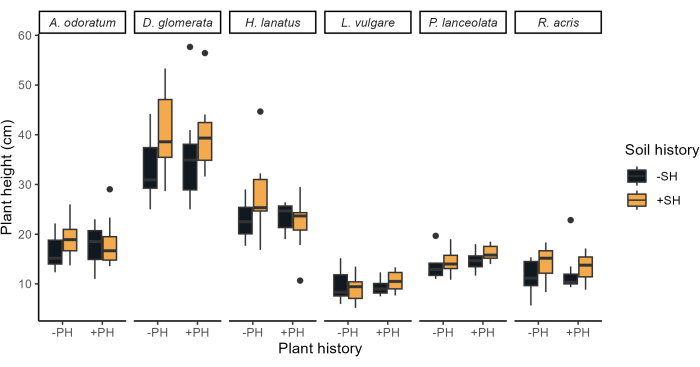
图 4:植物历史和土壤历史对2022年7月第一次收获前六种草原植物物种营养生长高度(cm)的影响。物种在功能群内按字母顺序排列(禾草后为杂类草)。植物历史处理(+PH/-PH)位于x轴,土壤历史(+SH/-SH)在箱线图中以颜色编码(黄色/黑色)。请点击此处查看此图的放大版本。
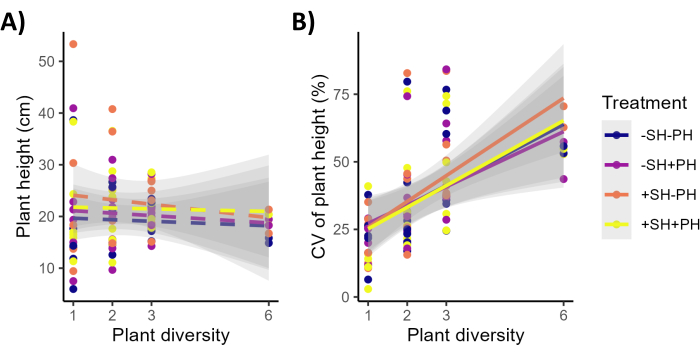
图 5:物种丰富度对群落平均值及营养生长高度变异的影响。 (A)群落平均值。(B)营养生长高度的变异。(+PH/-PH)表示植物历史,(+SH/-SH)表示土壤历史。每个子单元的植物高度变异(CV)如图所示。虚线表示对植物多样性无显著影响,实线表示有显著影响。请点击此处查看该图的放大版本。
表1 耶拿实验(JenaTron Experiment)中的植物群落。 所有选定植物物种的单一种植(n = 6);2个物种的混合种植(n = 9);3个物种的混合种植(n = 7),每种组合均不同;以及6个物种混合种植的两个相同重复(n = 2)。请点击此处下载该表格。
补充图1:物种的平均植株高度。 物种在(A)JenaTron实验样地(2022年7月)和野外(B)TBE样地(2012年7月)中的平均植株高度。图(A)仅包含具有植物历史和土壤历史处理的数据。JenaTron实验与野外样地之间的植株高度存在显著相关性(Pearson相关性检验 r(49) = 0.45,p = 0.0008)。请点击此处下载该文件。
补充图2:植物和土壤历史处理对不同植物多样性水平(SR)下六种植物物种的营养生长高度(cm)的影响。 图例符号+PH和-PH分别表示有植物历史和无植物历史的处理,+SH和-SH分别表示有土壤历史和无土壤历史的处理。请点击此处下载该文件。
补充表1:评估植物多样性(物种丰富度,SR)、土壤历史(SH)和植物历史(PH)在物种水平和样地水平上对植物高度影响的线性混合效应模型的方差分析结果。 报告了每个项的F值和p值。注:numDF和denDF分别表示每个模型项的分子和分母自由度。p值<0.05表明对植物高度具有统计学上显著的影响。请点击此处下载该文件。
补充表 2:地上和地下测量指标、响应变量及方法。 在耶拿实验(JenaTron Experiment)中开展的一系列地上和地下测量指标、响应变量及方法,用于研究植物历史和土壤历史对整个生态系统生物多样性-生态系统功能(BEF)关系的独立及交互作用。请点击此处下载该文件。
讨论
通过JenaTron实验,我们为Jena实验样地32,33提供了一种互补性的实验方法,以增强对生物多样性与生态系统功能(BEF)关系的机制性理解。田间实验使我们能够在接近真实的环境条件下,研究土壤历史和植物历史对生态系统功能的长期影响,其大尺度且未受干扰的样地支持多年重复观测。从包含多种物种的物种库中随机选取植物组合,沿一条明确建立的植物多样性梯度(从单一种植到60个物种)进行设置,有助于最大限度排除物种特异性效应,从而识别出多样性效应32,33。然而,此处特指作为Jena实验一部分的“ΔBEF实验”(详见Vogel等,201929),在完全独立地探究土壤历史与植物历史,以及排除各种外部因素(如天气波动、自然干扰及其他生物相互作用)潜在影响方面存在局限性29。在此背景下,利用Ecotron实验的互补性方法便成为BEF研究的关注重点。Ecotron实验在小尺度、短期的微宇宙实验与高度复杂的田间实验乃至真实世界之间起到了重要的桥梁作用,后者通常仅研究少数甚至单一物种,因而显著降低了自然系统的复杂性34,38。因此,Ecotron实验的主要目的并非完全模拟自然界的全部复杂性,而是构建简化但具有生物学意义的生态系统,从而更深入地理解现实中发生的诸多(当然并非全部)生物过程与相互作用34,37。此外,Ecotron的封闭系统使得研究人员能够观测在野外难以直接测量的物质通量与生态过程35。
以往的研究中已采用多种实验技术的改进方法,凸显了iDiv Ecotron设施显著的适应性。例如,2018年开展的“昆虫末日”(Insect Armageddon)实验44,通过移除地上内墙并使用钢制圆筒对地下部分进行分割,对EcoUnits进行了重新配置。与此不同的是,地下容器被完全填满土壤-沙子混合物,从而在每个EcoUnit 1.5 m2的土壤表面积上建立包含12种欧洲植物物种的草地群落。该实验设计允许引入两种不同的地上无脊椎动物丰度水平,使研究人员能够探究无脊椎动物生物量下降对中欧草地生态系统功能和服务的影响。另一个典型例子是2020年开展的“EcoLux”实验,该实验调整了光照制度,以研究夜间光污染对植物多样性与生长表现的影响45,以及其对土壤群落和功能的作用46。展望未来,进一步改进的潜力仍然巨大。计划于2026年开展的“ResCUE”实验旨在研究植物多样性与生态系统稳定性在气候极端条件下的相互关系26。该实验将通过在iDiv Ecotron中建立的草地植物多样性梯度,模拟降水减少和温度升高,从而实施标准化的高温干旱处理——这种环境条件在自然环境中难以复制。研究将重点评估多个生态系统功能在受控气候极端事件下的抗性与恢复能力26。
然而,利用Ecotron设施来连接野外实验与小规模的微宇宙实验也存在局限性,例如空间尺度仍然相对较小、重复数量较少、生物复杂性较低,以及缺乏对自然气候变异性的代表性37。此外,iDiv Ecotron设施无法模拟所有类型的气候情景(如冬季),从而限制了其在多个世代中研究植物个体真实年周期的能力。因此,如前所述,必须将Ecotron研究视为互补性的研究方法,并最终结合其他实验方法的结果进行综合考量37。尽管如此,iDiv Ecotron设施为我们提供了独特的机会,能够在受控环境条件下研究完整的土壤单体,将具有不同植物群落特异性历史的植物与具有不同植物群落特异性历史的土壤进行正交交叉,并沿植物多样性梯度研究其对生态系统功能的影响,而这些在野外条件下难以实现23,35。此外,该技术还允许在受控环境条件下对植物整体(包括地上和地下部分)进行研究,而这一点在野外难以轻易实现。最后, 在JenaTron实验中,通过移栽(而非播种)建立植物群落,以确保各群落具有相等的总植物密度,且每个物种所占比例相同。相比之下,在播种建立的群落中,不同物种的定植速率往往存在差异,部分目标物种可能完全无法定植,或仅维持极低的丰度。
为确保本方案的可重复性,在执行过程中必须仔细考虑以下几个关键步骤:(1)原状土柱采样:iDiv Ecotron 实验设施的一个重要优势是能够在受控环境条件下建立大量完整的原状土柱重复样本。为保证土柱的完整性,必须在最佳田间条件下进行土柱提取。具体而言,土壤湿度过高可能导致土柱压实,而土壤过干或冻结则可能产生裂隙。若因上述因素导致土柱受损,则必须弃用,并重新进行采样。(2)物种选择:本方案中使用了 TBE 的六种草地植物物种,其选择依据包括与主实验的重叠性、禾本科与杂类草的均衡代表,以及研究不同资源利用策略(如植物物候)的可能性41。对于生物多样性实验而言,六个物种属于较低的物种数目,若选用具有其他性状组合的物种,可能会导致不同的实验结果,因此必须谨慎考虑物种选择。(3)植物密度及各物种的均等比例:JenaTron 实验设计的一个显著优势在于,植物群落以相同的总植物密度建立,且每个物种均以相同个体数表示。确保植物密度一致和种植比例均等对于实验的可重复性至关重要,因为这可以避免因个别物种建立差异而带来的混杂效应。因此,精确控制植物密度对于维持实验设计并确保结果可靠十分关键。
在严格按照方案启动耶拿生态室(JenaTron)实验,并特别关注其中最关键的步骤后,植物群落的高度、颜色和开花时间等处理效应迅速显现。随后对耶拿生态室(JenaTron)与TBE之间物种特异性营养生长高度的比较分析进一步证实,iDiv生态室(Ecotron)中建立的群落确实与野外原始群落相似。为提供一个数据分析的案例研究,我们对耶拿生态室实验中的营养生长高度进行了更详细的分析。对耶拿生态室中物种特异性营养生长高度的分析结果确认了所有目标物种均成功定植,并揭示了不同物种及功能群之间存在显著差异。该结果符合预期,因为在耶拿实验中已知禾草类植物的生长高度通常高于其他功能群47。跨物种分析检测到土壤历史具有显著的正向效应,表明先前的土壤条件会影响生态室中植物的生长,这可能源于曾有植物群落存在的土壤所产生的正反馈效应(与多样性水平无关),以及无植被土壤所产生的负反馈效应。不同土壤历史的生物与非生物特性似乎存在差异,使得在具有特定植物群落历史的土壤中生长的植物相较于缺乏该历史背景土壤中的植物具有生长优势;由于植株高度在竞争光照能力中起关键作用,因而对碳获取至关重要48。相比之下,未发现植物群落特异性的植物历史对平均营养生长高度具有显著影响,这意味着在生态室环境条件下,土壤特性的影响可能强于种子来源的影响。然而,这一假设需要通过对耶拿生态室实验中所测量的多种生态系统功能进行整体性分析来进一步验证。
无论是物种层面还是群落层面的分析,均未发现物种丰富度影响植物平均营养体高度的证据,这与先前田间实验的结果形成对比——在田间实验中,植物高度随物种丰富度增加而增加49,可能归因于更强的光照竞争47,50。在更丰富的群落中,物种间的互补性增强可能导致植物密度更高51,从而可能进一步促进植物高度的增长52。因此,JenaTron 实验中未观察到植物多样性对植物高度的影响,可能是由于植物密度在不同多样性水平间未出现依赖于生物多样性的变化,提示该机制在现实世界中对多样性依赖的个体植物表现可能具有重要意义52。然而,物种丰富度对植物高度的变异系数(CV)具有显著影响 ,表明植物多样性增加了植被结构的复杂性,这与将多样性与更复杂的地上冠层结构相关联的研究结果一致49,50,52,53,54。
综上所述,结果证实了JenaTron实验目标处理的成功建立,并通过显著处理效应的快速显现,首次展示了该方法的有效性(图3、图4 和 图5)。此外,对物种特异性营养生长高度的比较分析表明,iDiv Ecotron中新建群落确实与原始野外观测结果相似。对营养生长高度的详细分析为单个响应变量的数据分析与可视化提供了案例研究。然而,该案例研究也凸显了仅关注单一响应变量在整体上验证核心假设时的局限性,即生物多样性与生态系统功能之间随时间增强的关系究竟是由土壤历史、植物历史,还是两者共同作用所致。这突显了我们采用高度协作方式研究植物历史和土壤历史对生物多样性-生态系统功能(BEF)关系独立及交互影响的重要性23。Jena实验研究单元(FOR 5000)的11个子项目在JenaTron实验中紧密合作,跨微生物学、化学生态学、物候学、近感传感、遗传学、表观遗传学、土壤生态学和食物网建模等多个研究领域,测量了广泛的响应变量。这一整合性研究旨在:(1)分离植物历史与土壤历史在多个营养级和生态系统功能上的独立效应;(2)探究在不同植物物种丰富度水平下,植物物种特异性和相互作用特异性的效应;(3)揭示BEF关系的潜在机制23(补充表249,50,55,56,57,58,59,60,61,62,63,64,65,66,67,68,69,70,
71,72,73,74,75,76,77,78,79,80,81,82,83,84)。
披露
作者无任何利益冲突需要披露。
致谢
特别感谢L. Boockmann、T. Meier、N. Naderi和L.-M. Walter在整个JenaTron实验期间作为研究助理所提供的支持。衷心感谢Umwelt-Geräte-Technik GmbH(UGT)的所有员工在耶拿实验土壤单体采掘过程中给予的专业且热情的合作。同时感谢C. Lauterwasser、H.-C. Schulz和R. Widuwils在土壤单体采掘过程中对UGT的协助。诚挚感谢耶拿实验的技术人员S. Eismann、F. Freter、G. Kratzsch、U. Köber、K. Kunze和H. Scheffler在野外工作以及iDiv Ecotron种植活动中的辛勤协助。感谢I. Merbach以及德国莱布尼茨生物多样性研究中心(UFZ)在巴特劳赫施泰特研究站的技术人员,特别是O. Bednorz和K. Kirsch,为本研究提供的关键支持。感谢A.Q. Barth和R. Altmann在iDiv温室中出色的协作。衷心感谢S. Haenzel、A. Lochner和A. Zeuner在行政管理、组织协调和实验室工作中不可或缺的帮助。感谢梅尔卡托研究员J. Cavender-Bares、F. Isbell、L. Mommer、K. Mueller,以及密切合作者B. Schmid和项目主要研究者U. Brose、H. Schielzeth、N. van Dam、W.W. Weisser、C. Wirth和J. Wolf,他们对JenaTron实验的构想、设计与实施作出了重要贡献。最后,感谢德国研究基金会(DFG)提供的经费支持(FOR 5000),以及德国整合生物多样性研究中心(iDiv,由德国研究基金会[DFG-FZT 118, 202548816]资助)、莱比锡大学、耶拿弗里德里希·席勒大学和耶拿马克斯·普朗克生物地球化学研究所提供的资金与后勤支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| bulb planter (4 cm 直径) | 肯特 & 斯托瓦 | 五金店 | https://www.bauhaus.info/gartenhandgeraete/kent-stowe-hand-blumenzwiebelpflanzer/p/27516825?cid=SSAGoo 8995092923_90652787883&gad_ 来源=1&gclid=CjwKCAiAqNSs BhAvEiwAn_tmxcMcdbxDo72K6g O6FX7hNePwWoc_8JIcgwA4qrY sbv-diJjHf_osDhoCXxEQAvD_BwE |
| 连接器吸蜡烛 | Umwelt Geräte Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| 培养托盘 (无排水) | 盆景选购 | 59000/5-m.D._1 | https://www.bonsai-shopping.eu/Anzuchtschale-59000-5er.html |
| 去离子水(VE) | Alfiltra | VEWA1000B | https://www.alfiltra.de/zubehoer/1000-liter-ve-wasser-im-ibc-behaelter |
| 医用胶带 | T-Rex | 五金店 | https://www.bauhaus.info/panzertape/t-rex-gewebeband/p/25421491?cid=SSAGoo8843016955_1500 14388930&gad_source=1&gclid= CjwKCAiAqNSsBhAvEiwAn_tmxX 5KDl2CRPyAgi7nx2ILVTSy7dUfNY 2DvvCi0ZvtnU8opjA-stwmvRoCflwQAvD_BwE |
| iDiv Ecotron | iDiv | n.a. | https://www.idiv.de/zh/research/platforms-and-networks/idiv-ecotron.html |
| 塑料箱(20 L) | Auer Packaging | EG 43/22 HG | https://www.auer-packaging.com/de/de/Eurobeh%C3%A4lter-geschlossen/EG-4322-HG.html?customer_type=private&gad_source =1&gclid=Cj0KCQjw4Oe4BhCc ARIsADQ0csk38dwQfgiSU63e KE-xapuDT3f2f6EpzwKCJdjknbGP NbEwv4iOg0YaApUKEALw_wcB |
| 滤纸(150 mm 直径) | Labsolute | 7697996 | https://www.thgeyer.com/lab/shop/qualitativ-rundfilter-sorte-2005/labsolute-/7697990_de?variant=7697996 |
| 叉车 | hirsch | NEW-10084 | https://www.hirsch.expert/elektro-gabelstapler-2-tonnen_1794_13098/?gad_source=1&gclid=Cj0KCQjw4O e4BhCcARIsADQ0csmqfjWn 46WlTGVGnZDoDv4WkqUh WT0eYrsGnvIWcjemrOYCp 3c3QC4aAn3WEALw_wcB |
| 赤霉素 (90%) | 罗氏染色法 | 7697996 | https://www.carlroth.com/de/de/weitere-vergleichssubstanzen/gibberellinsaeure/p/7464.2 |
| 量筒 (3000 mL) | Hünersdorff | 五金店 | https://www.hornbach.de/p/messkanne-3000-ml-huenersdorff/6481831/ |
| 量筒 (5000 mL) | Hünersdorff | 五金店 | https://www.hornbach.de/p/messkanne-5000-ml-huenersdorff/6481832/ |
| 金属筛网(4 mm 孔径) | 蓝金属 | 711082 | https://analysensiebe.de/shop/produkt/analysensieb-400-maschenweite-2000/ |
| 小型挖掘工具 | Zeppelin Cat | ZCS196577 | https://www.zeppelin-cat.de/shop/produkte/minibagger-kaufen/cat-301-8-minibagger-inkl-loeffel-und-schnellwechsler/?srsltid=AfmBOoqOG9_VONO0EmP K0GAYEr1onMxM-v3YyM 14hZFK0i9YHXJ_0ddggcs |
| 研钵容器 (90 L) | Gripline | 五金店 | https://www.hornbach.de/p/moertelkuebel-pe-eckig-78-5-x-46-3-x-31-0-cm-90-l/274293/ |
| 多功能培养板(QuickPotPlates - QP 96T) | Herkuplast | 741238 | https://www.meyer-shop.com/product/view/37052?variantProductId=29253 |
| 培养皿(150 mm 直径) | Labsolute | 7696412 | https://www.thgeyer.com/lab/shop/petrischalen-ps-mit-nocken--aseptis/labsolute-/7696390_de?variant=7696412 |
| 种植模板(定制) | UFZ | n.a. | 由德国莱比锡赫尔姆霍兹环境研究中心(UFZ)车间专门为iDiv Ecotron金属圆筒种植设计制造的种植模板。 |
| 塑料薄膜 | 货物点 | 五金店 | https://www.hornbach.de/p/cargo-point-stretchfolie-0-50-x-300-m-20/7152950/ |
| 塑料铲子 | Hünersdorff | 五金店 | https://www.hornbach.de/p/abfuellschaufel-huenersdorff-1390-ml/6481824/ |
| 压力喷雾器(1500 mL) | Bürkle | 9223162 | https://shop.thgeyer-lab.com/erp/catalog/search/search.action?model.query=9223162 |
| 石英粉 | 石英砂 | n.a. | https://quarzsand-shop.de/p/quarzmehl-25-kg-papier-sack-feinpulverig?srsltid=AfmBOoptmSFCMO-9KTIKo StSkd6aV2OobmBa2__ UUcpYHXJisHGdq0JG |
| 石英砂 HQS(0.3 - 0.8 mm 粒径) | Quanzsande | WMQ-10040 | https://quarzsand-shop.de/p/quarzsand-hqs?variant=1185 |
| 密封塞 | Umwelt Geräte Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| 种子材料 | Rieger-Hofmann GmbH | n.a. | https://www.rieger-hofmann.de/startseite-rieger-hofmann.html |
| 土壤湿度测量套件(ML3 ThetaKit) | Delta-T Devices | ML3 ThetaKit | https://delta-t.co.uk/product/ml3/ |
| 土壤单体提取装置 | Umwelt Geräte 技术 (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| 土壤传感器 (SMT-100) | Truebner GmbH | SMT-100 | https://www.truebner.de/en/smt100.php#scroll-target |
| 弹簧钢镊子(105 mm) | Roth | AL99.1 | https://www.carlroth.com/de/de/spezialpinzetten-wafer-hakenpinzetten/federstahlpinzette/p/al99.1 |
| 不锈钢刀片(定制) | UFZ | n.a. | 由德国巴特劳赫施泰特的赫尔姆霍兹环境研究中心(UFZ)车间制造的不锈钢刀片ä德国,专门用于将土壤传感器插入iDiv Ecotron金属圆筒。 |
| 不锈钢圆柱体 | Umwelt Geräte 技术 (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| 标签贴纸(12 cm × 2 cm) | Meyer | 160140 | https://www.meyer-shop.com/product/view/36273?variantProductId=31841 |
| 悬浮液 | Umwelt Geräte Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| 临时上/下板 | Umwelt Geräte 技术 (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| 牙签 | Büroshop24 | 269946 | https://www.bueroshop24.de/500-papstar-party-picker-drop-kunststoff-269946?srpId=c8e0fcec04cb5e7e68a9bfe94 096a8aa&storeType=B2C&lkz= 1131602&obt=20&kwdid=54 40413105-16705681638-135 559674952-pla-32800987645 8&gad_source=1&gclid=CjwK CAiAqNSsBhAvEiwAn_tmxfR EZBIPohPHqFs2n6v_elmZTx L6QgkYdjBjMgZ2eYONmM05 Iwo-CRoCfWsQAvD_BwE |
| 移液铲 | Kaufmann | 五金店 | https://www.hornbach.de/p/berner-edelstahl-putzkelle-kaufmann-mit-softgriff/7940328/?marketNo=566&wt_mc=de.paid.sea. 谷歌.alwayson_组合.bod. pla.868482949.79838688391.&wt _cc1=868482949&wt_cc2=798386 88391&wt_cc3=377419910580&野生型 _cc4=&wt_cc6=7940328&wt_cc7= 566&gad_source=1&gclid=Cj0KCQ jw4Oe4BhCcARIsADQ0cslOTaWzp RLoaIVADaAOi5ZcHJEtFbKXvXJU ocTnzbhZTWgEUTlXr0waAp1q EALw_wcB |
| 卡车 | Europcar | 无可用信息 | https://www.europcar.de/de-de/reservation/vehicles?utm_source=google&utm_medium= cpc&utm_campaign&utm_term& gad_source=1&gclid=Cj0KCQjw4 Oe4BhCcARIsADQ0csn2Ph3mak wxbwrSHzKvJNJq9jaD-aiUvo8-4l RdCaUy8Gw_hgNW6KsaAiR2 EALw_wcB&gclsrc=aw.ds&对照剂 类型=TR&pickupLocation=ZJSC04 &dropoffLocation=ZJSC04&pickupYe ar=2024&pickupMonth=12&拾取 第11天&dropoffYear=2024&递减 12月&dropoffDay=18&拾取 小时=10&pickupMinute=00&递减 小时=18&dropoffMinute=00&驱动因素 年龄=26&国家/地区=DE |
| 镊子 | 博赫姆仪器 | 9171013 | https://www.thgeyer.com/lab/shop/pinzette-105-mm-18/10-stahl/bochem-instrumente-1000/9171010_de?variant=9171013 |
| 水分吸力探针 | Umwelt Geräte Technik (UGT) | 1211000 | https://ugt-online.de/en/solutions/ugt-suction-probe-with-ceramic-cup/ |
| 传感器记录用木材 | 孔斯塔 | 五金店 | https://www.hornbach.de/p/konsta-konstruktionsvollholz-40x60x3000-mm-fichte-nsi-nicht-sichtbarer-einbau/8465807/ |
参考文献
- Cardinale, B. J., et al. Biodiversity loss and its impact on humanity. Nature. 486 (7401), 59-67 (2012).
- Eisenhauer, N., et al. Chapter One - A multitrophic perspective on biodiversity-ecosystem functioning research. Adv Ecol Res. 61, 1-54 (2019).
- Reich, P. B., et al. Impacts of biodiversity loss escalate through time as redundancy fades. Science. 336 (6081), 589-592 (2012).
- Meyer, S. T., et al. Effects of biodiversity strengthen over time as ecosystem functioning declines at low and increases at high biodiversity. Ecosphere. 7 (12), e01619(2016).
- Guerrero-Ramírez, N. R., et al. Diversity-dependent temporal divergence of ecosystem functioning in experimental ecosystems. Nat Ecol Evol. 1 (11), 1639-1642 (2017).
- Huang, Y., et al. Impacts of species richness on productivity in a large-scale subtropical forest experiment. Science. 362 (6410), 80-83 (2018).
- Bongers, F. J., et al. Functional diversity effects on productivity increase with age in a forest biodiversity experiment. Nat Ecol Evol. 5 (12), 1594-1603 (2021).
- Wagg, C., et al. Biodiversity-stability relationships strengthen over time in a long-term grassland experiment. Nat Commun. 13 (1), 7752(2022).
- Lange, M., Eisenhauer, N., Chen, H., Gleixner, G. Increased soil carbon storage through plant diversity strengthens with time and extends into the subsoil. Glob Change Biol. 29 (9), 2627-2639 (2023).
- Eisenhauer, N., Reich, P. B., Scheu, S. Increasing plant diversity effects on productivity with time due to delayed soil biota effects on plants. Basic Appl Ecol. 13 (7), 571-578 (2012).
- Fornara, D. A., Tilman, D. Plant functional composition influences rates of soil carbon and nitrogen accumulation. J Ecol. 96 (2), 314-322 (2008).
- Leimer, S., et al. Mechanisms behind plant diversity effects on inorganic and organic N leaching from temperate grassland. Biogeochemistry. 131 (3), 339-353 (2016).
- Dietrich, P., Eisenhauer, N., Roscher, C. Linking plant diversity-productivity relationships to plant functional traits of dominant species and changes in soil properties in 15-year-old experimental grasslands. Ecol Evol. 13 (3), e9883(2023).
- Roscher, C., et al. A functional trait-based approach to understand community assembly and diversity-productivity relationships over 7 years in experimental grasslands. Perspect Pl Ecol Evol Syst. 15 (3), 139-149 (2013).
- Zuppinger-Dingley, D., Schmid, B., Petermann, J. S., Yadav, V., De Deyn, G. B., Flynn, D. F. B. Selection for niche differentiation in plant communities increases biodiversity effects. Nature. 515 (7525), 108-111 (2014).
- Latz, E., et al. Plant diversity improves protection against soil-borne pathogens by fostering antagonistic bacterial communities. J Ecol. 100 (3), 597-604 (2012).
- Barnes, A. D., et al. Biodiversity enhances the multitrophic control of arthropod herbivory. Sci. Adv. 6 (45), eabb6603(2020).
- Huang, Y., et al. Effects of enemy exclusion on biodiversity-productivity relationships in a subtropical forest experiment. J Ecol. 110 (9), 2167-2178 (2022).
- Wan, N. -F., et al. Species richness promotes plant productivity by suppressing plant antagonists. Research Square. , (2023).
- Schnitzer, S. A., et al. Soil microbes drive the classic plant diversity-productivity pattern. Ecology. 92 (2), 296-303 (2011).
- Kulmatiski, A., Beard, K. H., Heavilin, J. Plant-soil feedbacks provide an additional explanation for diversity-productivity relationships. Proc Biol Sci. 279 (1740), 3020-3026 (2012).
- Mommer, L., et al. Lost in diversity: the interactions between soil-borne fungi, biodiversity and plant productivity. New Phytol. 218 (2), 542-553 (2018).
- Eisenhauer, N., et al. Biotic interactions, community assembly, and eco-evolutionary dynamics as drivers of long-term biodiversity-ecosystem functioning relationships. Res Ideas Outcomes. 5, e47042(2019).
- Thakur, M. P., et al. Plant-soil feedbacks and temporal dynamics of plant diversity-productivity relationships. Trends Ecol Evol. 36 (7), 651-661 (2021).
- Eisenhauer, N. Aboveground-below-ground interactions as a source of complementarity effects in biodiversity experiments. Plant Soil. 351 (1), 1-22 (2012).
- Eisenhauer, N., et al. The multiple-mechanisms hypothesis of biodiversity-stability relationships. Basic Appl Ecol. 79, 153-166 (2024).
- Bever, J. D. Soil community feedback and the coexistence of competitors: conceptual frameworks and empirical tests. New Phytol. 157 (3), 465-473 (2003).
- Schmid, M. W., Hahl, T., van Moorsel, S. J., Wagg, C., De Deyn, G. B., Schmid, B. Feedbacks of plant identity and diversity on the diversity and community composition of rhizosphere microbiomes from a long-term biodiversity experiment. Mol Ecol. 28 (4), 863-878 (2019).
- Vogel, A., et al. A new experimental approach to test why biodiversity effects strengthen as ecosystems age. Adv Ecol Res. 61, 221-264 (2019).
- Dietrich, P., Eisenhauer, N., Otto, P., Roscher, C. Plant history and soil history jointly influence the selection environment for plant species in a long-term grassland biodiversity experiment. Ecol Evol. 11 (12), 8156-8169 (2021).
- van Moorsel, S. J., et al. Co-occurrence history increases ecosystem stability and resilience in experimental plant communities. Ecology. 102 (1), e03205(2021).
- Roscher, C., et al. The role of biodiversity for element cycling and trophic interactions: an experimental approach in a grassland community. Basic Appl Ecol. 5 (2), 107-121 (2004).
- Weisser, W. W., et al. Biodiversity effects on ecosystem functioning in a 15-year grassland experiment: Patterns, mechanisms, and open questions. Basic Appl Ecol. 23, 1-73 (2017).
- Lawton, J. H., et al. The Ecotron: a controlled environmental facility for the investigation of population and ecosystem processes. Philos Trans R Soc Lond B Biol Sci. 341 (1296), 181-194 (1993).
- Milcu, A., et al. Functional diversity of leaf nitrogen concentrations drives grassland carbon fluxes. Ecol Lett. 17 (4), 435-444 (2014).
- Rineau, F., et al. Towards more predictive and interdisciplinary climate change ecosystem experiments. Nat Clim Chang. 9 (11), 809-816 (2019).
- Roy, J., et al. Ecotrons: Powerful and versatile ecosystem analysers for ecology, agronomy and environmental science. Glob Change Biol. 27 (7), 1387-1407 (2021).
- Schmidt, A., et al. The iDiv Ecotron-A flexible research platform for multitrophic biodiversity research. Ecol Evol. 11 (21), 15174-15190 (2021).
- Eisenhauer, N., Türke, M. From climate chambers to biodiversity chambers. Front Ecol Environ. 16 (3), 136-137 (2018).
- Eisenhauer, N., et al. Ecosystem consequences of invertebrate decline. Curr Biol. 33 (20), 4538-4547.e5 (2023).
- Ebeling, A., et al. A trait-based experimental approach to understand the mechanisms underlying biodiversity-ecosystem functioning relationships. Basic Appl Ecol. 15 (3), 229-240 (2014).
- R: A Language and Environment for Statistical Computing. , R Core Team. Available from: https://www.R-project.org/ (2023).
- Theory and Computational Methods for Nonlinear Mixed-Effects Models. Mixed-Effects Models in S and S-PLUS. Statistics and Computing. , Springer. New York, NY. (2000).
- Ulrich, J., et al. Invertebrate decline leads to shifts in plant species abundance and phenology. Front Plant Sci. 11, 542125(2020).
- Bucher, S. F., et al. Artificial light at night decreases plant diversity and performance in experimental grassland communities. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220358(2023).
- Cesarz, S., Eisenhauer, N., Bucher, S. F., Ciobanu, M., Hines, J. Artificial light at night (ALAN) causes shifts in soil communities and functions. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220366(2023).
- Schmidtke, A., Rottstock, T., Gaedke, U., Fischer, M. Plant community diversity and composition affect individual plant performance. Oecologia. 164 (3), 665-677 (2010).
- Westoby, M., Falster, D. S., Moles, A. T., Vesk, P. A., Wright, I. J. Plant ecological strategies: Some leading dimensions of variation between species. Annu Rev Ecol Syst. 33 (1), 125-159 (2002).
- Guimarães-Steinicke, C., et al. Biodiversity facets affect community surface temperature via 3D canopy structure in grassland communities. J Ecol. 109 (5), 1969-1985 (2021).
- Roscher, C., et al. Interspecific trait differences rather than intraspecific trait variation increase the extent and filling of community trait space with increasing plant diversity in experimental grasslands. Perspect Pl Ecol Evol Syst. 33, 42-50 (2018).
- Marquard, E., Weigelt, A., Roscher, C., Gubsch, M., Lipowsky, A., Schmid, B. Positive biodiversity-productivity relationship due to increased plant density. J Ecol. 97 (4), 696-704 (2009).
- Lorentzen, S., Roscher, C., Schumacher, J., Schulze, E. -D., Schmid, B. Species richness and identity affect the use of aboveground space in experimental grasslands. Perspect Pl Ecol Evol Syst. 10 (2), 73-87 (2008).
- Williams, L. J., Paquette, A., Cavender-Bares, J., Messier, C., Reich, P. B. Spatial complementarity in tree crowns explains overyielding in species mixtures. Nat Ecol Evol. 1 (4), 1-7 (2017).
- Roscher, C., et al. Using plant functional traits to explain diversity-productivity relationships. PLoS One. 7 (5), e36760(2012).
- Abbas, M., et al. Biodiversity effects on plant stoichiometry. PLoS One. 8 (3), e58179(2013).
- Pérez-Harguindeguy, N., et al. New handbook for standardised measurement of plant functional traits worldwide. Aust J Bot. 61 (3), 167-234 (2013).
- Bassi, L., et al. Uncovering the secrets of monoculture yield decline: trade-offs between leaf and root chemical and physical defence traits in a grassland experiment. Oikos. 2023, e10061(2023).
- Medina-van Berkum, P., et al. Plant geographic distribution influences chemical defences in native and introduced Plantago lanceolata populations. Funct Ecol. 38 (4), 883-896 (2024).
- Motohka, T., Nasahara, K. N., Oguma, H., Tsuchida, S. Applicability of green-red vegetation index for remote sensing of vegetation phenology. Remote Sens. 2 (10), 2369-2387 (2010).
- Yin, G., Verger, A., Descals, A., Filella, I., Peñuelas, J. A Broadband green-red vegetation index for monitoring gross primary production phenology. J Remote Sens. 2022, 9764982(2022).
- Chen, B., Jin, Y., Brown, P. An enhanced bloom index for quantifying floral phenology using multi-scale remote sensing observations. ISPRS J Photogramm Remote Sens. 156, 108-120 (2019).
- Dean, J. M., Mescher, M. C., De Moraes, C. M. Plant dependence on rhizobia for nitrogen influences induced plant defenses and herbivore performance. Int J Mol Sci. 15 (1), 1466-1480 (2014).
- McCormick, A. C., Reinecke, A., Gershenzon, J., Unsicker, S. B. Feeding experience affects the behavioral response of polyphagous gypsy moth caterpillars to herbivore-induced poplar volatiles. J Chem Ecol. 42 (5), 382-393 (2016).
- Waldbauer, G. P. The consumption and utilization of food by insects. Adv In Insect Phys. 5, 229-288 (1968).
- Bachmann, D., Roscher, C., Buchmann, N. How do leaf trait values change spatially and temporally with light availability in a grassland diversity experiment. Oikos. 127 (7), 935-948 (2018).
- van Gurp, T. P., Wagemaker, N. C. A. M., Wouters, B., Vergeer, P., Ouborg, J. N. J., Verhoeven, K. J. F. epiGBS: reference-free reduced representation bisulfite sequencing. Nat Methods. 13 (4), 322-324 (2016).
- Eichenberg, D., Ristok, C., Kröber, W., Bruelheide, H. Plant polyphenols - implications of different sampling, storage and sample processing in biodiversity-ecosystem functioning experiments. J Chem Ecol. 30 (7), 676-692 (2014).
- Scheu, S. Automated measurement of the respiratory response of soil microcompartments: Active microbial biomass in earthworm faeces. Soil Biol Biochem. 24 (11), 1113-1118 (1992).
- Freschet, G. T., et al. A starting guide to root ecology: strengthening ecological concepts and standardising root classification, sampling, processing and trait measurements. New Phytol. 232 (3), 973-1122 (2021).
- Fiore-Donno, A. M., Richter-Heitmann, T., Bonkowski, M. Contrasting responses of Protistan plant parasites and phagotrophs to ecosystems, land management and soil properties. Front Microbiol. 11, 1823(2020).
- Fiore-Donno, A. M., Bonkowski, M. Different community compositions between obligate and facultative oomycete plant parasites in a landscape-scale metabarcoding survey. Biol Fertil Soils. 57 (2), 245-256 (2021).
- Albracht, C., et al. Common soil history is more important than plant history for arbuscular mycorrhizal community assembly in an experimental grassland diversity gradient. Biol Fertil Soils. 60 (4), 547-562 (2024).
- Breitkreuz, C., Herzig, L., Buscot, F., Reitz, T., Tarkka, M. Interactions between soil properties, agricultural management and cultivar type drive structural and functional adaptations of the wheat rhizosphere microbiome to drought. Environ Microbiol. 23 (10), 5866-5882 (2021).
- Barnes, A. D., et al. Energy flux: The link between multitrophic biodiversity and ecosystem functioning. Trends Ecol Evol. 33 (3), 186-197 (2018).
- Gauzens, B., et al. fluxweb: An R package to easily estimate energy fluxes in food webs. Methods Ecol Evol. 10 (2), 270-279 (2019).
- Anderson, J. P. E., Domsch, K. H. A physiological method for the quantitative measurement of microbial biomass in soils. Soil Biol Biochem. 10 (3), 215-221 (1978).
- Pausch, J., et al. Small but active - pool size does not matter for carbon incorporation in below-ground food webs. Funct Ecol. 30 (3), 479-489 (2016).
- Macfadyen, A. Improved funnel-type extractors for soil arthropods. J Anim Ecol. 30 (1), 171(1961).
- Kempson, D., Lloyd, M., Ghelardi, R. A new extractor for woodland litter. Pedobiologia. 3, 1-21 (1963).
- Cesarz, S., Eva Schulz, R., Beugnon, A., Eisenhauer, N. Testing soil nematode extraction efficiency using different variations of the Baermann-funnel method. Soil Org. 91 (2), 61-72 (2019).
- Ohno, T., Sleighter, R. L., Hatcher, P. G. Comparative study of organic matter chemical characterization using negative and positive mode electrospray ionization ultrahigh-resolution mass spectrometry. Anal Bioanal Chem. 408 (10), 2497-2504 (2016).
- Swenson, T. L., Jenkins, S., Bowen, B. P., Northen, T. R. Untargeted soil metabolomics methods for analysis of extractable organic matter. Soil Biol Biochem. 80, 189-198 (2015).
- Steinbeiss, S., Temperton, V. M., Gleixner, G. Mechanisms of short-term soil carbon storage in experimental grasslands. Soil Biol Biochem. 40 (10), 2634-2642 (2008).
- Roth, V. N., et al. Persistence of dissolved organic matter explained by molecular changes during its passage through soil. Nat Geosci. 12, 755-761 (2019).
重印与许可
标签
