Strongyloides ratti 是一种寄生性线虫,可在实验小鼠中引起短暂感染,具有组织迁移和肠道寄生的生活阶段。本文介绍了一种在大鼠中维持该寄生虫生活周期以及对小鼠进行实验性感染的方案,包括对头部、肺部和肠道中寄生虫数量的定量分析。
本文内容
摘要
摘要
Strongyloides ratti 是一种自然感染野生大鼠的寄生性线虫。然而,大多数实验室大鼠和小鼠品系均完全易感。免疫功能健全的 BALB/c 和 C57BL/6 小鼠可在一个月内通过典型的 2 型免疫反应清除 S. ratti 感染,并 对再感染保持半抗性。感染过程可分为三个阶段:(a)感染性第三期幼虫的组织迁移阶段,持续感染后的前两天;(b)早期肠道阶段,包括幼虫蜕皮发育为成虫,并嵌入肠黏膜,时间为感染后第 3 至 6 天,繁殖始于感染后第 5 至 6 天;(c)后期肠道阶段,直至寄生虫被完全清除。利用 S. ratti 对小鼠进行实验性感染,可精确研究在整个生命周期中不同感染部位的宿主-寄生虫相互作用,以及寄生虫所采用的免疫逃逸策略。本文所述方案介绍了在 Wistar 大鼠中维持寄生虫、感染实验小鼠,以及在组织迁移阶段和肠道阶段检测和定量 S. ratti 寄生虫的方法。
引言
土源性线虫Strongyloides stercoralis可引起类圆线虫病,该疾病常被称为被忽视的热带病中最为被忽视的一种1。2020年的估计表明,全球约有6亿人感染S. stercoralis2。由于该线虫在小鼠体内无法发育至第三期幼虫(L3)之后的阶段,针对S. stercoralis的假设驱动型实验室研究受到限制3,4。因此,通常使用宿主为啮齿类的线虫Strongyloides ratti在实验室小鼠中开展体内感染研究5,6。S. ratti是野生大鼠的天然寄生虫,但大多数实验室小鼠品系均完全易感7。这使得研究人员能够在不同组织和线虫生活阶段中研究宿主-病原体相互作用及免疫应答。
S. ratti 在小鼠体内的实验室生活周期可分为三个主要阶段。在皮下注射确定数量的感染性第三期幼虫(iL3),通常为1000至2000条后,存活的L3中约90%在感染后的前两天内迁移到小鼠头部,仅有极小部分(约10%)可在肺部检出8。S. ratti 可主动穿透其啮齿类宿主的皮肤。在实验室中可通过将含有iL3的水滴置于小鼠皮肤上,使其发生主动经皮感染,从而模拟这种自然感染途径9。然而,该方法的感染效率显著较低,且无法精确控制感染剂量。无论是经皮感染还是皮下(s.c.)感染后,S. ratti iL3 的确切迁移路径仍不明确。但由于在感染小鼠的血液或血供丰富的器官(如肾脏)中均无法检测到 S. ratti DNA8,其主要迁移路径可能不涉及血液循环。尽管如此,S. ratti 并非在组织中随机迁移。相反,多项研究利用组织学方法在小鼠3,10和大鼠11中观察,或通过对从不同组织中回收的存活L3及S. ratti来源DNA进行定量分析8,提供了证据表明,S. ratti L3从感染部位直接穿过皮肤和肌肉组织,主要迁移至头部的鼻额区域。
大约10%的注射幼虫能够存活并穿过组织迁移,最终到达C57BL/6和BALB/c小鼠的头部,这两种小鼠头部组织中的L3幼虫数量相近12。据认为,幼虫在感染后第3天(p.i.)被吞咽进入肠道。它们嵌入小肠黏膜,在感染后第5至第6天蜕皮发育为成年雌性寄生虫,并开始通过孤雌生殖进行繁殖13。虫卵以及多数已孵化的一期幼虫(L1)被释放到肠道中,并随粪便排出体外。成年雌虫数量在感染后第6天左右达到峰值14。有趣的是,尽管两种小鼠品系头部组织中迁徙的L3幼虫数量相似,C57BL/6小鼠的小肠寄生虫负荷却比BALB/c小鼠高出2至5倍12。在感染第一周内,具有正常免疫功能的C57BL/6小鼠与缺乏B细胞和T细胞的RAG1基因敲除(KO)小鼠的小肠寄生虫负荷相似,表明早期寄生虫控制依赖于先天免疫机制12,15。在感染后期,具有正常免疫功能的小鼠可在感染后2至4周内将肠道内的寄生虫完全清除(综述见6)。而RAG1 KO小鼠则无法清除感染,其小肠内可持续存在少量存活并繁殖的成年雌虫,持续时间可达1年12。
在初次感染痊愈或经辐射L3幼虫免疫后,免疫功能正常的C57BL/6和BALB/c小鼠对再次感染具有部分抗性。仅有约1%的初始接种感染性L3幼虫(iL3)能够到达头部,且在二次感染期间仅能从肠道回收大约1-5条成虫8。因此,利用实验室中S. ratti感染小鼠的模型,可作为研究天然免疫及适应性免疫系统在具有组织迁移阶段的肠道线虫完整生命周期中作用的有效工具。
在本文中,我们详细描述了在Wistar大鼠中维持粪类圆线虫(S. ratti)生活周期的方法,以及小鼠的实验性感染和在不同感染部位寄生虫负荷的定量分析。通过对实验小鼠头部、肺组织以及肠道中 S. ratti 寄生虫负荷的精确定量,可以解析特定免疫效应分子对这种寄生性线虫的组织迁移阶段或肠道寄生阶段的作用。如讨论部分详述5,6,可比较野生型小鼠与缺乏特定免疫效应细胞、受体或介质的小鼠的免疫应答。
方案
动物实验遵循德国动物福利法进行,实验方案已获得汉堡州主管机构(健康与消费者保护局,Behörde für Gesundheit und Verbraucherschutz)的批准。图1概述了在Wistar大鼠中维持S. ratti生活周期的过程,以及为感染实验小鼠或大鼠而制备感染性第三期幼虫(iL3)的流程。
1. 感染性幼虫的制备
- 按照图示准备贝尔曼装置 图1用夹子以倾斜角度封闭软管底部,并在筛网中放入一张纸巾。加入温水(约35–37 °C)至水完全覆盖筛网。
- 将按以下步骤(步骤6)制备的粪便-木炭混合物装入筛子中。混合物需完全被水覆盖。
- 打开 Baermann 装置正后方的光源。具有活力的 iL3 会主动穿过擦拭材料迁移。
- 30分钟后,幼虫已沉降在夹子上方,短暂打开夹子将其收集到50 mL离心管中。收集全部沉淀物,但确保体积尽可能小。
- 将50 mL离心管中加入含1%青霉素-链霉素的磷酸盐缓冲液(PBS/Pen-Strep),于4 °C静置30分钟,使幼虫依靠重力沉降至管底。用移液器小心吸除上清液,并重复洗涤步骤3次。
- 第三次洗涤步骤后,根据沉淀物的大小,将沉淀重悬于30至50 mL PBS/青链霉素溶液中。取1 µL该溶液滴加至显微镜载玻片上。由于感染性第三期幼虫(iL3)沉降迅速,因此在移液前应立即混匀溶液。
- 在倒置显微镜下以40倍放大倍数观察液滴,感染性第三期幼虫(iL3)应活跃运动。对5至10个重复样本中每1 µL液滴内的iL3进行计数,并计算每1 µL的平均数量。
2. 小鼠感染
注意:制备好的iL3可在4 °C条件下保存于含青霉素-链霉素的PBS中,置于50 mL离心管内,管子应水平放置,以避免损伤iL3。活力 体外 通过我们观察,iL3 活跃运动的表型在1周内保持不变。由于目前尚无针对不同保存时间后 L3 感染活性的系统性比较研究,我们仅使用新鲜制备的 iL3,或在制备后最多保存24小时内的 iL3 作为实验内部对照。使用更久批次的 iL3 进行感染虽可行,但必须确保同一实验中不同组别所用的 iL3 来自同一批次。小鼠感染操作建议由两人协作完成,一人固定小鼠,另一人执行注射。
- 为每只小鼠准备一个1.5 mL离心管,管中分别含有1000条iL3(C57BL/6)或2000条iL3(BALB/c),这些iL3如上文步骤1.7所述在PBS/Pen-Strep中计数获得,并通过上述(步骤1)Baermann装置制备。在移液操作之间需充分振荡,因为iL3沉降迅速。
- 将iL3在室温(RT)下静置沉降20–30分钟,然后用0.5 mL注射器尽可能完全地吸除上清液,仅留下约30 µL的iL3悬液于管中。使用0.5 mL注射器(28G)或轻弹管壁重悬iL3,并吸出剩余悬液。
注意:iL3在湿润塑料表面的黏附性低于干燥注射器,因此建议使用同一支注射器去除上清液。 - 感染时无需对小鼠进行麻醉。抓住小鼠颈背部皮肤并固定其一只后肢。使用年龄超过8周、体重至少20 g的雌性或雄性C57BL/6小鼠。将含有iL3的全部溶液以平角方式皮下注射至足垫。缓慢退出注射器,避免幼虫悬液从穿刺部位溢出。注射后会形成一个非常小的液泡隆起,该液泡将自行吸收。
注意:与注射于侧腹或颈背部相比,将iL3注射至足垫皮下更接近自然感染过程,因为iL3通常生存于被粪便污染的潮湿土壤中,并能主动穿透完整皮肤。此外,首个引流淋巴结(LN)即为腘窝淋巴结。该淋巴结可用于分析早期(例如感染后第2天)免疫学变化,例如Foxp3+调节性T细胞在感染后的扩增情况,如文献16所示。
3. 计数感染小鼠头部和肺部的iL3
- 为分析组织中的幼虫负荷,可在感染后第1-3天处死小鼠,因为幼虫负荷的高峰期出现在感染后第2天8,12。采用过量CO2麻醉法实施安乐死。在确认角膜反射和趾间反射消失后,进行颈椎脱位。
- 用市售消毒剂喷洒腹部和颈部,用剪刀剪开腹部皮肤。向后拉开皮肤以暴露前腹壁,沿中线剪开以打开腹腔。剪开膈肌,并向两侧剪开肋骨,以暴露胸膜腔内的肺组织。
- 将肺叶收集至一个被划线分隔的24孔板中,每孔加入1 mL自来水。在板上绘制或打印间距约为4 mm的线条。线条之间的距离应确保在40倍放大下可同时看到两条线。
- 将整个肺组织切成约0.75 cm × 0.75 cm的六块。
- 使用骨剪剪下头部。用手指去除皮肤和毛发,尽量减少肌肉组织的损失。
- 在眼睛后方并将头部正中纵向切开,将整个头部(包括脑组织和骨骼)解剖为四个象限(见图2C)。将前部和后部象限置于一个被划线分隔的6孔板中,每孔含2 mL自来水。将组织切面朝下放入水中。
注意:通常该方法可准确记录迁移到头部组织的幼虫数量。若需单独分析脑组织中L3幼虫数量,可加入步骤3.7 。 - 若需单独分析脑组织,先用手指去除头部皮肤。然后用剪刀从两眼之间钻穿颅顶。从此切口开始,使用未使用过或彻底清洁的剪刀沿矢状方向剪开颅骨顶部。用镊子打开左右颅骨以暴露脑组织。用刮勺从前方轻轻向上抬起脑组织,并用洁净剪刀剪断神经索。取出脑组织并转移至一个被划线分隔的24孔板中,每孔含自来水。
- 将孔板置于37 °C培养箱中孵育。孵育3小时,每隔1小时(h)轻轻摇晃孔板10次。孵育结束后再摇晃一次,用镊子移除孔中残留的组织碎片,并丢弃。
- 在倒置显微镜下,以40倍放大倍数,沿着孔底的划线移动,彻底计数各孔剩余水中的全部幼虫。应在同一天完成迁移到组织中幼虫的计数,以提高结果的可靠性。
4. 计数感染小鼠肠道内的S. ratti寄生虫
- 为分析肠道内的寄生虫负荷,在感兴趣的感染后天数(p.i.)处死小鼠,建议使用感染后第3至21天以获得完整的动力学曲线。在C57BL/6和BALB/c小鼠的小肠中,寄生虫负荷的峰值出现在感染后第6天14。采用过量CO2麻醉法实施安乐死。确认角膜反射和趾间反射消失后,进行颈椎脱位。
- 用消毒剂浸泡小鼠腹部区域,切开腹部皮肤,向两侧拉开皮肤以暴露前腹壁,沿中线剪开以打开腹腔。
- 在胃与近端十二指肠之间以及结肠与肛门之间剪断,完整取出整个肠道(见图3B)。用手轻轻将肠道拉出,并置于含有自来水的培养皿中。
- 沿纵轴将肠道剪开,通过在自来水中剧烈振荡至少10秒以冲洗粪便和黏液。此过程中会有少量成虫和部分L1幼虫被冲出,但在野生型(WT)小鼠中,具有活性的L4期和成虫期S. ratti寄生虫嵌入肠黏膜内,不会在此洗涤步骤中被清除。
- 如有需要,可进一步按以下方法分割肠道:
- 在第二个派伊尔集合淋巴结(Peyer's patch)之后(约2–3 cm处)剪断以分离十二指肠;通过两次剪切分离回肠,分别位于第一个和第二个派伊尔集合淋巴结处(约1–2 cm);在分离十二指肠和回肠后,剩余部分即为空肠。
- 将空肠分为三个等长部分,以便精确确定寄生虫的定位。在回肠与结肠之间分离盲肠;在盲肠之后剪断以分离结肠。大多数成虫寄生虫位于小肠的前三分之一段(见图3B)。
- 将清洗后的肠段转移至含有20 mL自来水的50 mL离心管中,水平放置于37 °C培养箱中孵育3小时。每小时剧烈振荡10秒。
- 孵育3小时后,将组织从水中取出。将离心管垂直放置于室温下,寄生虫在重力作用下于30分钟内自然沉降。
- 吸除上清液,保留约5 mL水。再用自来水补至25 mL,重复洗涤步骤。若分析小肠样本,建议再重复一次洗涤,以确保显微镜下具有良好的可视性。
- 当获得良好可视性后,吸除上清液至剩余约5 mL水,将液体转移至6孔板中,每只小鼠的肠内容物分配至两个孔,孔底已用划线标记,便于后续计数(方法同头部幼虫计数所述)。
- 在倒置显微镜下使用40倍物镜,沿孔底划线移动视野,计数雌性成虫寄生虫。在处死当日完成计数,并尽可能快速完成,因在水中长时间孵育会导致寄生虫死亡并解体。
注意:除第四期幼虫(L4)和成虫外,自感染后约第5天起也可在此检测到L1幼虫。L1幼虫体积显著更小但数量更多,应易于与L4和成虫寄生虫区分。
5. 在Wistar大鼠中维持S. ratti
注意:大鼠感染操作最好由两人完成,一人固定大鼠,另一人进行注射。为维持寄生虫生活周期,需使用4至8周龄的Wistar大鼠进行感染。
- 使用 Baermann 装置,按照前述方法,为每只大鼠准备一个含有 PBS/青霉素-链霉素配制的 2500 条感染性三期幼虫(iL3)的 1.5 mL 离心管。在移液操作之间需充分振荡,因为幼虫沉降迅速。
- 让幼虫在室温下静置沉降 20–30 分钟,然后用 0.5 mL 注射器(28G)吸除上清液,直至剩余约 200 µL 幼虫悬液。
- 进行感染时,由一人将大鼠置于肘弯处,轻柔而稳妥地固定其头部;另一人轻轻抓住 大鼠 flank 部位,将重悬的 iL3 悬液皮下注射至颈背部皱褶处。
6. 木炭培养法
- 在感染后第5天和第12天开始,将感染的大鼠饲养在含有多层纤维素且垫料较少的笼子中。用多层纤维素替代垫料的目的是便于收集粪便,相较于从垫料中收集粪便更为简便。
- 在感染后第6-8天和第13-15天,将大鼠转移至新的笼子中,转移后从原笼中捡取粪便颗粒,将同一笼子的所有粪便收集并合并至一个50 mL离心管中。收集 感染后2周内收集粪便,直至免疫应答建立前,以减少粪便中的幼虫负荷。感染后2周,通过CO₂处死大鼠2 过量麻醉。角膜反射和趾间反射消失后,实施颈椎脱位。
注意:免疫缺陷大鼠和蒙古沙鼠可维持 S. ratti 更长时间的感染17,18研究免疫反应及免疫调节过程中的变化 S. ratti 为了维持完整宿主免疫带来的选择压力,我们决定在免疫功能健全的宿主中持续进行该感染循环。 - 利用收集的粪便样本制备木炭培养物,以促进粪便中存在的L1幼虫发育为感染性第三阶段幼虫(iL3)。
- 用自来水预先浸泡活性炭。在将活性炭用于培养前,将其装入筛子中,并在流动的自来水下冲洗,直至水变清澈。始终保持活性炭湿润。使用前需至少浸泡24小时。
- 将粪便与预先浸泡过的活性炭按约1:1的比例混合。将混合物在平底玻璃烧杯中呈对角梯度排列,并覆盖另一层活性炭,最终达到1:2的比例。
注意:将粪便与预先浸泡的活性炭共同孵育,可模拟iL3在自然环境中发育所需的湿润土壤条件,同时防止真菌过度污染。 - 用透明薄膜覆盖玻璃容器,确保留有一些通气孔以允许空气流通。
- 在25 °C、约90%湿度条件下孵育6-7天,无需CO2确保培养箱内装有盛水容器以保持培养物湿润。如有需要,将培养物置于25 °C条件下培养最多14天。感染性第三期幼虫(iL3)将直接或间接发育。19 并停滞在iL3阶段直至感染。
结果
S. ratti 从感染部位迁移,主要移行至头部,随后进入肠道,但其迁移路径尚不明确。为研究该寄生虫在头部组织和肠道中的精确定位,将 1000 条感染性第三期幼虫(iL3)接种于 C57BL/6 小鼠的左后足垫。在感染后第 1 至第 14 天处死小鼠,并对前部和后部头部、脑组织及肺组织中的 S. ratti 寄生虫进行定量分析(图 2);同时对十二指肠、空肠、回肠、盲肠和结肠中的寄生虫数量进行定量分析(图 3)。
感染后第1天,首批L3幼虫到达头部,呈均匀分布(图2A)。此外,在感染后第1天,肺部也回收到少量幼虫(图2B)。感染后第2天,头部L3幼虫数量显著增加,平均达174 ± 13条,肺部平均为17 ± 1.7条。因此,约90%的L3幼虫来自头部,仅约10%来自肺部。大多数L3幼虫(平均93 ± 13.3条)定位于头部前部,另有约41 ± 4.7条定位于头部后部,约39 ± 5.8条定位于脑部。与此观察结果一致,既往研究报道,在经皮感染的C57BL/6小鼠中,感染后24小时即可在脑和脑脊液中检测到L3幼虫,48小时达到峰值20。与感染后第2天相比,感染后第3天L3总数明显减少,至感染后第4天时已无法从头部组织中回收到L3幼虫(图2A)。相应地,感染后第4天可在肠道中检测到S. ratti寄生虫的存在(图3A)。为精确定义寄生虫的定位,将肠道划分为不同区段,即十二指肠、空肠、回肠、盲肠和结肠(图3B)。在感染后第4天,大多数S. ratti寄生虫定位于十二指肠及空肠的前三分之二部分(图3A),该定位模式持续至感染后第6天。自感染后第7天起,大多数成虫定位于盲肠,并持续至感染后第9天(图3A)。至感染后第11天,盲肠内的寄生虫数量降至约20条,至感染后第14天则降至0。在所有检测时间点中,除感染后第11天约有5–11条寄生虫外,其余结肠部分均未回收到显著数量的寄生虫。尽管S. ratti寄生虫在感染后第4至第9天期间定位发生变化,且自感染后第7天起大多数成虫已从小肠排出,但自整个肠道回收的寄生虫总数在感染后第9天前保持恒定。L1幼虫的存活情况未进行定量分析,但自感染后第4天至第11天可检测到,峰值出现在第6天(数据未显示)。

图1:S. ratti 在大鼠和小鼠中生命周期的维持。 将2500条感染性第三期幼虫(iL3)皮下注射至Wistar大鼠颈背部皱褶处。感染后6–15天收集其粪便,与吸水后的活性炭混合,置于带梯度的装置中,并覆盖带有通气孔的透明薄膜。该培养物在25 °C、90%湿度条件下孵育6–7天。使用贝尔曼装置分离iL3,并用PBS/Pen-Strep洗涤3次。将1000条iL3通过皮下注射接种至实验小鼠后足垫。图示使用BioRender.com制作。图1由BioRender生成。Linnemann, L. (2024) https://BioRender.com/g80l370。请点击此处查看该图的高清版本。

图 2:随时间推移肺组织和头部组织中粪类圆线虫(S. ratti)的定量分析。C57BL/6 小鼠在后肢足垫皮下注射 1000 条感染性第三期幼虫(iL3)。在指定时间点处死小鼠,并计数(A)头部和(B)肺组织中的 S. ratti 寄生虫。每个符号代表一只小鼠的 L3 计数;柱状图显示平均值,误差线表示标准误(SEM)。图表展示了多次独立实验的合并数据。第 1 天:两次独立实验,每次实验每时间点 n=4;第 2 天:四次独立实验,n 值分别为 4、4、6 和 3;第 3 天:两次独立实验,n 值分别为 4 和 3;第 4 天:一次实验,n=5。(C)示意图卡通图显示用于分离的头部各区域。红色虚线表示切口路径。图 2C 使用 BioRender 绘制。Linnemann, L. (2024) https://BioRender.com/t83e660。请点击此处查看该图的放大版本。
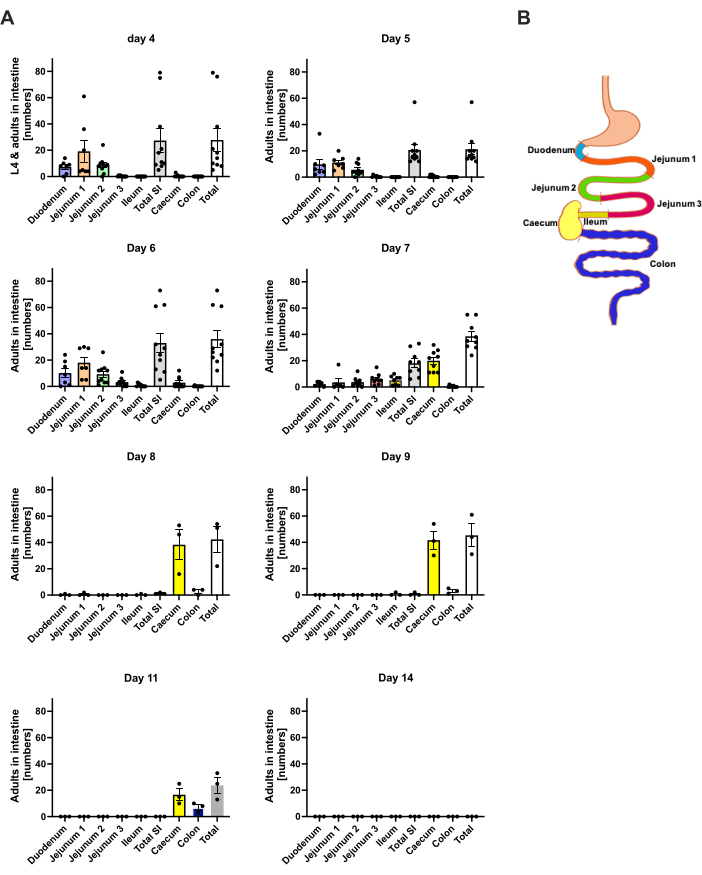
图3:随时间推移在肠道不同区域中S. ratti的定量分析。 雄性C57BL/6小鼠在后足垫皮下注射1000条iL3幼虫。(A)在指定时间点处死小鼠,并在以下区域计数除L1以外的所有S. ratti寄生虫:十二指肠、空肠1-3段、回肠、盲肠和结肠。(B)不同肠道区域的示意图概览。每个符号代表一只小鼠的寄生虫计数,柱状图显示均值,误差线表示标准误(SEM)。图中数据来自多个独立实验的合并结果。第4天:两次独立实验,小鼠数量分别为n=4和n=6;第5天:两次独立实验,n=4和n=6;第6天:两次独立实验,n=4和n=6;第7天:两次独立实验,n=6和n=3;第8至14天:一次实验,n=3。SI:小肠。图3B 使用BioRender绘制。Linnemann, L. (2024) https://BioRender.com/h27y297。 请点击此处查看该图的放大版本。
讨论
实验小鼠感染S. ratti是研究宿主在多个部位和免疫阶段对蠕虫感染产生保护性免疫反应机制的优良模型。通过使用不同的基因敲除(KO)小鼠品系以及细胞或细胞因子耗竭模型,可在急性蠕虫感染模型中研究特定免疫细胞、介质或受体的作用。通过定量检测头部及肠道内的寄生虫负荷,可区分免疫细胞和效应分子在寄生虫生活史不同组织和阶段中的功能。通过注射抗体耗竭特定细胞类型,可在组织迁移阶段结束后开始耗竭处理,从而特异性地研究这些细胞在肠道免疫应答中的作用。如有需要,可进一步将肠道细分为十二指肠、空肠、回肠、盲肠和结肠,以检测寄生虫定位或清除动力学中的细微变化。需要注意的是,即使在近交系小鼠中,此类感染实验的组间和组内变异程度也相对较高,这反映了寄生虫与宿主相互作用以及不同批次S. ratti L3幼虫感染效率差异所带来的变异性(见图2和图3)。为减少变异性,实验小鼠的年龄和性别应保持一致。此外,在比较KO小鼠与野生型(WT)小鼠时,强烈建议使用同窝出生的对照小鼠,而非来自独立繁殖群体的WT小鼠。尽管如此,只要使用足够的样本量,仍可获得可靠的实验结果,比较特定效应分子缺失或正常小鼠中的寄生虫负荷,从而清晰揭示参与抗S. ratti保护性免疫应答的免疫效应分子(详见文献6综述)。
S. ratti 与其他线虫感染模型(如亲缘关系较近的 S. venezuelensis 或 N. brasiliensis)相比,一个关键的区别特征是其幼虫在宿主体内的独特迁移路径。与具有肺部阶段生命周期的 N. brasiliensis 和 S. venezuelensis 不同21,22,23 ,S. ratti 主要绕过肺部,经由肌肉和皮肤组织迁移至头部8,12。感染后第2天存活的寄生虫中,仅有约10%存在于肺部。与此同时,S. ratti 在头部的分布主要集中于鼻额区域,这与以往的研究结果一致8。这些特性使 S. ratti 成为研究宿主-寄生虫相互作用的宝贵模型,特别适用于研究皮肤和肌肉组织以及引流淋巴结组织中的免疫应答,从而避免其他线虫感染模型中因显著肺部参与所导致的免疫反应掩盖或复杂化问题。值得注意的是,S. ratti 的第三期幼虫(L3)也曾在脑脊液20和脑组织中被检出(图2A),尽管感染引起的神经系统症状或死亡相对罕见,且在我们的动物设施中从未观察到此类现象。未来的研究或将阐明这些定位于脑部的寄生虫是否处于滞留状态,或是否存在通往肠道的路径。
类圆线虫属(Strongyloides)还具有在寄生世代之间形成自由生活世代的独特能力24。这种 S. ratti 的自由生活阶段,以及其通过孤雌生殖的方式,进一步促进了转基因幼虫的产生。通过对自由生活的雌虫进行显微注射,可获得表达模型抗原(如与绿色荧光蛋白融合的2W1S)的幼虫。尽管该表位在蜕变为成虫过程中会丢失,但该方法可用于追踪和鉴定肺部及肺引流纵隔淋巴结中的 S. ratti 特异性 CD4+ T 细胞25。这一技术为研究蠕虫感染背景下 CD4+ T 细胞的生物学特性以及抗蠕虫疫苗的开发提供了极佳的工具。
S. ratti 是一种多功能的模式生物,可用于研究具有组织迁移和肠道生活阶段的线虫寄生虫的免疫学特性。人类感染 S. stercoralis 的特征是由于存在自身感染而导致极强的慢性感染,这在免疫抑制宿主中可能进一步发展为播散性感染综合征,尤其是在接受移植后糖皮质激素治疗的患者中更为常见26。需要注意的是,自身感染和播散性感染这一特点在小鼠模型中难以模拟。S. ratti 感染的 RAG1 基因敲除小鼠或裸鼠5,27 均不易发生播散性感染。值得注意的是,已有研究建立了一种使用糖皮质激素处理的重度免疫缺陷小鼠(NOD.Cg-PrkdcscidIl2rgtm1Wjl/SzJ)感染 S. stercoralis 的播散性感染小鼠模型,该模型可能最终允许在小鼠中分析播散性感染综合征的某些方面28。
然而,利用小鼠感染 S. ratti 的研究表明,嗜酸性粒细胞和中性粒细胞在清除组织迁移期幼虫过程中发挥着不可替代的作用。在基因修饰小鼠中,若这些细胞被耗竭或缺失,会导致头部的 L3 幼虫数量显著升高8。尽管在组织迁移阶段,肥大细胞和嗜碱性粒细胞并非必需,但两者均有助于控制肠道内的寄生虫负荷。它们的缺失并不影响组织中 L3 幼虫的数量,但在感染后第6天会显著增加肠道内成虫 S. ratti 的数量12,29。进一步分析发现,缺乏嗜碱性粒细胞或仅缺乏结缔组织型肥大细胞的小鼠仍可按照野生型动力学完成感染清除。相比之下,同时缺乏结缔组织型和黏膜型肥大细胞的小鼠则可持续感染长达20周12。这些结果揭示了黏膜型肥大细胞在最终清除感染中的关键作用,凸显了该感染模型在阐明黏膜型肥大细胞于蠕虫感染期间功能的重要价值。进一步明确在特定免疫效应细胞缺失情况下 S. ratti 寄生虫肠道定位的潜在变化,将有助于更精确地定义这些细胞在抗蠕虫免疫中的功能。
此外,可利用该系统研究寄生蠕虫为促进自身存活而采用的免疫逃逸机制。研究表明,在 S. ratti 感染过程中诱导产生的 Foxp3+ 调节性 T 细胞的耗竭,或效应 T 细胞上调节性受体的缺失,均可在感染后第6天降低寄生虫负荷,并在整个感染过程中减少幼虫排出量15,16,30,31。此外,已明确肠道是免疫逃逸作用的主要靶组织,而白细胞介素-9(IL-9)介导的肥大细胞活化则是被抑制的免疫通路。最后,可通过内源性 IL-33 的抑制剂和增强剂,研究由组织来源的警报素细胞因子(如 IL-33)所介导的 ILC2 启动 2 型免疫反应的机制32。
通过贝尔曼法分离大量感染性第三阶段幼虫(iL3)为后续研究提供了可能 体外 研究。L3与免疫细胞或潜在药物候选物的共培养可直接用于研究其对L3存活率和运动能力的影响。 离体 感染小鼠分离细胞的再次刺激 S. ratti 抗原裂解物或活的L3幼虫可为研究多种细胞类型的细胞因子产生提供平台。最后,L3幼虫的蛋白质和脂质组分可用于鉴定 S. ratti-衍生的病原体相关分子模式或免疫调节效应分子
由于蠕虫感染在全球范围内仍然是一个重大的健康负担,进一步阐明蠕虫诱导的免疫反应以及寄生虫所采用的逃逸机制的研究对于改善治疗方案和开发预防策略(如疫苗接种)至关重要。S. ratti 感染小鼠为研究急性感染过程中蠕虫与宿主相互作用提供了一个多用途的模型。
披露
作者无利益冲突。使用语言模型 Perplexity AI 2024 对文稿草稿进行修改并优化表述。
致谢
本工作由 Jürgen Manchot 基金会和德国研究联合会(资助号:BRE 3754/6-1 和 BRE 3754/10-1)资助。 图1、图2C和图3B在BioRender.com上制作。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 50 ml 离心管 | Sarstedt, N<图片 替代文本="公式 1" src="/files/ftp_upload/67533/67533eq01.jpg" style="margin: auto;"/>mbrecht, DE | 6,25,47,254 | 50 ml https://www.sarstedt.com/produkte/labor/reagenz-zentrifugenroehren/roehren/produkt/62.547.254/ |
| BD Micro-Fine U100 胰岛素 0.5 ml | BD Bioscience | 7468077 | 0.5 ml https://www.bestimed.de/bd-micro-fine-insulinspritze-05-ml-u100-8-mm-100x05ml-324825.html |
| 离心管 | Sarstedt, Nümbrecht, DE | 72,706 | 1.5 ml https://www.sarstedt.com/produkte/labor/mikro-schraubroehren-reagiergefaesse/reagiergefaesse/produkt/72.706/ |
| 活性炭 | Roth | 0998.3 | 5 kg https://www.carlroth.com/de/de/aktivkohle/aktivkohle/p/0998.3 |
| Falcon 6 孔透明平底未处理细胞培养板,带盖,无菌 | 康宁 | 351146 | 6孔板 https://www.corning.com/emea/de/search.html?_cookie=false &351146&搜索初始目录 企业传播& 初始结果类型=产品 |
| 冷冻机 & 冰箱 | Liebherr-Hausgeräte, 罗斯托克, DE | ||
| Greiner Bio-One 24孔板ür 聚苯乙烯细胞培养物 | Fisher Scientific | 10177380 | 24孔 https://www.fishersci.de/shop/products/polystyrene-24-well-cell-culture-multiwell-plate/10177380#?keyword=24-well |
| Incidin Premium 湿巾 | Ecolab Healthcare | 100 10 279 | https://www.ecolabhealthcare.de/website/seiten/produkte/flaechendesinfektion/tuecher/incidin_premium_wipes.php |
| 培养箱 25°C | Heraeus Instruments,Hanau,DE | ||
| 培养箱 37°C | Heraeus Instruments,德国哈瑙 | ||
| 显微镜 | Helmut Hund, Wetzlar, DE | 4倍物镜,10倍目镜 | |
| Parafilm M | Parafilm | 11772644 | 4 英寸 × 125 英尺 https://www.fishersci.de/shop/products/parafilm-m-laboratory-wrapping-film-2/11772644 |
| 青霉素/链霉素(Pen-Strep) | Capricorn | PS-B | 100x https://www.capricorn-scientific.com/en/shop/penicillin-streptomycin-pen-strep-100x~p1205 |
| ROTI Fair 10x PBS 7.4 | Roth | 1105.1 | https://www.carlroth.com/de/de/fertigloesungen-tabletten-portionsbeutel/rotifair-10x-pbs-7-4/p/1105.1 |
参考文献
- Olsen, A., et al. Strongyloidiasis - the most neglected of the neglected tropical diseases. Trans Royal Soc Tropical Med Hygiene. 103 (10), 967-972 (2009).
- Buonfrate, D., et al. The global prevalence of Strongyloides stercoralis infection. Pathogens. 9 (6), 468(2020).
- Dawkins, H. J. S., Grove, D. I. Attempts to establish infections with Strongyloides stercoralis in mice and other laboratory animals. J Helminthol. 56 (1), 23-26 (1982).
- Abraham, D., et al. Strongyloides stercoralis: protective immunity to third-stage larvae inBALB/cByJ mice. Exp Parasitol. 80 (2), 297-307 (1995).
- Breloer, M., Abraham, D. Strongyloides infection in rodents: immune response and immune regulation. Parasitology. 144 (3), 295-315 (2017).
- Breloer, M., Linnemann, L. Strongyloides ratti infection in mice: immune response and immune modulation. Philosophical Trans Royal Society B. 379 (1894), 20220440(2024).
- Dawkins, H. J. S., Grove, D. I., Dunsmore, J. D., Mitchell, G. F. Strongyloides ratti: Susceptibility to infection and resistance to reinfection in inbred strains of mice as assessed by excretion of larvae. Int J Parasitol. 10 (2), 125-129 (1980).
- Ehrens, A., et al. Eosinophils and neutrophils eliminate migrating Strongyloides ratti larvae at the site of infection in the context of extracellular DNA trap formation. Front Immunol. 12, 715766(2021).
- Eschbach, M. L., et al. Strongyloides ratti infection induces transient nematode-specific Th2 response and reciprocal suppression of IFN-γ production in mice. Parasite Immunol. 32 (5), 370-383 (2010).
- Dawkins, H., Muir, G., Grove, D. Histopathological appearances in primary and secondary infections with Strongyloides ratti in mice. Int J Parasitol. 11 (1), 97-103 (1981).
- Tada, I., Mimori, T., Nakai, M. Migration route of Strongyloides ratti in albino rats. Jap J Parasit. 28 (4), 219-227 (1979).
- Reitz, M., et al. Mucosal mast cells are indispensable for the timely termination of Strongyloides ratti infection. Mucosal Immunol. 10 (2), 481-492 (2017).
- Viney, M. E., Lok, J. B. The biology of Strongyloides spp. WormBook. , 1-17 (2018).
- Reitz, M., et al. Interleukin-9 promotes early mast cell-mediated expulsion of Strongyloides ratti but is dispensable for generation of protective memory. Sci Rep. 8 (1), 8636(2018).
- Breloer, M., et al. Cutting edge: The BTLA-HVEM regulatory pathway interferes with protective immunity to intestinal Helminth infection. J Immunol. 194 (4), 1413-1416 (2015).
- Blankenhaus, B., et al. Foxp3+ regulatory T cells delay expulsion of intestinal nematodes by suppression of IL-9-driven mast cell activation in BALB/c but not in C57BL/6 mice. PLoS Pathogens. 10 (2), e1003913(2014).
- Niamatali, S., Nolan, T. J., Schad, G. A. Can Autoinfection be Provoked in the Strongyloides ratt/-infected Gerbil, Meriones unguiculatus. 59 (2), 149-152 (1992).
- Gardner, M. P., Gems, D., Viney, M. E. Extraordinary plasticity in aging in Strongyloides ratti implies a gene-regulatory mechanism of lifespan evolution. Aging Cell. 5 (4), 315-323 (2006).
- Viney, M. E. Developmental switching in the parasitic nematode Strongyloides ratti. Proc Biol Sci. 263 (1367), 201-208 (1996).
- Dawkins, H. J., Thomason, H. J., Grove, D. I. The occurrence of Strongyloides ratti in the tissues of mice after percutaneous infection. J Helminthol. 56 (1), 45-50 (1982).
- Takamure, A. Migration route of Strongyloides venezuelensis in rodents. Int J Parasitol. 25 (8), 907-911 (1995).
- Filbey, K., Bouchery, T., Le Gros, G. The role of ILC 2 in hookworm infection. Parasite Immunol. 40 (2), e12429(2018).
- Allen, J. E., Sutherland, T. E. Host protective roles of type 2 immunity: Parasite killing and tissue repair, flip sides of the same coin. Semin Immunol. 26 (4), 329-340 (2014).
- Dulovic, A., Puller, V., Streit, A. Optimizing culture conditions for free-living stages of the nematode parasite Strongyloides ratti. Exp Parasitol. 168, 25-30 (2016).
- Douglas, B., et al. Transgenic expression of a T cell epitope in Strongyloides ratti reveals that helminth-specific CD4+ T cells constitute both Th2 and Treg populations. PLOS Pathogens. 17 (7), e1009709(2021).
- Vadlamudi, R. S., Chi, D. S., Krishnaswamy, G. Intestinal strongyloidiasis and hyperinfection syndrome. Clin Mol Allergy. 4 (1), 8(2006).
- Viney, M., Kikuchi, T. Strongyloides ratti and S. venezuelensis- rodent models of Strongyloides infection. Parasitology. 144 (3), 285-294 (2017).
- Patton, J. B., et al. Methylprednisolone acetate induces, and Δ7-dafachronic acid suppresses, Strongyloides stercoralis hyperinfection in NSG mice. Proc Natl Acad Sci. 115 (1), 204-209 (2018).
- Reitz, M., Brunn, M. L., Voehringer, D., Breloer, M. Basophils are dispensable for the establishment of protective adaptive immunity against primary and challenge infection with the intestinal helminth parasite Strongyloides ratti. PLOS Neglected Trop Dis. 12 (11), e000699(2018).
- Blankenhaus, B., et al. Strongyloides ratti infection induces expansion of Foxp3+ regulatory T cells that interfere with immune response and parasite clearance in BALB/c Mice. J Immunol. 186 (7), 4295-4305 (2011).
- Hartmann, W., Blankenhaus, B., Brunn, M. L., Meiners, J., Breloer, M. Elucidating different pattern of immunoregulation in BALB/c and C57BL/6 mice and their F1 progeny. Sci Rep. 11 (1), 1536(2021).
- Meiners, J., et al. IL-33 facilitates rapid expulsion of the parasitic nematode Strongyloides ratti from the intestine via ILC2- and IL-9-driven mast cell activation. PLOS Pathogens. 16 (12), e1009121(2020).
重印与许可
