本研究中,我们介绍了一种用于鉴定致畸化学物的体外细胞检测方法。通过在人诱导性多能干细胞(iPS)报告细胞中检测成纤维细胞生长因子(FGF)/血清反应因子(SRF)信号通路的动态变化,并定量分析化学物对该信号通路的干扰程度,从而评估其致畸风险。
本文内容
摘要
摘要
发育毒性(Devtox)通常在动物模型中进行评估。然而,确保评估准确性的过程中存在一些挑战,例如由于物种间差异导致的假阴性结果,以及有关动物福利的伦理问题。因此,亟需建立新的测试系统以评估人类发育毒性,并帮助解决这些问题。我们提出假设:致畸物会干扰与发育毒性相关的、对形态发生至关重要的信号通路,而不论其分子靶点为何。为验证该假设,我们利用人诱导性多能干细胞(iPS细胞)构建了一种成纤维细胞生长因子(FGF)报告系统。该系统可定量检测化学物质引起的信号干扰,在已知致畸性和非致畸性化合物上的准确率达到83%。由于发育毒性相关信号活性随时间动态变化,因此相较于仅在单一终点进行测量,持续捕捉其动态变化更为重要。使用实时荧光素酶检测系统为可选步骤,但可提高时间分辨率并减少人工操作。从细胞接种到获取荧光素酶数据,整个测试可在1周内完成。
引言
某些化学物质会引起发育毒性(Devtox),包括生长迟缓、畸形、功能缺陷和死亡1。评估发育毒性对于确保药品和农药的安全性至关重要2。目前的发育毒性检测通常依赖多种动物模型。然而,由于物种间的差异,将动物模型的结果外推至人类时存在固有的局限性3。沙利度胺是一种著名的发育毒物,20世纪50年代末首次被用于孕妇以缓解妊娠晨吐。尽管在啮齿类动物中未观察到致畸性,但全球范围内报告了人类新生儿严重的肢体畸形。这一悲剧凸显了基于动物的安全性测试的局限性,并促使国际社会努力引入和修订发育毒性测试指南4。此外,动物福利问题以及动物实验所需的巨大时间和成本也引发了广泛关注。因此,亟需建立能够准确预测人类发育毒性的替代体外检测方法5。
本文提出一种基于关键胚胎发育信号通路干扰的体外检测方法,用于评估发育毒性物质6,7,8。该检测方法采用经基因工程改造的人诱导性多能干细胞(iPSCs),使其在血清反应元件(SRE)的调控下表达NanoLuc荧光素酶(Nluc)这一发光报告基因。SRE是血清反应因子(SRF)的结合位点,而SRF是成纤维细胞生长因子(FGF)信号通路中的转录因子。SRF可整合来自多种配体的信号,并调控超过200个基因的表达,这些基因在包括胚胎发育在内的多种生物学过程中发挥关键作用9。
在本实验中,报告细胞经受试化学品处理,并用 FGF 刺激以激活信号通路,并放大化学品可能产生的任何干扰作用。该实验的一个关键特征是通过检测发光强度的变化来捕捉信号活性的动态过程。由于信号活性随时间变化,单个时间点的终点测量可能不准确10。事实上,在24小时期间内进行七个时间点的测量显著提高了预测准确性,曲线下面积(AUC)值达到0.837。
测试化学品的施用浓度范围较广,可从 0.01 ng/mL 至 1000 µg/mL,具体取决于细胞毒性和溶解度。接种一个 96 孔板大约需要 1.4 × 10⁴ 个细胞。该检测方法的一个局限性在于,如果致畸化学品的作用靶点 在未分化的入源 iPS 细胞中不表达,则可能无法检测到此类化学品。此外,该检测可能无法捕捉到致畸性代谢产物。而且,它不能提供有关致畸毒性的详细作用机制或其特定结局的信息。
使用实时发光监测系统可进一步提高时间分辨率,减少连续测量所需的人工操作,并最大限度降低因反复处理培养板而产生的假象。本文介绍了一种基于信号干扰的Devtox检测详细实验方案。整个实验过程可在一周内完成。该方法可实现自动化,适用于化学物质筛选,并有助于减少动物实验。
方案
本研究使用了人类iPS细胞(201B7),其中Nluc基因在血清反应元件(SRE)的调控下被敲入腺相关病毒整合位点 使用CRISPR-Cas9系统靶向AAVS1位点图1A)。报告细胞(SRE-Nluc基因敲入的人iPS细胞)的基因编辑细节已在其他文献中报道6该方案主要分为三个步骤:1)化学物质的细胞毒性实验,以确定其最大暴露浓度;2)信号干扰检测;3)数据分析。
为尽量减少培养基蒸发的影响,使用96孔板中央的60个孔进行所有细胞培养实验,并在最外层孔及孔间区域加入水。孵育期间用透气密封膜覆盖孔板,以进一步减少蒸发。
1. 细胞准备
- 复苏冻存的报告细胞后,至少培养 2 周。按照每 7 天传代一次的周期进行维持,并使用传代后第 7 天的细胞进行检测。优化接种密度,使传代当天细胞融合度达到约 80%。
- 将单细胞以 2.0 × 10⁵ 个细胞/孔的密度接种于经细胞外基质(ECM)包被的六孔板中,每孔加入 2 mL 新鲜维持培养基,并补充 10 µM ROCK 抑制剂。
- 24 小时后,更换培养基,每孔加入 2 mL 新鲜维持培养基。
- 72 小时后,使用酶法解离试剂收集细胞,获得单细胞悬液。将细胞以 1.0 × 10⁵ 个细胞/孔的密度接种于经 ECM 包被的六孔板中,每孔加入 2 mL 新鲜维持培养基,并补充 10 µM ROCK 抑制剂。
- 24 小时后,更换培养基,每孔加入 4 mL 新鲜维持培养基。
- 96 小时后,使用酶法解离试剂收集细胞,制备为单细胞悬液。此细胞可用于报告基因检测。
2. 细胞毒性检测
- 初步试验
- 在用 ECM 包被的 96 孔板中,每孔加入 200 µL 新鲜维持培养基(含 10 µM ROCK 抑制剂),以 2.0 × 10⁴ 个细胞/孔的密度接种单细胞。用透气膜密封培养板。
- 24 小时后,每孔更换 200 µL 新鲜维持培养基,并用透气膜重新密封培养板。
- 72 小时后,每孔更换 100 µL 检测培养基,并用透气膜重新密封培养板。
- 96 小时后,每孔更换 100 µL 检测培养基。
注:若未达到 100% 汇合度,则终止检测。由于不同细胞系的生长速率可能不同,需优化接种密度,以确保检测当天达到完全汇合。 - 将待测化学品溶解于 检测培养基中,至其最大溶解度。
注:若使用二甲基亚砜(DMSO)作为溶剂,最终 DMSO 浓度不得超过 0.1%。 - 使用步骤 2.1.5 所得溶液,在检测 培养基中对测试化学品进行五点、五倍系列稀释。
- 每孔加入 11 µL 来自步骤 2.1.6 的化学品溶液。对于溶剂对照组,每孔加入含相同 DMSO 浓度的 11 µL 检测培养基。
- 48 小时后,将培养板在 25 °C 下孵育 30 分钟。
- 每孔加入 111 µL 预先平衡至 25 °C 的基于 ATP 的发光细胞活力检测试剂。对于空白对照,准备一孔含有 111 µL 检测 培养基和 111 µL 试剂的孔。
- 使用微孔板振荡器以 300 rpm 振荡培养板 2 分钟。
- 将 200 µL 混合液转移至黑色板中用于发光检测。将培养板在 25 °C 下孵育 10 分钟。
- 测定发光强度以估算细胞数量。
- 使用以下公式计算细胞活力:
细胞活力 (%) = (RLU_样品 − RLU_空白) / (RLU_溶剂对照 − RLU_空白) × 100
注:根据细胞活力决定后续步骤。若所有测试浓度下的细胞活力均>50%,则以最大溶解度浓度进入步骤 2.2;若细胞活力在测试浓度范围内跨越 50%,则使用细胞活力>50% 的最高浓度进行确定性试验;若所有浓度下细胞活力均<50%,则从较低浓度开始重复初步试验。
- 确定性试验
- 在用 ECM 包被的 96 孔板中,每孔加入 200 µL 新鲜维持培养基(含 10 µM ROCK 抑制剂),以 2.0 × 10⁴ 个细胞/孔的密度接种单细胞。用透气膜密封培养板。
- 24 小时后,每孔更换 200 µL 新鲜维持培养基,并用透气膜重新密封培养板。
- 72 小时后,每孔更换 100 µL 检测培养基,并用透气膜重新密封培养板。
- 96 小时后,每孔更换 100 µL 检测培养基。
注:若未达到 100% 汇合度,则终止检测。需优化接种密度,以确保第 4 天达到完全汇合。 - 根据初步试验结果(步骤 2.1),将待测化学品溶解于检测培养基中。
- 使用步骤 2.2.5 所得溶液,在检测培养基中对测试化学品进行九点、两倍系列稀释。
- 每孔加入 11 µL 来自步骤 2.2.6 的化学品溶液。对于溶剂对照组,每孔加入含相同 DMSO 浓度的 11 µL 检测培养基。
- 48 小时后,将培养板在 25 °C 下孵育 30 分钟。
- 每孔加入 111 µL 预先平衡至 25 °C 的基于 ATP 的发光细胞活力检测试剂。对于空白对照,准备一孔含有 111 µL 检测培养基和 111 µL 试剂的孔。
- 使用微孔板振荡器以 300 rpm 振荡培养板 2 分钟。
- 将 200 µL 混合液转移至黑色板中用于发光检测。将培养板在 25 °C 下孵育 10 分钟。
- 测定发光强度以估算细胞数量。
- 使用以下公式计算细胞活力:
细胞活力 (%) = (RLU_样品 − RLU_空白) / (RLU_溶剂对照 − RLU_空白) × 100 - 利用九个浓度的数据生成剂量-反应曲线,并根据曲线计算 IC50。
3. 实时报告基因检测(图1B)
- 在经细胞外基质包被的96孔板中,每孔加入200 µL新鲜维持培养基,以2.0 × 10⁴ 个细胞/孔的密度接种单细胞,并添加10 µM ROCK抑制剂。用透气膜密封培养板。
- 24小时后,更换为每孔200 µL新鲜维持培养基,并重新用透气膜密封培养板。
- 72小时后,更换为每孔100 µL检测培养基,并重新用透气膜密封培养板。
- 96小时后,更换为每孔100 µL含有1%发光底物的检测 培养基。
注意:若未达到100%汇合度,则终止检测。由于不同细胞系的生长速率可能存在差异,需优化接种密度,以确保在第4天达到完全汇合。 - 将待测化合物溶解于检测培养基中,浓度依据第2节确定。
- 以第3.5步制备的溶液为起始浓度,在检测培养基中进行八点、两倍系列稀释。
- 在完成第3.4步换液后2小时,向每孔加入11 µL来自第3.6步的化合物溶液。对于溶剂对照组,每孔加入含相同DMSO浓度的11 µL检测培养基。
- 在开始化合物处理(第3.7步)1小时后,向每孔加入含bFGF的检测培养基12 µL,使其终浓度为2 ng/mL。
- 在37 °C、5% CO2的加湿 环境中,使用实时发光检测系统连续测量发光信号48小时。
注意:以添加FGF的时间点作为时间零点(参见图1B)。
4. 数据分析(图1C)
- 通过将实验组与溶剂对照组进行归一化,计算发光强度的 log2 倍数变化(LogFC):
LogFC = log2(Luc_样本 / Luc_溶剂) - 对 48 小时时间序列的 LogFC 进行积分,以估算实验组与溶剂对照组曲线下面积(ABC)。
- 将所有浓度下的 ABC 值求和,以量化受试化学品引起的信号干扰总体程度。
- 进行受试者工作特征(ROC)曲线分析,以确定 Devtox 分类的阈值。
结果
根据我们的经验,细胞形态有助于判断实验操作是否正确。 图2A 显示了化学物质暴露前后细胞的典型共聚焦显微镜图像。实验结束时,几乎整个孔板表面均被细胞覆盖。 图2B 显示了活/死细胞染色的图像。经化学物质暴露后,被碘化丙啶(PI)染色的死亡细胞数量增加;然而,细胞存活率至少为50%,且几乎所有细胞均被钙黄绿素-AM染色。
表1列出了我们在先前研究中使用的测试化学品7,8。这些研究表明,基于成纤维细胞生长因子(FGF)信号在人诱导多能干细胞(iPS细胞)中的干扰情况,可更准确地区分发育毒性化学品。一项关键发现是,持续监测信号活性至关重要,因为信号活性随时间动态变化。使用实时发光检测系统可显著提高时间分辨率,并减少测量所需的工作量。本文中,我们描述了一种采用实时监测系统的实验方案。
图3A显示了在相同条件下、未添加受试化学物时,六个重复孔中发光强度在48小时内的变化。六条曲线几乎完全重合,表明孔间重复性良好。尽管在我们之前的研究中24小时的人工测量未能明确识别,但在48小时的实时测量中出现了两个明显的峰值——一个是在添加FGF配体后立即出现的初始峰,另一个则出现在约24小时处。 图3B显示了暴露于丙戊酸(VPA,一种已知的发育毒性物质)后发光强度的变化。VPA是一种组蛋白去乙酰化酶抑制剂,可导致神经管、心脏和肢体的发育缺陷¹¹。VPA以浓度依赖的方式干扰FGF信号通路。自动化实时测量系统比人工测量更准确地捕捉到了信号动态变化。
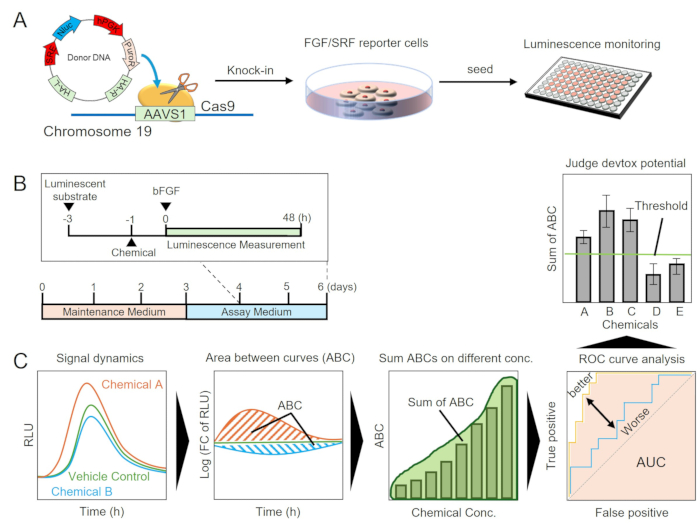
图1:FGF/SRF信号干扰检测。(A) 通过基因工程改造人iPS细胞以构建FGF/SRF信号报告细胞。构建的质粒包含位于血清反应元件(SRE)下游的Nluc基因、用于靶向敲入的同源臂,以及在人磷酸甘油酸激酶启动子控制下的嘌呤霉素抗性基因。经嘌呤霉素筛选后,成功建立SRE-Nluc报告细胞系。 (B) 实验时间安排。将报告细胞接种于96孔板中,培养4天至完全覆盖孔底表面。分别在开始检测前3小时和1小时加入发光底物和待测化合物。以添加FGF配体的时间设为0小时,随后连续测量48小时内的发光强度。 (C) 数据分析。记录暴露与未暴露于待测化合物的细胞中的信号动态,并相对于溶剂对照组进行归一化,通过计算曲线下面积之间的差异(ABC)来评估化学物引起的信号干扰程度。针对每种化学物在不同浓度下获得ABC值,并计算其总和。利用所有已知发育毒性物质的测试数据进行受试者工作特征曲线(ROC曲线)分析,以确定判断阈值。缩写:iPS = 诱导性多能干细胞;RLU = 相对光单位;AUC = 曲线下面积;FGF = 成纤维细胞生长因子;SRF = 血清反应因子;SRE = 血清反应元件;HA = 同源臂;L = 左侧;R = 右侧;PuroR = 嘌呤霉素抗性基因;hPGK = 人磷酸甘油酸激酶;Nluc = NanoLuc荧光素酶;ROC = 受试者工作特征曲线;ABC = 曲线间面积。请点击此处查看该图的放大版本。
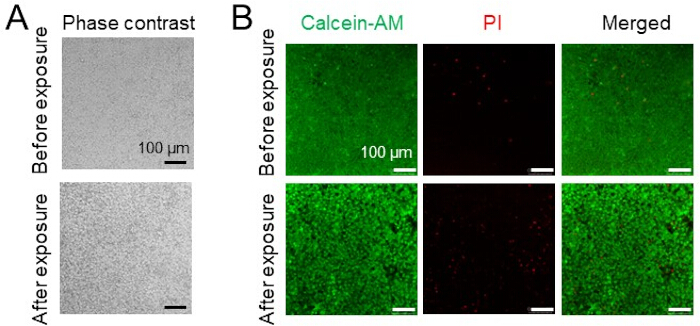
图2:细胞形态及活/死细胞染色。(A)细胞在暴露于测试化学品前(第4天)和暴露后(第6天)的共聚焦显微镜图像。测试结束后,细胞仍覆盖孔板表面几乎全部区域,表明测试运行成功。在检测结束时,若孔板几乎被完全覆盖,则表明测试成功。(B)暴露于测试化学品前后的活/死细胞染色结果。活细胞用Calcein-AM染成绿色,死细胞用碘化丙啶(PI)染成红色。细胞用Calcein-AM(绿色)染色,死细胞用碘化丙啶(PI,红色)染色。死细胞比例应小于总细胞数的< 50%。比例尺 = 100 µm。请点击此处查看该图的放大版本。
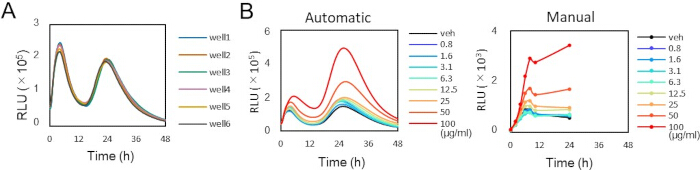
图3:发光强度动态的典型示例。(A)成纤维细胞生长因子(FGF)配体刺激后,使用实时发光检测系统测量的发光信号随时间的变化。每22分钟监测一次发光强度,持续48小时。六条不同颜色的曲线代表来自不同孔的信号。(B)使用丙戊酸(valproic acid)时手动测量与实时发光测量的比较。两种测量方法均观察到信号中断,而实时监测更清晰地捕捉到第二次峰值时增强的信号。缩写:RLU = 相对光单位;VPA = 丙戊酸;FGF = 成纤维细胞生长因子。请点击此处查看该图的放大版本。 请点击此处下载该表格。
| 测试化学品 | 缩写 | Cas 号 | 动物实验 (既往研究) | 体外实验 (本研究) | ABC 值总和 | 最大浓度 (µg/mL) |
| 全反式维甲酸 | ATRA | 302-79-4 | P | P | 65.9 | 0.0100 |
| 羟基脲 | HU | 127-07-1 | P | P | 63.3 | 149 |
| 甲氧基乙酸 | MAA | 625-45-6 | P | P | 225 | 683 |
| 氯化甲基汞 | MeHg | 115-09-3 | P | P | 77.7 | 1.20 |
| 甲氨蝶呤水合物 | MTX | 133073-73-1 | P | P | 80.5 | 5.00 |
| 水杨酸钠 | SA | 54-21-7 | P | P | 38.7 | 666 |
| 丙戊酸 | VPA | 99-66-1 | P | P | 63.3 | 100 |
| 6-氨基烟酰胺 | 6-AN | 329-89-5 | P | N | 24.9 | 1.00 |
| 硼酸 | BA | 10043-35-3 | P | N | 24.2 | 250 |
| 5-溴-2'-脱氧尿苷 | BrdU | 59-14-3 | P | P | 83.9 | 50.0 |
| 5,5-二甲基-2,4-恶唑烷二酮 | DMO | 695-53-4 | P | P | 50.3 | 840 |
| 氯化锂 | LiCl | 7447-41-8 | P | N | 29.8 | 250 |
| 5-氟尿嘧啶 | 5-FU | 51-21-8 | P | P | 92.4 | 2.65 |
| 环磷酰胺一水合物 | CPA | 6055-19-2 | P | N | 19.1 | 400 |
| 伊马替尼甲磺酸盐 | IMA | 220127-57-1 | P | P | 42.4 | 12.5 |
| 来那度胺 | LEN | 191732-72-6 | P | P | 94.7 | 35.0 |
| 泊马度胺 | POM | 19171-19-8 | P | P | 50.9 | 2.50 |
| 沙利度胺 | THA | 50-35-1 | P | P | 53.3 | 12.0 |
| 丙烯酰胺 | AcA | 79-06-01 | N | N | 37.1 | 454 |
| D-樟脑 | CAM | 464-49-3 | N | N | 27.5 | 50.0 |
| 盐酸苯海拉明 | DHM | 147-24-0 | N | P | 68.2 | 262 |
| 邻苯二甲酸二甲酯 | DMP | 131-11-3 | N | N | 24.4 | 100 |
| 青霉素G钠盐 | PenG | 69-57-8 | N | N | 22.1 | 1000 |
| 糖精钠 | SAC | 82385-42-0 | N | N | 34.0 | 1000 |
| 对乙酰氨基酚 | APAP | 103-90-2 | N | N | 22.3 | 20.0 |
| 阿莫西林三水合物 | AMX | 61336-70-7 | N | N | 28.4 | 25.0 |
| 西咪替丁 | CM | 51481-61-9 | N | N | 25.3 | 30.0 |
| 红霉素 | ERY | 114-07-8 | N | N | 20.0 | 15.0 |
| 氢氯噻嗪 | HCTZ | 58-93-5 | N | N | 21.9 | 20.0 |
| 柳氮磺吡啶 | SSZ | 599-79-1 | N | N | 30.8 | 100 |
| 化学品 | AUC | 阈值 | 敏感性 | 特异性 | 准确率 | |
| 30 种物质 | 0.819 | 37.9 | 0.778 | 0.917 | 0.833 |
表1:在动物实验中分类的发育毒性(Devtox)和非发育毒性(non-Devtox)化学物质,以及在有无FGF信号干扰情况下的结果预测。 缩写:P = 阳性(Devtox);N = 阴性(non-Devtox)。
讨论
胚胎-胎儿发育受到信号网络的严密调控12。尽管这些网络内部的反馈机制能够抵抗内部和外部干扰,但我们假设发育毒性化学物(Devtox chemicals)的作用可能超出此类缓冲能力。本文介绍了一种基于成纤维细胞生长因子/血清反应因子(FGF/SRF)信号通路过度干扰来评估发育毒性化学物的实验方案。该方法无法提供有关发育毒性分子机制的任何信息,例如化学物作用的靶蛋白,仅聚焦于FGF/SRF信号通路。然而,仍可高效地对发育毒性化学物进行分类,准确率达到83%,AUC为0.819(表1)。这可能是因为每条信号通路均与其他通路密切相关,共同构成密集的信号网络,而这些网络中的干扰最终会导致FGF/SRF信号的紊乱。
在构建报告细胞时,必须解决若干技术难题。NanoLuc(Nluc)的亮度约为源自萤火虫或海肾的常规荧光素酶的100倍,因而能够对信号变化进行持续的长期监测13。本研究使用了携带PEST序列的Nluc,以更准确地捕捉信号活性的动态变化。PEST序列可促进蛋白质降解。尽管Nluc蛋白本身较为稳定,半衰期超过6小时,但添加PEST标签后可通过泛素-蛋白酶体途径加速其降解,使其半衰期缩短至10–30分钟。此外,报告基因被敲入AAVS1位点,该位点是基因组中的"安全港",可确保基因表达不会被沉默,同时避免意外破坏重要基因14。
在评估检测方法时,为发育毒性(Devtox)和非发育毒性(non-Devtox)化合物选择参考化学物质至关重要。我们从ECVAM国际验证研究清单、ICH S5指南(包括沙利度胺)以及动物研究中选取了参考化学物质7。我们列出了30种发育毒性与非发育毒性化学物质,但仍需从可靠来源增加更多化学物质并进行测试。因此,本文报告的ROC阈值(Sum ABC = 37.9)应视为初步结果,尚需通过更大规模、独立的化合物集进行验证,以确保统计学上的稳健性。环磷酰胺(CPA)是三种产生假阴性结果的化学物质之一。CPA在肝脏中被羟基化为4-羟过氧环磷酰胺,CPA及其降解产物具有致畸性15。体外检测方法(包括本研究的方法)通常未考虑代谢过程,因此无法检出通过代谢激活而引发发育毒性的化学物质。这是本方法的一个局限性。除了依赖代谢导致的假阴性结果(如CPA)外,我们还观察到盐酸苯海拉明(DHM)出现假阳性结果。流行病学证据并未强有力地支持DHM与先天性畸形之间存在因果关联,但已有若干体外研究将其归类为发育毒性物质;这可能促成了本检测中对该物质的误判。相反,6-氨基烟酰胺(6-AN)未干扰FGF/SRF信号通路,因此被错误分类,提示其发育毒性机制可能通过本报告系统未能捕获的其他通路发挥作用。综上所述,这些实例支持扩展检测体系,纳入更多发育相关信号通路,以减少假阳性和假阴性结果的发生。
该实验受到多种因素的显著影响。其中一个因素是实验前的细胞准备。为尽量减少这一影响,细胞维持在每7天重复一次的培养周期中,以确保用于实验的细胞均在相同的生长条件下收集。细胞于周一接种,周四传代,其中一部分用于实验,另一部分重新接种以进行下一次传代。另一个影响因素是细胞在接触待测化合物时的密度。本实验仅在化合物处理当天细胞达到100%汇合度时进行。96孔板中的边缘效应是众所周知的问题。在本实验中,仅使用96孔板的内部60个孔,以避免边缘效应。除上述一般性考虑外,实验过程中还可能出现技术性变异。常见问题之一是溶剂对照组各孔之间的发光强度不一致,这可能是由于细胞接种不均或细胞质量欠佳所致。我们建议将细胞维持在约80%汇合度,以降低此类变异性,并在接种后的第二天检查各孔细胞生长的均一性。调整诱导多能干细胞(iPSC)的接种密度也有助于提高实验的可重复性。此外,过度的细胞死亡可能导致与实验信号无关的非特异性发光波动。因此,在实验结束时应评估细胞形态,以确保测量时细胞处于适当状态。在手动操作的实验中,每次时间点检测时将培养板从培养箱中取出,会使细胞短暂暴露于温度和CO2 水平的变化中。为限制这些环境波动,应快速且一致地完成检测操作。
该实验可手动操作,也可使用实时检测系统进行。手动方法无需特殊设备,但实时检测系统能够更精确地捕捉信号动态变化。在手动检测中未观察到的现象,在实时检测系统中清晰地呈现出荧光信号的两个峰。手动检测在夜间数据采集时存在12小时的间隔,可能导致第二个峰被低估或遗漏。这两个峰的出现可能与FGF信号的负反馈以及热稳定的FGF配体的存在有关。值得注意的是,某些化学物质对FGF信号的干扰在第二个峰中表现得比第一个峰更为明显(图3B)。
本方案代表了一种利用基于人iPSC的报告基因检测方法进行发育毒性化学物筛选的有前景策略,可定量评估FGF信号通路的干扰。过去几十年中,已开发出多种用于发育毒性的替代体外检测方法,包括小鼠胚胎干细胞试验(mEST)16、基于Hand1的胚胎干细胞试验(Hand1-EST)17以及ReProGlo18。与这些传统检测方法相比,本方法表现出更优的预测准确性。近年来,为响应国际上建立非动物测试体系的努力,一些替代策略已被引入,例如使用人胚胎干细胞或斑马鱼胚胎的方法。这些方法在发育毒性评估中也显示出较高的预测准确性。为进一步提升本检测方法的性能,整合其他参与胚胎发育的信号通路可能具有重要意义。在发育形态发生过程中还存在其他几个主要信号通路,例如Wnt/β-catenin、BMP/SMAD以及Hedgehog/GLI信号通路19。采用针对这些信号通路的不同报告细胞组合,可能有助于对多种化学物质进行更全面的评估。iPS细胞分化阶段对本检测方法检测灵敏度的影响(例如三胚层形成初期阶段)将是未来的研究方向。后续研究还可探索利用啮齿类或兔类干细胞系统进行跨物种验证,以实现与这些物种体内数据集的直接比较;而我们的主要研究重点仍将是人iPS细胞,以最大程度地提高对人类的适用性。
披露
作者声明无利益冲突。
致谢
本研究由日本学术振兴会(JSPS)[KAKENHI 资助编号 23K25021 和 25K03278]、日本厚生劳动省(MHLW)[项目资助编号 23KD1003 和 24KD1003]、日本科学技术振兴机构(KISTEC)以及日本医疗研究开发机构(AMED)[资助编号 JP23mk0101252 和 25mk0121314] 提供支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 微量离心管 | FastGene | FG-MCT015C | 测试化学品配制 |
| 15 mL 离心管 | VIOLAMO | 1-3500-21 | 细胞培养 |
| 8联排PCR管 | Watson | 137-333C | 测试化学品配制 |
| 96孔白色/透明底板,TC表面 | Thermo Fisher Scientific | 165306 | 细胞培养和发光检测 |
| 黑色平底96孔微孔板 | ASONE | 3-3321-04 | 用于细胞毒性检测中的发光测定 |
| Breathe-EASIER | TOHO | BERM-2000 | 透气性封膜 |
| CellTiter-Glo 发光细胞活力检测试剂盒 | Promega | G7572 | 细胞毒性检测 |
| Centrifuge 5702 R 离心机 | Eppendorf | 离心操作 | |
| ClipTip 300,带滤芯,无菌,带架 | Thermo Fisher Scientific | 94420513 | |
| ClipTip 50,带滤芯,无菌,带架 | Thermo Fisher Scientific | 94420253 | |
| Countess 3 FL 自动细胞计数仪 | Invitrogen | 细胞计数 | |
| Countess 细胞计数板载玻片 | Invitrogen | C10312 | 细胞计数 |
| Culture Sure DMSO | FUJIFILM Wako | 031-24051 | 化学品溶剂 |
| CultureSure Y-27632 | FUJIFILM Wako | 036-24023 | iPSC接种用ROCK抑制剂 |
| DMEM/F12 HEPES,无酚红 | Thermo Fisher Scientific | 11039-021 | iPS细胞培养包被液 |
| F1-ClipTip 多通道移液器,30 至 300 µL | Thermo Fisher Scientific | 4661180N | |
| F1-ClipTip 多通道移液器,5 至 50 µL | Thermo Fisher Scientific | 4661160N | |
| 滤芯 | Watson | ||
| Geltrex LDEV-Free 低生长因子基底膜矩阵 | Thermo Fisher Scientific | A1413202 | iPS细胞培养包被液 |
| HIENAI Mat 01R | COSMO BIO | HMAT01R | 细胞培养操作过程中维持板温稳定 |
| HIENAI Tube Warmer GX01 | COSMO BIO | TWGX013 | 实验操作期间保持培养基温度 |
| 人热稳定bFGF重组蛋白 | Thermo Fisher Scientific | PHG0367 | 报告基因检测中的FGF刺激 |
| 人诱导多能干细胞(iPS细胞) | 201B7 (RCB Cat# HPS0063, RRID: CVCL_A324) | RIKEN BRC 细胞库 | |
| 微孔板振荡器 | TAITEC | 0089532-000 | 细胞毒性检测中的板振荡 |
| 多功能酶标仪 | PerkinElmer | ARVO X4 | 发光检测 |
| Nano-Glo Endurazine 活细胞底物 | Promega | N2571 | 发光底物 |
| PBS (-) | FUJIFILM Wako | 166-23555 | 细胞培养 |
| Parafilm | AS One | 65-1681-93 | 用于包被板的储存 |
| Pipetto | eppendorf | ||
| WSL-1563 KronosHT | ATTO | 3510140 | 实时发光检测系统 |
| 试剂槽 | BMBio | BM-0850-1 | |
| STEMdif APEL2 培养基 | STEMCELL Technologies | ST-05275 | 检测用培养基 |
| StemFlex 培养基 | Thermo Fisher Scientific | A3349401 | 维持培养基 |
| 无菌水,无内毒素 | FUJIFILM Wako | 196-15645 | iPS细胞培养中的湿度控制 |
| 组织培养板 VTC-P6 | VIOLAMO | 2-8588-01 | 细胞培养 |
| TrypL Select 酶(1X),无酚红 | Thermo Fisher Scientific | 12563011 | 细胞培养 |
| 丙戊酸 | FUJIFILM Wako | 227-01071 | 测试化学品 |
参考文献
- Gilbert-Barness, E. Teratogenic causes of malformations. Ann Clin Lab Sci. 40 (2), 99-114 (2010).
- DeSesso, J. M. Future of developmental toxicity testing. Curr Opin Toxicol. 3, 1-5 (2017).
- Teixidó, E., Krupp, E., Amberg, A., Czich, A., Scholz, S. Species-specific developmental toxicity in rats and rabbits: Generation of a reference compound list for development of alternative testing approaches. Reprod Toxicol. 76, 93-102 (2018).
- Vargesson, N. Thalidomide-induced teratogenesis: History and mechanisms. Birth Defects Res C Embryo Today. 105 (2), 140-156 (2015).
- van der Laan, J. W., Chapin, R. E., Haenen, B., Jacobs, A. C., Piersma, A. Testing strategies for embryo-fetal toxicity of human pharmaceuticals. Animal models vs. in vitro approaches: A workshop report. Regul Toxicol Pharmacol. 63 (1), 115-123 (2012).
- Kanno, S., et al. Luciferase assay system to monitor fibroblast growth factor signal disruption in human iPSCs. STAR Protoc. 3 (2), 101439(2022).
- Kanno, S., Okubo, Y., Kageyama, T., Yan, L., Fukuda, J. Integrated fibroblast growth factor signal disruptions in human iPS cells for prediction of teratogenic toxicity of chemicals. J Biosci Bioeng. 133 (3), 291-299 (2022).
- Kanno, S., et al. Establishment of a developmental toxicity assay based on human iPSC reporter to detect FGF signal disruption. iScience. 25 (2), 103770(2022).
- Miano, J. M. Role of serum response factor in the pathogenesis of disease. Lab Invest. 90 (9), 1274-1284 (2010).
- Purvis, J. E., Lahav, G. Encoding and decoding cellular information through signaling dynamics. Cell. 152 (5), 945-956 (2013).
- Paradis, F. -H., Hales, B. F. Exposure to valproic acid inhibits chondrogenesis and osteogenesis in mid-organogenesis mouse limbs. Toxicol Sci. 131 (1), 234-241 (2013).
- Bosman, S. L., Sonnen, K. F. Signaling oscillations in embryonic development. Curr Top Dev Biol. 149, 341-372 (2022).
- Hall, M. P., et al. Engineered luciferase reporter from a deep sea shrimp utilizing a novel imidazopyrazinone substrate. ACS Chem Biol. 7 (11), 1848-1857 (2012).
- DeKelver, R. C., et al. Functional genomics, proteomics, and regulatory DNA analysis in isogenic settings using zinc finger nuclease-driven transgenesis into a safe harbor locus in the human genome. Genome Res. 20 (8), 1133-1142 (2010).
- Hales, B. F. Comparison of the mutagenicity and teratogenicity of cyclophosphamide and its active metabolites, 4-hydroxycyclophosphamide, phosphoramide mustard, and acrolein. Cancer Res. 42 (8), 3016-3021 (1982).
- Genschow, E., et al. The ECVAM international validation study on in vitro embryotoxicity tests: Results of the definitive phase and evaluation of prediction models. Altern Lab Anim. 30 (2), 151-176 (2002).
- Suzuki, N., Ando, S., Yamashita, N., Horie, N., Saito, K. Evaluation of novel high-throughput embryonic stem cell tests with new molecular markers for screening embryotoxic chemicals in vitro. Toxicol Sci. 124 (2), 460-471 (2011).
- Uibel, F., et al. ReProGlo: A new stem cell-based reporter assay aimed to predict embryotoxic potential of drugs and chemicals. Reprod Toxicol. 30 (1), 103-112 (2010).
- Sanz-Ezquerro, J. J., Münsterberg, A. E., Stricker, S. Editorial: Signaling pathways in embryonic development. Front Cell Dev Biol. 5, 76(2017).
重印与许可
