本方案描述了一种用于监测坏死性凋亡过程中溶酶体膜通透性的活细胞成像方法,该方法利用荧光探针检测溶酶体膜完整性和酸化状态的变化。
本文内容
摘要
摘要
坏死性凋亡(necroptosis)是一种程序性坏死形式,最终导致细胞膜破裂。本实验室及其他研究团队发现,溶酶体膜通透化(LMP)是该过程中的早期且关键事件,发生于细胞膜破裂之前。LMP的迅速发生会将强效的溶酶体酶(尤其是蛋白酶)释放到细胞质中,主动促进细胞死亡。活细胞成像技术为实时检测坏死性凋亡过程中LMP的发生提供了极为宝贵的工具。目前已有多种荧光染料被证实具有高效性:(1)pH敏感型LysoTracker染料可用于追踪溶酶体pH值的变化。荧光信号的减弱表明溶酶体pH梯度的丧失,这是溶酶体功能障碍的主要标志,可能是LMP的前兆或直接结果;(2)荧光素标记的葡聚糖微球可被细胞内吞并富集于溶酶体内,其向细胞质中的释放则提示LMP已完全发生并伴随内容物泄漏。在本研究中,我们观察到在诱导坏死性凋亡后,LysoTracker荧光信号逐渐减弱,同时葡聚糖荧光扩散至细胞质中。因此,活细胞成像方法使研究人员能够精确追踪溶酶体功能障碍发生的时间和程度,有助于更全面地理解坏死性凋亡的机制,并为潜在的治疗干预提供线索。
引言
坏死性凋亡是一种半胱天冬酶非依赖性的程序性细胞死亡形式,与多种炎症性疾病、神经退行性疾病以及肺、肝和心脏疾病相关。1,2,3该通路由一系列复杂的级联反应介导,最终导致受体相互作用蛋白激酶1(RIPK1)的活化,后者与受体相互作用蛋白激酶3(RIPK3)相互作用。 通过 其同型RIP相互作用基序(RHIM)结构域4,5,6RIPK3 进而招募混合谱系激酶样蛋白(MLKL)以形成坏死小体7,8MLKL 被 RIPK3 磷酸化后发生寡聚化,进而形成多聚体。MLKL 多聚体随后转位至细胞膜,最终导致细胞膜破裂和细胞死亡。9,10,11然而,MLKL 聚合物如何转位至膜区室并诱导膜破裂的机制尚未完全阐明。
溶酶体是负责降解和回收细胞物质的细胞器。其腔内含有蛋白酶、脂肪酶、核酸酶和水解酶,可降解大分子物质,从而维持细胞稳态12,13。因此,维持溶酶体的完整性及正常功能,对于确保有效的细胞清除、应激适应以及整体细胞存活至关重要14,15,16。近期研究表明,坏死性凋亡与溶酶体膜通透化(LMP)之间存在关联17,18,19。
我们最近的观察表明,溶酶体膜透化(LMP)是坏死性凋亡过程中的一个早期且重要的事件,发生在细胞膜最终破裂之前19。具体而言,MLKL在溶酶体膜上的聚合会迅速诱导LMP,从而释放出强效的溶酶体酶,特别是包括组织蛋白酶B在内的蛋白酶,进入细胞质。这些蛋白酶随后切割关键蛋白,促进细胞死亡。重要的是,抑制CTSB活性可显著保护细胞免于死亡19,20。这些数据表明,LMP是坏死性凋亡通路的关键调控因子。因此,在坏死性凋亡过程中监测LMP发生的时间对于理解其分子机制并确定潜在的治疗靶点至关重要。
许多传统的溶酶体膜透化(LMP)检测方法,如免疫染色、透射电子显微镜(TEM)或流式细胞术,均需要固定样本,或仅能提供终点数据21,22,23,因而无法捕捉溶酶体破裂的动态过程,尤其是在快速进展的坏死性凋亡背景下。相比之下,活细胞成像技术能够实现对坏死性凋亡过程中LMP的高分辨率、实时可视化观察。在本实验方案中,我们联合使用了两种互补的溶酶体标记物,并在HT-29细胞中诱导坏死性凋亡,以实时分析溶酶体膜的完整性19。该技术为研究坏死性凋亡中的LMP提供了一个可靠且可灵活调整的平台,同时也可用于其他导致溶酶体完整性受损的细胞应激形式的研究,特别是在疾病背景下或使用靶向溶酶体治疗药物时24,25,26。
方案
1. 细胞培养 - 第0天
- 在无菌玻璃底培养皿中加入2 mL DMEM(Dulbecco改良Eagle培养基),其中添加10%胎牛血清(FBS)和1%青霉素-链霉素(P/S),接种5,000个细胞。
- 将细胞在37 °C、5% CO2条件下孵育过夜。
2. 右旋糖酐微珠加载——第1天
- 将20 µL浓度为2.5 mg/mL的储备液加入新鲜DMEM培养基中,配制成含25 µg/mL葡聚糖绿色微珠的溶液,DMEM需添加10%胎牛血清(FBS)和1%青霉素-链霉素(P/S)。
- 吸除旧培养基,加入2 mL含有微珠的DMEM培养基(含10% FBS和1% P/S)。
- 将细胞在37 °C、5% CO2条件下孵育24小时,使微珠被内化至溶酶体中。
3. 溶酶体染色 - 第2天(实验日)
- 配制染色液:将 2 µL 的 1 mM Lysotracker 储存液加入 2 mL 新鲜的 DMEM 培养基中,该培养基需添加 10% 胎牛血清(FBS)和 1% 青霉素-链霉素(P/S),以获得终浓度为 1 µM 的染色工作液。用此染色液替换原有培养基。
- 在 37 °C、5% CO2 条件下孵育 2 小时,该孵育时间符合 Life Technologies 公司 Molecular Probes 产品使用指南中推荐的孵育时长(30 分钟至 2 小时)27。在本研究的实验中,HT-29 细胞孵育 2 小时后,可观察到明显的点状染色,且与葡聚糖珠共定位显著,表明染料荧光信号稳定。
注意:活细胞成像前 30 分钟开启共聚焦显微镜。
4. 共聚焦显微镜设置
- 按以下顺序开启共聚焦系统的各个组件:PC显微镜;扫描仪电源;激光电源;激光发射;Leica电源。
- 开启环境控制装置:The Cube——温度控制器;The Brick——CO2气体混合控制器。打开CO2和O2气源。
- 设置气体参数:
- 将温度控制器(The Cube)设置为37 °C。
- 将气体和湿度控制器(The Brick)设置为5% CO2和95%湿度。
- 按照图1所示组装成像室。
- 设置共聚焦物镜:
- 使用63倍/1.40数值孔径的油浸物镜。
- 将激发激光设置为488 nm(绿色荧光染料)和555 nm(红色荧光染料)。
- 对于488 nm激光,选择混合型(HyD)探测器;对于555 nm激光,选择PMT探测器。
注意:通过共聚焦软件中预设的通道分隔门控,最大限度减少了荧光串扰,确认各通道之间无信号交叉。
5. 染色后处理(LysoTracker 孵育后)
- 用 2 mL PBS 小心清洗细胞三次。
- 加入 2 mL 新鲜 DMEM,添加 10% FBS 和 1% P/S。
- 成像前在物镜上滴加一滴浸油。
- 将培养皿安装到显微镜载物台上。
- 调整激光强度和背景。
- 将激光强度调整至最高 3%,但不得超过 5%。
- 在显微镜软件中调节探测器增益以优化信号。
- 为最小化背景,调节对比度滑块。
- 获取未处理细胞的基线图像(在添加 T/S/Z 之前),作为对照条件。
- 将培养板放回超净台,加入 1 mL 含 10% FBS 和 1% P/S 的 DMEM,其中包含 100 ng/mL TNF-α(T)、500 nM SMAC 模拟物(S)和 100 µM Z-VAD-FMK(Z)。
- 继续在共聚焦显微镜上进行成像。
注意:T/S/Z 的浓度故意高于标准方案。这一选择旨在加速溶酶体膜通透化(LMP)和细胞死亡,以便在实时成像中更可靠地捕捉早期事件。
6. 图像采集设置
- 在采集软件中,设置参数如下:模式:xyt;格式:512 × 512;速度:400;缩放:3;线平均:1;线累积:3;帧累积:1;时间间隔:3 min;持续时间:8 h;启用自动对焦。
- 点击 开始 以启动延时采集。
结果
本方案中描述的操作步骤可用于通过共聚焦显微镜获取活细胞图像,以实时监测溶酶体膜通透性(LMP)。图1展示了从细胞接种到图像采集的实验流程示意图。在第0天,接种5,000个HT-29细胞,并在37 °C、5% CO2条件下培养24小时。24小时后(第1天),在相同条件下,将细胞与荧光素标记的葡聚糖微珠(25 µg/mL)共同孵育额外24小时。这些微珠通过内吞作用被细胞摄取,并转运至溶酶体,在其中积累并呈现为明亮的点状结构。在第2天(实验日),细胞用pH敏感型LysoTracker染料(1 µM)处理2小时,条件为37 °C、5% CO2。LysoTracker可在酸性区室(如晚期内体和溶酶体)中富集,并表现出强烈荧光。成像前30分钟,按照方案第4步所述,启动并稳定共聚焦显微镜系统,包括温度、气体和湿度控制器。随后组装成像腔室,如图2所示。实验中使用了488 nm(绿色)和555 nm(红色)激光器。
用LysoTracker孵育后,细胞用PBS小心洗涤三次,并加入2 mL含10% FBS和1% P/S的新鲜DMEM。将培养板转移至显微镜下,在63x/1.40 NA油镜物镜上滴加一滴浸油。随后调整激光强度和背景水平以优化成像条件,具体操作如方案第5.5步所述。我们最初的图像证实了LysoTracker和荧光素标记的葡聚糖存在稳定的点状结构,表明溶酶体完整(图3)。在进行T/S/Z扫描前采集基线图像,作为对照,未施加任何载体。
在建立初始成像和显微镜设置后,将培养板放回超净台中,并加入1 mL添加了10% FBS和1% P/S的DMEM培养基,其中含有100 ng/mL TNF-α(T)、500 nM SMAC模拟物(S)和100 µM Z-VAD-FMK(Z)。随后在共聚焦显微镜上继续成像,成像采集参数依据方案第6步所述进行。如图3、补充视频S1和补充视频S2所示,经T/S/Z处理的细胞中LysoTracker荧光信号的逐步减弱是溶酶体变化的早期指标。这一信号丢失随后或偶尔同时伴随着荧光素标记的葡聚糖从溶酶体向胞质溶胶的释放(由点状分布转为弥散分布),表明发生了溶酶体膜通透性增加(LMP)。在8小时时,几乎所有LysoTracker信号均已消失,然而许多细胞仍保留绿色点状结构并伴有胞质绿色信号,提示溶酶体pH梯度的丧失先于完全的LMP及内容物释放。
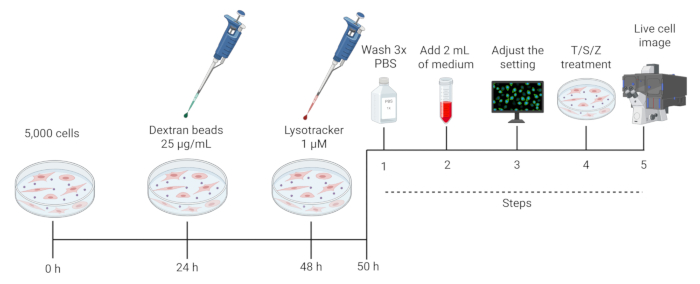
图1:实验方案的示意图。(在BioRender.com中创建)首先接种5,000个细胞(0 h),并孵育24 h;随后加入葡聚糖珠(25 µg/mL),继续孵育24 h。在48 h时加入LysoTracker(1 µM),孵育2 h。细胞用PBS洗涤三次(步骤1),然后加入2 mL含10% FBS和1% P/S的新鲜DMEM(步骤2)。调整显微镜设置(步骤3),接着用TNF-α(T)、SMAC模拟物(S)和泛caspase抑制剂Z-VAD-FMK(Z)处理细胞(步骤4),之后进行活细胞成像采集(步骤5)。请点击此处查看该图的放大版本。
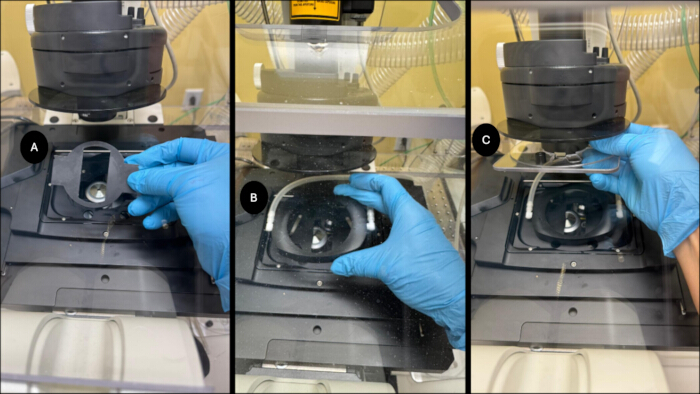
图 2:成像室装置示意图。(A)样品支架,(B)气体孵育室,以及(C)顶部盖板。请点击此处查看此图的放大版本。
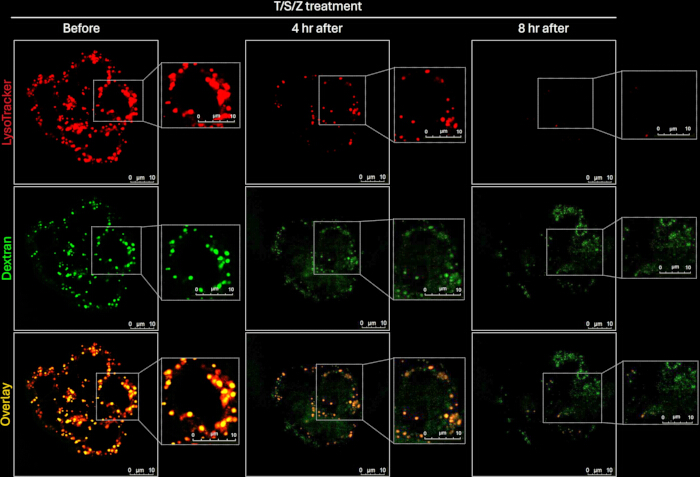
图3:HT29细胞在T/S/Z处理前后的代表性图像。 细胞经溶酶体红色染色剂(Lysotracker red)和葡聚糖绿色荧光微球(Dextran green beads)染色,并用肿瘤坏死因子-α(TNF-α,T)、SMAC类似物(SMAC mimetic,S)以及广谱caspase抑制剂Z-VAD-FMK(Z)处理。比例尺:10 µm。请点击此处查看该图的放大版本。
补充视频 S1:HT29 细胞与葡聚糖绿色微珠共孵育并经 T/S/Z 处理的时间推移成像。 对细胞监测超过 6 小时以评估细胞反应。请点击此处下载该视频。
补充视频 S2:用 LysoTracker Red 染色并经 T/S/Z 处理的 HT29 细胞的延时成像。 对细胞监测超过 6 小时以评估其细胞反应。请点击此处下载该视频。
讨论
本实验方案表明,联合使用LysoTracker和荧光素标记的葡聚糖珠可实现实时同步监测溶酶体pH值及内容物释放。代表性结果(图3、补充视频S1和补充视频S2)证实,未经处理的细胞中两种标记物的斑点信号均保持稳定。相比之下,T/S/Z处理显示出LysoTracker荧光强度逐渐减弱,同时葡聚糖信号从斑点状分布转变为弥散的细胞质分布,符合溶酶体膜通透化(LMP)的特征。
本方案中的一个关键初始步骤是选择用于图像采集的细胞。我们先前的数据表明,T/S/Z处理可在24小时内导致约80%的HT-29细胞死亡,其余20%的细胞则存活19。由于实验开始时溶酶体膜透化(LMP)尚未发生,因此最初选择细胞的依据是其形态特征以及对LysoTracker和葡聚糖珠均呈双阳性信号。尽管该方法无法预测哪些特定细胞将发生LMP,但我们持续观察到,在8小时的成像期间内,约60%的被监测细胞群体最终会表现出LMP。另一个挑战源于连续成像本身固有的特性。在每3分钟进行一次图像采集的过程中,细胞Z轴位置会发生轻微漂移,从而导致在整个实验过程中无法持续追踪同一溶酶体点状信号。此外,细胞在T/S/Z处理后会发生迁移并产生形态学变化28。因此,在整个成像期间无法追踪单个溶酶体的动态变化。在长期活细胞成像中,光毒性作为细胞死亡介导因素的潜在影响是一个重要考虑因素。长时间连续激发可能产生活性氧并损害细胞活力29,进而可能干扰真实的坏死性凋亡反应。为尽量减少这一影响,我们采用了低激光功率和短曝光时间。此外,使用了五倍浓度的T/S/Z以加速细胞死亡过程。然而,我们仍不能完全排除光诱导应激对所观察到的溶酶体变化的贡献。
该活细胞成像方案的一个重要优势在于能够实时监测溶酶体pH变化及溶酶体膜通透化(LMP),捕捉终点分析方法(如透射电子显微镜、流式细胞术和免疫染色)所无法观察到的动态事件。尽管透射电子显微镜(TEM)可提供高分辨率的结构信息,但无法记录LMP的时间进程。其他活细胞检测方法,如吖啶橙重分布实验30或半乳糖凝集素(galectin)点状结构形成31,也是监测溶酶体完整性的有效工具,但单独使用时各有局限性。吖啶橙实验反映的是染料从酸性细胞器向胞质溶胶的再分布,这一过程同时受到溶酶体pH变化和膜通透性的影响,因此不能直接对应于内容物的释放。类似地,半乳糖凝集素点状结构的形成反映了腔内糖链暴露于胞质溶胶,从而标记了溶酶体膜损伤31,32,但无法区分部分通透化与完全溶酶体破裂。
本方案的核心优势在于结合使用LysoTracker和葡聚糖珠,从而能够同时检测溶酶体酸化和内容物泄漏。该方法可对溶酶体功能性和结构完整性提供独特的双重读数。LysoTracker荧光减弱可作为溶酶体pH变化的指标,而葡聚糖的释放则直接反映溶酶体内容物的物理性泄漏。通过联合使用这两种标记物,我们显著提高了对部分和完全溶酶体膜通透化(LMP)的检测能力。因此,这种活细胞成像策略具有广泛的适用性。研究人员可根据需要将其适配于其他细胞类型,并结合不同的荧光探针,在多种实验条件下(包括药物或基因扰动)研究溶酶体的完整性。这一能力对于深入理解坏死性凋亡机制以及发现潜在的治疗干预靶点至关重要。
披露
作者声明无利益冲突。
致谢
王志高博士实验室的研究由美国国立卫生研究院(NIH)资助,项目编号为 R35GM158455 和 R01GM147474。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| HT-29 细胞 | ATCC | HTB-38 | 结肠癌细胞 |
| 35 mm 玻璃底培养皿 | MatTek Corporation | P35G-1.5-14-C-GRD | |
| CO2 培养箱 | PHCBI | MCO-170AICUVL | |
| 共聚焦显微镜 | Leica | SP8WLL | |
| 绿色葡聚糖微珠 | ThermoFisher | D1820 | 葡聚糖-荧光素,分子量 10,000,阴离子型,可与赖氨酸交联固定 |
| 杜尔贝科改良伊格尔培养基(DMEM) | Corning | 10-013-CV | |
| 胎牛血清(FBS) | Cytiva | SH30910.03 | |
| LysoTracker Red DND-99 | Invitrogen | L7528 | |
| 浸油型 HF | Electron Microscopy Sciences | 16915-01 | |
| 青霉素-链霉素双抗(P/S) | Sigma-Aldrich | P4333 | |
| 磷酸盐缓冲液(PBS) | Corning | 21-040-CV | |
| Smac 模拟物(S) | BV6, ApexBio, 目录号 | B4653 | 终浓度 1 mM |
| The Brick | Life imaging services | 13685 | 气体混合器 CO2 控制器 |
| The Cube | Life imaging services | CBO2A | 显微镜用温控培养室 |
| 肿瘤坏死因子 α(TNF-α - T) | Peprotech | 30001A100UG | 终浓度 20 ng/mL |
| z-VAD-FMK(Z) | ApexBio | A1902 | 终浓度 20 mM |
参考文献
- Shan, B., Pan, H., Najafov, A., Yuan, J. Necroptosis in development and diseases. Genes Dev. 32, 327-340 (2018).
- Kang, K., Park, C., Chan, F. K. Necroptosis at a glance. J Cell Sci. 135 (17), jcs260091(2022).
- Ai, Y., Meng, Y., Yan, B., Zhou, Q., Wang, X. The biochemical pathways of apoptotic, necroptotic, pyroptotic, and ferroptotic cell death. Mol Cell. 84, 170-179 (2024).
- Zhang, D. W., et al. RIP3, an energy metabolism regulator that switches TNF-induced cell death from apoptosis to necrosis. Science. 325, 332-336 (2009).
- He, S., et al. Receptor interacting protein kinase-3 determines cellular necrotic response to TNF-α. Cell. 137 (6), 1100-1111 (2009).
- Cho, Y. S., et al. Phosphorylation-driven assembly of the RIP1-RIP3 complex regulates programmed necrosis and virus-induced inflammation. Cell. 137 (6), 1112-1123 (2009).
- Sun, L., et al. Mixed lineage kinase domain-like protein mediates necrosis signaling downstream of RIP3 kinase. Cell. 148, 213-227 (2012).
- Zhao, J., et al. Mixed lineage kinase domain-like is a key receptor interacting protein 3 downstream component of TNF-induced necrosis. Proc Natl Acad Sci U S A. 109 (14), 5322-5327 (2012).
- Chen, X., et al. Translocation of mixed lineage kinase domain-like protein to plasma membrane leads to necrotic cell death. Cell Res. 24 (1), 105-121 (2014).
- Cai, Z., et al. Plasma membrane translocation of trimerized MLKL protein is required for TNF-induced necroptosis. Nat Cell Biol. 16, 55-65 (2014).
- Liu, S., et al. MLKL forms disulfide bond-dependent amyloid-like polymers to induce necroptosis. Proc Natl Acad Sci U S A. 114, E7450-E7459 (2017).
- Lawrence, R. E., Zoncu, R. The lysosome as a cellular centre for signalling, metabolism and quality control. Nat Cell Biol. 21, 133-142 (2019).
- Ballabio, A., Bonifacino, J. S. Lysosomes as dynamic regulators of cell and organismal homeostasis. Nat Rev Mol Cell Biol. 21, 101-118 (2020).
- Aits, S., Jaattela, M. Lysosomal cell death at a glance. J Cell Sci. 126, 1905-1912 (2013).
- Repnik, U., Hafner Cesen, M., Turk, B. Lysosomal membrane permeabilization in cell death: concepts and challenges. Mitochondrion. 19 (Pt A), 49-57 (2014).
- Alu, A., et al. The role of lysosome in regulated necrosis. Acta Pharm Sin B. 10 (10), 1880-1903 (2020).
- Werneburg, N. W., Guicciardi, M. E., Bronk, S. F., Gores, G. J. Tumor necrosis factor-α-associated lysosomal permeabilization is cathepsin B dependent. Am J Physiol Gastrointest Liver Physiol. 283, G947-G956 (2002).
- Vanden Berghe, T., et al. Necroptosis, necrosis and secondary necrosis converge on similar cellular disintegration features. Cell Death Differ. 17, 922-930 (2010).
- Liu, S., et al. MLKL polymerization-induced lysosomal membrane permeabilization promotes necroptosis. Cell Death Differ. 31, 40-52 (2024).
- Guicciardi, M. E., Miyoshi, H., Bronk, S. F., Gores, G. J. Cathepsin B knockout mice are resistant to tumor necrosis factor-α-mediated hepatocyte apoptosis and liver injury: implications for therapeutic applications. Am J Pathol. 159, 2045-2054 (2001).
- Aits, S., Jaattela, M., Nylandsted, J. Methods for the quantification of lysosomal membrane permeabilization: a hallmark of lysosomal cell death. Methods Cell Biol. 126, 261-285 (2015).
- Barral, D. C., et al. Current methods to analyze lysosome morphology, positioning, motility and function. Traffic. 23, 238-269 (2022).
- Huang, K., Jiang, X., Du, J., Zeng, H. Protocol for detecting lysosome quantity and membrane permeability in acute myeloid leukemia cell lines. STAR Protoc. 5, 103309(2024).
- Ferrari, V., et al. Lysosome quality control in health and neurodegenerative diseases. Cell Mol Biol Lett. 29, 116(2024).
- Otoda, T., Aihara, K. I., Takayama, T. Lysosomal stress in cardiovascular diseases: therapeutic potential of cardiovascular drugs and future directions. Biomedicines. 13, (2025).
- Cao, M., Luo, X., Wu, K., He, X. Targeting lysosomes in human disease: from basic research to clinical applications. Signal Transduct Target Ther. 6, 379(2021).
- Fisher, T. LysoTracker and LysoSensor probes. Thermo Fisher Scientific. , https://documents.thermofisher.com/TFS-Assets/LSG/manuals/mp07525.pdf (2013).
- Wang, Z., Jiang, H., Chen, S., Du, F., Wang, X. The mitochondrial phosphatase PGAM5 functions at the convergence point of multiple necrotic death pathways. Cell. 148 (1-2), 228-243 (2012).
- Kiepas, A., Voorand, E., Mubaid, F., Siegel, P. M., Brown, C. M. Optimizing live-cell fluorescence imaging conditions to minimize phototoxicity. J Cell Sci. 133 (4), jcs242834(2020).
- Eriksson, I., Vainikka, L., Persson, H. L., Ollinger, K. Real-time monitoring of lysosomal membrane permeabilization using acridine orange. Methods Protoc. 6 (4), 72(2023).
- Aits, S., et al. Sensitive detection of lysosomal membrane permeabilization by lysosomal galectin puncta assay. Autophagy. 11, 1408-1424 (2015).
- Hoyer, M. J., Swarup, S., Harper, J. W. Mechanisms controlling selective elimination of damaged lysosomes. Curr Opin Physiol. 29, 100590(2022).
重印与许可
