本方案提供了利用地中海涡虫(Schmidtea mediterranea)作为模式系统研究真菌感染过程中宿主-病原体相互作用的优化且详细的指南。该方法在先前使用人类真菌病原体感染涡虫的实验流程基础上进行了改进。 白色念珠菌,提供详细的指导以提高实验的可重复性和一致性。
方法文章
一种优化的实验方案 Candida albicans 感染在 Schmidtea mediterranea 研究真菌致病机制与宿主防御
* These authors contributed equally
本文内容
摘要
摘要
Candida albicans 是一种常见的人类机会性真菌病原体,可在无症状状态下定植于大多数人。尽管通常为良性共生菌,但因抗生素使用、免疫功能障碍或上皮屏障破坏所导致的菌群失调,可能引发真菌过度增殖和感染,其严重程度可从浅表黏膜疾病发展至危及生命的全身性念珠菌病。目前亟需新的临床前感染模型,以在不同感染阶段和可量化的宿主反应条件下,深入解析 C. albicans 在 体内 的致病机制。先前研究已确立扁形动物地中海涡虫 Schmidtea mediterranea 作为研究 C. albicans 感染过程中宿主-病原体相互作用的无脊椎动物宿主模型。S. mediterranea 完全依赖保守的先天免疫机制来抵御包括细菌和真菌在内的病原微生物感染。涡虫具有强大的再生能力以及易于研究的干细胞群体,使其成为在 体内 分析早期免疫应答、组织修复及病原体清除的可行模型。该模型支持对真菌毒力和宿主转录反应进行同步分析,为感染动态提供重要见解。本文介绍了一种经过更新的实验方案,包含详细的改进措施、标准化操作流程以及优化的 C. albicans 感染 S. mediterranea 步骤,旨在提高实验可重复性,并推动对真菌致病机制与宿主防御的系统性研究。
引言
Candida albicans 是一种常见的机会性真菌病原体,可无症状定植于50-70%的人群1,2,3。通常作为一种无害的共生菌,C. albicans 在微生物群失衡、使用抗生素、免疫抑制、上皮屏障破坏或存在医疗装置等条件下可能发生过度增殖,从而引发从浅表黏膜感染到危及生命的全身性念珠菌病等一系列疾病4,5。在免疫功能受损个体中——包括HIV/AIDS患者、接受化疗或免疫抑制治疗的患者、慢性病患者以及重症监护病房中的患者——死亡率可超过70%,凸显了侵袭性念珠菌病对公共卫生造成的重大负担6,7,8。全球范围内,侵袭性真菌感染每年影响超过650万人,仅美国与Candida相关的感染每年直接医疗费用就超过80亿美元9,10。尽管已有抗真菌治疗方法,但数十年来由C. albicans感染引起的发病率和死亡率基本未变,突显了深入理解真菌疾病中宿主-病原体相互作用的迫切需求。
C. albicans 采用多种毒力因子,以支持其在多种宿主环境中的定植、持续存在和致病过程。这些因子包括对宿主组织的黏附、免疫逃逸、细胞壁重塑、水解酶的分泌、形态可塑性以及生物膜的形成11,12,13,14,15,16。这些特性共同使 C. albicans 能够适应不同的宿主微环境,调节免疫反应,并抵抗抗真菌治疗16,17,18,19,20,21。阐明这些过程如何影响感染结局——包括宿主的发病率、死亡率以及病原体清除情况——对于开发更有效的预防和治疗策略至关重要。
为了研究这些宿主-病原体相互作用,我们建立了一个以涡虫Schmidtea mediterranea为宿主的模型系统22,23,24。该模型为研究真菌感染过程中宿主的多系统反应提供了一个多功能平台,利用基于浸泡的感染方法,使动物能够同步暴露于C. albicans。下文介绍了对该方案的更新版分步操作流程,旨在优化实验步骤、提高可重复性,并促进不同实验室之间的一致性实施。
涡虫是一类自由生活的无脊椎动物,具有卓越的再生能力,能够快速替换因损伤或感染而丢失的组织25。它们缺乏适应性免疫系统,完全依赖保守的先天防御机制——包括模式识别受体、抗菌肽、黏液分泌以及吞噬细胞——在数天内清除细菌和真菌病原体26,27,28,29。由于先天免疫是真核生物普遍存在的第一道防线,且在哺乳动物体系之外的研究仍不充分27,涡虫为在活体(in vivo)条件下以细胞和分子分辨率研究这些过程提供了理想模型。其再生能力由成体多能干细胞(称为新胚细胞)驱动,这类细胞约占成体细胞总数的30%,并在感染后的恢复过程中发挥重要作用23,30。这些特性使得S. mediterranea成为在基因、细胞、组织和个体等多个尺度上解析病原体毒力与宿主防御机制的强有力模型,使我们能够探究传统哺乳动物系统中难以研究的诸多科学问题。
此外,涡虫体型微小(通常体长为几毫米)、成本低廉且易于培养31,适合开展大规模实验,同时避免了脊椎动物模型所固有的经费、伦理和监管限制。与C. albicans类似,S. mediterranea具有可操作的基因组,其基因组已实现全序列测定和注释,并支持多种先进的分子与细胞技术——包括转录谱分析、高分辨率免疫组织化学和组织学染色,以及高效的RNA干扰(RNAi)技术32,33,34,35,36,37,38。这些工具可实现对感染过程中宿主与病原体反应的并行分析。
已有多种替代性临床前模型被用于研究真菌感染。无脊椎动物宿主如大蜡螟(Galleria mellonella)、秀丽隐杆线虫(Caenorhabditis elegans)和黑腹果蝇(Drosophila melanogaster),以及脊椎动物斑马鱼(Danio rerio),各自具有独特的实验优势,但也存在明显局限性。这些系统通常依赖存活率作为主要终点指标,因为感染会迅速导致宿主死亡,从而无法对疾病严重程度、恢复过程及多系统反应进行详细评估——而这些特征恰恰可被涡虫模型有效捕捉。
哺乳动物模型,如Mus musculus(小鼠)、Rattus norvegicus(大鼠)、Oryctolagus cuniculus(兔)和Cavia porcellus(豚鼠),在模拟人类生理方面更为接近,但受限于高昂的成本、较小的群体规模、伦理与监管要求,以及难以区分固有免疫与适应性免疫应答。此外,数十年来针对小鼠的真菌致病机制研究主要集中于晚期全身性感染39,40,41,42,43,常常忽视了早期事件,如上皮屏障破坏和黏膜过度增殖——这些正是人类真菌疾病最常见的起始途径44,45,46。
因此,研究宿主-病原体相互作用对于理解真菌毒力、宿主防御及疾病进展背后的生物学过程至关重要。侵袭性真菌感染正成为日益严重的全球性威胁,多种真菌已对所有主要类别的抗真菌药物产生耐药性。据估计,超过10亿人受到真菌感染的影响,而气候变化、抗菌药物的广泛使用以及免疫功能低下人群的不断增加,正在加速抗真菌耐药病原体的出现47,48,49,50。深入了解致病性真菌如何定植宿主并与其相互作用,对于开发新的预防和治疗策略至关重要。
以下介绍一种经过修订和标准化的系统性感染方案,用于研究S. mediterranea与C. albicans之间的相互作用,旨在提高实验可重复性,并系统性地探究真菌致病机制及宿主防御机制。此前的研究出版物中采用的是原始方案22,23,24。表1总结了本修订版中纳入的关键更新内容,包括真菌接种程序的改进、孔板体积的减少、明确的动物纳入标准、感染剂量与致死剂量的确定,以及动物饲养建议的更新。该实验流程为C. albicans的培养、通过浸泡暴露法感染涡虫,以及在症状性和致死性剂量条件下,利用定性和定量指标评估真菌毒力和宿主反应提供了详细指导(图1)。此处优化的实验步骤整合了经实验证实为影响感染动态和宿主结局的关键变量,从而提高了实验的可重复性,并支持对宿主–病原体相互作用进行系统性评估。
方案
本方案基于先前的方法22,23,24,建立了明确且标准化的操作流程,以提高实验的可重复性,并支持对S. mediterranea中真菌致病过程及宿主反应进行系统性研究。本方案的关键优化包括预设的动物纳入与排除标准、标准化的微生物制备流程,以及对宿主终点指标的全面评估。
所有操作必须采用适当的无菌和二级生物安全无菌技术进行。应始终穿戴标准实验室个人防护装备(PPE),包括手套、实验服和封闭式鞋履。涉及涡虫S. mediterranea的操作均依照机构关于无脊椎动物伦理使用的指导原则进行。
所有实验方案的优化内容均总结于表1中。材料表、表2列出了所有试剂、关键设备以及培养基、缓冲液和免疫染色配方。
注意:所有涉及无脊椎动物模型S. mediterranea的操作均应遵循动物福利的最高标准。S. mediterranea应饲养在模拟其自然生境的优化条件下。实验设计应尽可能减少潜在的疼痛或痛苦,确保研究全过程中的伦理对待。
1. 真菌培养
- C. albicans 菌株信息
- 标准 C. albicans 实验室菌株 SN25051 使用SN250作为所有实验的野生型菌株,该菌株可从真菌遗传资源中心公开获取(http://www.fgsc.net/)。SN250源自临床分离株SC5314,后者最初采集自一名播散性念珠菌病患者的血培养52.
- C. albicans 菌株以25%甘油冻存液形式保存于−80℃°C.
- 培养 白色念珠菌 用于感染的菌株
- 从低温保存菌种划线分离
- 使用无菌接种环,从−80℃保存的菌种中划线接种所需菌株°将C菌种接种至酵母浸出粉胨葡萄糖(YPD)(1% 酵母提取物,2% 蛋白胨,2% 葡萄糖;pH 6.8)琼脂平板。
- 30℃静置培养°72 小时
- 从低温保存菌种划线分离
- 准备过夜培养物
- 将单个菌落接种至4 mL无菌硼硅酸盐玻璃培养管(18 mm)中的液体YPD培养基中 × 150 mm)使用无菌涂布棒。
- 在相同条件下设置一个未接种YPD的阴性对照管。
- 松散盖上管盖以允许通气,于30℃过夜(16 h)培养 °在摇床培养箱中,220 rpm(轨道式)振荡培养。
注意:若阴性对照中出现微生物生长,应终止实验,并更换培养基和采用无菌技术重新开始。
- 细胞的收集与洗涤
- 采用无菌技术,将培养物转移至已标记的15 mL离心管中。
- 离心培养物5分钟,转速约3,000 × g 离心收集细胞。
- 小心移除YPD上清液,避免扰动沉淀。
- 将沉淀重悬于涡虫用水中(参见 表2 与所用YPD体积相等的组分混合液
- 通过涡旋充分混匀。
- 重复步骤 1.4.2-1.4.4 两次,以彻底去除培养基。
- 最后一次洗涤后,通过涡旋振荡将细胞沉淀重悬于新鲜的涡虫水中。
- 定量分析 白色念珠菌 细胞浓度
- OD 测量稀释方法
- 准备三支无菌的1.7 mL微量离心管,每管中加入1:20稀释(50 μL)的样品 µL 培养基 + 950 µL 涡虫水)或选择的其他稀释倍数。充分混匀。
- 准备一个含有1000的空白试管 µL型涡虫培养用水
- 分光光度法
- 将分光光度计设置为在 600 nm 处测量光密度(OD600).
- 用涡虫培养用水调零分光光度计。
- 测量 OD600 对每个稀释样品进行测量并记录数值。
- 取三次读数的平均值,乘以稀释倍数,以确定OD值600 的原始培养物。将OD600 细胞浓度
注意:每台分光光度计的光密度转换系数应通过实验经验确定。根据所使用的特定仪器,OD600 1 对应于大约 2 ×10⁷ C. albicans 细胞/mL53.
- OD 测量稀释方法
- 确定实验接种浓度
- 为每种实验条件制备所需接种物浓度。
注意:为确定对涡虫种群的有效剂量,特别是针对感染性或致死性终点,应至少进行三次生物学重复。文中提供了制备感染性和致死性接种浓度的代表性计算方法。 补充文件 1.
- 为每种实验条件制备所需接种物浓度。
2. 涡虫物种及培养
- 涡虫物种与培养
- 所有实验均使用地中海涡虫(S. mediterranea)的CIW4无性克隆系。
- 将涡虫群体培养于透明食品级塑料容器中,每容器加入1,500–2,000 mL的1×涡虫培养用水。
- 将容器置于20 °C黑暗环境中,盖子松盖以允许气体交换。
- 不要对涡虫使用抗生素处理。
- 群体维护与喂养
- 每周喂食一次新鲜过滤的牛肉肝泥。
- 每周清洁容器两次。
- 保持每容器200–400只涡虫的密度。前期研究已详细描述群体准备与长期维护的操作流程31。
- 实验前适应
- 实验感染前,将涡虫饥饿处理7–12天,以标准化其代谢状态和体型条件。
- 每个实验条件下每孔使用5–10只涡虫。确保所有条件(包括阳性和阴性对照)中涡虫数量相等。
- 动物体型选择
- 选择体长约为5 mm的涡虫,相当于每只动物约含5 × 10⁵个宿主细胞54。
- 避免使用小于5 mm的涡虫,因为该体型可能包含具有胚基或发育不完全的个体,可能导致结果不一致。
- 避免使用大于5 mm的涡虫,因为较大的个体不适合荧光免疫染色。
- 在建立感染剂量(ID50)和致死剂量(LD50)条件时,应使用体长约5 mm的涡虫。
注:为便于一致的体型筛选,可打印一个5 mm × 5 mm的参考网格,放入透明塑料文件夹套中,并置于透明涡虫容器底部。测量长度前确保涡虫完全伸展。
- 健康状况与纳入标准
- 关键步骤:使用前在体视显微镜下检查所有涡虫。
- 排除存在可见损伤或创伤的个体,包括以下情况:
- 存在胚基(无色素组织)或色素发育不完全。
- 色素异常,例如明显更深的区域。
- 组织缺失或受损。
- 病变或疤痕。
- 开放性伤口。
- 形态学异常或畸形。
- 任何慢性或无法愈合的状况。
- 排除具有发育异常的个体。
- 头部或尾部区域分叉或重复。
- 体形不规则或不对称。
- 光感受器数量异常(仅允许一对双侧对称的光感受器)。
- 咽部位置异常。
- 纤毛缺陷导致运动能力受损或滑行行为异常。
- 仅纳入体长约5 mm、发育完全且无可见损伤或异常的个体。
- 培养板准备
- 将符合所有纳入标准的健康涡虫转移至未经组织培养处理的6孔聚苯乙烯板中,每孔加入2 mL新鲜涡虫培养用水。
注:在感染前一天转移动物,使其适应新环境和种群密度。 - 为以下实验条件分配孔位:
- 阴性对照:未感染或模拟处理的涡虫。
- 阳性对照:感染野生型C. albicans的涡虫。
- 移除并更换全部液体,每孔加入2 mL新鲜涡虫培养用水,以确保各孔条件一致。
- 将符合所有纳入标准的健康涡虫转移至未经组织培养处理的6孔聚苯乙烯板中,每孔加入2 mL新鲜涡虫培养用水。
3. 感染建立
- 准备接种(参见补充文件1中的示例计算)
- 采用无菌技术,轻轻倾斜6孔板朝向操作者,将孔板中的全部水分移除。
- 向每个孔中加入计算体积的涡虫培养用水。
注意:每次处理一个孔,以防止动物干燥。 - 向每个孔中加入计算体积的C. albicans菌液。
注意:避免动物长时间暴露于空气中,因干燥可能导致应激并改变感染结果。
- 实验板的孵育条件
- 将接种后的6孔板置于室温下避光、静止的位置。
- 将实验用孔板与未感染的涡虫群体分开存放,以防止交叉污染。
- 记录接种日期和时间(定义为0小时)。
注意:避免放置在人员频繁活动或易受振动的区域(例如抽屉、仪器表面或繁忙的实验台面),因为移动可能使动物产生应激,干扰实验结果。 - 根据所需终点,将涡虫与C. albicans共同孵育最长72小时。
- 真菌细胞重悬
- 在每个时间点,轻柔地重悬已沉降的C. albicans细胞,同时避免扰动涡虫。
注意:时间(感染后小时[h]或天[d])指自初始暴露(0小时)起经过的时间。 - 在感染后24小时(hpi)
- 使用无菌的3 mL移液管,将孔板轻微倾斜朝向操作者。
- 吸出涡虫培养用水,并轻柔地将其滴加至孔内无动物区域,以混匀沉降的真菌层。
- 每孔重复此步骤5–10次,以打散沉降的真菌层,避免直接接触涡虫。
- 在重悬操作前后,建议在深色背景下观察真菌沉降情况以获得最佳可视性。
- 未感染的对照孔应在相同条件下进行重悬处理。
- 在48 hpi
- 重复上述重悬操作步骤。
- 所有重悬操作应在指定时间点前后±1小时内完成。
- 在每个时间点,轻柔地重悬已沉降的C. albicans细胞,同时避免扰动涡虫。
- 暴露结束(72 hpi)
- 在 72 hpi时,将涡虫轻柔转移至新的6孔板中,每孔含2 mL新鲜涡虫培养用水。
- 尽量减少真菌培养液的转移,使用尽可能小的液体体积进行操作。
- 动物转移后,移除所有旧水并更换为新鲜涡虫培养用水。
注意:操作动物及其组织碎片时应轻柔,避免机械损伤或额外应激。
4. 宿主终点评估
- 记录宿主结局
- 从感染后第1天(dpi)开始评估宿主结局,并持续每日观察,直至达到预定的实验终点。
- 使用标准化的0–3评分系统对宿主损伤进行量化(图2)。
评分0:与未感染对照组相比无变化(健康,无症状)。
评分1:轻度症状。
评分2:严重症状。
评分3:死亡。
- 宿主症状评估标准
- 评分0(无症状):
- 识别表现出正常形态、色素沉着、行为和反应性的个体,且相对于未感染对照组无任何可观察到的变化。
- 评分1(轻度):
当相对于无症状对照组观察到以下至少一种症状时,给予轻度评分。- 运动速度减慢或滑行行为异常。
- 部分或完全丧失趋光反应。
- 持续性或重复性身体收缩。
- 色素异常或不均匀(出现较亮或较暗区域)。
- 头部或尾部组织退化。
- 评分2(重度):
当动物仍存活但出现以下一种或多种症状时,给予重度评分。- 眼膜形成或单眼或双眼缺失。
- 完全头部缺失或明显的前部组织损伤。
- 咽前区域大面积组织缺失。
- 身体断裂为多个片段(头段、咽段或尾段)。
- 开放性伤口,伴或不伴黏液分泌或内部物质渗漏。
- 部分组织溶解导致结构完整性丧失。
- 呈“C”形体态、瘫痪或严重运动能力障碍。
- 评分3(死亡):
根据以下一项或多项标准判断死亡。- 完全组织溶解或整个动物解体。
- 完全丧失对刺激的反应。
- 无法恢复或再生。
注: 图2 提供了每种评分的代表性图像及定义特征,以确保宿主表型分类的一致性。
- 评分0(无症状):
5. 确定真菌暴露后宿主的存活情况
- 在感染后第3天,将涡虫轻轻转移至新的6孔板中,每孔加入2 mL新鲜的涡虫培养用水,避免将残留的真菌培养物转移至新板。
- 使用光学显微镜(≥10倍物镜)观察动物状态。
- 使用补充文件2中提供的标准化评分表记录宿主表型结果。
- 判定存活动物
- 根据以下一项或多项标准识别存活动物。
- 负趋光性。
- 对轻柔移液操作的扰动有反应。
- 身体结构完整。
- 稳定附着于培养板上。
- 根据以下一项或多项标准识别存活动物。
- 判定死亡动物
- 根据以下一项或多项标准识别死亡动物。
- 完全裂解或解体(仅残留碎片)。
- 身体呈透明状或内脏外露。
- 无任何运动或对刺激无反应。
- 无法再生(无芽基形成)。
- 根据以下一项或多项标准识别死亡动物。
- 移除死亡动物
- 仅在显微镜下确认动物已无生命活性后,方可移除死亡个体及碎片。
- 关键步骤:立即移除死亡动物,以防止交叉污染或影响存活率的准确测量。
- 若存在碎片或真菌残留,应将存活动物再次转移至含有洁净涡虫培养用水的新培养板中,以避免C. albicans的再次接种或生物膜形成。
注:在进行肉眼观察时,将6孔板置于深色背景上,以增强对比度,便于表型评估。
6. 真菌载量评估
- 菌落形成单位(CFU)定量
- 在预定的感染时间点,收集涡虫(每个条件每天5–10只)。应包括相匹配的未感染/模拟处理对照组以及野生型感染对照组。
- 用 2 mL 新鲜的涡虫培养水轻轻冲洗孔板两次,以去除背景干扰 白色念珠菌 细胞
- 将涡虫转移至无菌且标记好的1.7 mL或5.0 mL微量离心管中,彻底去除残留水分。
- 加入300 µ每管加入 L 新鲜的涡虫培养水。
- 使用无菌研杵充分研磨动物组织,直至无明显大块残余物(约30–45秒)。
- 对匀浆进行连续稀释(例如,1:10、1:100、1:1000)。
- 接种100–200 µ每种稀释液各取 L 涂布于添加 50 的 YPD 琼脂平板上 µ每种氨苄青霉素、利福平、链霉素和新霉素各 g/mL。使用无菌玻璃珠或无菌细胞涂布器均匀涂布。
- 接种后将培养皿直立放置在实验台上 5–10 分钟,以使液体充分吸收至琼脂中。
- 为每种稀释度和条件准备三个重复的培养皿。
- 在30℃下孵育平板 °C,48 小时。
- 计数菌落形成单位(CFUs),并乘以稀释倍数。
- 将菌落形成单位(CFU)数值归一化至涡虫数量,以计算每种条件下每只涡虫的平均CFU。例如,若在10⁻⁶稀释度下观察到100个菌落× 由5只动物匀浆液稀释后计算得出,每只动物含200 CFUs。
7. 免疫荧光抗-白色念珠菌 染色
- 染色的一般注意事项
- 除非另有说明,所有步骤均需在室温下轻轻振荡(100–140 rpm)进行。抗体详情及试剂来源见补充文件1。
警告:甲醛、十二烷基硫酸钠(SDS)和过氧化氢为危险化学品,必须按照机构安全规定操作。甲醛具有毒性且被归类为致癌物;SDS具有刺激性;过氧化氢为强氧化剂,可能引起灼伤。操作时应穿戴适当的个人防护装备(实验服、丁腈手套、包趾鞋和护目镜)。涉及挥发性试剂的操作应在经认证的化学通风橱中进行,并根据机构环境健康与安全指南妥善处理废弃物。
- 除非另有说明,所有步骤均需在室温下轻轻振荡(100–140 rpm)进行。抗体详情及试剂来源见补充文件1。
- 样本采集
- 从各实验条件和时间点收集动物样本。
- 将动物转移至含有2 mL涡虫培养用水的已标记20 mL闪烁瓶中。
- 吸除全部液体,用2 mL新鲜涡虫培养用水冲洗一次,再彻底吸除所有液体。
- 固定与通透
- 在含7.5% N-乙酰半胱氨酸(NAC)的1× PBS中处理动物3分钟以处死。
- 移除溶液,将动物在含0.3% PBSTx的4%甲醛中固定15分钟。
- 用1× PBS清洗样本两次。
- 在1% SDS中对样本进行通透处理15分钟。
- 用1× PBS清洗样本三次。
- 漂白
- 在1× PBS中加入6%过氧化氢,并在明亮LED光源下漂白4–12小时。
注意:若无法立即进行漂白,可将固定后的样本置于1× PBS中于4 °C保存最多1周,或使用100%甲醇脱水以实现长期保存。
- 在1× PBS中加入6%过氧化氢,并在明亮LED光源下漂白4–12小时。
- 封闭与抗体孵育
- 将动物转移至含有1× PBS的24孔板中。
- 在2.5% PBS-TB(含Triton X-100和牛血清白蛋白的PBS)中室温封闭4小时或4 °C封闭8小时,以阻断非特异性结合。
- 加入抗Candida一抗(以PBS-TB按1:500稀释),室温孵育4小时或4 °C孵育8小时。
- 移除一抗,用0.3% PBSTx每20分钟清洗一次,共清洗八次(总计约2.5小时)。
- 加入Alexa-568标记的山羊抗兔二抗(以PBS-TB按1:800稀释),室温孵育4小时或4 °C孵育8小时。
注意:需避光操作以防荧光淬灭。抗体溶液可重复使用。 - 移除二抗,用0.3% PBSTx每20分钟清洗一次,共清洗八次。
- 可选的载玻片封片
- 将动物放置于载玻片上,确保所有动物腹面朝上。
- 使用移液器吸除多余水分。
- 用滤纸边缘小心吸干样本周围的残留液体。
- 逐滴加入150–175 µL Gelvatol封片介质(成分见表2),直至完全覆盖样本。
- 小心盖上盖玻片,避免产生气泡。
- 封片后静置至少2小时,待Gelvatol完全固化后再进行成像。
- 将载玻片存放在阴凉避光处以长期保存。
- 成像
- 使用黄绿色激发光(~578 nm)进行样本成像,并观察橙红色发射光(~603 nm)。
- 采用2倍物镜观察整体动物的染色模式。
8. 故障排除
- 若感染结果不一致,使用野生型 SN250 或其他基准菌株,以每毫升 5–10 × 107 个细胞的增量进行剂量滴定实验。
- 每组至少进行三个生物学重复,每个重复包含 5–10 只动物。
- 设置阴性对照组和阳性对照组,以识别潜在问题,例如交叉污染、无菌操作失败、菌株活力问题或动物基础健康状况不佳。
- 完成剂量滴定实验后,合并重复组数据,计算每组的中位生存时间。
- 采用 Mantel–Cox log-rank 法进行两两比较分析生存差异。
- 使用 Kaplan–Meier 生存分析评估不同菌株或处理之间的死亡时间差异。
- 在亚致死剂量或感染剂量条件下,应分析宿主的症状性结局(如轻度或重度表型或真菌定植情况),而非仅依赖生存率。
- 比较不同剂量组的宿主反应,以确定后续实验所需的适宜感染剂量或致死剂量范围。
结果
本文介绍了一种更新的感染方案,用于用C. albicans感染涡虫(图1),并系统地量化宿主的感染结果(图2)。该优化后的实验流程可稳健评估多种感染参数,包括发病情况(症状性疾病的严重程度)、存活率(致死性)、真菌载量(菌落形成单位,CFUs)以及病原体定植的空间-时间动态(荧光免疫染色)。与大多数仅提供简单的存活/死亡二元读数的无脊椎动物感染模型不同,该涡虫模型能够捕捉更广泛的感染结果和宿主反应谱。涡虫可用于多种微生物攻击终点的研究,例如亚致死性感染引发的症状性疾病进展及后续恢复过程;也可用于生存率研究,包括致死剂量接种实验。这些特性共同凸显了涡虫作为一种灵活平台,在研究多种疾病表型下宿主-病原体相互作用中的广泛适用性。
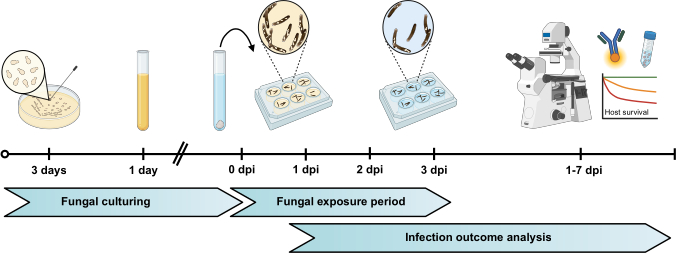
图1:涡虫真菌感染的实验设计。 感染流程的示意图,包括真菌培养物的制备、通过浸泡法对涡虫进行感染,以及感染后1至7天(dpi)宿主表型的纵向监测。本图使用图形设计软件生成。 请点击此处查看该图的放大版本。
真菌感染后,宿主根据标准化标准被分为四类结果——无症状、轻度疾病、重度疾病或死亡(图2A)。每类中更新的代表性表型,包括感染后出现的特异性行为异常(图2B),为疾病进展提供了可重复且易于识别的评估基准。该分类框架在广泛捕捉表型特征的同时,兼顾了结果的一致性和可量化性。
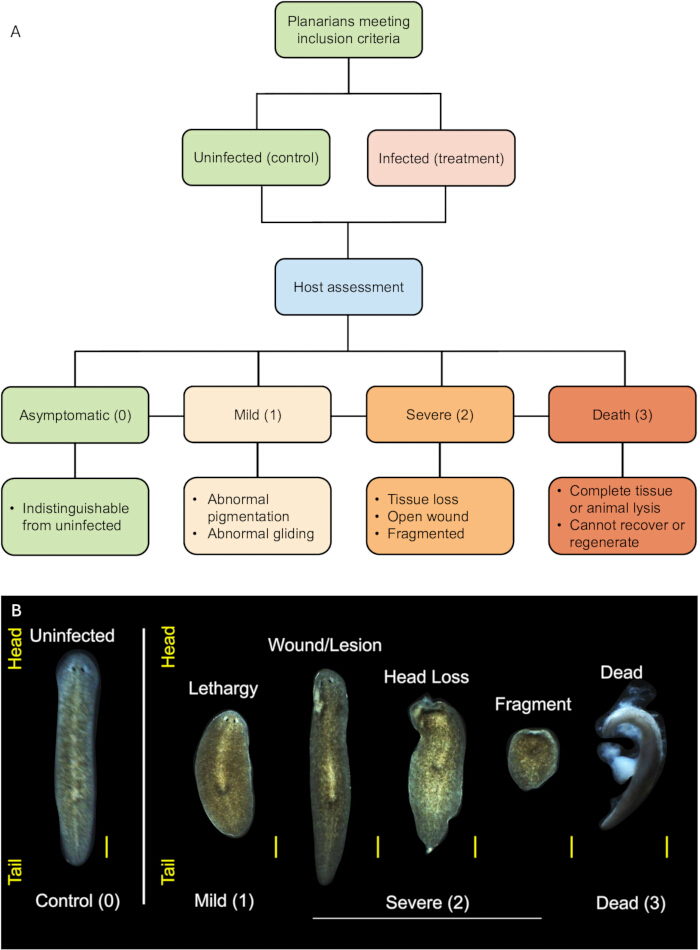
图2:在涡虫宿主健康状况评估中的标准化评分 C. albicans 感染 (A) 流程图概述了在0-3分量表上对涡虫宿主结果进行系统评分的方法。B未感染或感染了7.0×10的涡虫在感染后4天(4 dpi)的代表性宿主表型7 细胞/毫升野生型 C. albicans,展示标准化健康指数中的每个评分:0 = 无症状;1 = 轻度症状;2 = 重度症状;3 = 宿主死亡。比例尺,200 µm。物镜,1x。 请点击此处以查看此图的放大版本。
互补的检测方法——整体真菌负荷、发病率/死亡率评分以及时空成像——共同以剂量依赖的方式验证了感染状态和疾病严重程度。为验证感染情况并可视化疾病进展过程中的真菌定植,我们在感染后的多个时间点进行了免疫荧光染色。如图3所示,在感染后4天(dpi),真菌在上皮的定植显著减少;到感染后7天,ID50条件下几乎所有表面相关的真菌均被清除。这些观察结果表明,S. mediterranea能够快速启动有效的先天免疫反应,这与先前报道的结果一致22。
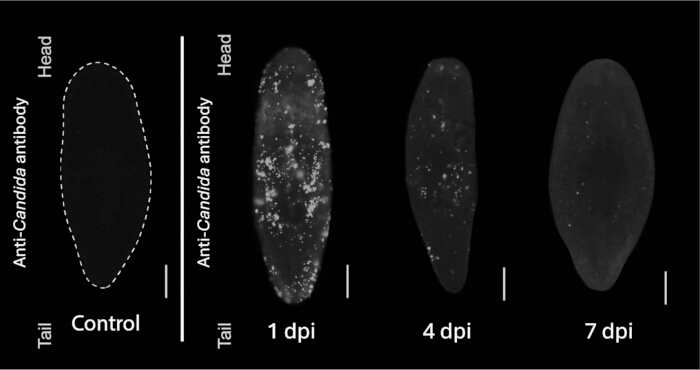
图3: 我免疫荧光检测 C. albicans 涡虫上皮表面的定植. 代表性图像显示感染后1、4和7天(dpi)的真菌定植情况。荧光信号通过抗真菌抗体标记显示与表面相关的真菌细胞假丝酵母 一抗和Alexa Fluor 568标记的二抗。比例尺,200 µm。物镜,2倍。 请点击此处以查看此图的放大版本。
除了对宿主定植的时空特征进行表征外,还采用标准化评分系统对宿主结局进行量化,以评估剂量依赖性的疾病严重程度。图4展示了不同暴露剂量下的感染后结局。未感染的对照组动物始终无任何症状。在约7.0×10⁷ C. albicans 细胞/mL(ID50剂量)的感染剂量下,约30%的感染动物无症状,50%表现出一种或多种症状,20%死亡。在约8.0×107 C. albicans 细胞/mL(LD50剂量)的感染剂量下,30%无症状,20%有症状,50%死亡。数据来自至少9次生物学重复实验的汇总结果,每次重复包含5–10只动物。不同感染剂量组间宿主结局类别的差异通过等距对数比(ILR)变换结合多变量方差分析(MANOVA)进行统计分析。
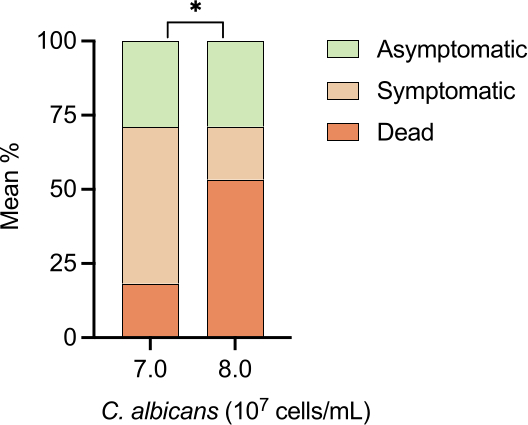
图 4:野生型 C. albicans 在感染剂量和致死剂量下感染后宿主的分类结局。 显示了在感染剂量(ID50)或致死剂量(LD50)接种浓度下暴露的涡虫于感染后第4天(dpi)的宿主结局。根据标准化的宿主健康评分系统,将动物分为无症状、有症状或死亡三类。共汇集了九个生物学重复(每个重复包含5–10只动物)进行分析。* p = 0.04,通过使用多元方差分析(MANOVA)结合等距对数比(ILR)变换确定。 请点击此处查看该图的放大版本。
图5 展示了随着白色念珠菌(C. albicans)浓度从7.0–8.5×10⁷ 个细胞/mL逐渐增加而呈现的剂量依赖性生存率变化。汇总分析显示,中位生存率从7.0×107 个细胞/mL时的90%下降至8.0×107 个细胞/mL时的50%,并在8.5×107 个细胞/mL时降至<25%。生存数据来自9次独立实验重复的合并结果,每次实验中每个剂量组至少包含45只动物。不同剂量组之间的统计学显著性采用Kruskal–Wallis检验,随后进行Dunn多重比较检验并应用Bonferroni校正,大多数组间比较均显示出显著差异。
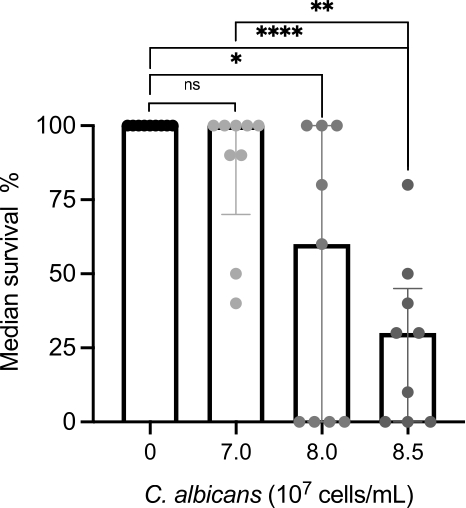
图 5:宿主中位生存期随野生型 C. albicans 感染剂量增加而下降。 显示了不同真菌浓度下宿主的中位生存期变化。每组实验重复9次,数据来自每组至少45只动物。各实验条件下的中位生存期及四分位距均已标出。ns = 无显著性差异;* p < 0.05;** p < 0.01;*** p < 0.001;**** p < 0.0001,通过Kruskal-Wallis检验结合Dunn's事后检验并进行Bonferroni校正确定。 请点击此处查看该图的放大版本。
Kaplan-Meier生存分析 (图6) 进一步证实了感染野生型的涡虫总体存活率为45% C. albicans 近似 LD50 剂量(8.0×10⁷ 细胞/mL),而未感染的模拟对照组总体存活率为100%(95%置信区间,30-70%)。生存曲线差异显著,代表宿主在LD下的存活情况50 条件下。生存曲线代表了9次实验重复的汇总数据,每组共45只动物。感染后对动物进行为期七天的监测。
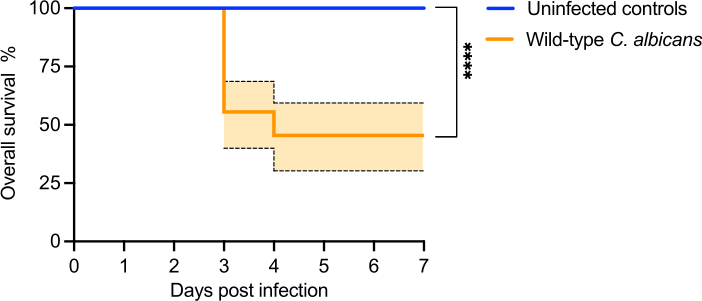
图6:以致死剂量的野生型 C. albicans 感染宿主导致宿主生存率下降。Kaplan-Meier 生存曲线比较了感染动物与模拟感染对照组的生存情况。每组共45只动物,合并来自9次重复实验的数据进行分析,其中5次为生物学重复(每次重复5只动物)。未感染对照组的总体生存率为100%,感染组动物的总体生存率为45.5%(95% 置信区间为30–70%)。**** p < 0.0001,通过Mantel–Cox log-rank检验确定。 请点击此处查看该图的放大版本。
综上所述,这些结果为在地中海涡虫(S. mediterranea)模型中分析白色念珠菌(C. albicans)真菌致病性及宿主防御建立了可重复且可量化的终点指标。
表1:S. mediterranea-C. albicans 感染实验方案的关键修订内容。 本优化感染实验方案中主要更新的系统特性汇总。请点击此处下载该表格。
表2:培养基、缓冲液和免疫染色配方。 本表列出了本实验方案中所用溶液的组成和配制细节,包括涡虫培养用水、培养基、固定和通透缓冲液、封闭溶液以及封片介质。提供这些配方旨在确保真菌培养、涡虫维持以及免疫荧光染色所需试剂的一致性制备。请点击此处下载该表格。
补充文件1:确定感染性和致死性接种浓度的示例计算 白色念珠菌. 示例计算用于确定体积 C. albicans 为在涡虫感染实验中达到目标感染剂量(ID₅₀)和致死剂量(LD₅₀)所需的储备培养物量。计算基于示例储备培养物浓度1.8 × 10⁸ 细胞/mL,每孔终体积为 2 mL。本示例展示了 LD₅₀ 剂量为 8.0 × 10 的制备方法7 细胞/mL,并包含所需储备液体积的计算及用涡虫水进行相应稀释的步骤。本指南旨在帮助用户根据不同的实验条件或储备液密度调整接种浓度。请点击此处下载该文件。
补充文件 2:评估涡虫宿主结果的标准化评分表 白色念珠菌 感染 该工作表为记录感染实验期间的宿主反应提供了标准化模板。每日使用定义的0–3健康指数对动物进行评分(0 = 无症状,1 = 轻度症状,2 = 重度症状,3 = 死亡)。该表格可用于记录实验条件、感染剂量、重复次数,以及个体动物或群体的每日表型评分。此模板有助于实现评分的一致性、疾病进展的追踪,以及对发病率和存活结果进行后续统计分析。请点击此处下载此文件。
讨论
改变野生型 C. albicans 的感染剂量可在 S. mediterranea 中产生可重复的、剂量依赖性的发病率差异,突显该模型在定量评估真菌毒力方面的敏感性。本方案概述了在实验室维持的涡虫群体中确定基础感染剂量和致死剂量的策略,并提出了通过浸泡法建立系统性感染成功的判定标准,结合宿主健康评分与菌落形成单位(CFU)定量及免疫染色法测定真菌负荷。
通过系统性优化,确定了多个对实现稳定感染动态和可重复宿主结果至关重要的实验参数。除接种浓度外,涡虫体型、种群密度以及表面积与体积之比等因素也显著影响感染的进展和严重程度。本文引入的改进措施——包括标准化纳入标准、受控的感染条件以及详细的终点评分方法——显著提高了实验的可重复性,并支持在不同实验及不同实验室之间进行有意义的比较。
涡虫兼具实验易操作性与生物学复杂性的罕见优势,使得在多细胞生物体内开展宿主-病原体相互作用的in vivo研究成为可能。其体型大小便于快速进行疾病表型的宏观评估,包括运动能力缺陷、形态学变化及存活情况;同时,整体免疫染色技术可实现对整个生物体范围内宿主反应的细胞分辨率可视化观察。与细胞培养系统不同,涡虫模型能够在完整生物体中实时分析真菌与多种组织的相互作用。此外,本实验方案支持多系统联合分析,可用于研究上皮、神经和免疫系统等不同功能区之间的协同响应。这些优势——结合低成本、极少的伦理限制以及与高通量筛选的兼容性——使涡虫成为研究真菌致病机制的一种强大且实用的替代宿主模型。
涡虫模型也存在固有的局限性。由于缺乏适应性免疫系统,无法分析由T细胞和B细胞介导的过程,也不能研究适应性免疫记忆。其与哺乳动物宿主在生理上的差异——包括体温、组织结构和器官排列——限制了对某些哺乳动物疾病进展过程的重现程度。此外,涡虫强大的再生能力虽然在研究组织修复方面极具价值,但可能使感染表型的解读变得复杂,因为加速的伤口愈合可能掩盖病原体所导致损伤的全部程度。
浸泡感染方案的一个主要优势在于,它能够从定植的最早阶段起,同时评估病原体行为和宿主反应,并模拟人类真菌致病最常见的途径——上皮过度生长及屏障破坏。此外,通过简单地向孔板中加入或移除含有 C. albicans 的培养基,即可实现真菌攻击期的快速启动与终止。在病原体方面,该系统支持在不同剂量、菌株和条件下对定植、组织侵袭和致死性进行定量评估。在宿主方面,涡虫模型便于开展生化、细胞和遗传学分析,以研究上皮屏障完整性、伤口愈合、应激反应以及天然免疫激活。该平台还具有良好的可扩展性、成本效益高,并且完全兼容RNAi介导的基因扰动,可用于系统性探究参与防御、再生及组织稳态的宿主通路34,35,55。
总体而言,该实验方案具有广泛的应用前景,包括病原体毒力的高通量筛选、突变菌株文库的检测、抗菌活性的评估、不同微生物物种间的比较研究,以及对活体宿主中发病率和死亡率的全面评估。该方法还支持对保守的先天免疫通路和再生机制进行深入分析。通过时间分辨监测感染与恢复过程,可精细观察组织如何抵抗、响应并修复真菌侵染所造成的损伤。与其他传染性疾病动物模型相比,涡虫模型具有独特而重要的地位——在伦理上更易被接受,实验上灵活多样,且具有丰富的生物学信息。因此,该平台可作为还原性研究与综合性体内研究之间有效的桥梁 体外 系统及更复杂的脊椎动物模型,推动了真菌致病策略与宿主保护机制的发现。
披露
C.J.N. 是 BioSynesis 公司的联合创始人,该公司致力于开发生物膜感染的诊断和治疗方法。其他所有作者均声明无竞争利益。
致谢
作者感谢Nobile、Oviedo和Hernday实验室的所有成员就S. mediterranea-C. albicans感染模型进行的深入讨论,并感谢Edelweiss Pfister在实验室管理和涡虫维护方面提供的支持。本研究工作由美国国立卫生研究院(NIH)下属的国家普通医学科学研究所(NIGMS)资助,项目编号分别为C.J.N.获得的R35GM156045和R35GM124594,以及N.J.O.获得的R35GM158501和R01GM132753。本研究还得到了Kamangar家族对C.J.N.设立的捐赠讲席基金的支持。N.M.S.的研究得到了细胞与生物分子机器中心(CCBM)美国国家科学基金会(NSF)科学研究卓越中心(CREST)奖学金的支持,项目编号为NSF-HRD-1547848和NSF-EES-2112675。
资助方在研究设计、数据收集与分析、数据解释、论文撰写以及决定发表结果方面均无任何作用。N.M.S. 感谢使用 ChatGPT 辅助编辑论文(检查拼写、语法、格式和句子结构)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.7 mL 微量离心管 | VWR/Genemate | 490004-436-BOXOF500 | 透明,500片装盒 |
| 20 mL 闪烁瓶 | Fisher Scientific | 12-100-006 | 用于免疫染色的透明玻璃瓶 |
| 24孔未处理聚苯乙烯板 | Fisher Scientific | 08-772-51 | 免疫染色 |
| 5.0 mL 微型离心管 | Eppendorf/Sigma Aldrich | EP0030119487-200EA | 透明,200 片装盒 |
| 6孔未经处理的聚苯乙烯板 | Fisher Scientific | 08-772-49 | 感染实验 |
| 琼脂 | VWR | 89405-066 | YPD培养基用细菌学级 |
| 涂抹棒 | 赛默飞世尔/普里敦 | 22-029-491 | C. albicans 培养 |
| BioRender | BioRender 公司 | N/A | 用于生成示意图的图形设计软件 |
| 氯化钙(CaCl2) | Sigma-Aldrich | C5080-500G | 涡虫培养用水/1× Montjuïc 盐 |
| Candida albicans 多克隆抗体 抗兔IgG | 赛默飞世尔科技 | PA1-27158 | 免疫染色 |
| 离心管 | VWR | 89039-664 | C. albicans 收获 |
| 培养管,硼硅酸盐玻璃,18×150 mm | VWR | 47729-583 | C. albicans 培养 |
| 比色皿 | Fisher Scientific | 14-955-127 | 测量培养物的光密度 |
| 葡萄糖(D-葡萄糖) | Fisher Scientific | D16-3 | YPD培养基 |
| 甘油 | Fisher Scientific | G33-4 | 分子生物学级,用于低温储存的补充剂 C. albicans |
| 绘图与数据可视化工具 | GraphPad/Prism | 统计软件与可视化工具。版本 10.6.1。 | |
| 绘图工具 | R | 统计软件。版本 4.4.3。 | |
| 摇床培养箱 | Eppendorf | EPM1282-0004-1EA | 中国台湾新不伦瑞克 Innova 44/44R 用于 C. albicans 培养 |
| 氯化镁(MgCl2) | Sigma | M8266-100G | 用于涡虫的水 (1x Montjuïc 盐 |
| 硫酸镁(MgSO4) | Sigma-Aldrich | M7506-500G | 用于涡虫的水 (1x Montjuïc 盐 |
| 显微镜载玻片 | VWR | 16004-368 | |
| 多焦显微镜 | 尼康 | Nikon AZ100 | |
| N-乙酰-L-半胱氨酸 | Sigma Aldrich | A7250-50G | 黏液溶解剂与牺牲试剂 固定 |
| 对苯二甲醛,16% 溶液,分子生物学级 | 电子显微镜科学公司 | 15710 | 固定剂试剂 |
| 研磨杵电动无绳马达 | Fisher Scientific | 12-141-361 | 涡虫组织匀浆 |
| 蛋白胨,细菌学级 | HIMEDIA/VWR | 89129-480 | YPD培养基 |
| 研钵杵 | Fisher Scientific | 12-141-368 | 无RNase一次性涡虫匀浆 pellet |
| 培养皿,100 × 15 mm | VWR | 25384-342 | |
| 聚乙烯醇 | Sigma-Aldrich | P-8136 | 对于 Gelvatol |
| 氯化钾(KCl) | Sigma生命科学 | P9541-500G | 涡虫培养液/水 (1x Montjuïc 盐 |
| 二抗 山羊抗兔IgG,Alexa Fluor 568 | Fisher Scientific | A-11011 | 免疫染色 |
| SN250 | 真菌遗传学保藏中心 | 野生型 C. albicans 菌株(https://www.fgsc.net/) | |
| 叠氮化钠 | Fisher Scientific | S227-100 | 对于 Gelvatol |
| 碳酸氢钠(NaHCO₃) | Sigma-Aldrich | S5761-1KG | 涡虫培养液/水 (1x Montjuïc 盐 |
| 氯化钠(NaCl) | Sigma生命科学 | S3014-500G | 涡虫培养液/水 (1x Montjuïc 盐 |
| 分光光度计 | 安捷伦 | 26354 | 使用 BioTek Epoch 2 微孔板读板仪测定光密度 |
| 静态培养箱 | Fisher Scientific | 15-015-2634 | C. albicans 培养 |
| 移液管 | Fisher Scientific | 13-711-9CM | 用于转移涡虫的无菌一次性刻度移液管 |
| Tris碱 | Sigma-Aldrich | 252859 | 对于 Gelvatol |
| 酵母提取物 | 赛默飞世尔科技 | 212750 | YPD 培养基 |
参考文献
- Delavy, M., et al. Unveiling Candida albicans intestinal carriage in healthy volunteers: the role of micro- and mycobiota, diet, host genetics and immune response. Gut Microbes. 15 (2), 2287618(2023).
- Bays, D. J., Savage, H. P. Candida albicans gastrointestinal colonization resistance: a host-microbiome balancing act. Infect Immun. 93 (9), e0061024(2025).
- Nash, A. K., et al. The gut mycobiome of the Human Microbiome Project healthy cohort. Microbiome. 5 (1), 153(2017).
- Fróis-Martins, R., Lagler, J., LeibundGut-Landmann, S. Candida albicans virulence traits in commensalism and disease. Curr Clin Microbiol Rep. 11 (4), 231-240 (2024).
- Kumamoto, C. A., Gresnigt, M. S., Hube, B. The gut, the bad and the harmless: Candida albicans as a commensal and opportunistic pathogen in the intestine. Curr Opin Microbiol. 56, 7-15 (2020).
- Fisher, M. C., et al. Tackling the emerging threat of antifungal resistance to human health. Nat Rev Microbiol. 20 (9), 557-571 (2022).
- Gow, N. A. R., et al. The importance of antimicrobial resistance in medical mycology. Nat Commun. 13 (1), 5352(2022).
- Lockhart, S. R., Chowdhary, A., Gold, J. A. W. The rapid emergence of antifungal-resistant human-pathogenic fungi. Nat Rev Microbiol. 21 (12), 818-832 (2023).
- Denning, D. W. Global incidence and mortality of severe fungal disease. Lancet Infect Dis. 24 (7), e428-e438 (2024).
- Benedict, K., Jackson, B. R., Chiller, T., Beer, K. D. Estimation of direct healthcare costs of fungal diseases in the United States. Clin Infect Dis. 68 (11), 1791-1797 (2019).
- Gulati, M., Nobile, C. J. Candida albicans biofilms: development, regulation, and molecular mechanisms. Microbes Infect. 18 (5), 310-321 (2016).
- Nobile, C. J., Johnson, A. D. Candida albicans biofilms and human disease. Annu Rev Microbiol. 69 (1), 71-92 (2015).
- Höfs, S., Mogavero, S., Hube, B. Interaction of Candida albicans with host cells: virulence factors, host defense, escape strategies, and the microbiota. J Microbiol. 54 (3), 149-169 (2016).
- Talapko, J., et al. Candida albicans—the virulence factors and clinical manifestations of infection. J Fungi. 7 (2), 79(2021).
- Lopes, J. P., Lionakis, M. S. Pathogenesis and virulence of Candida albicans. Virulence. 13 (1), 89-121 (2022).
- Gaffar, N. R., Valand, N., Venkatraman Girija, U. Candidiasis: insights into virulence factors, complement evasion and antifungal drug resistance. Microorganisms. 13 (2), 272(2025).
- Xie, J., et al. White-opaque switching in natural MTLa/α isolates of Candida albicans: evolutionary implications for roles in host adaptation, pathogenesis, and sex. PLoS Biol. 11 (3), e1001525(2013).
- Costa-de-Oliveira, S., Rodrigues, A. G. Candida albicans antifungal resistance and tolerance in bloodstream infections: the triad yeast-host-antifungal. Microorganisms. 8 (2), 154(2020).
- Whaley, S. G., et al. Azole antifungal resistance in Candida albicans and emerging non-albicans Candida species. Front Microbiol. 7, 2173(2017).
- Marichal, P., et al. Contribution of mutations in the cytochrome P450 14α-demethylase to azole resistance in Candida albicans. Microbiology. 145 (10), 2701-2713 (1999).
- Lee, Y., Robbins, N., Cowen, L. E. Molecular mechanisms governing antifungal drug resistance. npj Antimicrob Resist. 1 (1), 5(2023).
- Maciel, E. I., Jiang, C., Barghouth, P. G., Nobile, C. J., Oviedo, N. J. The planarian Schmidtea mediterranea is a new model to study host-pathogen interactions during fungal infections. Dev Comp Immunol. 93, 18-27 (2019).
- Maciel, E. I., Valle Arevalo, A., Ziman, B., Nobile, C. J., Oviedo, N. J. Epithelial infection with Candida albicans elicits a multi-system response in planarians. Front Microbiol. 11, 629526(2021).
- Maciel, E. I., Valle Arevalo, A., Nobile, C. J., Oviedo, N. J. A planarian model system to study host-pathogen interactions. Methods Mol Biol. 2680, 231-244 (2023).
- Sánchez Alvarado, A. Planarian regeneration: its end is its beginning. Cell. 124 (2), 241-245 (2006).
- Sluys, R., Riutort, M. Planarian diversity and phylogeny. Methods Mol Biol. 1774, 1-56 (2018).
- Riera Romo, M., Pérez-Martínez, D., Castillo Ferrer, C. Innate immunity in vertebrates: an overview. Immunology. 148 (2), 125-139 (2016).
- Peiris, T. H., Hoyer, K. K., Oviedo, N. J. Innate immune system and tissue regeneration in planarians: an area ripe for exploration. Semin Immunol. 26 (4), 295-302 (2014).
- Kangale, L. J., Raoult, D., Fournier, P. E., Abnave, P., Ghigo, E. Planarians as an emerging model organism for investigating innate immune mechanisms. Front Cell Infect Microbiol. 11, 619081(2021).
- Karami, A., Tebyanian, H., Goodarzi, V., Shiri, S. Planarians: an in vivo model for regenerative medicine. Int J Stem Cells. 8 (2), 128-133 (2015).
- Oviedo, N. J., Nicolas, C. L., Adams, D. S., Levin, M. Establishing and maintaining a colony of planarians. Cold Spring Harb Protoc. 2008 (10), (2008).
- Ivanković, M., et al. A comparative analysis of planarian genomes reveals regulatory conservation in the face of rapid structural divergence. Nat Commun. 15, 8215(2024).
- Fincher, C. T., Wurtzel, O., De Hoog, T., Kravarik, K. M., Reddien, P. W. Cell type transcriptome atlas for the planarian Schmidtea mediterranea. Science. 360 (6391), eaaq1736(2018).
- Shibata, N., Agata, K. RNA interference in planarians: feeding and injection of synthetic dsRNA. Methods Mol Biol. 1774, 455-466 (2018).
- Rouhana, L., et al. RNA interference by feeding in vitro-synthesized double-stranded RNA to planarians: methodology and dynamics. Dev Dyn. 242 (6), 718-730 (2013).
- Winsor, L., Sluys, R. Basic histological techniques for planarians. Methods Mol Biol. 1774, 285-351 (2018).
- Lu, J., et al. 3D reconstruction of neuronal allometry and neuromuscular projections in asexual planarians using expansion tiling light sheet microscopy. eLife. 13, e101103(2025).
- Rink, J. C., Vu, H. T. K., Alvarado, A. S. The maintenance and regeneration of the planarian excretory system are regulated by EGFR signaling. Development. 138 (17), 3769-3780 (2011).
- Fajardo, P., Cuenda, A., Sanz-Ezquerro, J. J. A mouse model of candidiasis. Methods Mol Biol. 2321, 63-74 (2021).
- Singh, S., Singh, S., Kumar, A. Systemic Candida albicans infection in mice causes endogenous endophthalmitis via breaching the outer blood-retinal barrier. Microbiol Spectr. 10 (4), e01658-e01722 (2022).
- Spellberg, B., Ibrahim, A. S., Edwards, J. E., Filler, S. G. Mice with disseminated candidiasis die of progressive sepsis. J Infect Dis. 192 (2), 336-343 (2005).
- Andes, D. Use of an animal model of disseminated candidiasis in the evaluation of antifungal therapy. Methods Mol Biol. 118, 111-128 (2005).
- Spellberg, B., et al. Parenchymal organ, and not splenic, immunity correlates with host survival during disseminated candidiasis. Infect Immun. 71 (10), 5756-5764 (2003).
- Clinical overview of invasive candidiasis. , Centers for Disease Control and Prevention. Available at: https://www.cdc.gov/candidiasis/hcp/clinical-overview/index.html (2024).
- Kobayashi, G. S. Medical microbiology. , NCBI Bookshelf. Available at: https://www.ncbi.nlm.nih.gov/books/NBK8103/ (1996).
- Pappas, P. G., Lionakis, M. S., Arendrup, M. C., Ostrosky-Zeichner, L., Kullberg, B. J. Invasive candidiasis. Nat Rev Dis Primers. 4 (1), 18026(2018).
- Van Rhijn, N., Rhodes, J. Evolution of antifungal resistance in the environment. Nat Microbiol. 10 (8), 1804-1815 (2025).
- Brown, G. D., et al. The pathobiology of human fungal infections. Nat Rev Microbiol. 22 (11), 687-704 (2024).
- Osset-Trénor, P., Pascual-Ahuir, A., Proft, M. Fungal drug response and antimicrobial resistance. J Fungi. 9 (5), 565(2023).
- Yan, Z. Z., et al. Environmental microbiome, human fungal pathogens, and antimicrobial resistance. Trends Microbiol. 33 (1), 112-129 (2025).
- Homann, O. R., Dea, J., Noble, S. M., Johnson, A. D. A phenotypic profile of the Candida albicans regulatory network. PLoS Genet. 5 (12), e1000783(2009).
- Noble, S. M., French, S., Kohn, L. A., Chen, V., Johnson, A. D. Systematic screens of a Candida albicans homozygous deletion library decouple morphogenetic switching and pathogenicity. Nat Genet. 42 (7), 590-598 (2010).
- Gulati, M., et al. In Vitro Culturing and Screening of Candida albicans Biofilms. Current Protocols in Microbiology. 50 (1), e60(2018).
- Takeda, H., Nishimura, K., Agata, K. Planarians Maintain a Constant Ratio of Different Cell Types During Changes in Body Size by Using the Stem Cell System. Zoological Science. 26 (12), 805-813 (2009).
- Roberts-Galbraith, R. H. RNAi screening to assess tissue regeneration in planarians. Methods Mol Biol. 2450, 509-527 (2022).
重印与许可
