本方案描述了利用光遗传学技术研究埃及伊蚊(Aedes aegypti)行为的方法。文中介绍了蚊虫饲养、样品制备、实验检测及数据分析等步骤,用于评估蚊子在趋向宿主动物及吸血过程中神经元的功能。这些基础技术将有助于开展针对这一重要人类疾病传播媒介的神经环路与行为学研究。
本文内容
摘要
摘要
蚊子Aedes aegypti 是多种病毒病原体的重要传播媒介,同时也是研究其他媒介物种的模型生物。当蚊子叮咬宿主动物时,病原体得以传播,但控制其寻找宿主和叮咬行为的神经回路仍不明确。本文详细描述了利用光遗传学技术操控蚊子神经活动的方法,该技术是确定神经回路与行为之间因果关系的关键手段。这些方法包括用于光遗传学实验的蚊子饲养流程,以及三种行为检测方法,分别用于测量蚊子从觉醒、趋向、口器探查到吸血饱食这一系列行为中不同阶段的表现。这些行为发生在不同的空间尺度下,并由不同的感觉刺激引发。每种行为检测装置均配备红色(~625 nm)LED,用于光遗传学激活。为检测对嗅觉刺激的觉醒反应,量化蚊子的飞行和爬行行为;为检测趋向或降落行为,将加热的血液餐置于大型实验区域中供蚊子选择;口器探查和吸血行为则通过高分辨率视频进行检测,从而实现对附肢动作和腹部大小变化的测量。本实验方案还描述了机器视觉模型的应用,以实现对行为的时间高分辨率量化分析以及摄食终点指标的测量。这些方法可用于检验任何可通过基因手段标记的神经元群体在蚊子叮咬行为中的作用,并可扩展应用于其他行为研究。
引言
蚊子是世界上最危险的动物之一,其危险性并非源于凶猛或力量,而在于其作为疾病传播媒介的高效性。Anopheles(按蚊)传播的疟疾寄生虫每年导致数十万人死亡,而Aedes aegypti(埃及伊蚊)和Aedes albopictus(白纹伊蚊)则负责传播黄热病、登革热、基孔肯雅热、寨卡病毒病以及许多其他危及生命的疾病1。除南极洲外,各大洲均有蚊子分布,对公共卫生构成重大威胁2。吸血行为不仅直接传播病原体,同时也是蚊子 生命周期中的关键环节,因为雌蚊需要摄取脊椎动物的血液才能产卵。因此,控制蚊媒疾病的传播必须首先深入了解其宿主搜寻机制。
众所周知,雌性蚊子利用远距离和近距离的信号来寻找宿主3,4。二氧化碳(CO2)是一种高度挥发性的气体,存在于人类呼出气中,通常是蚊子感知到的第一个信号。在埃及伊蚊(Aedes aegypti)的嗅觉感觉神经元中,该气体由Gr1、Gr2和Gr3蛋白组成的CO2受体所检测5。暴露于CO2会引发起飞和飞行行为,也称为激活行为6,7,这种行为可持续长达10–15分钟,即使后续不再提供其他刺激也能维持8。CO2与皮肤气味协同作用,增强蚊子的激活反应和趋向性5,9。在检测到CO2和皮肤气味后,蚊子会被进一步激发以感知其他更近距离的宿主信号,例如热量、视觉对比度和湿度,这些信号引导其降落在合适的血液宿主上5,10,11,12,13。多种感觉信号的整合使蚊子能够有效地追踪并定位其宿主。
当雌性蚊子降落在潜在宿主身上时,它会将喙刺入表面,直到找到一块皮肤区域,这一过程称为探刺14,15。 探刺之后,口针刺穿皮肤,寻找血管,同时吸食血液并注入唾液,使蚊子在几分钟内体重增加一倍16。血液被输送到中肠,在那里蛋白质被消化以用于产卵。有趣的是,蚊子在宿主身上吸血至饱并非传播病原体的必要条件,仅通过探刺即可传播疾病16,17。因此,深入了解叮咬行为的每一个步骤,有助于开发出干扰雌性蚊子寻找和叮咬宿主的策略,从而最终控制蚊媒疾病的传播。
在模式生物中已开发出多种用于操控神经元活动的工具。早期的工具通过组成型表达或热激活发挥作用18,19,20,21尽管这些遗传工具具有一定的用途,但它们也存在某些缺点。组成型工具可能影响生物体的发育,导致表型变化并非 solely 由神经元环路功能引起。蚊子利用体温来识别宿主脊椎动物,因此热激活通道特别不适用于研究其行为。22,23在行为学研究中,光遗传学指的是利用对特定波长光有响应的遗传工具来控制神经元激活的技术。 感兴趣。该技术已被应用于多个系统,从研究小鼠口渴的效价到探究果蝇的求偶行为 果蝇,用于在人体试验中恢复视网膜色素变性导致的视力丧失24,25,26光遗传学通道通过吸收光子,允许特定类型的离子穿过细胞膜,从而激活或抑制神经元。通过将编码光敏蛋白的转基因导入生物体,该技术可用于激活或抑制原本难以操控的特定神经元。光遗传学具有在时间和空间控制上的优势,并提供多种对照手段,有助于实验推断。
作者们最近描述了首次利用光遗传学工具研究蚊子行为的方法8这些工具依赖于红光激活的阳离子通道CsChrimson,一种红移的通道视紫红质。27. 微生物视蛋白(包括 CsChrimson)需要一种化学辅因子,全反式视黄醛转 视网膜,以吸收光子28. CsChrimson 与 tdTomato 荧光报告基因融合,并由 QF2/QUAS 双元表达系统调控,可灵活地与不同的驱动品系组合使用29. 以靶向 CO2 感觉神经元,使用了一种驱动细胞系,该细胞系在表达CO受体Gr3亚基的神经元中表达QF2转录因子2 受体30蚊子在单独暴露于红光后表现出极小的行为反应8此外,红光在穿透生物组织方面效果最佳,因此红光激活的视蛋白是光遗传学的理想选择25.
本文描述了三种实验方案,用于测量宿主搜寻和吸血行为的不同方面,并结合光遗传学刺激(图1A)。首先,提供了培育光遗传学蚊子品系的实验方案。第二部分介绍了光遗传-热循环仪(opto-thermocycler),这是一种经过改造的PCR热循环仪,可用于在蚊子暴露于温度和光刺激时追踪其觉醒和探刺行为。该光遗传-热循环仪实验旨在通过驱动品系利用光遗传学手段控制神经元活性,从而在较长时间尺度上测量这些搜寻行为。第三部分描述了“血毯实验”(blood blanket assay),在此实验中,蚊子可持续接触位于改造后热循环仪底部的一层薄薄的人工血液餐,从而可在不同光照和温度条件下追踪其飞行、探刺和吸血过程。血毯实验基于光遗传-热循环仪构建,能够量化蚊子对人工血液餐的吸血程度,从而实现对蚊子 摄食行为在精确时间控制下的光遗传学和热刺激研究。最后一部分介绍了光遗传-膜饲器(opto-membrane feeder),在此装置中,蚊子可接触容器内温热的血液餐,从而可在光照刺激下同时追踪其对血源的趋向性及吸血行为。光遗传-膜饲器实验用于在自由飞行系统中研究宿主搜寻和吸血行为的完整行为序列。除各实验预期的输出结果外,本文还描述了机器视觉模型,用于追踪蚊子身体部位并在实验过程中识别其行为。光遗传-热循环仪、血毯实验和光遗传-膜饲器实验能够在利用光刺激操控神经活动的同时,测量蚊子吸血行为的不同阶段。这些创新技术有助于研究蚊子神经回路如何调控威胁公共卫生的行为。
方案
本方案中使用的蚊子含有转基因,在美国农业部的规定下,必须在节肢动物 containment 二级(Arthropod Containment Level II)设施中饲养32。需对蚊子进行严格 containment 以防止逃逸,并将其作为生物危害废弃物进行处理。生物安全和节肢动物 containment 操作规程已通过耶鲁大学环境健康与安全办公室(Yale Environmental Health & Safety)的审查和批准。本研究未涉及人类或动物受试者。蚊子的基因型可通过荧光标记(Gr3-QF2 使用 3xP3-dsRed,QUAS-CsChrimson 使用 3xP3-CFP)或针对插入片段的 PCR 进行确认8。本研究中使用的所有材料均列于材料表中。
1. 光遗传学饲养
- 按照标准方案饲养蚊子31,但在实验过程中需进行以下调整,以最大程度地增强光遗传品系的反应。
- 使用纯合的 Gr3-QF2、QUAS-CsChrimson 和野生型利物浦品系进行杂交,以获得杂合实验品系 Gr3-QF2/+、QUAS-CsChrimson/+ 和 Gr3>CsChrimson。
- 将蚊子饲养于设定为 28 °C 和 80% 湿度的避光培养箱中,光照周期为 14 小时蓝光(450 nm)和 10 小时黑暗(图 1B)。
注意:使用蓝光可最大限度减少对红光激活通道(如 CsChrimson)的激活。所有在培养箱外进行的饲养步骤均应在低光照条件下操作。 - 最早在成蚊羽化后 1 周开始实验。
注意:行为学实验的理想蚊龄为羽化后 2–3 周,但也可使用羽化后长达 4 周的蚊子。对照组与实验组的基因型应保持相同年龄,并以羽化后天数记录。为标准化个体年龄,所有卵应在同一天孵化。 - 实验前两天,轻轻用吸管将已交配但未吸血的雌蚊从笼中吸出,并在 4 °C 下麻醉。使用羽毛或吸管将其小心转移至根据所用检测方法选定的实验容器中。
- 配制 0.2 M 的全-反式视黄醛(ATR)二甲基亚砜(DMSO)溶液,储存于 -20 °C。通过浸润棉芯向容器网面提供 10% 蔗糖和 400 µM ATR。动物可在黑暗中摄食此饲料 1–3 天。
注意:在黑暗中喂养而非蓝光下,可防止 ATR 漂白(图 1B)。此外,在本方案的所有步骤中,蚊子均通过暴露于 4 °C 环境 5–10 分钟进行麻醉,直至其不再活动。每次实验结束后,蚊子通过在 -20 °C 暴露 24 小时实施安乐死。
警告:全-反式视黄醛接触皮肤和眼睛可引起严重刺激。操作时应穿戴适当的个人防护装备(PPE),如实验服、手套和眼部防护装置。二甲基亚砜为可燃液体,接触皮肤后可被吸收,必须在干燥环境中操作并佩戴适当的个人防护装备和眼部防护装置。DMSO 还应储存在防火的化学品储存容器中。 - 实验前一天(20–24 小时),将蔗糖饲喂器更换为含有蒸馏水和 400 µM ATR 的新饲喂器。动物在实验前持续保持在黑暗环境中(图 1B)。随后进入第 2、3 或 4 节。
注意:实验应在蚊子的白天光周期内进行,以最大化反应率。
2. 光热循环仪
- 组装检测组件
- 制作用于容纳蚊子的亚克力板(图2)。参见 图2A 获取示意图, 图2B 获取电子元件信息, 以及 图2C 获取亚克力板的图像 。 模板文件请见 (https://github.com/sorrellslab/opto-thermocycler/releases/tag/v1.0.0)。
- 制作壁板时,将一块3 mm厚的亚克力板用激光切割成四块10 cm × 1 cm的矩形和六块7 cm × 1 cm的矩形。使用亚克力胶将这些矩形粘合为一个5×3的矩阵结构,每个单元为一个17 mm × 17 mm × 10 mm的腔室。这些部件的模板文件为“14_animal_thick_v3.ai”。
警告:亚克力胶具有可燃性,可能引起呼吸道刺激和眼部刺激。操作亚克力胶时应佩戴适当的个人防护装备(PPE),如手套、实验服和护目镜,并在通风良好的区域使用,远离明火。 - 制作腔室底部时,将一块1.5 mm厚的亚克力板切割为6.985 cm × 10.16 cm,右下角的孔位需去除。另将一块1.5 mm厚的亚克力板切割为6.985 cm × 10.16 cm的矩形作为盖板。这些部件的模板文件为“14_animal_thin_v3.ai”。
- 制作壁板时,将一块3 mm厚的亚克力板用激光切割成四块10 cm × 1 cm的矩形和六块7 cm × 1 cm的矩形。使用亚克力胶将这些矩形粘合为一个5×3的矩阵结构,每个单元为一个17 mm × 17 mm × 10 mm的腔室。这些部件的模板文件为“14_animal_thick_v3.ai”。
- 将一张抗紫外线的黑色网布裁剪至与底部亚克力板相同尺寸(图2C)。将网布夹在亚克力板壁和底板之间,用亚克力胶固定。移除右下角孔位处的网布,确保该孔畅通无阻。
- 制作用于容纳蚊子的亚克力板(图2)。参见 图2A 获取示意图, 图2B 获取电子元件信息, 以及 图2C 获取亚克力板的图像 。 模板文件请见 (https://github.com/sorrellslab/opto-thermocycler/releases/tag/v1.0.0)。
- 构建用于固定相机和LED的框架(图2A)。
- 使用60.96 cm长、25 mm见方的光学构造导轨,在热循环仪的每个角落安装四根支柱。使用两根22.86 cm长、25 mm的构造导轨,将前右支柱与后右支柱、前左支柱与后左支柱在距离实验台30 cm处连接。
- 在前方,使用一根30.48 cm长、25 mm的构造导轨将左右支柱连接,距实验台高度为24 cm;在后方,使用另一根相同规格的导轨,距实验台高度为42 cm。
- 在框架左右两侧的构造导轨上安装1英尺长的光学支柱。将六颗串联连接的627 nm(红色)LED固定在每根支柱上,使其位于热循环仪PCR模块上方24 cm处。
注:尽管CsChrimson的峰值激活光波长约为590 nm,但接近625 nm的波长可在激活CsChrimson的同时,避免遗传对照组对光产生行为反应27。在每颗LED上粘贴散热片和透镜,以将光线聚焦至热循环仪的模块表面。 - 将一根30.48 cm长的光学支柱固定在前方两根构造导轨支柱的顶部。使用直角夹具将一根15.24 cm长的光学支柱固定在该支柱中部,使其朝向热循环仪模块内侧延伸。在末端安装带有红外长通滤光片的相机,镜头向下,距模块表面40 cm。
- 使用光学支柱构建一个从构造导轨延伸出的矩形框架,围绕PCR模块,略高于其表面。将一排红外LED固定在框架上,朝向PCR模块,以与相机成直角的方式照亮蚊子。
注:用于视频成像的红外照明不会显著加热实验区域,因为实验过程中热循环仪表面温度始终保持在24 °C。 - 用遮光帘覆盖整个结构,防止环境光干扰。
- 用单层遮光胶带覆盖PCR模块的表面和侧面,以形成具有深色背景的平整均匀表面。
- 将热电偶传感器放置在PCR模块的右下角,并用遮光胶带固定。使用功率计确认PCR模块表面光照分布均匀。调节电源电压或电流,使光照强度达到12 µW/mm2。
- 在PCR模块边缘放置一颗红外LED,用于同步视频与刺激信号输出(图2C)。用黑色胶带覆盖其表面,使光线可被检测到,同时避免在相机中产生眩光。
- 根据 图2B 中的示意图连接热电偶、同步LED和红光LED。下载所需软件(SpinView(版本1.27.0.48)、CoolTerm(版本2.0.1)、Arduino IDE(版本1.8.12))。从GitHub仓库下载Arduino代码和热循环仪程序。
注:Arduino代码被编程用于递送红光、体温水平的热刺激,以及两者的组合刺激。共提供七种刺激程序,刺激顺序随机化,作为资源提供。这些程序可根据需要修改以递送不同刺激。每次实验包含九次刺激:三次仅热刺激、三次仅光刺激、三次光热同时刺激。刺激递送通过Arduino检测热电偶反馈的PCR模块表面温度变化,并在指定时间点递送光刺激。更多细节可在刺激程序的注释中找到。
- 试验准备
- 按照光遗传学饲养方案饲养蚊子;参见第1节和 图1B。
- 实验前两天,用吸虫器将14只雌性蚊子转移至单独容器中。按照步骤1.6提供ATR。若需比较多个基因型,应对实验人员设盲。
注:蚊子接受ATR后,应在弱光条件下操作。 - 实验前一天(20–24小时),用吸虫器将每块亚克力板14只雌性蚊子在4 °C下麻醉。使用羽毛或吸虫器小心地将每只蚊子逐一放入各孔中。
- 用透明胶带将亚克力板侧面固定,以固定盖板。切勿将胶带折叠至亚克力板的顶部或底部,以免遮挡相机视野。
- 将亚克力板放置在三根平行排列的棉芯上,棉芯浸泡于含400 µM ATR的蒸馏水中(见步骤1.6)。将三 行孔分别对准一根棉芯,确保所有蚊子均可接触水-ATR溶液。将亚克力板置于暗培养箱中过夜。
- 运行试验
- 将相机、LED和Arduino连接至计算机。打开电源。用70%乙醇擦拭光-热循环仪表面,并静置晾干。
警告:乙醇易燃,可能引起严重眼部刺激。操作乙醇时应佩戴适当的个人防护装备,并避免接触明火。 - 使用遮光容器将蚊子所在的亚克力板转移至PCR模块中央。用遮光帘覆盖光-热循环仪。
- 在计算机上打开SpinView。点击相机名称以打开相机视图。插入红外灯电源,确保PCR模块和亚克力板在相机视野中可见。
- 如有需要,调整亚克力板位置,使其对齐居中,并确保热电偶在亚克力板右下角可见。确保同步光源在画面内(图2C)。
- 调整相机和SpinView中的设置,确保获得清晰且裁剪合适的视频,显示亚克力板。在 图像格式 选项卡中,调整 宽度、高度、偏移X 和 偏移Y,确保亚克力板和同步光源可见。在 设置 选项卡中,将 采集帧率启用 设为 真,采集帧率 设为 30 fps。
- 关闭 曝光自动 和 增益自动。调整 曝光时间 和 增益 值,使黑色背景与蚊子之间形成清晰对比。点击右上角红色录制按钮,打开单独窗口以保存视频文件。
- 在弹出窗口中设置文件路径:点击 浏览,导航至实验文件夹,点击 新建文件夹,并以试验名称命名。将录制帧数设置为实验所需数值(例如43,500),或设为0以手动停止录制。
- 在视频选项卡中设置以下参数:视频录制类型:MJPG,视频文件分割大小:1000 MB,JPEG压缩质量:65。在热循环仪上打开“optothermo_lightheat_random1”程序并启动。热循环仪应从25 °C的保持阶段开始。
- 在Arduino IDE中打开对应的程序“TC_optothermo_lightheat_random1.ino”,并上传至开发板。打开串口监视器,确认温度约为25 °C。
- 关闭Arduino IDE中的串口监视器。打开CoolTerm以开始采集Arduino串口输出。确保串口和通道与Arduino IDE中一致。输出内容将在CoolTerm窗口中显示。
- 开始将Arduino输出记录为文本/二进制文件。在SpinView中开始视频录制。点击 恢复 以结束热循环仪的保持阶段。在CoolTerm中观察Arduino输出,确认温度降至18 °C且刺激计数器增加至1,试验即开始。让实验持续运行直至试验完成。
- 将相机、LED和Arduino连接至计算机。打开电源。用70%乙醇擦拭光-热循环仪表面,并静置晾干。
- 清理
- 停止视频录制和CoolTerm输出采集。关闭两个程序。结束热循环仪程序。将蚊子所在的亚克力板从热循环仪中取出,放入-20 °C冰箱中过夜以处死蚊子。
警告:处死转基因蚊子时,应确保其在-20 °C环境中至少存放24小时,然后才能将其丢弃至生物安全危害垃圾桶,以确保完全死亡。 - 若需开始下一次试验,请重复第2.3节操作。拔下相机和Arduino连接线。关闭电源。拔下红外LED电源。通过移除透明胶带并丢弃死蚊子来清洁亚克力板。
- 用70%乙醇喷洒盖板和亚克力板,然后小心地用戴手套的手指擦拭各孔壁和网布的所有侧面。用去离子水彻底冲洗,随后将亚克力板叠放储存,盖板之间用纸巾隔开以防刮伤。
- 停止视频录制和CoolTerm输出采集。关闭两个程序。结束热循环仪程序。将蚊子所在的亚克力板从热循环仪中取出,放入-20 °C冰箱中过夜以处死蚊子。
3. 血液覆盖实验
- 组装检测组件(图3)
- 按照第2.1节所述构建光热循环仪检测系统。参见该检测方法的相关图示(图3A),热刺激(图3B)和铝板(图3C).
- 构建一个铝制血液喂食板,如图所示 图 3C.
- 使用激光切割机或水射流切割机加工平板的顶部和底部。底部由一块厚度为0.8 mm的铝板切割为90 mm × 134 mm制成。顶部由一块厚度为1.6 mm的铝板切割为90 mm × 134 mm制成。在顶板上切割15个矩形孔(17.2 mm × 18.6 mm)。模板文件可在 blood blanket GitHub 仓库(https://github.com/sorrellslab/bloodblanket)中找到 "铝板模板".
- 在铝制部件之间夹入一片薄硅胶垫圈(0.5 mm厚)以防止泄漏,使用激光切割机将其裁切成与铝制上盖相同的形状。
- 使用八个直径为0.47625 cm、圆顶六角头的4–40标准螺栓将各层固定在一起。在金属部件上使用成形丝锥攻出螺纹以配合螺栓。将螺栓穿过平板底部的圆形和“W”形垫圈,以增强放置在PCR仪加热块上时的稳定性。
- 从 GitHub 代码库(https://github.com/sorrellslab/bloodblanket)下载用于血液毯式检测的 Arduino 代码和热循环仪程序。
- 将20 mM ATP分装于含25 mM NaHCO₃的溶液中3 并保存于 -20 ˚C,直至使用。
注意:每六个月配制一次新鲜的ATP溶液。避免反复冻融。配制1 M NaHCO₃3 和 5 M NaCl(每种溶液均于室温保存)。NaHCO₃3 在溶液中仅能稳定保存7天。
- 实验准备
- 饲养蚊子,并按照第1节和2.2节所述方法转移至丙烯酸板上。若需对不同基因型进行比较,应对实验操作者实施盲法处理。
- 实验当天,配制10 mL最小量人工血液餐(110 mM NaCl,20 mM NaHCO₃)3,以及通过添加750加入的1.5 mM ATP) µ20 mM ATP 溶液 220 L µ5 M NaCl 溶液,200 L µ1 M NaHCO₃ 溶液3 将贮存液加入 8.83 mL 去离子水中,充分颠倒混匀。
注意:每次实验前需新鲜配制人工血餐。 - 根据步骤 2.3.4 至 2.3.8 设置 SpinView 录制。
- 打开“仅红光__BB_.ino实验用的 Arduino 文件(或所需的刺激文件)。
- 进行试验
- 移液 650 µ将最小人工血餐的L加入到板的每个孔中,确保餐液完全充满每个孔且无溢出。
- 拉伸一个10.2 cm × 将10.2 cm见方的Parafilm覆盖在直径为20.3 cm的环上。将Parafilm覆盖于培养皿上方,按压边缘使其粘附。使用解剖刀,在培养皿周围修剪出1.3 cm宽的边距,并将多余的Parafilm向下折入培养皿底部以密封餐食。
- 将培养皿直接放置在PCR加热块上,以实现最大程度的热传导(图3A).
注意:在光热循环仪的PCR模块表面使用遮光胶带,但水暖毯不需要。 - 将热电偶放置在铝板右下角的石蜡膜表面。将相机、LED灯和Arduino连接至计算机。打开电源。启动“BB_thermocycler_program.x50prog”程序设置在热循环仪上。
注意:温度变化速率采用热循环仪的最大升降温速度,以最大程度模拟蚊子降落到宿主身上进行吸血的过程。 - 使用深色容器并在光线较暗的房间中操作,以尽量减少光照暴露。将蚊子所在的丙烯酸板转移至铝板上,确保每个孔都与蚊子对齐。确保热电偶位于板的右下角,并与Parafilm接触,以测量人工血液餐的温度。
- 通过重新上传“仅红灯__BB_.ino”程序。关闭串行监视器。在CoolTerm中,按下 连接 以查看当前温度。根据此起始温度,在Arduino脚本中将触发温度调整至约0.6 °C 在其下方。
- 在 CoolTerm 窗口中,选择 捕获为文本/二进制 文件 并开始数据采集。在 SpinView 的记录窗口中开始视频录制。点击 简历 结束热循环仪的保温程序。在CoolTerm中观察Arduino输出,以确认已检测到温度下降并开始实验。
- 试验持续时间结束后,单击 停止录制. 在 CoolTerm 中的 捕获到文本/二进制文件 标签,选择 停止 编写串行输出。
- 将蚊虫从血液保温板上移除,并转移至冷室以麻醉。统计腹部膨大的蚊虫数量,将含有人工血餐的个体计为已吸血蚊虫,包括部分吸血的个体。
- 每次试验之间,用蘸有70%乙醇的无尘纸擦拭PCR模块表面进行清洁。移除封口膜,并用去离子水冲洗铝板。重复第3.3节步骤以进行后续试验。在不同日期之间轮换试验顺序,以尽量减少昼夜节律活动周期的影响。
- 清理
- 停止录制所有程序并退出。拔下摄像头、Arduino 和红外灯的 USB 线缆。关闭计算机。停止“thermocycler_program.x50prog”程序在热循环仪上运行。
- 将蚊虫板置于 -20 °-80°C 冻存过夜以杀死蚊虫。用去离子水清洗铝板。用70%乙醇浸泡丙烯酸板,然后用去离子水冲洗,并在装载更多蚊虫前过夜晾干。
注意:洗涤后的培养板应过夜晾干,以确保无任何水分残留。若存在水分,将在盖子上产生冷凝水,从而干扰视频拍摄。
4. 光控膜饲喂实验
- 组装检测组件(图4)
- 使用光学机械组件和一个30.48 cm × 30.48 cm,黑色,0.635 cm厚的亚克力平台。使用激光切割机在亚克力板中心切割一个直径为11.43 cm的孔。在四个角各向内2.54 cm处切割孔洞,使亚克力板可架设在框架支撑上,距底座约23.495 cm高。
- 在中心处,安装一个内径为19.05 cm、外径为20.32 cm的黑色亚克力环(图 4A)。所有丙烯酸组件的模板均位于光控膜饲喂器 GitHub 仓库(https://github.com/sorrellslab/opto-membranefeeder/releases/tag/v1.0.0)中,同时包含 Arduino 程序。参见图示以了解整体装置设置(图 4A),刺激(图4B),电路图(图4C)以及视频帧图像(图4D).
注意:组装该平台所使用的具体材料并非关键,因此可能存在更具成本效益的替代方案。 - 在中心孔下方安装一个带有红外长通滤光片的相机,镜头朝上对准蚊虫容器。将光圈调节至完全打开,以便选择性聚焦于容器的网状顶部。图 4A).
- 制作罐体时,将直径为11.43 cm的透明聚碳酸酯管切割成长度为12.7 cm的圆柱段。
- 使用厚度为 0.3175 cm 的亚克力材料,通过激光切割出直径为 11.43 cm 的圆形,作为罐体的底部。将圆形边缘用激光蚀刻,使其能够嵌入管体内部。使用塑料环氧树脂将底部固定在管体上。
- 使用黑色0.635 cm和0.3175 cm厚的亚克力材料以及抗紫外线黑色网布制作嵌入式盖子。内圈直径为10.795 cm,外圈直径为12.065 cm,将黑色网布绷紧覆盖在较小的内圈上。通过激光切割的孔,用蜡线将网布缝合固定。
注意:为防止刮伤用于视频录制的亚克力底部,罐体应始终放置在纸巾上。
- 构建用于血液餐递送的丙烯酸容器(图 4A).
- 从厚度为0.15875 cm的透明亚克力材料上切割出一个内径为5.08 cm、外径为6.6 cm的圆环。使用亚克力胶将此圆环与另一个内径为5.842 cm、外径为6.604 cm的透明圆环粘合。
- 将一个高13.97 cm、直径19.05 cm的金属网圆筒放置在平台中央黑色亚克力环内的中心位置。
- 在金属网内部,安装一圈RGB LED灯带,灯带距离罐体外壁3.81 cm,由置于黑色亚克力平台上的Arduino Uno控制板进行控制图4C).
- 使用功率计测量圆柱体内部各处的光照强度,并调整光源位置,使实验区域的光照强度维持在3.5–6之间 µW/mm2在金属网外部,使用扎带将一圈850 nm红外LED朝内固定在框架上。
- 将 USB 线插入 Arduino Uno 开发板并连接至计算机。将相机的 USB 线连接至计算机。关闭互联网连接。
- 将光敏膜结构置于26℃的黑暗培养箱或环境室中 °实验期间,温度保持在 C,相对湿度为 80%。
- 准备蚊虫容器
- 实验前,用70%乙醇喷洒蚊子容器,并用软海绵轻轻擦拭清洗。用去离子水冲洗容器,然后过夜自然晾干。
- 实验前两天,在低温麻醉条件下分选雄蚊和雌蚊,将20只雌蚊放入每个容器中。按照步骤1.6提供ATR供其摄取。
- 此时,应对实验人员设盲基因型。试验顺序应在各天之间轮换,以尽量减少因实验时间不同而导致的行为结果差异。
- 运行试验
- 准备血液餐时,将119 mL的水瓶放入45 °C 水浴,每次试验各使用一个。该体积和温度可使血液餐在整个实验过程中保持接近体温的水平。
- 制备5 mL去纤维羊血分装液,4℃保存 °使用前颠倒混匀以防止分层。每次实验前需新鲜配制血液餐。
警告:操作脱纤维绵羊血时应穿戴适当的个人防护装备(PPE),以尽量减少病原体暴露。接触过血液的可重复使用材料应浸泡在10%次氯酸钠溶液中,并用去离子水冲洗。由于次氯酸钠可引起严重的皮肤和眼部刺激,操作全程均应穿戴适当的个人防护装备。 - 将第一份血样 aliquot 置于 45 °C 预热浴至少 20 分钟,然后进行试验。将 ATP 置于冰上解冻。拉伸一段 5.08 cm × 在亚克力盖子上较大平坦圆形的一侧覆盖一块5.08 cm见方的Parafilm,形成一个用于盛放血液餐的凹室(图 4A).
- 用70%乙醇擦拭计算机以去除人体气味。将计算机连接至外置硬盘。连接相机和Arduino。将RGB灯和红外灯接入电源。
- 打开 SpinView 软件以及对应刺激的 Arduino 文件。在外接硬盘上创建一个文件夹以存储实验数据。上传“blue_only.io”用于通过RGB LED向实验区域提供微弱蓝色471 nm光的Arduino文件(遵循 图4B).
- 无需让蚊子暴露于过量的 CO2 从呼吸中取出容器,检查实验用的容器,并记录实验前发生的任何死亡情况。将容器置于中央,在刺激暴露前于弱蓝光下适应10至20分钟。
注意:由于完全黑暗会抑制蚊虫飞行,因此驯化步骤和实验均在微弱的蓝光下进行。 - 启用视频采集
- 在 SpinView 程序中,选择相机。在 设置 标签,根据需要调整曝光和增益,以保持浅色昆虫与深色背景之间的高对比度(图 4D).
- 单击顶部栏上的红色录制按钮以调整视频捕获设置。通过单击设置文件路径 浏览,然后导航至外接硬盘。为每次试验创建一个名称描述性强的新文件夹,文件夹名称中不要包含空格。
- 在 保存选项 标签,选择 捕获 0 帧,这将使视频持续录制直至手动停止。在 记录模式,选择 缓冲液在“视频”标签页中,设置以下字段: 视频录制类型:MJPG,视频文件分割大小: 1000 MB,以及 JPEG 压缩质量: 65.
- 刺激暴露前立即用移液器加入500 µ将20 mM ATP溶液加入至已准备好的5 mL血样中,使ATP终浓度为2 mM。反复倒置试管数次以混匀。
- 将ATP-血液溶液倒入血液餐容器中。在血液餐上方,放置一个装有45 mL水的倒置119 mL瓶子 °使用37°C的水以在整个实验过程中维持血液温度接近人体体温。
- 在 SpinView 软件中选择“开始录制”。在不使用呼吸刺激蚊子的情况下,将血液餐置于容器网格盖顶部,使蚊子能够通过网格刺穿帕拉膜(parafilm membrane)。
- 上传 的 Arduino 程序 用于 “1sON_10sOFF.io” (图4B),或所需刺激。这将每10秒递送1秒的624 nm红光,直到“blue_only.io”文件为手动上传。624 nm 的波长足以用于光遗传学激活 CsChrimson。
- 将血液等分试样放入水浴中进行下一次试验。试验运行15分钟后,选择 停止录制. 上传“blue_only.io”文件以停止红光刺激。
- 移除血餐装置和水瓶。取下容器,并将蚊虫置于4℃下麻醉 °C. 若要进行额外的试验,请返回第4.3节。通过肉眼观察麻醉后的蚊虫,检查并记录吸血蚊虫的数量,判断依据为观察到腹部充满血液。
- 清理
- 关闭所有程序。弹出外部硬盘并从计算机断开连接。关闭计算机。
- 按照步骤4.2.1中所述方法清洗蚊虫储存罐。清洗丙烯酸材质的血液餐 holder。取一个半尺寸的聚碳酸酯托盘,加入2/3体积的水,然后加入100 mL 次氯酸钠溶液。
- 将丙烯酸血液餐 holder 和塑料瓶放入盘中,盖上盖子,浸泡 10 分钟。冲洗掉漂白剂并移除 Parafilm 膜。轻轻刷洗并冲洗以去除任何血液残留物。
5. 行为分析
- 使用 ffmpeg(版本 8.0.1)将视频压缩为 .mp4 文件以进行分析。如果视频文件被分割,请使用任意视频编辑软件将其合并为单个视频。在 SLEAP(版本 1.4.1)中以灰度模式打开训练视频。
注意:如果视频录制设置合适,所有内容都应位于画面内,且移动的蚊子不应出现模糊。也可使用其他身体部位追踪软件。本文使用的 SLEAP 版本为 1.4.1。有关最新操作流程,请参考 SLEAP 官方文档。 - 创建一个骨架,根据所评估的行为对动物的相关部位进行标注(图 2D, 图 3D,以及 图4E).
- 使用“随机帧”选项 建议帧 标签,随机选取10帧,将每只蚊子标记为一个实例。如果蚊子的某些部位被遮挡(例如,喙尖在探查过程中插入网孔),则标记该部位的大致位置。使用这些标注帧及以下设置训练模型
- 对于自上而下的多动物模型(用于光热循环仪和血毯模型):在 训练流程 标签,设置 最大实例数 到 14在质心模型配置选项卡中,设置 裁剪尺寸 到 自动,并设置 Plateau Min. Delta 到 1e-04,设置 高原耐性 到 10,设置 步幅 到 8,以及 锚定部分 作为 胸部.
- 用于自下而上的多动物模型(用于光控膜饲喂装置):在 训练流程 标签,设置 最大实例数 到 无最大值在自下而上模型配置选项卡中,设置 作物大小 到 自动,并设置 Plateau Min. Delta 到 1e-04,设置 高原的耐心 至 10,设定 步幅 至 16.
- 使用这些设置对指定数量的帧进行预测:在推理流程(Inference Pipeline)选项卡中,针对光热循环仪(opto-thermocycler)和血毯(blood blanket),设置 最大实例数 至 14, 追踪器 到 简单, 最大轨道数量 到 14,以及 连接单条链断裂 至 是.
- 对于光控膜进样器,设置 无最大值 用于 最大实例数 和 最大轨道数量, 追踪器 到 简单,和 连接单条轨道断裂 到 是. 修正预测的帧并重新训练。在训练数据集上迭代进行预测、标注和训练的循环。
注意:验证过程通过随机抽查已标注的帧,识别出一致性的错误(例如,误检蚊子、重复预测、方向错误或身体部位分配错误),重点关注包含这些边缘情况的帧。根据错误频率,可能需要检查多达150个已标注帧。SLEAP 还提供基于图形用户界面的评估指标,用于进一步的模型验证。当视觉检查确认模型具有足够的准确性和精确性后,即可将该模型应用于实验视频,并将结果导出为 .csv 或 .h5 格式,用于行为分析。随后可利用姿态估计输出结果训练行为分类器,方法如前所述。8行为定义如下:行走,指伴随腿部运动的平移体动;飞行,指翅膀展开时的快速平移运动; grooming(梳理),指腿部对身体部位(触角、喙、翅膀或腿部)进行重复性擦拭的动作;探触,指将喙通过容器底部的网孔伸出。行为分类器应达到 >与人工标注相比,准确率达到90%。 - 由于数据通常不符合正态分布,应选择非参数检验进行统计分析,并对多重比较进行校正后实施适当的事后检验。对于饱血数据,实验重复单位为蚊虫群体;而对于行为学数据,重复单位为单只蚊虫。
结果
采用三种行为检测方法观察蚊子的寄主搜寻和吸血行为,如图1A所示。蚊子在蓝光-黑暗循环(14:10 LD;图1B)条件下饲养,以同步其昼夜节律,从而确保实验在蚊子的清醒期进行。实验开始前两天,将蚊子转移至完全黑暗环境中,并提供视蛋白辅因子ATR。若蚊子未同步化或未给予ATR,则在行为检测中会表现出较低的活动性。各检测所用的基因型为Gr3>CsChrimson,以及两个遗传对照:驱动系Gr3-QF2和效应系QUAS-CsChrimson。
光热循环仪检测法(第2节)可用于评估蚊虫在热刺激和光刺激下长时间的觉醒与探刺行为。热刺激模拟蚊虫接近温血宿主的过程,而5秒的光刺激则模拟一次长时间的呼气。33使用热循环仪可实现快速的表面加热与冷却,并通过热电偶和微控制器与光遗传学激活同步。图 2A,B)。这三种蚊子基因型被放置在带有隔离小室的丙烯酸板中,小室底部为网状结构,蚊子可在其中表现出行走、飞行和探触行为(图2C)。蚊子身体部位的位置通过姿态追踪算法(例如 SLEAP)进行检测。34 和 DeepLabCUT35 (图 2D,E)。行为分类算法可基于姿态追踪(例如 SimBA36、A-SOiD37)或视频(例如 FERAL38输入。 图 2E 展示了果蝇在飞行、行走和探触过程中的SLEAP标记,这些是寻找宿主和摄食的关键行为。这些行为可通过胸部的速度以及喙基部与尖端之间的距离进行分类。此处展示了使用APT和JAABA进行行为追踪的输出结果39蚊虫分别暴露于温度升高、光照刺激,或同时接受温度升高和光照刺激,每次刺激后间隔20分钟,再进行下一次刺激。8. (图2F)。当暴露于高温时,三种基因型均表现出短暂的探针行为(图2G)。重要的是,当暴露于5秒的光刺激时, Gr3>CsChrimson 蚊虫会变得兴奋或“被激活”,表现出增强的爬行和飞行行为,持续时间可达10–15分钟。蚊虫还会表现出探刺行为,定义为将喙器反复插入培养板网状底部的动作。数据以单只蚊虫的行为形式绘制图 2G)以及随时间表现出每种行为的蚊虫比例(图 2H光热循环仪能够对多个个体进行重复且精确的光遗传学和热刺激,是研究觉醒和探究行为的有力工具。
血液餐垫实验(第3节)基于光热循环仪实验建立,提供了一种可接受的人工最小血液餐,以便量化蚊虫的吸血饱食情况(图3A)。通过持续5秒的红光脉冲(约627 nm)光遗传激活CO2感觉神经元,人工血液餐的薄层温度从25 °C升高至约35 °C(由热电偶在表面测量;图3B)。三种基因型的蚊虫分别在铝制饲喂板中提供人工血液餐(图3C)。Gr3-QF2、QUAS-CsChrimson和Gr3>CsChrimson蚊虫(每种基因型组n = 10次试验,每次14只蚊虫)均在铝制饲喂板中接受人工血液餐(图3C)。为测量实验过程中蚊虫随时间推移的饱食程度,使用SLEAP追踪蚊虫体表的关键点。该方法通过构建包含蚊虫腹部5个节点的骨架实现(图3D)。每次试验结束后,人工统计饱食蚊虫的数量。对照蚊虫品系Gr3-QF2和QUAS-CsChrimson表现出相似的平均饱食率(图3E,p = 0.401)。相比之下,Gr3>CsChrimson品系的取食率显著更高,平均饱食率达到53%(图3E,与Gr3-QF2相比p = 0.00078,与QUAS-CsChrimson相比p = 0.00097)。数据以小提琴图和箱线图(中位数、四分位距和范围)表示,并采用Kruskal-Wallis检验和Dunn检验(Holm校正),显著性阈值设为p < 0.05。单个蚊虫随时间的饱食情况通过5个节点所围成的腹部面积变化来确定(图3F)。这些结果表明,血液餐垫实验可用于评估光遗传激活CO2响应性神经元群体对蚊虫摄取人工血液餐行为的影响。
光控膜饲喂实验(第4节)中,将蚊子置于圆柱形实验区,使其可接触温热的血液餐,从而研究蚊子对血液源的趋性及吸血饱食情况。为确定对CO2感觉神经元进行光遗传学激活是否足以引起蚊子对血液源的趋近和取食行为,将Gr3>CsChrimson蚊子与对照组蚊子(每种基因型n = 10,其中n表示实验重复次数,每次实验每个容器中放置20只蚊子)置于光控膜饲喂装置中,并在15分钟内每10秒施加一次持续1秒的强红光脉冲(图4B)。为测量蚊子对膜饲喂器的趋近行为,采用包含三个标记点的SLEAP模型追踪已降落蚊子的头部、胸部和腹部,并统计位于目标区域内的个体数量(图4D、图4E)。与Gr3-QF2对照组相比,Gr3>CsChrimson蚊子随时间推移对血液餐区域表现出更强的趋近性(图4F,p = 0.027)。Gr3>CsChrimson蚊子与QUAS-CsChrimson对照组相比,趋近性差异无统计学意义(图4F,p = 0.310)。显著性分组通过Kruskal-Wallis检验确定,随后采用Holm校正的Dunn检验进行多重比较,显著性阈值设定为p < 0.05。数据以趋近血液餐的蚊子平均百分比表示,阴影区域表示标准误差。对照基因型Gr3-QF2和QUAS-CsChrimson的饱食率分别为26%和29%,通过手动计数评估(图4G,p = 0.351)。相比之下,Gr3>CsChrimson蚊子的饱食率显著高于两个对照组,平均达到61%(图4G,p < 0.001 对比 Gr3-QF2,p = 0.002 对比 QUAS-CsChrimson)。数据以小提琴图和箱线图(中位数、四分位距及全距)表示,并采用Kruskal-Wallis检验及Holm校正的Dunn检验进行分析,显著性阈值为p < 0.05。这些结果表明,光控膜饲喂实验是一种可行的方法,可用于评估光遗传学激活CO2神经元对蚊子趋血行为和饱食效应的影响。
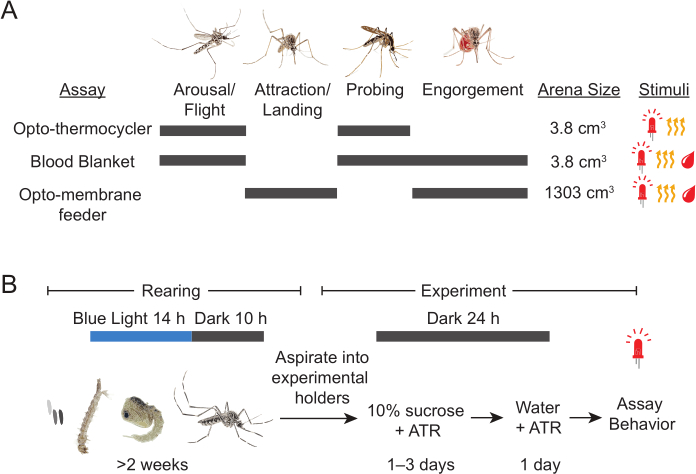
图 1:蚊虫光遗传学实验中的行为检测与饲养流程。(A)蚊虫寻找宿主行为的示意图,并展示了各项行为检测的特点。各行为检测所测量的宿主寻找步骤以灰色条形标示。(B)光遗传学实验用蚊虫的饲养时间线。图 1 由本论文作者使用 Adobe Illustrator 制作,使用无需授权。请点击此处查看该图的高清版本。
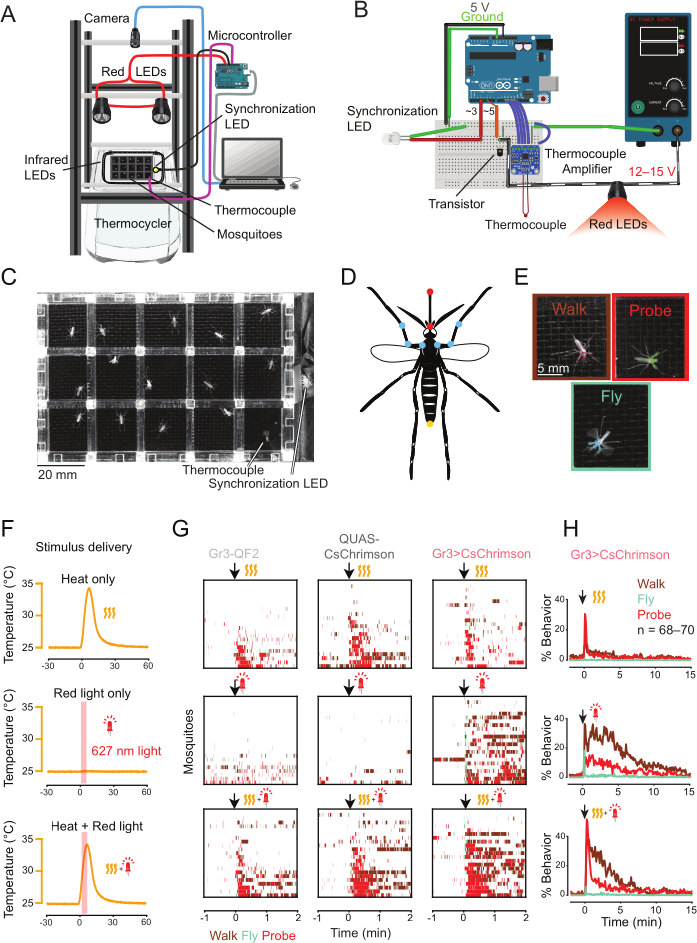
图 2:光遗传热循环仪定量分析光遗传激活期间蚊虫的觉醒与搜寻行为。(A)光遗传热循环实验示意图,包含置于PCR热循环仪金属块上的一组蚊虫,上方设有LED光源和摄像头。(B)微控制器电路图,用于检测热循环仪温度并控制LED光源。电路图使用Fritzing软件绘制,遵循CC-BY-SA 3.0许可协议(https://github.com/fritzing/fritzing-app/blob/develop/README.md)。该许可允许图像的完整再利用,前提是给予适当署名。(C)实验静止图像,展示可容纳最多14只蚊虫的亚克力板。右下角孔位中为热电偶。(D)SLEAP模型中用于姿态估计的蚊虫骨架结构。身体标记点包括:喙的尖端与基部,用于检测刺探行为(以红色显示);前足与胸部连接处、股节与胫节连接处、以及胫节与跗节连接处(以蓝色显示);以及腹部末端(以黄色显示)。采用俯视多目标模型。通过姿态估计算法与行为分类器对蚊虫的觉醒与刺探行为进行量化。(E)蚊虫行走、飞行与刺探行为示例,叠加SLEAP预测结果。行走与飞行作为觉醒行为的指标。(F)刺激信号输出图示。黄色波浪线表示体温水平的热刺激,红色LED表示红光刺激。(G)Gr3-QF2、QUAS-CsChrimson 和 Gr3>CsChrimson 基因型蚊虫在给予刺激后的行为谱图(每种基因型 n = 22–23 只个体蚊虫)。(H)Gr3>CsChrimson 蚊虫在光遗传激活后的持续行为(每组 n = 68–70 只个体蚊虫)。图 A–E 由作者使用 Adobe Illustrator 为本出版物原创绘制,无需版权许可。图(F–H)数据转载自 Sorrells 等,2022,遵循 CC BY 4.0 许可协议8。请点击此处查看该图的高清版本。
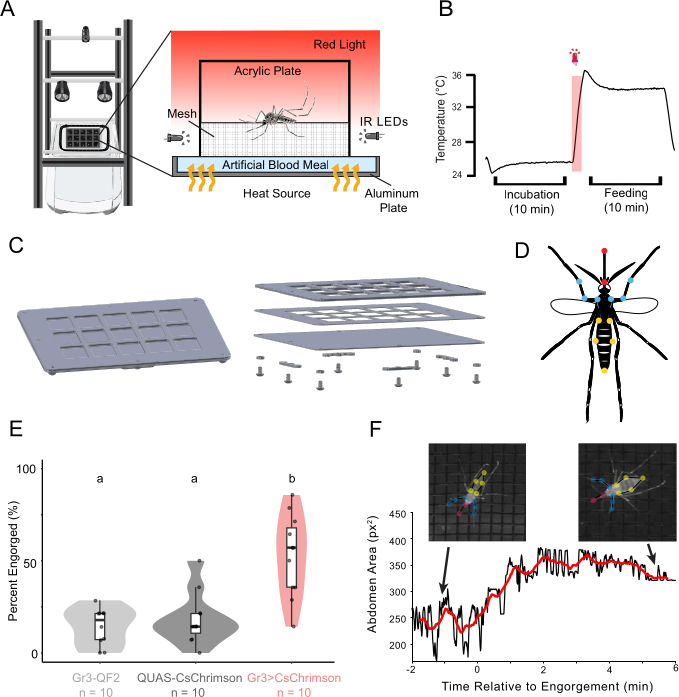
图 3:血液垫实验通过光遗传激活量化蚊子吸血饱食程度。(A)血液垫实验的示意图。蚊子被置于丙烯酸笼中,人工血液位于网状屏幕下方可供取食。(B)实验中记录的温度与红光刺激输出。(C)铝制血液垫喂食板组件的示意图。(D)用于姿态估计的 SLEAP 骨架,包括图 2D 中描述的关键点,以及腹部与胸部连接处两侧的四个点和腹部最厚部分边缘的点。饱食程度通过自上而下的多动物模型预测结果,计算腹部周长上五个点所围成的面积来测量。(E)小提琴图显示每种基因型蚊子对人工血液餐的平均饱食百分比(每种基因型共进行 10 次试验,每次 14 只蚊子)。显著性通过 Kruskal-Wallis 检验确定,随后进行 Holm 校正的 Dunn 检验。不同字母表示组间差异显著性 p < 0.05,相同字母的组间无显著差异。(F)Gr3>CsChrimson 动物随时间推移的饱食情况,以腹部面积衡量。红色趋势线显示了试验中八分钟内的 30 秒滑动窗口,x = 0 表示饱食开始的时间。图 3 中所有示意图均由作者使用 Adobe Illustrator 为本出版物绘制,无需获取版权许可。请点击此处查看此图的放大版本。
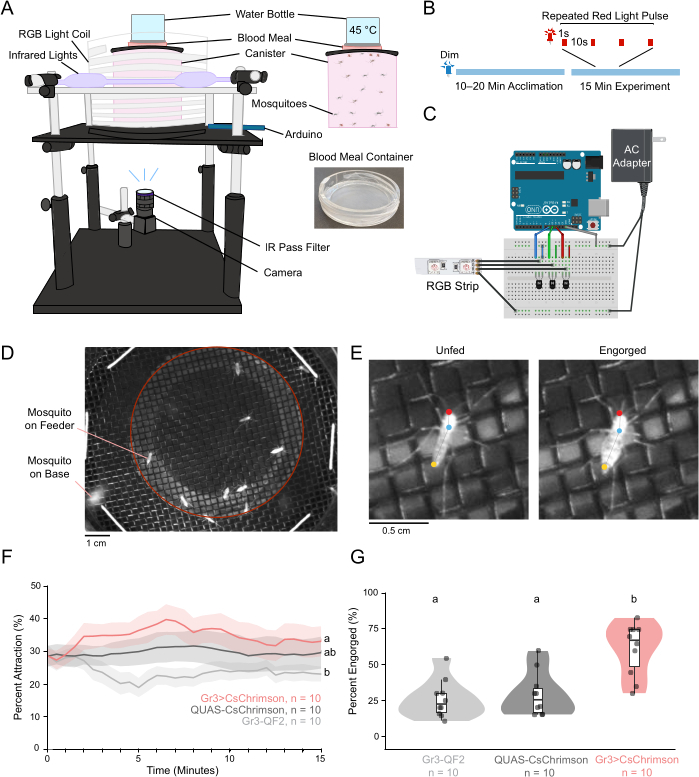
图 4:光控膜饲装置检测蚊子的趋性与吸血行为。(A)光控膜饲装置的示意图,展示各个独立组件。(B)实验试次的时间线。蓝色线条表示在适应期和整个实验过程中持续的弱蓝光。图中显示了一段实验刺激,代表间隔 10 秒、持续 1 秒的红光脉冲。(C)光控膜饲装置的接线示意图。电路图由作者使用 Fritzing 软件在 CC-BY 许可下绘制。(D)光控膜饲装置视频中的一个示例帧。红色圆圈内的蚊子被计数,用于计算趋性百分比。(E)未吸血与饱食血液的蚊子示例,其头部、胸部和腹部由 SLEAP 追踪模型在光控膜饲装置中进行标注。采用自下而上的多动物 SLEAP 模型,测量蚊子对放置血液餐区域的兴趣区趋性。(F)折线图显示不同基因型蚊子在血液餐区域的平均占据百分比(作为着陆行为的指标)随时间的变化(每种基因型进行 10 次实验,每次 20 只蚊子)。平均值每 30 秒绘制一次。阴影区域表示标准误。显著性通过 Kruskal-Wallis 检验确定,随后进行 Holm 校正的 Dunn 检验。不同字母代表差异显著的组别;显著性阈值定义为 p < 0.05。(G)小提琴图显示不同基因型蚊子吸食血液餐的平均饱食百分比。在(F, G)中,显著性通过 Kruskal-Wallis 检验确定,随后进行 Holm 校正的 Dunn 检验。具有相同字母标注的基因型之间无显著差异。显著性阈值定义为 p < 0.05。图 4 使用 Adobe Illustrator 制作,数据由作者为本出版物收集,使用无需版权许可。请点击此处查看此图的放大版本。
讨论
本文详细描述了检测神经元细胞类型在驱动宿主吸引和叮咬行为各阶段中充分性的实验方案。叮咬行为包含一系列动作步骤,从远距离探测、近距离吸引,到刺破皮肤以及吸血饱食。理论上,不同类型的神经元可能控制特定动作或步骤,偏向特定行为序列,延长整个行为的持续时间,或发挥其他多种作用。因此,需要采用多种检测方法来解析神经元在此过程中的功能。
在这些实验中,一些常见错误可能导致蚊虫反应不佳。为避免活动性低和摄食率低的问题,应在蚊虫活动高峰期进行实验,即在其培养箱光照周期与黑暗周期交替时段附近进行。在血液覆盖装置和光控膜饲器中出现摄食率低的情况,可能由人工血液质量不佳或温度设置不当引起。确保所有试剂(NaHCO3、ATP、去纤维羊血)均未过期并妥善保存。建议所有溶液均在实验当天配制,以确保最大程度的新鲜度。确保血液覆盖板与PCR热循环仪金属块表面直接接触。若残留水分,光控热循环仪和血液覆盖板可能产生冷凝水。实验前,应将板置于纸巾上以吸收任何水分。当观察到光遗传学响应不佳时,需确保蚊虫至少已满一周龄,并有充足时间摄取ATR,因为ATR是CsChrimson通道所必需的化学辅因子。
已开发出对从蓝光(约450 nm)到红光(约650 nm)波长范围敏感的光遗传学工具,覆盖了可见光谱。红光在昆虫中尤为有用,因为昆虫通常对这些波长的光敏感性较低,且行为反应较弱40。有趣的是,蚊子在飞行过程中会被包含人类皮肤色调中长波长成分的视觉刺激区域所吸引41。因此,在蚊子宿主吸引实验中使用红光可能成为一个限制因素,干扰对光遗传激活效应的解释。然而,遗传 对照 蚊子即使在高强度条件下广泛暴露于红光时,也表现出极微弱的行为反应(图2–4)。建议使用缺失驱动元件或效应元件构建体的遗传对照以及无光照对照,以确保对行为效应的准确解读。在其他物种的光遗传学实验中,常采用缺乏视黄醛辅因子ATR的对照;然而,用于饲养蚊子幼虫的鱼食含有维生素A(即ATR的前体),因此在此系统中该对照的效果较差。
本文所介绍的光遗传学刺激仅限于可调节光强度的持续性刺激。最有可能引发目标行为的光遗传学刺激,是那些能够紧密模拟自然神经元活动模式的刺激。因此,如果有神经记录数据可用,可据此设计刺激方案,以匹配观察到的强度和时间动态特征。当这些信息未知时,可以通过不同刺激和行为情境来筛选神经元的功能,但需注意,所得结果可能无法反映神经元在自然行为中的真实功能。尽管如此,将神经元活动驱动至超出自然范围的状态,仍可独特地用于探究神经回路或行为特性,正如电生理学可用于探究细胞特性一样。目前,光遗传学工具在蚊子中仅应用于感觉神经元,这一应用相较于递送自然刺激具有一些优势。传统测量蚊子宿主搜寻行为的策略依赖于真实 CO2 气体的递送。使用真实的 CO2 需要经过过滤和加湿的气流,这要求复杂的实验装置才能在短时间内精确地递送和清除气体9,10,42,43。气流和湿度本身都是蚊子趋性与导航的线索,因此光遗传学刺激作为一种方法,能够在排除这些干扰因素的情况下单独研究嗅觉刺激的影响,具有明显吸引力。光遗传学工具此前也已被用于研究性别和生理状态对行为的影响8,为蚊子生物学中这些重要问题提供了深入见解。
除了光遗传学技术外,这些实验方案还采用了用于评估蚊虫行为的常规检测方法,但存在一些局限性。为了便于清理,血液覆盖层使用仅含有促使蚊虫吸血所需味觉刺激物的人工餐。这一局限性可通过使用真实血液(如光控膜饲喂器中所用)或模拟宿主组织特性的仿生材料来克服。在光控热循环仪和血液覆盖层中,热量仅传递给行走或静止的蚊虫,而非飞行中的蚊虫,且受PCR热循环仪升降温速率的限制。因此,这些检测方法能够检测蚊虫的探刺和吸血行为,但无法检测其趋性行为。基于实验室的检测方法另一局限性在于,为了明确特定刺激线索的行为效应,实验中排除了蚊虫在自然条件下可能利用的其他线索。未来可设计更为复杂的实验室检测或半野外实验,以研究蚊虫在自然宿主取食环境中更广泛的生态行为特征。
光遗传学在蚊子研究中的另一个局限性是,目前创建的驱动品系很少超出感觉神经元的范围。因此,只有当该技术与中间神经元中表达的驱动品系相结合时,其全部潜力才能得以发挥,而这些中间神经元无法通过其他方法直接刺激。新近出现的资源,例如埃及伊蚊(Aedes aegypti)蚊子细胞图谱,为 蚊子神经遗传学研究的进展打开了大门44。未来需要进一步的工作来开发此类驱动品系,以探究蚊子的神经环路。同样,还需要更多可用于抑制神经元活动的光遗传学工具,以确定某一类神经元是否对特定行为具有必要性。尽管本文所展示的实验方法旨在测量宿主吸引和吸血行为,但这些方法也可拓展用于研究宿主搜寻过程中的其他阶段,以及交配、产卵和吸食花蜜等行为。光遗传学研究将为蚊子行为在神经环路水平上的调控机制提供新的见解,并可能催生阻断蚊媒疾病传播的新策略。
披露
作者无任何利益冲突需要披露。
致谢
感谢 Kim Lezon-Geyda、Fernanda Medeiros Contini 和 Yaoyu Jiao 对稿件提出的修改意见。本研究由美国国立卫生研究院(NIH)资助项目 DP2AI177891 支持。感谢由耶鲁大学卡夫里神经科学研究所资助的神经技术核心设施提供的技术建议。T.S. 是霍华德·休斯医学研究所(HHMI)弗里曼·赫拉博夫斯基学者。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1⁄8 英寸黑色亚克力 | McMaster-Carr | 8650K32 | 光控膜式喂食器结构 |
| 1⁄8 英寸透明亚克力 | McMaster-Carr | 8536K134 | 光控膜饲喂罐 |
| ¼ 1英寸黑色亚克力 | McMaster-Carr | 8560K259 | 光控膜饲喂器结构 |
| 交流电源适配器 | Jameco ReliaPro | 2197581 | 光控膜式喂食器结构 |
| 丙烯酸胶水 | 美国塑料公司 | 97562 | 光控膜式饲喂罐,血液覆盖笼 |
| 腺苷5′三磷酸二钠盐水合物 | Sigma Aldrich | A6419-1G | 人工血液餐 |
| 全反式视黄醛 | Spectrum Chemical | R3041-1GM | 光遗传学饲养 |
| 铝制光学平台 | Thorlabs | MB12 | 光控膜饲喂结构 |
| 铝板 0.03125 英寸 | McMaster-Carr | 89015K11 | 血毯喂养板 |
| 铝板 0.0625 英寸 | McMaster-Carr | 89015K37 | 血毯喂养板 |
| 动物部位追踪器(APT) | 霍华德·休斯医学研究所珍利亚农场布兰森实验室 | N/A | 版本 3.0,光热循环仪复现数据(图 2),2020 年 7 月 9 日下载 |
| Arduino IDE | Arduino | N/A | 版本 1.8.12,用于光热循环仪、血毯的刺激控制 &和光敏膜进样器 |
| Arduino Uno Rev3 微控制器板 | Arduino | A000066 | 光控膜进样器编程 |
| 黑色玻璃纤维窗纱 | 突破性高级产品 | IHLRS3684BL | 血毯笼 |
| 黑胶带 | Thorlabs | T137-2.0 | 光热循环仪 |
| 黑色扎带 | 扎带及其他用品 | ct242 | 光控膜式喂食器结构 |
| 遮光帘 | 设置商店 | 6520SF | 光热循环仪和血毯 |
| 蓝色LED灯 | 21LEDUSA | RB5730BLWP | 蚊虫饲养 |
| 瓶 | SKS 瓶 &和包装 | 0604-07 | 光控膜式血液加热器 |
| 底层饲料颗粒 | API | 5352983 | 喂养幼虫 |
| 相机 | 黑蝇 | U3-13S2M-CS,FLI | 记录检测实验的视频 |
| 点击计数器 | ULine | H-7350 | 幼虫稀疏 |
| 计算机 | 华硕 | X1407Q | 运行检测实验 |
| 浓缩漂白剂(8.25% 次氯酸钠) | VWR | 89501-620 | 光控膜进样器清洗 |
| CoolTerm | 罗杰·迈尔的免费软件 | N/A | 版本 2.0.1,用于光热循环仪、血毯的串口记录, &和光敏膜进样器 |
| 脱纤维羊血 | 止血实验室 | DSB100 | 光控膜饲器用血液餐 |
| 圆顶形六角 4-40 螺栓 | McMaster-Carr | 92949A105 | 血覆盖喂养板 |
| 环氧树脂 | Loctite | 1363118 | 光热循环仪丙烯酸板,光膜进样结构 |
| 乙醇 | Decon Labs | 2716 | 消毒 |
| 外置硬盘驱动器 | LaCie | LAC9000298 | 视频存储 |
| ffmpeg | FFmpeg | N/A | 版本 8.0.1,视频预处理 |
| 四英寸棉芯 | 里士满牙科 | 201226 | 喂食成年蚊子 |
| GitHub | GitHub, Inc | N/A | 用于光热循环仪(v1.0.0,https://github.com/sorrellslab/opto-thermocycler/releases/tag/v1.0.0)、血毯装置(v1.0.0,https://github.com/sorrellslab/bloodblanket/releases/tag/v1.0.0)和光控膜饲喂装置(v1.0.0,https://github.com/sorrellslab/opto-membranefeeder/releases/tag/v1.0.0)的代码、零件文件及 SLEAP 模型仓库 |
| Gr3>CsChrimson | N/A | N/A | 本研究中新建,详见步骤 1.2 |
| Gr3-QF2 蚊子 | N/A | N/A | 遗传试剂,DOI: 10.1016/j.cell.2013.12.044 |
| 带不透明门的培养箱 | 卡龙 | 7340-25 | 蚊虫饲养 |
| 红外LED光源 | Adafruit | 387 | 光热循环仪和血毯 |
| 红外LED灯带 | 波形照明 | 7031.85 | 光热循环仪、血毯和光膜结构 |
| 红外通滤光片 | Edmund Optics | 65-796 | 记录检测实验的视频 |
| 昆虫饲养笼 | Bugdorm | DP1000 | 成年蚊子饲养笼 |
| Janelia 自动动物行为注释器(JAABA) | 霍华德·休斯医学研究所珍利亚农场布兰森实验室 | N/A | Opto-thermocycler 重现的数据(图 2);版本 0.5.0 |
| 大汤杯 | WebstaurantStore | 50016SOUPPLA | 蚊虫饲养 |
| LED散热器 | Luxeon Star | N25-15B | 光热循环仪和血毯 |
| LED透镜 | Luxeon Star | 10209 | 光热循环仪和血毯 |
| LED透镜支架 | Luxeon Star | 10235 | 光热循环仪和血毯 |
| LED透镜胶带 | Luxeon Star | LT-01 | 光热循环仪和血毯 |
| LED 光源 | Luxeon Star | SP-01-D9 | 光热循环仪和血毯的红光刺激 |
| LED散热胶带 | Luxeon Star | LXT-S-12 | 光热循环仪和血毯 |
| 光学构建导轨 | Thorlabs | XE25L12、XE25L24、XE25L09、XE25T4、RA90、TRA6、TR12 | 光热循环仪与血液毯结构 |
| 光学支架 | Thorlabs | TR12 | 光控膜式喂食器结构 |
| 纸巾 | Pacific Blue | 27385 | 罐体清洗 |
| Parafilm | Amcor | PM-996 | 血液覆盖膜,光敏膜餐盒容器 |
| PCR热循环仪 | Eppendorf | 2231001196 | 光热循环仪和血毯 |
| 塑料样品杯 | 选择 | 999P2C | 成年蚊子的饲喂 |
| 塑料杯盖 | 选择 | 999PL2 | 成年蚊子的饲喂 |
| 聚碳酸酯盘 | Cambro | 21410CWCHCL | 饲养幼虫 |
| 半尺寸聚碳酸酯盘 | Cambro | 24CW135 | 光控膜餐清洗 |
| 聚碳酸酯半尺寸培养皿盖 | Cambro | 20CWCH135 | 光控膜餐清洗 |
| 聚碳酸酯平底锅盖 | Cambro | 10CWCH135 | 饲养幼虫 |
| 聚碳酸酯管 | McMaster-Carr | 8585K56 | 光控膜饲喂罐 |
| 功率计 | 相干的 | 1299161 | 所有检测方法 |
| QUAS-CsChrimson 蚊子 | N/A | N/A | 遗传试剂,DOI: 10.7554/eLife.76663 |
| RGB 灯光 | Digikey | 289-1189-ND | 光控膜片给饲刺激递送 |
| 直角夹 | Thorlabs | RA90 | 光控膜式喂食器结构 |
| Scotch Magic Tape | 3M | 104 | 光热循环仪和血毯丙烯酸盖 |
| 硅胶垫片,0.5 mm | McMaster-Carr | 1460N22 | 血毯喂养板 |
| SLEAP | 塔尔莫实验室 | N/A | 版本 1.4.1a2,各检测中蚊子的姿态追踪 |
| 碳酸氢钠,1 M 缓冲溶液,pH 8.0 | 赛默飞世尔科技 | J62495.AP | 人工血液餐 |
| 氯化钠溶液 | Sigma-Aldrich | S5150-1L 100 3532552 | 人工血液餐 |
| SpinView | Teledyne Vision Solutions | N/A | Version1.27.0.48,适用于全部三种检测的视频记录软件 |
| 喷雾瓶 | Uline | S-11686 | 消毒 |
| 蔗糖 | Sigma Aldrich | S0389-500G | 成年蚊子的饲喂 |
| 热电偶(T型) | Harold G Schaevitz Industries LLC | CPTC-120-X-N | 光热循环仪和血毯 |
| 热电偶放大器 | Adafruit | MAX31856 | 光热循环仪和血毯 |
| 计时器 | EnduraLight | RAC-MT | 控制光周期以进行蚊虫饲养 |
| 移液管 | 赛默飞世尔科技 | SAM-225 | 稀疏幼虫 |
| 垃圾袋 | Uline | S-23040 | 昆虫运输 |
| 抗紫外线网眼布 | McMaster-Carr | 87655K13 | 光控膜饲喂罐 |
| 水 | Sigma Aldrich | W4502-1L | 人工血液餐用于血毯 |
| 上蜡缝合线 | McMaster-Carr | 6356K91 | 光控膜罐盖 |
| 金属网 | McMaster-Carr | 9322T65 | 光控膜式喂食器结构 |
参考文献
- UNICEF, UNDP, World Bank, WHO Special Program for Research and Training in Tropical Diseases. Global vector control response 2017-2030. Geneva: World Health Organization; 2017.
- Knight KL, Stone A. A catalog of the mosquitoes of the world (Diptera: Culicidae). Lanham (MD): Entomological Society of America; 1959.
- Raji JI, DeGennaro M. Genetic analysis of mosquito detection of humans. Curr Opin Insect Sci. 2017;20:34-38.
- Coutinho-Abreu IV, Riffell JA, Akbari OS. Human attractive cues and mosquito host-seeking behavior. Trends Parasitol. 2022;38(3):246-264.
- McMeniman CJ, Corfas RA, Matthews BJ, Ritchie SA, Vosshall LB. Multimodal integration of carbon dioxide and other sensory cues drives mosquito attraction to humans. Cell. 2014;156(5):1060-1071.
- Gillies MT. The role of carbon dioxide in host-finding by mosquitoes (Diptera: Culicidae): a review. Bull Entomol Res. 1980;70(4):525-532.
- Geier M, Bosch O, Boeckh J. Influence of odor plume structure on upwind flight of mosquitoes towards hosts. J Exp Biol. 1999;202(Pt 12):1639-1648.
- Sorrells TR, Pandey A, Rosas-Villegas A, Vosshall LB. A persistent behavioral state enables sustained predation of humans by mosquitoes. eLife. 2022;11:e76663.
- Dekker T, Geier M, Cardé RT. Carbon dioxide instantly sensitizes female yellow fever mosquitoes to human skin odors. J Exp Biol. 2005;208(15):2963-2972.
- van Breugel F, Riffell J, Fairhall A, Dickinson MH. Mosquitoes use vision to associate odor plumes with thermal targets. Curr Biol. 2015;25(16):2123-2129.
- Liu MZ, Vosshall LB. General visual and contingent thermal cues interact to elicit attraction in female Aedes aegypti. mosquitoes. Curr Biol. 2019;29(13):2250-2257.e4.
- Chandel A, DeBeaubien NA, Ganguly A, et al. Thermal infrared directs host-seeking behavior in Aedes aegypti. mosquitoes. Nature. 2024;633(8030):615-623.
- Tang R, Busby R, Laursen WJ, Keane GT, Garrity PA. Functional dissection of mosquito humidity sensing reveals distinct Dry and Moist Cell contributions to blood feeding and oviposition. Proc Natl Acad Sci U S A. 2024;121(35):e2407394121.
- Burgess L. Probing behavior of Aedes aegypti. (L.) in response to heat and moisture. Nature. 1959;184(4703):1968-1969.
- Hol FJ, Lambrechts L, Prakash M. BiteOscope, an open platform to study mosquito biting behavior. eLife. 2020;9:e56829.
- Martin-Martin I, Williams AE, Calvo E. Determination of mosquito probing and feeding time to evaluate mosquito blood feeding. Cold Spring Harb Protoc. 2023;2023(6):pdb.top107659.
- Boyd MF, Stratman-Thomas WK. Studies on benign tertian malaria. VII. Some observations on inoculation and onset. Am J Epidemiol. 1934;20(2):488-495.
- Swanson MM, Poodry CA. The shibire(ts) mutant of Drosophila: a probe for the study of embryonic development. Dev Biol. 1981;84(2):465-470.
- Sweeney ST, Broadie K, Keane J, Niemann H, O'Kane CJ. Targeted expression of tetanus toxin light chain in Drosophila specifically eliminates synaptic transmission and causes behavioral defects. Neuron. 1995;14(2):341-351.
- Baines RA, Uhler JP, Thompson A, Sweeney ST, Bate M. Altered electrical properties in Drosophila neurons developing without synaptic transmission. J Neurosci. 2001;21(5):1523-1531.
- Hamada FN, Rosenzweig M, Kang K, et al. An internal thermal sensor controlling temperature preference in Drosophila. Nature. 2008;454(7201):217-220.
- Corfas RA, Vosshall LB. The cation channel TRPA1 tunes mosquito thermotaxis to host temperatures. eLife. 2015;4:e11750.
- Greppi C, Laursen WJ, Budelli G, et al. Mosquito heat-seeking is driven by an ancestral cooling receptor. Science. 2020;367(6478):681-684.
- Allen WE, DeNardo LA, Chen MZ, et al. Thirst-associated preoptic neurons encode an aversive motivational drive. Science. 2017;357(6356):1149-1155.
- Inagaki HK, Jung Y, Hoopfer ED, et al. Optogenetic control of Drosophila courtship using a red-shifted channelrhodopsin reveals experience-dependent influences. Nat Methods. 2014;11(3):325-332.
- Sahel JA, Boulanger-Scemama E, Pagot C, et al. Partial recovery of visual function in a blind patient after optogenetic therapy. Nat Med. 2021;27(7):1223-1229.
- Klapoetke NC, Murata Y, Kim SS, et al. Independent optical excitation of distinct neural populations. Nat Methods. 2014;11(3):338-346.
- Deisseroth K. Optogenetics. Nat Methods. 2011;8(1):26-29.
- Potter CJ, Tasic B, Russler EV, Liang L, Luo L. The Q system: a repressible binary system for transgene expression, lineage tracing, and mosaic analysis. Cell. 2010;141(3):536-548.
- Herre M, Goldman OV, Lu TC, et al. Non-canonical odor coding in the mosquito. Cell. 2022;185(17):3104-3123.e28.
- Wohl MP, McMeniman CJ. Batch rearing Aedes aegypti. Cold Spring Harb Protoc. 2023;2023(3):pdb.prot108017.
- American Committee of Medical Entomology, American Society of Tropical Medicine and Hygiene. Arthropod containment guidelines, version 3.2. Vector Borne Zoonotic Dis. 2019;19(3):152-173.
- Pleil JD, Wallace MAG, Davis MD, Matty CM. The physics of human breathing: flow, timing, volume, and pressure parameters for normal, on-demand, and ventilator respiration. J Breath Res. 2021;15(4):042002.
- Pereira TD, Tabris N, Matsliah A, et al. SLEAP: a deep learning system for multi-animal pose tracking. Nat Methods. 2022;19(4):486-495.
- Mathis A, Mamidanna P, Cury KM, et al. DeepLabCut: markerless pose estimation of user-defined body parts with deep learning. Nat Neurosci. 2018;21(9):1281-1289.
- Goodwin NL, Choong JJ, Hwang S, et al. Simple Behavioral Analysis (SimBA) as a platform for explainable machine learning in behavioral neuroscience. Nat Neurosci. 2024;27(7):1411-1424.
- Tillmann JF, Hsu AI, Schwarz MK, Yttri EA. A-SOiD, an active-learning platform for expert-guided, data-efficient discovery of behavior. Nat Methods. 2024;21(4):703-711.
- Skovorodnikov P, Zhao J, Buck F, et al. FERAL: a video-understanding system for direct video-to-behavior mapping. bioRxiv. 2025. doi:10.1101/2025.11.16.688666.
- Kabra M, Robie AA, Rivera-Alba M, Branson S, Branson K. JAABA: interactive machine learning for automatic annotation of animal behavior. Nat Methods. 2013;10(1):64-67.
- Autrum H, Bennett MF, Diehn B, et al. Comparative physiology and evolution of vision in invertebrates. A: Invertebrate photoreceptors. Berlin: Springer; 1979.
- Alberto DAS, Rusch C, Zhan Y, Straw AD, Montell C, Riffell JA. The olfactory gating of visual preferences to human skin and visible spectra in mosquitoes. Nat Commun. 2022;13(1):555.
- Dekker T, Cardé RT. Moment-to-moment flight maneuvers of the female yellow fever mosquito (Aedes aegypti. L.) in response to plumes of carbon dioxide and human skin odor. J Exp Biol. 2011;214(Pt 20):3480-3494.
- Demir M, Kadakia N, Anderson HD, Clark DA, Emonet T. Walking Drosophila navigate complex plumes using stochastic decisions biased by the timing of odor encounters. eLife. 2020;9:e57524.
- Goldman OV, DeFoe AE, Qi Y, et al. A single-nucleus transcriptomic atlas of the adult Aedes aegypti. mosquito. Cell. 2025;188(25):7267-7290.e26.
重印与许可
