该方案描述了C57BL/6N-Cracdem1(c.538-83 至 c.3352+255 缺失) 利用CRISPR/Cas9技术研究CRACD在心肌梗死后心脏重塑中作用的小鼠模型
本文内容
摘要
摘要
心肌梗死(MI)仍是全球范围内发病率和死亡率的主要原因。本方案描述了利用CRISPR/Cas9技术在C57BL/6N背景上构建并鉴定Cracd缺陷小鼠品系的方法。将Cas9 mRNA、gRNA构建体以及旨在产生3153-bp基因组缺失的供体模板共同注射入受精卵。通过PCR基因分型和Sanger测序确认编辑后的等位基因。为评估CRACD在MI后重塑中的功能作用,对Cracd缺陷小鼠和野生型(WT,C57BL/6N)小鼠实施左冠状动脉前降支永久性结扎诱导MI。术后第7天,使用经胸超声心动图和斑点追踪应变成像评估心功能及左心室壁运动,随后进行H&E和马松三色染色的组织病理学评估。代表性结果显示,与WT对照组相比,Cracd缺陷小鼠表现出心室扩张减轻且收缩功能得以保留。本方案为研究CRACD在心脏病理生理学中的机制提供了一个可靠的实验平台。
引言
心肌梗死(MI)仍是全球范围内导致发病和死亡的主要原因,给全球心血管健康带来重大负担1。MI 后的长期预后主要取决于左心室(LV)重构过程2,该过程包括心室扩张、室壁变薄以及间质纤维化3,4,这些是导致心力衰竭(HF)进展的关键因素。由 MI 后心脏重构引起的心力衰竭在全球范围内的发病率进一步加重了心血管疾病的负担5。尽管这些临床观察已有充分证据支持,但目前仍缺乏利用敏感且可重复的活体模型系统性研究特定基因在 MI 后重构中作用的研究。目前尚无将 CRISPR/Cas9 基因敲除模型与先进应变成像技术相结合以评估 CRACD 等细胞骨架调控因子功能的实验方案。因此,亟需一种能够实现精确基因操作和高分辨率心脏表型分析的方法。
肌动蛋白动力学帽蛋白抑制调节因子(CRACD),也称为KIAA1211,是一种主要定位于细胞质的肌动蛋白聚合调节因子,在细胞骨架动态过程中发挥关键作用6。CRACD通过与肌动蛋白帽蛋白(CAPZA1、CAPZA2、CAPZB)结合,阻止其与肌动蛋白丝的正端结合,从而正向调控肌动蛋白的聚合7。在上皮组织中,CRACD通过维持肌动蛋白细胞骨架的完整性,在维持细胞形态和信号转导中发挥重要作用8,9。在肿瘤细胞中,CRACD的异常调控与细胞转移和增殖能力增强相关6,10。CRACD在心脏中的作用尚未完全阐明。心脏转录组学及实验干预研究表明,Cracd基因表达可响应病理应激,并可能在心室重构过程中调控与细胞骨架动态相关的基因9,11。此外,其抑制性蛋白CapZ与心脏病理密切相关:CapZ的磷酸化可调控苯肾上腺素诱导的肥大过程中肌原纤维的生长12。我们早期的研究表明,CRACD的适度下调可在急性缺血后保护心肌免受损伤,并维持肌原纤维的收缩功能13。这些发现提示CRACD可能在心肌梗死(MI)后不良性心室重构中发挥作用。然而,目前尚缺乏系统的体内功能缺失研究来验证Cracd基因缺陷是否能够调节MI后的重构过程,这主要是由于缺乏经过验证的、在缺血应激条件下构建并表征Cracd缺陷小鼠的逐步操作方案。
目前存在多种构建组成型基因敲除小鼠的方法。传统的胚胎干细胞(ES细胞)同源重组技术虽然精确,但成本高、耗时长(12–18个月),且仅限于某些小鼠品系14。N-乙基-N-亚硝基脲(ENU)诱变可产生随机点突变,但需要大量的回交和测序工作15。相比之下,CRISPR/Cas9技术在本研究中具有明显的优势:(i)通过直接向受精卵注射,可将实验周期缩短至4–6个月;(ii)可删除较大的基因组片段(3153 bp),确保基因功能完全丧失;(iii)可在C57BL/6N背景上直接操作,无需进行品系转换;(iv)无需使用筛选标记,从而最大限度减少对转录的非预期干扰。因此,CRISPR/Cas9是构建适用于常规心血管表型分析的Cracd缺陷小鼠品系最高效的选择。该技术已广泛应用于精确的体内功能缺失研究16,17。
斑点追踪应变成像是一种后处理技术,通过逐帧追踪心肌内天然声学斑点的运动,从而计算心肌变形参数,如应变(长度的相对变化)和应变率(变形速率)18。与传统的M型或二维超声心动图不同,后者仅提供整体功能指标(如射血分数、缩短分数、左心室内径),且对节段性室壁运动异常相对不敏感,而应变成像能够量化各节段的收缩功能。这一点在心肌梗死后早期尤为重要,因为在该时期,非梗死节段的代偿性过度收缩可能维持整体射血分数,尽管已存在显著的区域性功能障碍。斑点追踪相较于传统终点指标具有多项优势:它可提供节段性的应变和应变率、位移及速度,从而检测细微的亚临床改变19;可在不可逆重构发生之前识别出收缩不同步和早期收缩功能缺陷;并能直接评估对缺血最敏感的内膜下心肌层20。在本研究中,CRACD是一种细胞骨架调节因子,可能在微观层面影响心肌纤维的收缩功能。传统的基于心腔的测量方法很容易遗漏此类局部机械效应。因此,将斑点追踪分析整合入本实验方案,有助于更灵敏地检测Cracd缺失所带来的早期保护作用。综上所述,在本方案中引入斑点追踪技术,为评估心肌梗死后重构过程提供了一种敏感且定量的工具,尤其适用于心肌梗死后第一周内早期扩张和收缩功能障碍显现的关键时期21,22。
本方案旨在为研究人员提供一种利用组成型基因敲除和高分辨率成像技术,研究特定基因缺失对心肌梗死(MI)后急性期(7天)心脏重塑功能影响的方法。该方案适用于以全局性缺失目标基因为可接受条件、主要终点为早期收缩功能及结构变化的假设生成型研究。然而,需考虑若干局限性。首先,Cracd 缺陷型小鼠为全身性敲除模型,因此所观察到的心脏保护效应不能完全归因于心肌细胞中 CRACD 的缺失,系统性因素也可能参与其中。未来需要采用条件性敲除策略以实现心脏组织特异性基因删除。其次,本方案仅聚焦于单一时间点(第7天),未涉及慢性期重塑或心力衰竭(HF)的进展过程,需开展超过急性期的纵向研究予以补充。第三,斑点追踪分析依赖高质量图像(清晰的内膜边界)及专用软件,而这些资源并非所有核心设施均具备。尽管存在上述局限,本方案仍为参与心肌梗死后心脏重塑相关基因的初步功能表征提供了可靠且可重复的实验平台。
本研究旨在利用CRISPR/Cas9系统生成并验证一个 Cracd-缺陷小鼠模型(C57BL/6N-)Cracdem1 (c.538-83 至 c.3352+255 缺失)) 用于研究影响的 Cracd MI后心脏重构和心室壁运动的缺陷。在野生型(WT,C57BL/6N)和 Cracd-缺陷小鼠,并在心肌梗死(MI)后一周进行了全面评估。评估内容包括常规超声心动图参数、斑点追踪应变分析以及组织病理学评价。我们特别关注心肌梗死后早期阶段(第7天),以捕捉初始的心室重构事件,并确定是否 Cracd 缺乏会影响心肌梗死急性期的心室扩张和收缩功能。这些发现有望为CRACD在调节心肌梗死后不良心脏重构中的作用提供有价值的见解。
方案
所有动物实验均经广东省生物技术研究所机构动物护理与使用委员会批准(批准号:IACUC2025179)。本研究使用了20只SPF Cracd缺陷型小鼠及20只年龄与体重匹配的野生型小鼠。所有小鼠均为10–12周龄,体重20克–25 g。所有雄性动物均饲养于广东生物技术研究所(广东省实验动物监测所)内一所获得 AAALAC 认证的设施中(许可证号:SYXK (粤) 2016-0122)。饲养环境维持在 22–25 °C 与 50–在12小时光照/12小时黑暗循环下,相对湿度为70%。
1. 生成 Cracd使用 CRISPR/Cas9 技术构建基因敲除小鼠
- 利用CRISPR/Cas9基因编辑技术构建 Cracd背景为C57BL/6N的缺陷型小鼠。删除基因组中从c.538-83至c.3352+255(第5内含子部分至第6内含子)的序列。 Cracd 通过同源定向修复。
注意小鼠 Cracd 该基因(NCBI RefSeq:NM_001163793.1;Ensembl:ENSMUSG00000036377)位于5号染色体,包含9个外显子,其ATG起始密码子位于外显子2,TAA终止密码子位于外显子9。 - 设计靶向载体gRNA序列及供体寡核苷酸(两侧各连接120 bp同源序列的靶向序列)。
- 登录 NCBI 网站,选择 Primer-BLAST 功能,设计用于基因分型的 PCR 引物。
- 粘贴 NCBI 参考序列编号 Cracd (NM_001163793.1) 至 PCR 模板字段,指定扩增的外显子范围,然后点击 “获取引物” 以获取多对候选引物,用于基于PCR的缺失等位基因与野生型等位基因检测。
- 设计单链向导 RNA (gRNA),使其靶向位于预期缺失区间两侧的位点。 Cracd 基因。
- 使用在线CRISPR设计工具选择四个gRNA序列(位于PAM上游20个核苷酸处)。
- 为最大限度减少潜在脱靶效应,请使用 CRISPRater 对候选 gRNA 进行评分,并选择两个最优序列(包含 NGG PAM)。
注意示例选定序列:
gRNA-A1: CGGCGCTCTTAACATCCAGAGGG (评分: 0.71)
gRNA-A2: CCCTTCAGTCTGGGTAGTAGAGG (评分: 0.71)
选择 CRISPRater 评分合格的 gRNA。 ≥ 0.5. 对于体外验证,接受 gRNA 的 > 在 Cas9/gRNA 靶向效率检测试剂盒中实现 50% 的切割效率。
- 设计单链供体寡核苷酸以促进预期断裂点的高效连接。示例供体序列: TTAACCATCAACGGGCCGCTGCAAGGGCTGCTGT
GTCTATA CTCAGGACCACCTGCCCTCTAGAGGCAGGAAGGT
AGAGTTCCAAGCTCTGCTGTGCTAGGTTAAATGCAACTTAACATC. - 将 Cas9 mRNA、gRNA 及供体寡核苷酸共同注射入受精卵以生成 Cracd缺陷型小鼠。通过体外转录制备 Cas9 mRNA 与 gRNA。
- gRNA 制备。
- 转录gRNA 体外 使用MEGAshortscript试剂盒从DNA模板合成RNA™ T7转录试剂盒(参见 材料列表) 按照制造商'本方案。
- 使用 RNA 纯化试剂盒纯化转录的 gRNA(参见 材料列表) 并用无 RNase 水洗脱。
- 使用体外 Cas9/gRNA 靶向效率检测试剂盒评估 gRNA 切割活性(参见 材料列表).
- 所有 RNA 制备步骤均在冰上使用 RNase 进行操作。‑免费耗材(移液器吸头、试管、水)。RNA样品需全程置于冰上以防降解。
- 为执行切割分析:将转录的 gRNA(25 ng/µL) 与重组 Cas9 蛋白 (50 ng/µL) 以及含有靶序列的 PCR 扩增 DNA 片段(50 ng)。
- 将反应体系置于37°C孵育。 °30 分钟。
- 将产物在 2% 琼脂糖凝胶上电泳,以观察未切割与切割条带。
- 计算切割效率,即切割条带强度与总(切割 + 未切割)条带强度之比。
- 接受 gRNA > 50% 切割效率。
- Cas9 mRNA 的制备。
- 解冻 T7 ARCA mRNA 试剂盒中的试剂(参见 材料列表).
- 在室温下,将10 µ2 升× ARCA/NTP 混合液,1 µL 模板 DNA,2 µ20 μL T7 RNA 聚合酶混合液,以及无核酸酶水至终体积 20 μL。 µL.
- 充分混匀,在微量离心机中进行脉冲离心(5000转/分,5秒)。 × g并于37℃下孵育 °30 分钟。
- 通过加入2 µ1 U/μL 的 DNase IµL),混匀,并于 37°C 孵育。 °在 37°C 下孵育 15 分钟以获得 Cas9 mRNA。可选择性地加入 1 µ40 单位/微升的核糖核酸酶抑制剂µL) (参见 材料列表) 加入反应体系以防止 RNA 降解。
- 所有步骤均在冰上操作并使用RNase抑制剂。‑免费耗材。将 Cas9 mRNA 置于冰上保存,直至使用。
- 对4周龄C57BL/6N雌性小鼠进行超数排卵处理:腹腔注射5 IU孕马血清促性腺激素(PMSG),48小时后再注射5 IU人绒毛膜促性腺激素(hCG)。
注意PMSG 与 hCG 是可能引起皮肤过敏的激素。操作时请佩戴手套,并将针头弃置于锐器盒中。 - 约14–注射 hCG 18 小时后,对 C57BL/6N 雌性小鼠实施安乐死,并取出一只 8–12周龄C57BL/6N雄性小鼠经颈椎脱臼法处死。从雌鼠输卵管中收集卵母细胞,并从雄鼠附睾尾中收集精子。
注意安乐死必须按照机构指南执行。颈椎脱位法仅应由受过培训的人员操作。 - 在获能培养基中使精子获能(参见 材料列表).
- 将少量精子悬液加入卵母细胞中进行体外受精,并共培养3小时。–37°C 下 4 小时 °以获取受精合子。
- 将转录的 gRNA 和 Cas9 mRNA 用无 RNase 水稀释至工作浓度(通常为 25 ng/μL)。µL 用于 gRNA,50 ng/µL for Cas9 mRNA) 与供体寡核苷酸,浓度为 10 ng/µL.
- 显微注射 1–使用显微注射系统将 2 pL 混合物注入受精卵的细胞质中(参见 材料列表).
- 在体视显微镜下,通过观察两个清晰可辨的原核及一个完整的极体,以识别健康合子。
- 将300枚健康受精卵移植至与输精管结扎雄鼠交配的假孕雌鼠输卵管中。
注:这将产生 2 只阳性奠基小鼠(F0)。 - 使用 RNase‑游离水和冰‑在稀释过程中保持低温条件以维持 RNA 完整性。
- 通过尾组织活检的PCR基因分型鉴定F0代小鼠(参见第1.6节)。
- 将 F0 代奠基鼠与野生型小鼠交配,以产生 F1 代杂合子后代,从而获得该缺失的种系传递。
- 将杂合 F1 代小鼠进行互交,以产生纯合 F2 代。 Cracd缺陷小鼠。
- gRNA 制备。
- 聚合酶链式反应 (PCR) 基因分型
注意以下方案使用商业化的 TIANamp 基因组 DNA 试剂盒(参见 材料列表缓冲液GL为裂解缓冲液,缓冲液GB为结合缓冲液,缓冲液WA与缓冲液WB则为洗涤缓冲液。- 取约 2–将5毫米小鼠尾组织置于含有180微升裂解缓冲液的微量离心管中 µ缓冲液 GL,20 毫升 µL 蛋白酶 K(20 mg/mL 储备溶液),以及 10 µRNase A(10 mg/mL 储存液)的 L。
- 将样品在56°C下孵育。 °置于 4°C 过夜以消化组织。
- 将试管在 13800 × g 下离心。 × g 在室温下离心 2 分钟,使组织碎片沉淀,并将上清液转移至新管中。
- 加入 200 µ200 μL 缓冲液 GB µ向上清液中加入 1 体积的 100% 乙醇,充分混匀,并将混合物转移至置于收集管中的离心柱上。
- 以 13800 × g 离心 × g 在室温下静置 2 分钟,弃去流出液。
- 添加 500 µ向柱中加入 L 缓冲液 WA,以 13800 × g 在室温下静置 1 分钟,弃去流出液。
- 小心加入 700 µ向离心柱中加入 L 缓冲液 WB(含乙醇的洗涤缓冲液,已与 100% 乙醇预混),以 13800 × g 在室温下离心 1 分钟,弃去流出液。
- 向层析柱内壁施加缓冲液WB以冲洗残留盐分。
- 重复步骤 1.6.5 一次,然后将层析柱转移至新的收集管中,以 13800 × g 在室温下干燥2分钟,使膜干燥并去除残留乙醇。
- 将层析柱置于新的1.5 mL微量离心管中。加入50–200 µ升无菌水或洗脱缓冲液(预热至 65℃) °C) 将膜中心孵育 5 分钟。
- 以 13800 × g 离心柱。 × g 在室温下静置 2 分钟以洗脱 DNA。
- 为提高DNA产量,可将流出液重新加至膜上,或额外添加50–200 µL 无菌水,孵育 5 分钟。
- 进行最后一次离心,转速为 13800 × g 持续 2 分钟。
注意预期 DNA 产量为 50–200 纳克/µL 来自尾组织;A260/A280 比值为 1.8–2.0 表示纯 DNA。
- 取约 2–将5毫米小鼠尾组织置于含有180微升裂解缓冲液的微量离心管中 µ缓冲液 GL,20 毫升 µL 蛋白酶 K(20 mg/mL 储备溶液),以及 10 µRNase A(10 mg/mL 储存液)的 L。
- 通过单次反应中使用三种引物的多重 PCR 进行基因分型。
- 设计三对引物以在一次PCR反应中区分野生型、杂合子与纯合子基因型:正向引物F1(5’-CAGAAGTCATAGCAGCAAGGCAG-3’,结合于缺失区域上游),正向引物F2(5’-GAGGGAATTGAGAGGGAGCC-3’结合于缺失区域(仅存在于野生型等位基因中)以及反向引物R1(5’-GCCAATTTAGCTGCTTCAAATGTTC-3’通用下游反向引物位于缺失区域下游。
注靶向等位基因仅在缺失存在时产生421 bp扩增子(F1 + R1);野生型等位基因仅在完整等位基因存在时产生357 bp扩增子(F2 + R1)。 - 在 25 μL 反应体系中配制 PCR 反应液。 µ总体积为 L,其中包含 50–100 纳克基因组 DNA,0.2 µ每种引物(F1、F2 和 R1)的浓度为 200 µM。 µM dNTPs, 1.5 mM MgCl₂以及 1 U Taq DNA 聚合酶(参见 材料列表).
- 请使用以下热循环程序:初始变性温度为 95 °95°C 3分钟;35个循环:95°C变性 °在 60°C 下退火 15 秒°在72°C下延伸15秒。 °在72°C进行最终延伸25秒; °C 5 分钟。
- 使用1%琼脂糖凝胶对PCR产物进行电泳分离。–2%琼脂糖凝胶电泳(120 V,30分钟)于1× TAE 缓冲液。
- 基于条带模式的基因型判读:野生型仅显示357 bp条带(F2+R1);杂合子同时显示421 bp(F1+R1)和357 bp(F2+R1)条带;纯合子仅显示421 bp条带(F1+R1)。
- 设计三对引物以在一次PCR反应中区分野生型、杂合子与纯合子基因型:正向引物F1(5’-CAGAAGTCATAGCAGCAAGGCAG-3’,结合于缺失区域上游),正向引物F2(5’-GAGGGAATTGAGAGGGAGCC-3’结合于缺失区域(仅存在于野生型等位基因中)以及反向引物R1(5’-GCCAATTTAGCTGCTTCAAATGTTC-3’通用下游反向引物位于缺失区域下游。
2. 心肌梗死模型建立
- 通过吸入3%异氟烷(以1升/分钟流速的100%氧气输送)麻醉小鼠,将其仰卧位放置于手术平台上,并通过无足部退缩反射确认达到深度麻醉状态。
注意异氟烷是一种挥发性麻醉剂。为避免吸入,仅可在通风良好的区域或通风橱下使用。 - 使用20号静脉导管鞘进行经口气管插管。双眼涂抹眼用软膏,以防止手术期间角膜干燥。
- 插管成功后,将导管连接至机械呼吸机,以2%异氟烷维持通气和麻醉。
注意成功插管的确认标志为可见的胸部运动与呼吸机同步。
- 插管成功后,将导管连接至机械呼吸机,以2%异氟烷维持通气和麻醉。
- 使用脱毛膏去除前胸毛发。以环形方式多次涂抹聚维酮碘与70%酒精进行手术区域消毒,操作应从中心开始并向外扩展。
- 在皮肤完全暴露后,于背部正中线处作一长约1厘米的纵向切口。–于左侧胸壁第2与第3肋间作1.5厘米切口,打开胸腔。
- 切开心包,充分暴露心脏。
注意手术操作必须在无菌条件下进行。使用适当的个人防护装备,包括手套和外科口罩。
- 以左心耳下缘为解剖标志,将一根7–在左前降支冠状动脉 (LAD) 下方约 2 毫米处放置一根 0 号无创缝合针。–距其起点 3 毫米处。
- 将针头刺入约0.5厘米深度。–1 毫米,并缓慢收紧结扎线以避免心肌撕裂。
- 通过观察结扎部位远端左心室前壁在30秒内出现苍白(变白)现象,以确认闭塞成功。
- 在假手术对照组中,打开胸腔并将缝线穿过冠状动脉下方,但不打结。
- 建立模型后,依次缝合肋骨(4-0可吸收缝线,单纯间断缝合)与皮肤(4-0可吸收缝线,连续缝合)以闭合胸腔。待小鼠恢复稳定自主呼吸后,拔除气管插管。
- 将小鼠置于加热垫(37 °C) 直至完全恢复意识。
- 给予术后镇痛(例如,丁丙诺啡 0.05–根据机构动物护理与使用委员会指南,以0.1 mg/kg的剂量,每12小时皮下注射一次,持续48小时,并在术后数日内密切监测其健康状况。
注意监测痛苦迹象(弓背姿势、毛发蓬乱、活动减少、体重减轻) > 20%).
- 给予术后镇痛(例如,丁丙诺啡 0.05–根据机构动物护理与使用委员会指南,以0.1 mg/kg的剂量,每12小时皮下注射一次,持续48小时,并在术后数日内密切监测其健康状况。
- 死亡率与排除标准。
- 记录心肌梗死手术后7天内死亡的小鼠数量。
注意在典型队列中,预期死亡率约为10%。–至术后第7天为20%,野生型与突变型之间无显著差异。 Cracd‑缺陷型小鼠。常见的死亡原因包括导致急性心力衰竭的广泛性梗死、手术出血或气胸。排除任何存在持续性心律失常(心率 < 350 bpm)或严重痛苦迹象(如弓背、毛发蓬乱、体重减轻 > 20%)的后续超声心动图与组织学分析。对于假手术组‑接受手术的小鼠,死亡率应 < 5%.
- 记录心肌梗死手术后7天内死亡的小鼠数量。
3. 超声心动图评估
- 动物准备与麻醉
- 开启高分辨率小动物超声成像系统(参见 材料列表) 及其集成的加热台。
- 确保将合适的高频换能器牢固地连接到安装装置上,操作时请遵循制造商指南。’按照说明书操作。将加热台温度设定为37°C。 °C 并使其稳定。
- 将小鼠置于诱导箱中,使用含3%异氟烷的氧气(1–2 升/分钟)直至踏板退缩反射消失。将麻醉后的小鼠以仰卧位转移至加热平台。
- 使用1%异氟烷维持麻醉状态。–通过鼻锥给予 1.5% 异氟烷,调整剂量以维持心率在 450 次/分钟。–550 次/分钟。
- 双眼涂抹眼膏以防止角膜干燥。
- 剃除胸部区域毛发,均匀涂抹脱毛膏,时间不超过3分钟,随后用湿纱布彻底清除脱毛膏。
- 必要时用温盐水轻轻冲洗皮肤并擦干该区域。在肢体接触部位涂抹电极膏,粘贴体表心电图电极,并用胶带固定。
注意确认心电图稳定且心率低于450次/分钟–心率达到每分钟550次后,方可进行超声成像。
- 开启高分辨率小动物超声成像系统(参见 材料列表) 及其集成的加热台。
- 常规超声心动图图像采集
- 将小鼠以水平仰卧位置于加热台上,必要时可略微向左倾斜以优化心脏成像效果。
- 在无毛的左心前区涂抹足量预热的超声耦合剂,注意避免产生气泡。
- 将换能器轻柔地置于胸壁左侧胸骨旁位置。调整其方向,使指示标记指向小鼠。’调整其右肩位置,并微调角度与压力以优化图像质量。
- 切换至B型(二维)成像模式,调整深度、聚焦区域及帧率,以获取清晰的左心室胸骨旁长轴切面图像。可接受的图像质量要求心内膜边界清晰可见,无信号缺失。
- 心率稳定后(450–550 bpm),采集三个独立的胸骨旁长轴B型电影循环,每个循环至少包含3个心动周期。–连续 5 个心动周期。
- 按下每个循环以保存 “影像存储”并使用代表性静态帧进行存储。 “帧存储”.
- 从长‑轴切面视图,将探头旋转90度° 顺时针旋转以获得短片段‑中轴面视图‑乳头层。
- 获取三个独立的短片‑B轴‑模式电影循环(每个包含 ≥ 3–5 个循环。
- 激活 M‑模式,将光标垂直于室间隔和后壁放置,并记录三个独立的 M 型超声心动图。‑模态追踪图。
注意可接受的M‑模式追踪技术要求在完整心动周期内,心内膜边界均清晰可见。
- 使用 VevoLab 3.2.0 软件(参见 材料列表) 测量M的以下参数:‑根据美国超声心动图学会指南进行模式描记‑边缘法:舒张期与收缩期室间隔厚度(IVSd、IVSs)、舒张期与收缩期左心室内径(LVIDd、LVIDs)以及舒张期与收缩期左心室后壁厚度(LVPWd、LVPWs)。
- 使用 Teichholz 公式计算左心室射血分数 (EF) 和短轴缩短率 (FS):EF (%) = [(LV Vold - LV Vols) / LV Vold] × 100, LV Vold = ((7 / (2.4 + LVIDd)) × 左心室舒张末期内径3), 左心室收缩末期容积 = ((7 / (2.4 + 左心室收缩期内径)) × 左心室收缩末期内径3),FS (%) = [(LVIDd – 左心室收缩末期内径 / 左心室舒张末期内径 × 100.
注意对于每只小鼠,测量值均取自动物模型下三个连续心动周期的平均值。‑模式记录,并对三次独立记录取平均值,最终每只小鼠每个参数共获得9次测量数据。
- 使用 Teichholz 公式计算左心室射血分数 (EF) 和短轴缩短率 (FS):EF (%) = [(LV Vold - LV Vols) / LV Vold] × 100, LV Vold = ((7 / (2.4 + LVIDd)) × 左心室舒张末期内径3), 左心室收缩末期容积 = ((7 / (2.4 + 左心室收缩期内径)) × 左心室收缩末期内径3),FS (%) = [(LVIDd – 左心室收缩末期内径 / 左心室舒张末期内径 × 100.
- 将小鼠以水平仰卧位置于加热台上,必要时可略微向左倾斜以优化心脏成像效果。
- 斑点追踪应变分析
- 使用专用分析软件(VevoLab 3.2.0 中的 VevoStrain 模块)进行斑点追踪分析。
- 打开一个清晰的胸骨旁长轴B型电影循环,选择 "Vevo 应变" 进入应变分析模式,仅保留完整心动周期,并选择 "长轴".
- 手动描记舒张末期的心内膜边界。‑舒张期帧。绘制心内膜边界后,软件自动生成心外膜边界(按需调整)。随后启动应变分析并激活 "切换轮廓/矢量/轨迹线/B模式" 用于可视化运动轨迹的功能。
- 通过颜色评估追踪质量‑编码网格:其应呈现绿色,紧密贴合心内膜与心外膜边界且无跳动,并随心肌收缩/舒张同步运动。若否,则需手动精修边界并重新运行。‑分析。
- 激活 "时间‑致‑峰分析" 将左心室划分为六个节段(基底前段、中部前段、心尖前段、心尖后段、中部后段、基底后段),每种颜色代表一个独立节段。获得满意的追踪效果后,导出壁运动参数数据:纵向与径向的速度(cm/s)、位移(cm)、应变(%)及应变率(1/s)。
注意若三次采集尝试后追踪质量仍不佳(例如应变曲线不稳定,或无法清晰可视化运动轨迹),则将该小鼠排除在应变分析之外。
- 使用专用分析软件(VevoLab 3.2.0 中的 VevoStrain 模块)进行斑点追踪分析。
4. 组织病理学分析
- 超声心动图检查后,对深度麻醉的小鼠给予致死剂量的异氟烷,并根据机构指南实施辅助物理方法(例如颈椎脱位)。
- 打开胸腔,迅速摘取心脏,并在冰冷的磷酸盐缓冲盐水(PBS)中轻柔冲洗心脏。
注意安乐死必须按照机构批准的方案执行。
- 打开胸腔,迅速摘取心脏,并在冰冷的磷酸盐缓冲盐水(PBS)中轻柔冲洗心脏。
- 修剪心脏,移除大血管,并从心尖至心底横向切割成两半。–3片(约2毫米厚)–3 毫米厚)。
- 将组织切片浸入含4%多聚甲醛的PBS溶液中,并于4℃条件下固定。 °C 12 小时–24 小时。
注意固定液与组织的体积比应至少为10:1。
注意多聚甲醛具有毒性,且为疑似致癌物。操作须在通风橱内进行,并穿戴适当的个人防护装备(手套、实验服、护目镜)。请根据机构指南,将多聚甲醛废料作为危险化学品废物进行处理。
- 将组织切片浸入含4%多聚甲醛的PBS溶液中,并于4℃条件下固定。 °C 12 小时–24 小时。
- 将组织依次通过梯度乙醇系列(50%、70%、80%、95%、100% 乙醇,各1小时)进行脱水,在二甲苯中透明(更换两次,每次30分钟),用石蜡包埋,并以4微米厚度切片。–5 µ使用切片机将其切成微米级厚度。
注意切片应无褶皱与破损。
注意二甲苯易燃且有毒。仅应在通风橱中使用,并避免皮肤接触。将二甲苯废液收集于指定容器中,并作为危险化学品废物处置。 - 将切片置于二甲苯中脱蜡(更换两次,每次5分钟)。–各10分钟),然后通过递减乙醇系列(100%、95%、80%、70%,各3分钟)复水至水。
- 使用标准苏木精和伊红(H&E)染色法对它们进行染色。&E) (参见 材料列表) 与马松’三色染色方案(参见 材料列表).
注意二甲苯具有毒性。请仅在通风橱中使用,并避免皮肤接触。二甲苯废料须作为危险材料处理。
- 使用标准苏木精和伊红(H&E)染色法对它们进行染色。&E) (参见 材料列表) 与马松’三色染色方案(参见 材料列表).
- 在光学显微镜下观察染色切片(参见 材料列表).
- 对于定量分析,请在4倍放大倍数下采集数字图像。×, 20×以及 40× 使用连接至显微镜的数字相机进行放大。使用ImageJ测量梗死面积与纤维化区域。
注意梗死面积百分比 = (梗死面积 / 左心室总面积) × 100;胶原含量(%)=(蓝染区域面积 / 心肌组织总面积) × 100.
- 对于定量分析,请在4倍放大倍数下采集数字图像。×, 20×以及 40× 使用连接至显微镜的数字相机进行放大。使用ImageJ测量梗死面积与纤维化区域。
结果
制备 Cracd缺陷型小鼠
一种携带靶向缺陷的可遗传小鼠模型 Cracd 该基因系通过CRISPR/Cas9介导的基因组编辑技术构建而成图 1A, 图 1B)。为区分野生型、杂合子与纯合子基因型,采用三引物(F1、F2、R1)进行多重PCR反应。纯合缺失的小鼠(Cracd‑缺陷型)小鼠仅显示421 bp条带,野生型小鼠仅显示357 bp条带图 1C)。对来自 Cracd与野生型对照相比,基因敲除小鼠证实了目标基因中存在预期的缺失图 1D)。蛋白质印迹分析进一步表明,来自 Cracd与野生型对照小鼠相比,缺陷型小鼠图 1E)。综上所述,这些数据证实了该 Cracd缺陷型小鼠品系。
超声心动图
术后第7天的超声心动图评估显示,与假手术对照组相比,心肌梗死后的野生型小鼠出现了显著的心脏病理性重构。 (图2A)野生型心肌梗死组显示出室间隔变薄图 2B,C),左心室(LV)显著扩张,表现为左心室舒张末期内径(LVIDd)增加图 2D) 和 LVIDs (图 2E以及后壁变薄图 2FG)。这些结构改变与整体收缩功能的显著下降相关,这通过射血分数(EF)的显著降低得以证明。图 2H) 与 FS (图2I). 相比之下, Cracd缺陷型小鼠在心肌梗死后表现出心脏保护表型。与野生型心肌梗死组相比,其左心室扩张显著减弱,左心室舒张末期内径和收缩末期内径明显更小。此外,这些小鼠的后壁收缩期增厚得到改善,并维持了显著更高的射血分数和缩短分数值。这些发现表明, Cracd 缺陷可有效减轻梗死后左心室扩张并维持整体收缩功能。
斑点追踪应变分析
左心室心肌运动与形变通过斑点追踪技术进一步评估。‑仅使用胸骨旁长轴切面进行追踪超声心动图‑轴位视图图 3A为确保数据可靠性,我们根据 VevoStrain 软件的性能定义了可接受输出的实用标准。可接受的应变分析需满足:(i) 清晰的胸骨旁长轴‑轴切面观,心内膜边界在整个心动周期中均清晰可见;(ii) 心率稳定在450–采集期间为550 bpm;(iii) 自动跟踪后,颜色‑编码网格(通过激活) “切换轮廓/矢量/轨道线/B模式”) 必须紧密贴合心内膜与心外膜边界,无跳动或脱节;(iv) 应变曲线必须平滑,各节段波形一致,且无突发的尖峰或心律失常性中断。输出结果欠佳。—最常见的异常应变曲线或无法清晰可视化运动轨迹—导致手动调整心内膜或心外膜轮廓并重新‑分析。若三次尝试后质量仍不佳,则将该小鼠排除。依据这些标准,我们在野生型小鼠中获得了可靠的应变数据。‑MI 小鼠与 Cracd‑缺陷型 MI 小鼠。
与假手术组相比,WT-MI小鼠的径向速度显著降低图 3B) 和纵向速度 (图 3C以及径向位移(图 3D) 和纵向位移 (图 3E),提示整体心肌运动受损。径向应变的绝对值(图 3F),径向应变率(图 3G),纵向应变(图 3H)以及纵向应变率(图3I) 也显著降低,反映出区域心肌形变与功能严重受损。相比之下, Cracd缺陷型小鼠在这些参数上表现出显著改善。与WT-MI组相比,它们显示出更好的径向和纵向位移恢复。此外,径向速度、径向应变和径向应变率维持在较高水平,而纵向应变和纵向应变率则显著改善。这些结果表明 Cracd 缺陷不仅能在心肌梗死后维持整体收缩功能,还能增强左心室局部心肌形变能力。
散斑‑追踪成像分析还包括节段应变分布与心脏运动轨迹的可视化。胸骨旁长轴‑B轴‑显示带有六个分割区域(BA、MA、AA、AP、MP、BP)和颜色梯度映射的模式图像。 图4A. 心脏运动轨迹,时间‑至‑径向与纵向应变的峰值曲线、应变同步性的参数分布图,以及三个‑三维重建结果展示于 图4B这些数据进一步支持了所观察到的功能改善。 Cracd‑缺陷型小鼠。
组织学检查
为评估保护作用 Cracd 为评估其对心肌梗死的保护作用,对野生型与 Cracd心肌梗死后7天,使用H染色评估缺陷小鼠。&E 与 Masson'三色染色法。整个‑心脏纵切面如图所示 图 5A并对梗死面积与胶原含量进行了定量分析。 图 5B 以及 图5C,分别。高‑梗死区、交界区及远隔区的放大视图展示于 图 5D在野生型心肌梗死心脏中,H&伊红染色显示左心室壁明显变薄,梗死区域边界清晰。在梗死区域内,观察到广泛的炎症细胞浸润、心肌坏死以及伴有瘢痕形成的显著纤维化。在边缘区,炎症浸润、心肌坏死、纤维化及心肌细胞肥大表现明显,而远隔区域则呈现出显著的肥大性改变。相应的马松染色'三色染色进一步证明,心肌梗死后,野生型心脏的梗死区和边缘区均存在广泛的间质纤维化。相比之下, Cracd与野生型心肌梗死心脏相比,缺陷型小鼠表现出显著减弱的病理改变,包括室壁变薄程度减轻、炎症浸润与心肌坏死减少、心肌细胞肥厚程度降低,以及间质纤维化明显减少。这些组织学结果表明, Cracd 缺陷可减轻心肌梗死后的心肌损伤与不良重构。
成功执行本方案应获得:(i) 一个结构完‑野生型心肌梗死心脏中可见界限清晰的梗死区域,伴有广泛的胶原沉积;(ii) 细胞形态清晰,无染色伪影;(iii) 病理改变显著减轻。 Cracd‑基因缺陷型心肌梗死心脏。尽管梗死面积可能因结扎精度而异,但基因型‑依赖性差异是衡量成功表现的可靠指标。
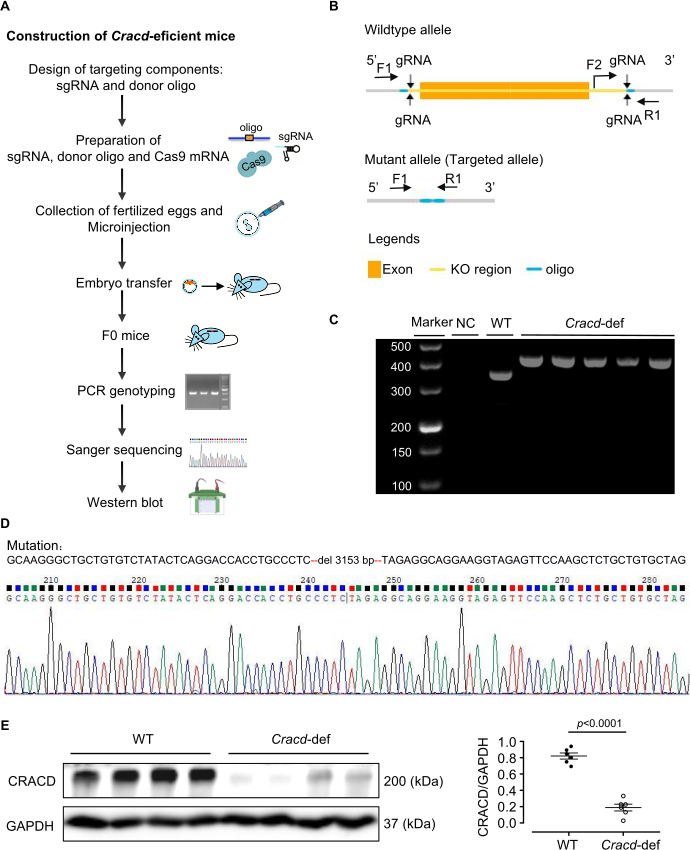
图 1: 生成 Cracd缺陷型小鼠。 (A) 构建 Cracd缺陷小鼠。B) 示意图 Cracd 基因修饰策略。C) 尾基因组DNA的PCR基因分型。野生型小鼠显示单一357 bp条带,而纯合子(Cracd‑缺陷型) 小鼠显示为单一的 421 bp 条带。D) 对基因组DNA进行的Sanger测序证实了预测的缺失。 Cracd 与野生型对照相比,基因缺陷小鼠的基因座。E) 蛋白质印迹分析显示,CRACD 蛋白在心脏中的水平显著降低 Cracd与野生型对照组相比,缺陷型小鼠的数据。每组 n = 6 只小鼠。数据以平均值表示。 ± 扫描电子显微镜。采用双尾非配对Student t检验计算统计学显著性。's t 检验。 请点击此处查看此图的放大版本。
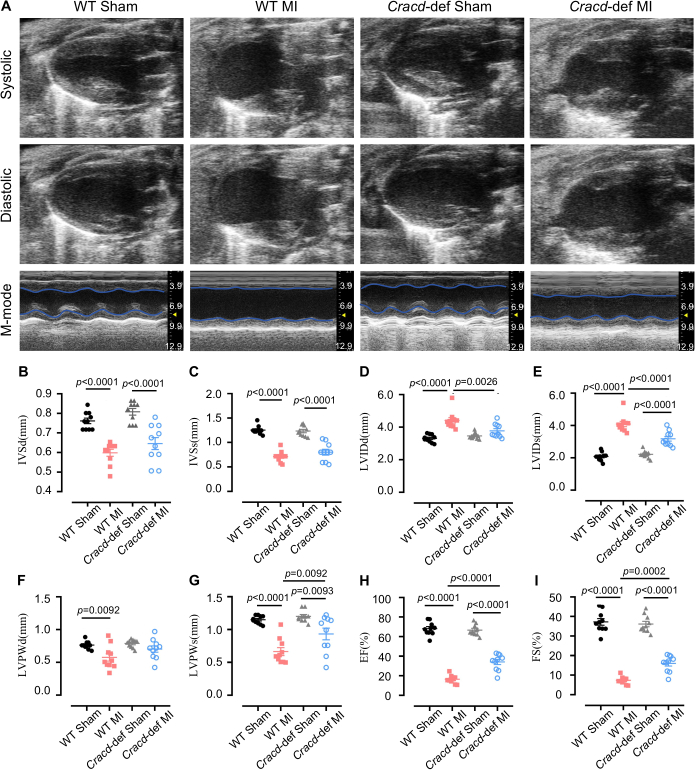
图 2超声心动图评估心脏功能。 (A) 小鼠心脏舒张期与收缩期的代表性 B 型与 M 型超声心动图图像。定量分析(B) 舒张期室间隔厚度 (IVSd) 与 (C) 收缩期室间隔厚度(IVSs),D) 左心室舒张期内径 (LVIDd) 与 (E) 收缩期左心室内径(LVIDs),F) 舒张期左心室后壁厚度(LVPWd)与(G) 收缩期(LVPWs),H) 射血分数 (EF),以及 (I) 缩短分数 (FS)。每组 n = 10 只小鼠。数据以平均值 ± 扫描电子显微镜。统计学显著性通过单因素方差分析结合Tukey检验确定。's 多重比较检验。 请点击此处查看此图的放大版本。
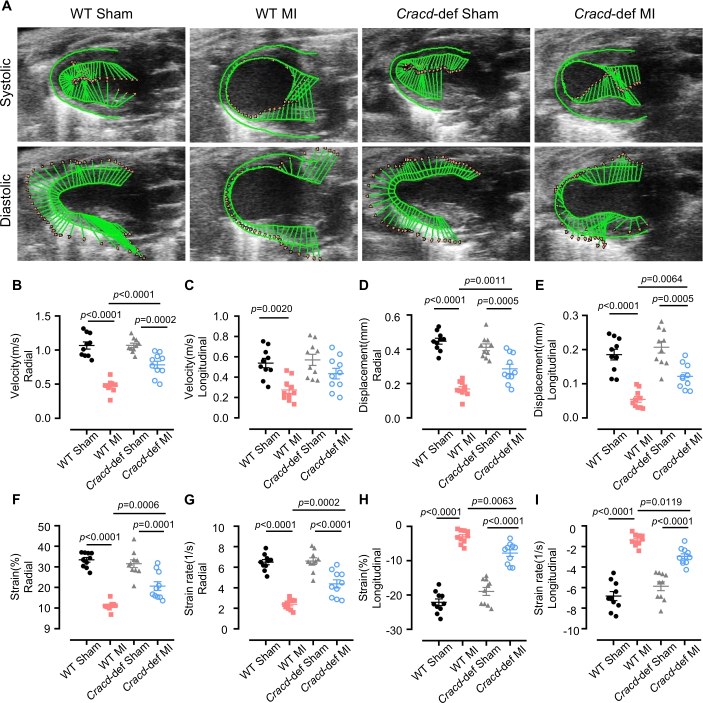
图 3斑点追踪应变分析。 (A) 舒张期与收缩期左心室壁运动及形变的代表性图像。对以下参数进行定量分析:(B) 径向速度,(C) 纵向速度,(D) 径向位移,(E) 纵向位移,(F) 径向应变,(G) 径向应变率,(H) 纵向应变,以及 (I) 纵向应变率。每组 n = 10 只小鼠。数据以平均值表示 ± SEM。统计显著性通过单因素方差分析(ANOVA)及随后的Tukey检验确定。's多重比较检验。 请点击此处查看此图的放大版本。
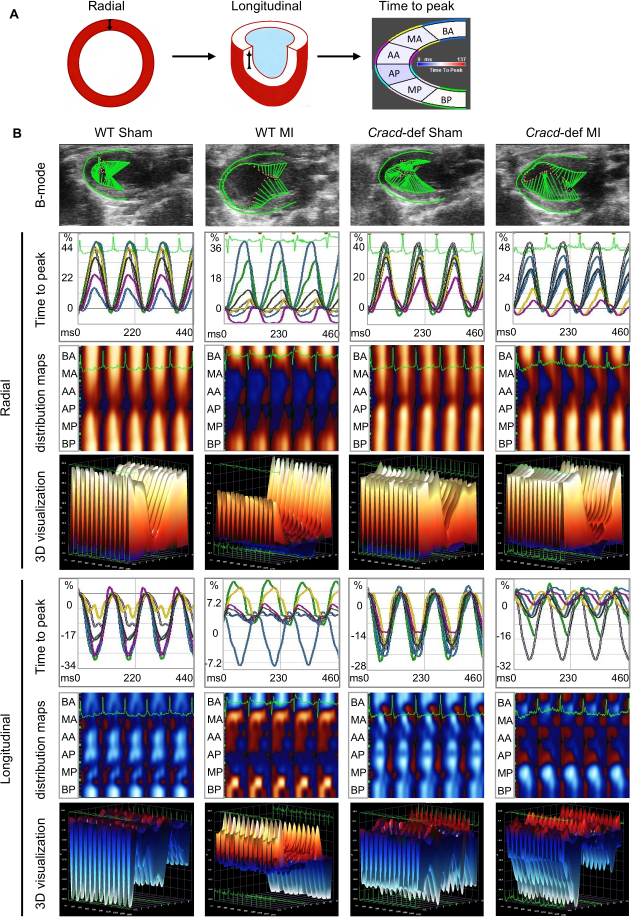
图 4斑点追踪成像在WT-Sham、WT-MI、 Cracd缺陷型假手术组,以及 Cracd心肌梗死后第7天,各缺陷型心肌梗死组。 (A) 胸骨旁长轴‑B轴‑模式图像。左心室壁被分割为六个区域:BA(基底前壁)、MA(前壁中部)、AA(心尖前壁)、AP(心尖后壁)、MP(后壁中部)和 BP(基底部后壁)。从蓝色到红色的颜色梯度代表应变幅度递增。B) 心脏运动轨迹;径向与纵向应变值随时间变化的峰值曲线及其对应的峰值时间。应变同步性的参数分布图(蓝/红色指示方向:径向 – 远离/朝向中心;纵向 – 远离/朝向顶点方向)。白点 = 最高速度区域,黑点 = 最低速度区域。三维重建图(X轴:时间,Y轴:空间位置,Z轴:应变幅度)。 请点击此处查看此图的放大版本。
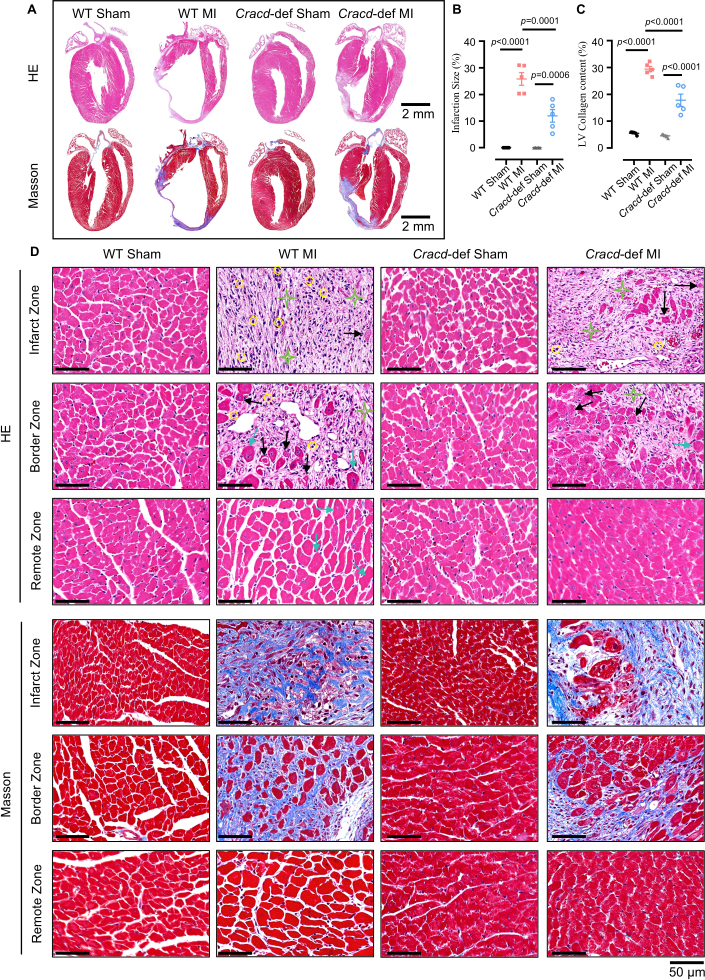
图5心肌梗死后心脏重塑的组织病理学分析。 (A) 采用 H 染色的全心脏纵切面&伊红与马松'三色染色。比例尺:2 毫米。B) 梗死面积的定量分析与(C) 胶原蛋白含量。D) 高‑梗死区(IZ)、交界区(BZ)及远隔区(RZ)的放大视图。&E:黄色圆圈 = 炎症浸润;黑色箭头 = 心肌坏死;绿色星号 = 纤维化;蓝色箭头 = 肥大。Masson’三色染色法: 蓝色表示胶原沉积。比例尺:50 μm. n = 5 只小鼠/组。数据以均值表示 ± 扫描电子显微镜。采用单因素方差分析结合Tukey检验确定统计学显著性。'多重比较检验。 请点击此处查看此图的放大版本。
讨论
在本研究中,我们构建了一种经 CRISPR/Cas9 技术改造的Cracd基因缺陷型小鼠,并建立了一套工作流程,通过常规超声心动图、斑点追踪应变成像和组织学方法在心肌梗死(MI)后对其进行表型分析。该方案成功获得了经证实缺失 CRACD 蛋白的基因敲除小鼠。Cracd基因缺陷型小鼠在心肌梗死后表现出较轻的心室扩张、更高的射血分数(EF)以及更少的纤维化,相较于野生型(WT)对照组,证实了该模型在研究心脏重构中的实用性。
该模型的成功依赖于多个关键步骤。gRNA的设计及体外验证直接影响受精卵编辑的效率23我们使用 CRISPick 或 Benchling 筛选 CRISPRater 评分 ≥ 0.5 的 gRNA,然后通过体外 Cas9/gRNA 切割实验检测其切割效率。仅选用切割效率达到指定标准的 gRNA > 50% 切割的样本进行显微注射。正确结扎左前降支(LAD)同样至关重要:7-0 缝线必须距离 LAD 起始处 2–3 mm,进针深度为 0.5–1 mm,以避免刺穿右心室(过深)或未能阻断血管(过浅);前壁立即变白可证实阻断成功。超声心动图检查期间的心率控制也同样重要。24,通过调整异氟烷(通常为1–2%)将心率维持在450–550次/分钟,可提高常规测量和应变测量的可重复性。最后,对于斑点追踪分析,必须对彩色编码网格进行视觉评估25网格必须平滑贴合心肌边界,避免出现跳跃;若经过三次尝试后质量仍不理想,则排除该小鼠。
即使严格按照实验方案操作,仍可能出现某些技术困难。系统性的故障排查通常可解决其中大多数问题。生殖系传递率低(低于10%)通常表明供体寡核苷酸整合效率差或gRNA活性弱26。因此,将供体寡核苷酸浓度提高至20 ng/µL、将同源臂延长至120–200 bp,并重新检测gRNA切割效率(> 50%),可改善传递效果。心肌梗死术后死亡率高(超过30%)通常由气胸、出血或大面积梗死引起27。因此,使小鼠在苏醒前持续吸氧,并使用加热垫维持体温,可显著降低死亡率。若结扎后前壁未变苍白,可能是左前降支(LAD)定位错误或缝合过浅。此时,重新定位LAD(一条鲜红色的对角血管),并在解剖显微镜下将针穿入0.5–1 mm深度,通常可解决此问题。若斑点追踪成像质量差,常见原因为帧率过低、边界模糊或运动伪影28。相应地,提高帧率、精细调节增益、手动校正心内膜轨迹,并剔除存在心律失常的心动周期,有助于改善图像质量。
除了这些操作层面的考虑之外,该方法还存在明显的局限性。Cracd 基因敲除是全身性的,因此所有组织中均缺失 CRACD 蛋白。因此,所观察到的保护作用不能完全归因于心肌细胞,因为系统性因素也可能发挥作用。若要区分不同细胞类型中的特异性功能,需要采用条件性基因敲除模型。另一个局限性在于仅设置了第7天这一个时间点,无法了解慢性重塑过程。因此,长期研究中应增加更晚的时间点(如4周或8周)。此外,可重复性还受到图像质量的影响:并非所有超声系统都能清晰显示心内膜边界,且操作者经验也会影响结果。因此,建议由经过专业培训的人员统一完成所有手术操作和测量工作。
鉴于这些局限性,将我们的方法与研究心肌梗死(MI)后心室重构中基因功能的其他策略进行比较具有重要意义。腺相关病毒(AAV)介导的基因操作和反义寡核苷酸(ASOs)是两种常见的替代方法29,30。AAV9 可实现心脏特异性的瞬时过表达或基因沉默,且无需繁育动物,但其包装容量有限(约 4.7 kb)、转导效率不稳定以及存在脱靶效应等缺点31。相比之下,我们建立的 CRISPR/Cas9 基因敲除模型可实现永久且完全的功能缺失,在长期研究中具有优势。ASOs 可实现可逆、剂量依赖性的基因沉默,且起效迅速,适用于急性干预;然而,其需要反复给药,且缺乏组织特异性32。因此,本文所述的组成型基因敲除模型最适合用于初步功能发现和慢性表型分析。
最后,该方案的应用范围可远远超出CRACD研究。相同的实验流程——即利用CRISPR/Cas9技术构建基因敲除小鼠,结合超声心动图、应变成像和组织学分析——可用于评估任何候选基因在心肌梗死后心室重构中的作用。该表型分析框架也适用于其他心血管疾病模型,例如横断位主动脉缩窄(压力超负荷)或缺血-再灌注损伤。此外,本方案所获得的组织样本还可用于多组学分析(如转录组学、蛋白质组学和代谢组学),以揭示潜在的分子机制。Cracd缺陷型小鼠模型还可作为药物筛选工具:可用来评估那些可能通过CRACD通路发挥作用的化合物。因此,本方案为心血管研究中的多种机制性和转化性研究提供了一个可灵活适应的实验平台。
披露
作者声明不存在任何竞争利益。
致谢
本工作由广东省基础与应用基础研究基金(2023A1515011278)、广东省生物技术研究院自筹项目(GDBRI-ZL202602)以及中加心血管疾病模型与发病机制学术交流与合作项目(MS202500058)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| CRISPR/Cas9 | |||
| Trizma 盐酸溶液 | Sigma-Aldrich, USA | T2663 | 用于配制DNA提取缓冲液 |
| 蛋白酶K | Sigma-Aldrich, USA | 539480 | 用于小鼠尾部组织消化 |
| Green Taq Mix | Vazyme, China | P131 | 用于PCR扩增 |
| 琼脂糖 | BioFroxx, Germany | 1110GR500 | 用于1–2%浓度的DNA凝胶电泳 |
| DNA Marker | Thermo Scientific, USA | SM0242 | 作为DNA ladder用于PCR产物大小分析 |
| TIANamp 基因组DNA提取试剂盒 | Tiangen Biotech, China | DP304 | 用于从小鼠尾部组织中提取基因组DNA |
| MEGAshortscript™ T7体外转录试剂盒 | Thermo Scientific, USA | AM1354 | 用于gRNA的体外转录 |
| RNA纯化试剂盒 | Zymo Research, USA | R1016 | 用于纯化转录生成的gRNA |
| BeyoCRISPR™ sgRNA活性筛选试剂盒 | Beyotime, China | D8412S | 用于体外评估gRNA的切割活性 |
| RNase抑制剂 | NEB, USA | M0314 | 用于防止体外转录过程中RNA降解 |
| TaKaRa Taq | Takara Bio, Japan | R001A | 用于小鼠尾部DNA的PCR基因分型 |
| FERTIUP® 小鼠精子预孵育培养基:PM | Cosmo Bio, Japan | KYD-002-EX | 用于体外受精前的精子获能 |
| T7 ARCA mRNA试剂盒 | NEB, USA | E2060 | 用于Cas9 mRNA的体外转录 |
| 孕马血清促性腺激素 | MCE, USA | 9002-70-4 | 用于超数排卵,通过腹腔注射给药 |
| 人绒毛膜促性腺激素 | ProSpec, Israel | HOR-250 | 用于诱导排卵,通过腹腔注射给药 |
| 无RNase水 | Aladdin, China | R665526 | 用于RNA溶解和PCR体系配制 |
| 引物 | Sangon Biotech, China | / | 用于基因分型 |
| 手术 | |||
| 异氟烷 | RWD Life Science, China | R510-22-10 | 用于手术期间的麻醉诱导与维持 |
| 脱毛膏 | Veet, France | 1000207 | 涂抹于胸部区域,用于手术和超声检查前去除毛发 |
| 7-0缝合线 | Lingqiao, China | LQ7022380206 | 用于永久结扎左前降支(LAD)冠状动脉 |
| 4-0缝合线 | Lingqiao, China | LQ4022380412 | 用于术后皮肤切口的缝合闭合 |
| 麻醉呼吸机 | Harvard Apparatus, USA | Tabletop | 用于输送异氟烷并支持呼吸 |
| 小动物呼吸机 | Taimeng, China | HX-101E | 用于开胸手术期间提供正压通气 |
| 恒温加热垫 | TigerGene, USA | TG-TP-GS | 用于维持小鼠在手术及恢复期间的体温 |
| 肋骨牵开器 | Shenzhen Huayon Biotech, China | LN-18-4101 | 用于撑开肋骨并暴露心脏以进行LAD结扎 |
| 剪刀 | Shenzhen Huayon Biotech, China | 18-0551 | 用于制作皮肤切口和组织切割 |
| 体视显微镜 | Nikon, Japan | SMZ 745 | 用于LAD动脉结扎手术期间提供放大视野 |
| 显微持针器 | Shenzhen Huayon Biotech, China | 18-2211 | 用于在显微镜下操作细小的7-0缝合针 |
| 化学试剂 | |||
| 超声耦合剂 | Tianjin Jinya Technology Development, China | TM-100 | 涂抹于胸部用于超声心动图检查,确保探头良好接触 |
| 多聚甲醛 | Sigma-Aldrich, USA | V900894 | 用于组织收获后的心脏组织固定 |
| 二甲苯 | Macklin, China | 1330-20-7 | 用于染色前石蜡去除和组织透明化 |
| 苏木精 | Sigma-Aldrich, USA | H3136 | 细胞核染色剂,用于HE染色 |
| 伊红 | Sigma-Aldrich, USA | E4009 | 细胞质染色剂,用于HE染色 |
| 丽春红S | Sigma-Aldrich, USA | P3504 | 用于Masson染色中的细胞质染色 |
| 磷钼酸 | Sigma-Aldrich, USA | 221856 | 用于Masson染色中的媒染和分化步骤 |
| 苯胺蓝溶液 | Sigma-Aldrich, USA | 415049 | 用于Masson染色中胶原纤维染色(呈蓝色) |
| CRACD抗体 | Absea, China | KC-35356 | 用于Western Blot检测CRACD蛋白的一抗,稀释比例为1:2000 |
| GAPDH抗体 | CST, USA | 2118S | Western Blot中的上样对照抗体,稀释比例为1:5000 |
| 乙醇 | Macklin, China | 64-17-5 | 用于脱水和试剂配制(70%、80%、95%、100%梯度) |
| 实验设备 | |||
| Sorvall™ Legend™ Micro 17 离心机 | Thermo Scientific, USA | 75002541 | 用于常规样品制备 |
| PCR仪 | Bio-Rad Laboratories, USA | 1861096 | 用于DNA扩增 |
| 显微注射系统 | Eppendorf, Germany | 5193000020 | 用于将CRISPR/Cas9试剂显微注射至受精卵中 |
| Vevo 2100 成像系统 | VisualSonics, Canada | Vevo2100 | 高频成像系统,用于心肌梗死后心脏功能与结构的无创评估 |
| 光学显微镜 | Leica, Germany | DM2500 | 用于观察HE染色和Masson染色的心脏切片 |
| 分析软件 | |||
| ImageJ | National Institutes of Health, USA | / | 用于图像分析,包括面积测量、信号定量以及组织学图像(HE和Masson染色)的处理 |
| VevoLab 3.2.0 / VevoStrain | VisualSonics, Canada | / | VevoLab软件用于心脏功能分析;VevoStrain模块用于心肌应变分析,以评估心肌梗死后心脏功能 |
| GraphPad Prism 8 | GraphPad Software, USA | / | 用于统计分析和图表绘制 |
参考文献
- Fauconnier J, Meli AC, Thireau J, Roberge S, Shan J, Sassi Y, et al. Ryanodine receptor leak mediated by caspase-8 activation leads to left ventricular injury after myocardial ischemia-reperfusion. Proc. Natl. Acad. Sci. U. S. A. 2011;108(32):13258-63.
- Cohn JN, Ferrari R, Sharpe N. Cardiac remodeling-concepts and clinical implications: a consensus paper from an international forum on cardiac remodeling. J Am Coll Cardiol. 2000.
- Liu D, Tian X, Liu Y, Song H, Cheng X, Zhang X, et al. CREG ameliorates the phenotypic switching of cardiac fibroblasts after myocardial infarction via modulation of CDC42. Cell Death Dis. 2021;12(4).
- Contessotto P, Pandit A. Therapies to prevent post-infarction remodelling: from repair to regeneration. Biomaterials. 2021;275.
- Zhu R, Sun H, Yu K, Zhong Y, Shi H, Wei Y, et al. Interleukin-37 and dendritic cells treated with interleukin-37 plus troponin I ameliorate cardiac remodeling after myocardial infarction. J Am Heart Assoc. 2016;5(12).
- Chang Y, Zhang J, Huo X, Qu X, Xia C, Huang K, et al. Substrate rigidity dictates colorectal tumorigenic cell stemness and metastasis via CRAD-dependent mechanotransduction. Cell Rep. 2022;38(7).
- Seo Y, Jang J, Ko KP, Zou G, Huang Y, Zhang S, et al. Actin dysregulation induces immune evasion via oxidative stress-activated PD-L1 in gastric cancer. bioRxiv. 2024.
- Kim B, Zhang S, Huang Y, Ko KP, Jung YS, Jang J, et al. CRACD loss induces neuroendocrine cell plasticity of lung adenocarcinoma. Cell Rep. 2024;43(6).
- Jung YS, Wang W, Jun S, Zhang J, Srivastava M, Kim MJ, et al. Deregulation of CRAD-controlled cytoskeleton initiates mucinous colorectal cancer via β-catenin. Nat Cell Biol. 2018;20(11):1303-14.
- Liu Z, Cao H, Shi Y, Yang R. KIAA1211 plays an oncogenic role in human non-small cell lung cancer. J Cancer. 2019;10(26):6747-53.
- Snider PL, Snider E, Simmons O, Lilly B, Conway SJ. Analysis of uncharacterized mKiaa1211 expression during mouse development and cardiovascular morphogenesis. J Cardiovasc Dev Dis. 2019;6(2).
- Lin YH, Warren CM, Li J, McKinsey TA, Russell B. Myofibril growth during cardiac hypertrophy is regulated through dual phosphorylation and acetylation of the actin capping protein CapZ. Cell Signal. 2016;28(8):1015-24.
- Yang FH, Pyle WG. Reduced cardiac CapZ protein protects hearts against acute ischemia-reperfusion injury and enhances preconditioning. J Mol Cell Cardiol. 2012;52(3):761-72.
- Tong C, Huang G, Ashton C, Wu H, Yan H, Ying QL. Rapid and cost-effective gene targeting in rat embryonic stem cells by TALENs. J Genet Genomics. 2012;39(6):275-80.
- Cordes SP. N-ethyl-N-nitrosourea mutagenesis: boarding the mouse mutant express. Microbiol Mol Biol Rev. 2005;69(3):426-39.
- Cong L, Ran FA, Cox D, Lin S, Barretto R, Habib N, et al. Multiplex genome engineering using CRISPR/Cas systems. Science. 2013;339(6121):819-23.
- Kanke KL, Rayner RE, Bozik J, Abel E, Venugopalan A, Suu M, et al. Single-stranded DNA with internal base modifications mediates highly efficient knock-in in primary cells using CRISPR-Cas9. Nucleic Acids Res. 2024;52(22):13561-76.
- Mihos CG, Liu JE, Anderson KM, Pernetz MA, O'Driscoll JM, Aurigemma GP, et al. Speckle-tracking strain echocardiography for the assessment of left ventricular structure and function: a scientific statement from the American Heart Association. Circulation. 2025;152(10).
- Garg PK, Biggs ML, Kizer JR, Shah SJ, Psaty B, Carnethon M, et al. Glucose dysregulation and subclinical cardiac dysfunction in older adults: the Cardiovascular Health Study. Cardiovasc Diabetol. 2022;21(1).
- Asanuma T, Fukuta Y, Masuda K, Hioki A, Iwasaki M, Nakatani S. Assessment of myocardial ischemic memory using speckle tracking echocardiography. JACC Cardiovasc Imaging. 2012;5(1):1-11.
- Chong SY, Zharkova O, Yatim SMJM, Wang X, Lim XC, Huang C, et al. Tissue factor cytoplasmic domain exacerbates post-infarct left ventricular remodeling via orchestrating cardiac inflammation and angiogenesis. Theranostics. 2021;11(19):9243-61.
- Hung CL, Verma A, Uno H, Shin SH, Bourgoun M, Hassanein AH, et al. Longitudinal and circumferential strain rate, left ventricular remodeling, and prognosis after myocardial infarction. J Am Coll Cardiol. 2010;56(22):1812-22.
- Labuhn M, Adams FF, Ng M, Knoess S, Schambach A, Charpentier EM, et al. Refined sgRNA efficacy prediction improves large- and small-scale CRISPR-Cas9 applications. Nucleic Acids Res. 2018;46(3):1375-85.
- Wu J, Bu L, Gong H, Jiang G, Li L, Ma H, et al. Effects of heart rate and anesthetic timing on high-resolution echocardiographic assessment under isoflurane anesthesia in mice. J Ultrasound Med. 2010;29(12).
- Voigt JU, Pedrizzetti G, Lysyansky P, Marwick TH, Houle H, Baumann R, et al. Definitions for a common standard for 2D speckle tracking echocardiography: consensus document of the EACVI/ASE/Industry Task Force to standardize deformation imaging. J Am Soc Echocardiogr. 2015;28(2):183-93.
- Port F, Chen HM, Lee T, Bullock SL. Optimized CRISPR/Cas tools for efficient germline and somatic genome engineering in Drosophila. Proc Natl Acad Sci U S A. 2014;111(29).
- Gao E, Lei YH, Shang X, Huang ZM, Zuo L, Boucher M, et al. A novel and efficient model of coronary artery ligation and myocardial infarction in the mouse. Circ Res. 2010;107(12):1445-53.
- Rösner A, Barbosa D, Aarsæther E, Kjønås D, Schirmer H, D'Hooge J. The influence of frame rate on two-dimensional speckle-tracking strain measurements: a study on silico-simulated models and images recorded in patients. Eur Heart J Cardiovasc Imaging. 2015;16(10):1137-47.
- Argiro A, Bui Q, Hong KN, Ammirati E, Olivotto I, Adler E. Applications of gene therapy in cardiomyopathies. JACC Heart Fail. 2024;12(2):248-60.
- Micheletti R, Plaisance I, Abraham BJ, Sarre A, Ting CC, Alexanian M, et al. The long noncoding RNA Wisper controls cardiac fibrosis and remodeling. Sci Transl Med. 2017;9(395).
- Wu Z, Yang H, Colosi P. Effect of genome size on AAV vector packaging. Mol Ther. 2010;18(1):80-6.
- Juliano RL. The delivery of therapeutic oligonucleotides. Nucleic Acids Res. 2016;44(14):6518-48.
重印与许可
本文已发表
视频即将推出