本方案结合泛癌生物信息学分析与结肠癌中的免疫组织化学验证,利用公共多组学数据库和临床组织样本,评估跨膜 Emp24 蛋白转运结构域 3 的表达水平、预后意义、免疫相关性及其相关的生物学通路。
研究文章
泛癌生物信息学分析结合结肠癌实验验证:TMED3作为诊断与预后生物标志物的研究
* These authors contributed equally
本文内容
摘要
摘要
跨膜Emp24蛋白转运结构域3(TMED3)是p24蛋白家族成员,已被证实与肿瘤增殖、侵袭和迁移相关。本研究旨在通过泛癌生物信息学分析结合结肠癌组织的免疫组织化学(IHC)验证,评估TMED3在多种癌症类型中的表达模式、预后意义、免疫关联性及潜在生物学功能。分析了来自癌症基因组图谱(The Cancer Genome Atlas)、基因型-组织表达(Genotype-Tissue Expression)、UALCAN、人类蛋白质图谱(Human Protein Atlas)和cBioPortal数据库的多组学数据集,以研究TMED3在泛癌中的表达水平和基因组改变情况。采用免疫组织化学方法检测TMED3蛋白在结肠癌组织中的表达。通过Kaplan–Meier生存分析和Cox回归分析评估TMED3的预后价值。采用Spearman相关性分析评估TMED3与肿瘤突变负荷、微卫星不稳定性(MSI)、免疫细胞浸润及免疫检查点之间的关联。对结肠癌中与TMED3相关的潜在生物学通路进行基因集富集分析(Gene Set Enrichment Analysis)。结果显示,大多数肿瘤类型中TMED3表达升高,并且在肾上腺皮质癌、结肠腺癌和葡萄膜黑色素瘤中与较差的总生存期和疾病特异性生存期相关。间皮瘤中TMED3基因改变频率最高,其中以基因扩增为主要改变类型。此外,在肾透明细胞癌、胃腺癌和子宫内膜癌中,TMED3表达与肿瘤突变负荷和微卫星不稳定性均呈显著相关。TMED3表达还与多种肿瘤中的免疫浸润及免疫检查点表达相关。免疫组织化学分析显示,与正常结肠组织相比,结肠癌组织中TMED3表达升高,并与T分期相关。功能富集分析识别出与核糖体、抗原加工与提呈、氧化磷酸化以及磷酸戊糖途径相关的通路。这些结果表明,TMED3可能作为结肠癌及其他多种肿瘤诊断和预后评估的潜在生物标志物。
引言
跨膜Emp24结构域(TMED)蛋白家族由四个亚家族(α、β、γ和δ)组成,通常在真核细胞中以单体、二聚体或寡聚复合物形式存在。TMED家族成员参与细胞内囊泡运输,并已被发现与多种人类疾病相关,包括癌症、免疫相关性疾病、糖尿病、神经退行性疾病、非酒精性脂肪性肝病、扩张型心肌病、黏蛋白1肾病(MKD)和干燥综合征(SS)1。跨膜emp24结构域包含蛋白3(TMED3)是p24蛋白家族成员之一,是一种高度保守的I型单次跨膜蛋白,由人类15号染色体q25.1区域编码2,3。越来越多的证据表明,TMED3在多种恶性肿瘤中异常表达,并参与肿瘤的发生、增殖、侵袭、转移和进展过程。已有研究报道,TMED3表达水平在骨肉瘤4、肺鳞状细胞癌5、乳腺癌6、子宫内膜癌7和结直肠癌8中升高。实验研究表明,抑制TMED3表达可抑制肿瘤细胞的增殖能力、转移潜能及抗凋亡活性,从而遏制肿瘤进展。在胶质瘤中,TMED3的过表达与更高的肿瘤分级和更差的预后相关,且已有报道指出TMED3通过调控ZBTB7A促进胶质母细胞瘤的进展9。尽管先前的研究已探讨了TMED3在特定肿瘤类型中的生物学作用,但其在泛癌范围内的表达模式、预后意义及分子功能尚未得到系统性表征。
多组学数据库和生物信息学分析的最新进展使得能够系统评估不同肿瘤类型中的基因表达、预后、免疫特征及分子改变。与单一队列研究相比,利用公开数据库进行整合性的泛癌分析为识别跨癌种的潜在生物标志物和治疗靶点提供了更广泛的途径。本研究通过综合性的生物信息学分析,利用包括癌症基因组图谱(The Cancer Genome Atlas, TCGA)、基因型-组织表达(Genotype-Tissue Expression, GTEx)、UALCAN、人类蛋白质图谱(Human Protein Atlas)和cBioPortal在内的公开多组学数据库,探讨了TMED3在多种癌症类型中的作用。研究系统评估了TMED3在泛癌中的表达模式、临床病理特征、预后意义、免疫相关性及其潜在的生物学功能。此外,还对结肠癌组织进行了免疫组织化学(IHC)分析,以验证TMED3蛋白的表达及其与临床病理特征的关联。我们的泛癌分析作为一种筛选策略,用于识别候选生物标志物,随后在结直肠癌(colorectal cancer, CRC)中进行了实验验证。结果表明,TMED3是CRC中一个具有潜力的预后生物标志物,但其在其他癌症类型中的相关性仍需进一步研究。
方案
所有涉及人体组织的操作均严格遵循机构生物安全与伦理准则,并在经认证的生物安全柜内进行。本研究方案已获得唐山中心医院伦理委员会批准(编号:TZYL/K/2023-16),且在样本采集前已从所有参与者处获得书面知情同意书。
数据收集
来自不同肿瘤组织和非配对正常组织的 TMED3 表达谱数据取自 TCGA 和 GTEx 数据库10,11(TCGA:https://portal.gdc.cancer.gov/;GTEx:https://gtexportal.org/;访问时间:2025年7月1日)。采用 Wilcoxon 秩和检验分析肿瘤组织与非配对正常组织之间 TMED3 表达水平的差异。从 UCSC Xena 下载的每百万转录本(TPM)标准化 RNA 测序表达矩阵用于后续分析。在统计分析前,表达值经 log2(TPM + 1) 转换进行标准化处理。随后从 TCGA 数据库下载了33种肿瘤类型及其配对正常组织的 TMED3 表达数据。采用 Wilcoxon 符号秩检验评估肿瘤组织与配对正常组织之间 TMED3 表达的差异。肿瘤组织与正常组织之间 TMED3 蛋白表达的差异数据来自 UALCAN 数据库12(http://ualcan.path.uab.edu;访问时间:2025年7月1日)。进入该数据库的蛋白质组学分析模块,选择“泛癌分析视图”(Pan-cancer View)进行分析。使用 UALCAN “泛癌分析视图”模块中提供的 CPTAC 数据集,在默认平台设置下且不进行额外样本筛选的条件下开展蛋白表达分析。
临床病理特征分析
收集了TCGA数据库中33种肿瘤类型的临床病理信息,以研究TMED3表达与病理分期之间的关系。肿瘤分期分为早期(I–II期)和晚期(III–IV期)两组。采用Wilcoxon秩和检验在多种癌症类型中评估不同分期组间TMED3表达水平的差异。
预后分析
获取了33种肿瘤类型的生存时间和生存状态数据用于预后分析。排除了正常病例及缺乏临床信息的病例。缺失值根据各变量的缺失情况予以处理。根据TMED3表达的中位值将其分为高表达组和低表达组。使用R统计分析软件(版本4.2.1)中的survival软件包(版本3.2-7)进行Cox比例风险回归分析。结果通过survminer和ggplot2软件包进行可视化展示。总生存期(OS)定义为从诊断到因任何原因死亡的时间间隔,而疾病特异性生存期(DSS)定义为从诊断到因特定癌症死亡的时间间隔,与恶性肿瘤无关的死亡事件视为删失事件。随后对结肠腺癌(COAD)中TMED3表达水平与OS及DSS之间的关系进行了Kaplan–Meier 生存分析。
突变分析
使用 cBioPortal 数据库(www.cbioportal.org;访问时间:2025年7月5日)分析 TMED3 基因改变在33种癌症类型中的发生频率13。访问 cBioPortal 网站后,在快速搜索栏中输入“TMED3”,以分析 TMED3 在多种癌症类型中的突变谱。TMED3 的基因改变主要包括突变、扩增、深度缺失以及多种联合改变。突变分析采用 cBioPortal 中默认的泛癌研究和查询设置,未进行额外筛选。
DNA甲基化相关性分析
使用UALCAN数据库(https://ualcan.path.uab.edu/;访问时间:2025年7月5日)对TMED3基因在肿瘤组织和正常组织中的启动子区甲基化状态进行分析。基于TCGA项目中Illumina Infinium HumanMethylation450K平台生成的3级甲基化数据,分析TMED3启动子区域的DNA甲基化状态。甲基化水平以β值表示,计算公式为β = 甲基化探针信号强度 /(甲基化探针信号强度 + 非甲基化探针信号强度),其数值范围为0(完全非甲基化)至1(完全甲基化)。分析位于转录起始位点(TSS)上游1500 bp范围内的CpG探针,包括UALCAN定义的TSS200和TSS1500区域,以评估启动子甲基化状态。UALCAN自动提取目标基因启动子区域内所有可用的CpG探针,未进行额外筛选。获取泛癌及正常组织的甲基化β值后,采用非配对双样本t检验比较组间差异。显著性阈值设为α = 0.05,当P < 0.05时认为差异具有统计学意义。
TMED3、肿瘤突变负荷与微卫星不稳定性之间相互关系的分析
分析肿瘤突变负荷(TMB)和微卫星不稳定性(MSI),以研究其在多种癌症类型中与 TMED3 表达的关联性。统一处理的泛癌数据集从 UCSC Xena 数据库(https://xenabrowser.net/;访问日期为 2025 年 7 月 5 日)下载,并提取 TMED3 表达谱用于后续分析。TCGA 样本使用 MuTect2 生成的第 4 级简单核苷酸变异数据从基因组数据公共平台(GDC)数据库(https://portal.gdc.cancer.gov/)获取14。将 TMED3 表达数据与 TMB 数据集整合,并在统计分析前对表达值进行 log2(x + 1) 转换归一化处理。各肿瘤类型的 MSI 评分来自先前已发表的研究15,随后按照相同的归一化流程与 TMED3 表达数据合并。在泛癌数据集中,采用 Spearman 相关性分析评估 TMED3 表达与 TMB/MSI 之间的关联16,17。
TMED3 免疫特征分析
采用 ESTIMATE 算法计算多种肿瘤类型的基质评分、免疫评分和 ESTIMATE 评分。使用统计分析软件中的 estimate 软件包(版本 1.0.13)生成泛癌数据集中的基质和免疫浸润评分。采用 Wilcoxon 秩和检验评估高 TMED3 表达组与低 TMED3 表达组之间在基质评分、免疫评分和 ESTIMATE 评分上的差异。此外,开展免疫检查点相关分析,研究 TMED3 表达水平与不同癌症类型中免疫检查点分子(包括程序性死亡蛋白 1(PD-1)、程序性死亡配体 1(PD-L1)和细胞毒性 T 淋巴细胞相关蛋白 4(CTLA4))之间的关系。从 TCGA 数据库下载结肠腺癌(COAD)的 STAR-count 表达数据及相应的临床信息。提取 TPM 格式的表达矩阵,并通过 log2(TPM + 1) 转换进行归一化处理。随后从 COAD 样本中获取八个免疫检查点相关基因的表达谱,采用 Spearman 相关性分析评估 TMED3 表达水平与免疫检查点标志物之间的相关性。
药物敏感性分析
使用 GSCALite 平台进行药物敏感性分析,以研究 TMED3 表达水平与多种癌症类型对抗癌药物反应性之间的关系18。结肠腺癌(COAD)样本的 3 级 RNA 测序数据及相应的临床信息来自 TCGA 数据集。每个样本的化疗反应预测基于癌症药物敏感性基因组学(Genomics of Drug Sensitivity in Cancer, GDSC)数据库(https://www.cancerrxgene.org/)提供的数据生成。药物反应预测通过统计分析软件中的 pRRophetic 软件包完成。采用岭回归方法(默认参数设置)计算半数最大抑制浓度(IC50)的估计值,并利用 combat 算法校正批次效应,同时进行组织特异性调整分析。在后续分析前,对重复检测的基因表达测量值取平均值。
TMED3 在结肠癌中的表达及其预后意义
从 TCGA 数据库获取了结肠腺癌中 TMED3 的表达谱及其相应的临床病理数据。采用 Wilcoxon 秩和检验评估结肠癌组织与非配对正常组织之间 TMED3 表达的差异,使用卡方检验分析 TMED3 表达水平与临床病理特征之间的关联。根据 TMED3 表达的中位值将患者分为高表达组和低表达组。随后进行 Kaplan-Meier 生存分析,比较两组间的预后差异。通过单变量和多变量 Cox 比例风险回归模型分析 TMED3 表达在结肠癌中的预后价值。此外,采用时间依赖性受试者工作特征(ROC)曲线分析评估 TMED3 表达对 1 年、3 年和 5 年总生存期(OS)的预测效能。ROC 分析使用统计分析软件中的 timeROC 软件包完成,图形可视化由 ggplot2 软件包生成。
免疫组织化学分析
共从唐山中心医院随机选取60例结肠癌组织样本和20例非癌组织样本。本研究经当地伦理审查委员会批准(编号:TZYL/K/2023-16),所有患者在手术前均签署书面知情同意书。所有组织样本均来自未接受过术前化疗或免疫治疗的手术切除患者。队列包括39例男性和21例女性患者,年龄范围为20–87 岁。根据Duke分期标准,33例患者为I+II期,27例患者为III+IV期。由于队列中疾病分期分布可能引入对晚期疾病阶段的选择偏倚,因此与生存相关的研究结果应谨慎解读。
将石蜡包埋的组织标本切成4 µm厚的切片,随后进行脱蜡和再水化处理。使用4% H2O2灭活内源性过氧化物酶活性,并用山羊血清阻断非特异性结合。切片在4°C条件下与TMED3一抗(1:100稀释)孵育过夜。次日,在室温下加入羊抗兔IgG聚合物(PV-6000),孵育30分钟。采用二氨基联苯胺染色法显色,切片用中性树脂封片。在高倍光学显微镜下观察组织学染色结果。免疫染色强度评分标准为:0分(阴性)、1分(弱阳性)、 2分(中等阳性)和3分(强阳性);阳性肿瘤细胞比例评分标准为:1分(1%–25%)、2分(26%–50%)、3分(51%–75%)或4分(76%–100%)。最终免疫组化评分通过染色强度评分乘以阳性肿瘤细胞比例评分计算得出。TMED3表达水平分为阴性/低表达(评分 ≤ 6)或高表达(评分 > 6)19。
结肠癌中 TMED3 的基因富集分析
进行了基因富集分析,以评估与结肠癌中 TMED3 表达相关的潜在生物学功能和信号通路。使用统计分析软件中的 DESeq2 软件包筛选高表达组与低表达组之间的差异表达基因。来自 TCGA 的原始计数数据通过 DESeq2 中实现的中位数比率标准化方法进行标准化。在分析前排除在超过 50% 样本中计数 <10 的低表达基因。采用 |log2 (FC)| ≥ 1 且经 Benjamini–Hochberg (BH) 多重检验校正后的调整后 P 值 < 0.05 作为阈值来鉴定差异表达基因。所有分析参数均固定,以确保分析的可重复性。
随后,基于从分子特征数据库(Molecular Signatures Database, MSigDB)获取的京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes, KEGG)基因集(版本 7.5.1),使用 R 语言中的 clusterProfiler 软件包进行基因集富集分析(Gene Set Enrichment Analysis, GSEA)。根据 TMED3 高表达组与低表达组之间的 log2 倍数变化值生成预排序的基因列表。富集分析采用 1000 次表型置换检验,分析中纳入包含 15–500 个基因的基因集。显著富集的通路需满足以下条件:标准化富集评分(normalized enrichment score, NES)绝对值 >1,校正后 P 值 < 0.05,且错误发现率(false discovery rate, FDR) < 0.25。保留帕金森病通路的富集结果,因为该通路与线粒体功能障碍及氧化磷酸化相关生物学过程密切相关,而这些过程也参与肿瘤代谢重编程和癌症进展。
统计学分析
所有统计学分析均使用统计分析软件进行。组间差异表达的评估采用双侧 Wilcoxon 秩和检验(用于非配对样本)和 Wilcoxon 符号秩检验(用于配对样本)。TMED3 表达水平与临床病理学变量之间的关联性通过卡方检验进行评估。生存分析使用 survival 软件包(版本 3.3-1)完成,Kaplan–Meier 生存曲线由 survminer 软件包生成。组间生存结果的差异通过 log-rank 检验进行比较。采用 Cox 比例风险回归模型识别与 OS 相关的预后因素。根据 TMED3 表达水平的中位数将患者分为高表达组和低表达组。使用 timeROC 软件包进行时变 ROC 分析,图形由 ggplot2 软件包生成。除非另有说明,统计学显著性定义为双侧 P 值 < 0.05。
采用Spearman相关性分析评估TMED3表达水平与免疫特征、肿瘤突变负荷(TMB)及微卫星不稳定性(MSI)之间的相关性。所有相关性分析均使用来自相应公共数据库的标准化定量表达数据。对于TCGA的RNA测序数据,在适用的情况下,将TPM格式的表达值经log2(TPM + 1)标准化处理后用于分析。在统计分析前,排除缺失临床或分子数据的样本。Spearman相关性分析采用双尾非参数检验进行。在涉及少量比较的分析中(包括Wilcoxon检验、Spearman相关性分析和生存分析),使用原始P值。对于大规模高通量生物信息学分析(包括差异基因表达分析、KEGG富集分析和GSEA),采用BH FDR方法进行多重检验校正。以校正后的FDR值<0.05作为具有统计学显著性的标准。
结果
泛癌中 TMED3 的表达分析
对 TCGA 和 GTEx 数据集的分析表明,与相应的正常组织相比,TMED3 信使核糖核酸(mRNA)在大多数肿瘤组织中的表达显著升高,这些肿瘤包括肾上腺皮质癌(ACC)、膀胱尿路上皮癌(BLCA)、乳腺浸润性癌(BRCA)、宫颈鳞状细胞癌和子宫颈腺癌(CESC)、胆管癌(CHOL)、结肠腺癌(COAD)、弥漫性大 B 细胞淋巴瘤(DLBC)、食管癌(ESCA)、多形性胶质母细胞瘤(GBM)、肾透明细胞癌(KIRC)、肾乳头状细胞癌(KIRP)、脑低级别胶质瘤(LGG)、肝细胞癌(LIHC)、肺腺癌(LUAD)、肺鳞状细胞癌(LUSC)、卵巢浆液性囊腺癌(OV)、胰腺导管腺癌(PAAD)、嗜铬细胞瘤和副神经节瘤(PCPG)、前列腺腺癌(PRAD)、直肠腺癌(READ)、皮肤黑色素瘤(SKCM)、胃腺癌(STAD)、睾丸生殖细胞肿瘤(TGCT)、甲状腺癌(THCA)、胸腺瘤(THYM)、子宫体子宫内膜癌(UCEC)和子宫癌肉瘤(UCS);而在头颈部鳞状细胞癌(HNSC)和急性髓系白血病(LAML)中则观察到表达降低(图 1A)。配对表达分析以匹配的相邻正常组织作为对照。配对 TCGA 分析进一步证实,与配对的正常组织相比,BLCA、BRCA、CHOL、COAD、肾嫌色细胞癌(KICH)、KIRP、KIRC、LIHC、LUAD、LUSC、PRAD、STAD 和 UCEC 组织中 TMED3 的表达显著升高(图 1B)。此外,利用 UALCAN/临床蛋白质组肿瘤分析联盟(CPTAC)数据库进行的蛋白质表达分析显示,在 BRCA、COAD、GBM、KIRC、LIHC、LUAD、LUSC、OV 和 UCEC 肿瘤组织中 TMED3 蛋白水平升高,而与正常组织相比,PAAD 中的蛋白表达降低(图 1C)。然而,PAAD 中 TMED3 蛋白表达低于正常组织。mRNA 与蛋白表达模式之间的这种差异可能反映了转录后或翻译后调控机制的存在。这些结果提示,TMED3 在多种癌症中异常上调,可能与多种癌症的诊断和预后特征相关。
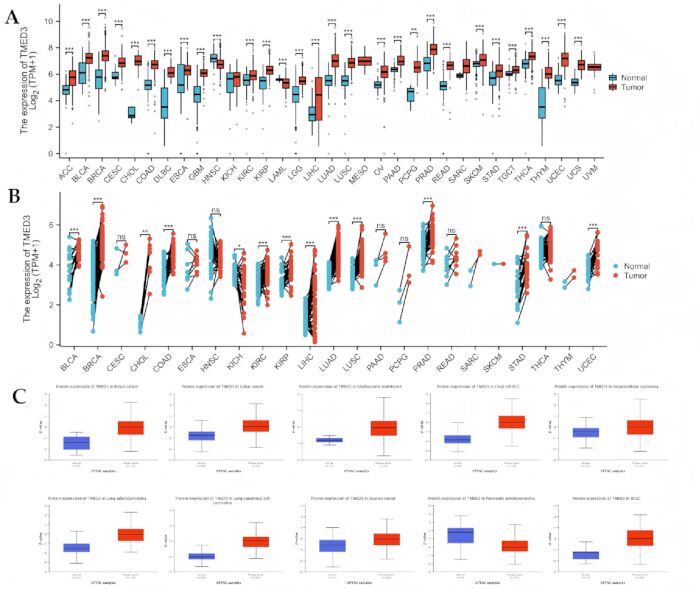
图 1.TMED3 在人类癌症中的表达谱。(A)基于 TCGA 和 GTEx 数据集,多种癌症类型中肿瘤组织与正常组织之间 TMED3 mRNA 表达的差异。表达水平以 log2(TPM + 1) 表示。(B)基于 TCGA 数据集,肿瘤组织与配对的相邻正常组织之间 TMED3 mRNA 表达的配对分析。(C)基于 CPTAC/UALCAN 数据集,正常组织与原发性肿瘤之间 TMED3 蛋白质表达的差异,包括乳腺浸润性癌(BRCA)、结肠腺癌(COAD)、多形性胶质母细胞瘤(GBM)、肾透明细胞癌(KIRC)、肝细胞癌(LIHC)、肺腺癌(LUAD)、肺鳞状细胞癌(LUSC)、卵巢浆液性囊腺癌(OV)、胰腺导管腺癌(PAAD)以及子宫体子宫内膜癌(UCEC)。数据以箱线图形式展示。统计学显著性根据具体情况采用 Wilcoxon 秩和检验或 Wilcoxon 符号秩检验进行分析。*P < 0.05,**P < 0.01,***P < 0.001;ns,无显著性差异。请点击此处查看该图的放大版本。
临床病理特征分析
临床分期分析表明,在腺样囊性癌(ACC)、肾透明细胞癌(KIRC)、肾乳头状细胞癌(KIRP)和肺腺癌(LUAD)中,晚期肿瘤(III–IV期)的TMED3表达水平显著高于早期肿瘤(I–II期)(图2)。相反,在子宫内膜癌(UCEC)中,晚期组织的TMED3表达水平显著降低。这些结果提示,TMED3表达升高可能与多种癌症类型的肿瘤进展相关。
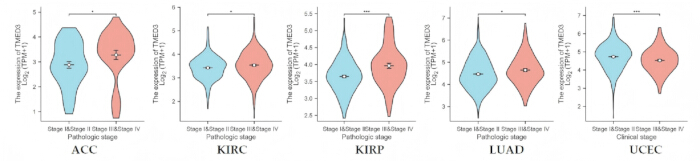
图2。TMED3表达与多种癌症病理分期之间的关联。 提琴图显示了肾上腺皮质癌(ACC)、肾透明细胞癌(KIRC)、肾乳头状细胞癌(KIRP)、肺腺癌(LUAD)和子宫体子宫内膜癌(UCEC)中早期肿瘤(I–II期)与晚期肿瘤(III–IV期)的TMED3 mRNA表达水平。表达水平以log2(TPM + 1)表示。采用Wilcoxon秩和检验评估统计学显著性。*P < 0.05,***P < 0.001。 请点击此处查看该图的放大版本。
预后分析
Cox 回归和生存分析表明,TMED3 高表达与肾上腺皮质癌(ACC)、结肠腺癌(COAD)、肺腺癌(LUAD)和葡萄膜黑色素瘤(UVM)患者的总生存期(OS)较差相关(图 3A)。疾病特异性生存期(DSS)分析进一步显示,TMED3 表达升高与 ACC、COAD、胶质母细胞瘤(GBM)、肾乳头状细胞癌(KIRP)和 UVM 患者的不良 DSS 显著相关(图 3B)。值得注意的是,在 TMED3 高表达的患者中,ACC、COAD 和 UVM 在 OS 和 DSS 方面均持续表现为预后不良。在部分肿瘤类型中也观察到具有趋势性意义的预后关联,包括 LUAD、肾透明细胞癌(KIRC)和低级别胶质瘤(LGG)。这些结果提示,TMED3 表达水平可能在多种恶性肿瘤中具有预后价值。
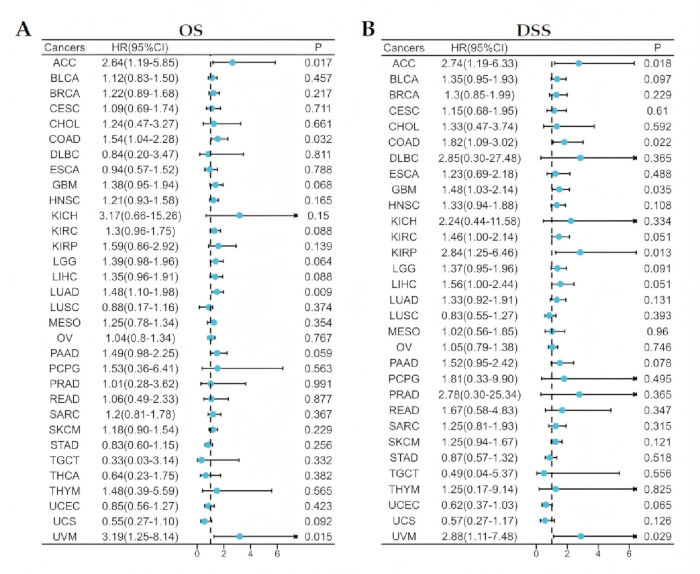
图3。TMED3表达在泛癌分析中的预后意义。(A)森林图显示TMED3表达与多种癌症类型总生存期(OS)之间的关联。(B)森林图显示TMED3表达与多种癌症类型疾病特异性生存期(DSS)之间的关联。风险比(HR)及95%置信区间(95% CI)通过Cox比例风险回归模型计算得出。HR > 1 表示高TMED3表达与较差的预后相关。请点击此处查看该图的高清版本。
突变分析
利用cBioPortal数据库进行的遗传改变分析表明,TMED3在多种癌症中的改变主要表现为突变、扩增、深度缺失以及多种联合改变(图4)。TMED3改变频率最高的癌种是间皮瘤(MESO),主要由基因扩增驱动(2.3%)。食管癌(ESCA)则表现出多种类型的混合改变,包括突变(0.55%)、扩增(1.1%)和深度缺失(0.55%)。相比之下,在肝细胞癌(LIHC)、肾嫌色细胞癌(KICH)、甲状腺癌(THCA)、嗜铬细胞瘤(PCPG)、胆管癌(CHOL)、葡萄膜黑色素瘤(UVM)、急性髓系白血病(LAML)、子宫肉瘤(UCS)、弥漫性大B细胞淋巴瘤(DLBC)、肾透明细胞癌(KIRC)、睾丸生殖细胞肿瘤(TGCT)和胶质母细胞瘤(GBM)的数据集中均未检测到明显的TMED3遗传改变。这些结果表明,TMED3的基因组改变具有肿瘤类型特异性,可能对癌症异质性产生影响。
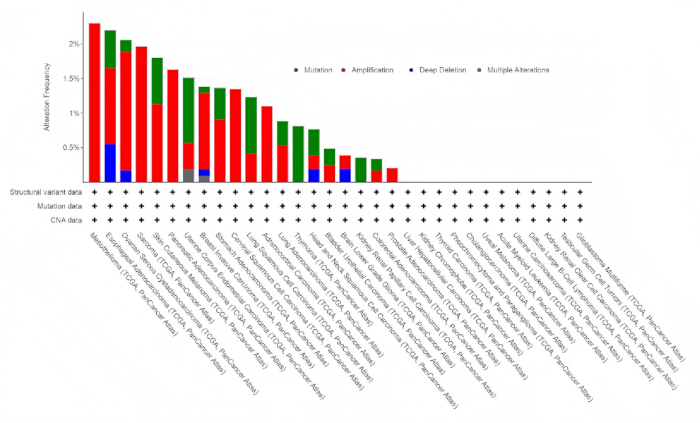
图 4.TMED3 在多种癌症中的遗传改变图谱。 基于 cBioPortal 数据库获取的泛癌数据集中 TMED3 遗传改变的频率及类型。改变类型包括突变、扩增、深度缺失以及多种联合改变。纵轴表示在不同癌症类型中遗传改变的频率(%)。请点击此处查看该图的放大版本。
DNA甲基化分析
UALCAN数据库的分析表明,与相应的正常组织相比,BRCA、COAD、ESCA、HNSC、KIRC、KIRP、LIHC、LUAD、PAAD和PRAD肿瘤组织中TMED3启动子的甲基化水平显著升高(图5)。相反,与正常对照相比,BLCA、TGCT和UCEC组织中TMED3启动子的甲基化水平降低。这些结果提示,TMED3启动子的异常甲基化可能参与了肿瘤特异性调控TMED3的表达。
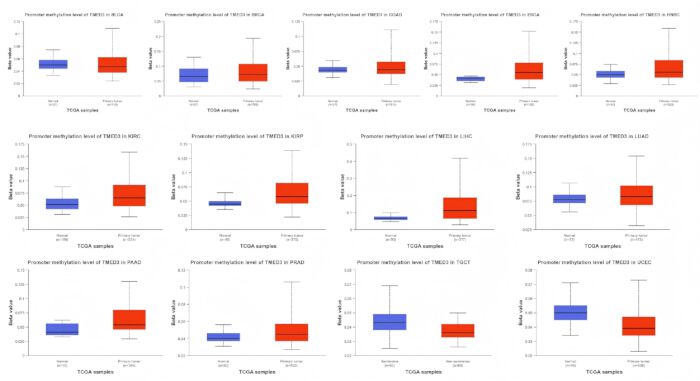
图5.多种癌症中TMED3的启动子甲基化水平。 利用UALCAN获取的膀胱尿路上皮癌(BLCA)、乳腺浸润性癌(BRCA)、结肠腺癌(COAD)、食管癌(ESCA)、头颈部鳞状细胞癌(HNSC)、肾透明细胞癌(KIRC)、肾乳头状细胞癌(KIRP)、肝细胞癌(LIHC)、肺腺癌(LUAD)、胰腺腺癌(PAAD)、前列腺腺癌(PRAD)、睾丸生殖细胞肿瘤(TGCT)以及子宫体子宫内膜癌(UCEC)数据集,比较肿瘤组织与相应正常组织中TMED3启动子的甲基化水平。数据以箱线图形式展示β值。 请点击此处查看该图的高清版本。
TMED3、TMB 和 MSI 相关性分析
Spearman 相关性分析表明,TMED3 表达水平在 ACC、ESCA、KIRC、LGG、PAAD、STAD、THYM 和 UCEC 中与 TMB 呈正相关,而在 CESC、LUAD 和 TGCT 中呈负相关(图 6A)。此外,TMED3 表达水平在 DLBC、KIRC、SKCM、STAD 和 UCEC 中与 MSI 呈正相关(图 6B)。值得注意的是,在 KIRC、STAD 和 UCEC 中,TMED3 表达水平与 TMB 和 MSI 均呈正相关,这可能提示其在这些癌症中与肿瘤免疫原性存在潜在关联。
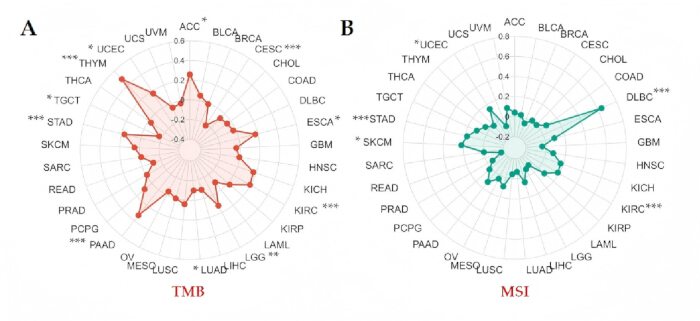
图6.TMED3表达与肿瘤突变负荷及泛癌分析中微卫星不稳定性之间的相关性。(A)雷达图显示TMED3表达与不同癌症中肿瘤突变负荷(TMB)之间的相关性。(B)雷达图显示TMED3表达与不同癌症中微卫星不稳定性(MSI)之间的相关性。相关系数采用Spearman相关性分析计算。*P < 0.05,**P < 0.01,***P < 0.001。请点击此处查看该图的高清版本。
免疫特征分析
ESTIMATE 分析表明,TMED3 表达在 BCLA、ESCA、LAML、LUAD、LUSC、PAAD、PRAD、SKCM、STAD、THCA 和 UCEC 中与基质评分、免疫评分及 ESTIMATE 评分呈负相关(图 7A)。相反,在 LGG、LIHC 和 PCPG 中观察到 TMED3 表达与这些免疫相关评分呈正相关。在 ACC、CHOL、DLBC、GBM、KICH、KIRC、KIRP、OV 和 UCS 中未发现显著相关性。这些结果提示,TMED3 可能以癌症类型依赖的方式影响肿瘤微环境及免疫细胞浸润。免疫检查点相关性分析进一步显示,TMED3 表达在 BLCA、BRCA、CESC、ESCA、HNSC、LUAD、LUSC、PRAD、SKCM 和 THCA 中与免疫检查点相关基因 CD274(PD-L1)、PDCD1(PD-1)和 CTLA4 呈负相关(图 7B)。在 LIHC 和 UVM 中观察到 TMED3 表达与免疫检查点基因呈正相关,而在 GBM、KICH、LAML、MESO、OV、PCPG、READ 和 TGCT 中未发现显著关联。这些结果表明,TMED3 可能在特定癌症中与肿瘤免疫调控及免疫检查点信号通路相关。
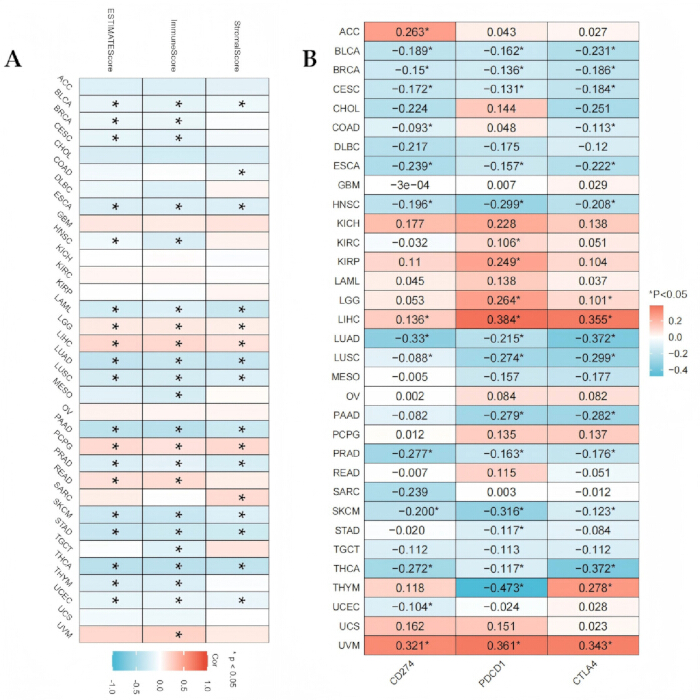
图7.TMED3表达与肿瘤免疫特征之间的关联。(A)热图显示了使用ESTIMATE算法计算的多种癌症中TMED3表达与基质评分、免疫评分及ESTIMATE评分之间的相关性。(B)热图显示了TMED3表达与免疫检查点相关基因(包括CD274(PD-L1)、PDCD1(PD-1)和CTLA4)之间的相关性。相关系数采用Spearman相关性分析确定。颜色标度表示相关性强弱。*P < 0.05。 请点击此处查看该图的放大版本。
药物敏感性分析
基于GDSC数据集,利用GSCALite平台进行的药物敏感性分析表明,TMED3表达水平与17-AAG、拉帕替尼(lapatinib)、PD-0325901、RDEA119以及曲美替尼(trametinib)的半数抑制浓度(IC50)值呈负相关(图8)。这些结果提示,TMED3表达升高的肿瘤可能对这些抗肿瘤药物表现出更高的敏感性,表明TMED3表达水平与治疗敏感性之间可能存在关联。
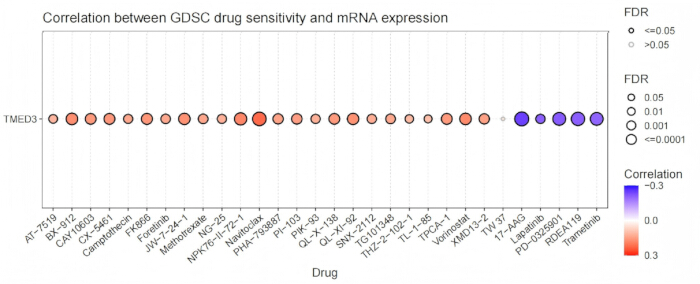
图8.TMED3表达与抗癌药物敏感性的相关性。 气泡图显示了通过GSCALite平台从癌症药物敏感性基因组学(GDSC)数据集中获得的TMED3 mRNA表达水平与抗癌药物敏感性之间的相关性。气泡大小表示基于错误发现率(FDR)的统计显著性,颜色表示相关系数值。负相关表明高TMED3表达与药物敏感性增加相关。请点击此处查看该图的放大版本。
TMED3 在结肠癌中的表达及预后意义
在 TCGA 数据集中,TMED3 表达分析显示,与正常结肠组织相比,结肠癌组织中 TMED3 mRNA 水平显著升高(图 9A)。采用配对分析,以匹配的相邻正常组织作为对照,进一步证实了结肠癌组织中 TMED3 表达上调(图 9B)。与转录组学结果一致,利用 UALCAN/CPTAC 数据集进行的蛋白质表达分析以及免疫组织化学染色均显示,与正常结肠组织相比,结肠癌组织中 TMED3 蛋白表达增加(图 9C–9E)。ROC 曲线分析显示曲线下面积(AUC)为 0.869,表明 TMED3 在区分结肠癌组织与正常组织方面具有良好的诊断效能(图 9F)。临床病理学分析进一步表明,TMED3 表达与 T 分期显著相关,而与年龄、性别、N 分期或 TNM 分期无显著关联(表 1)。这些结果支持 TMED3 在结肠癌中具有潜在的诊断价值。
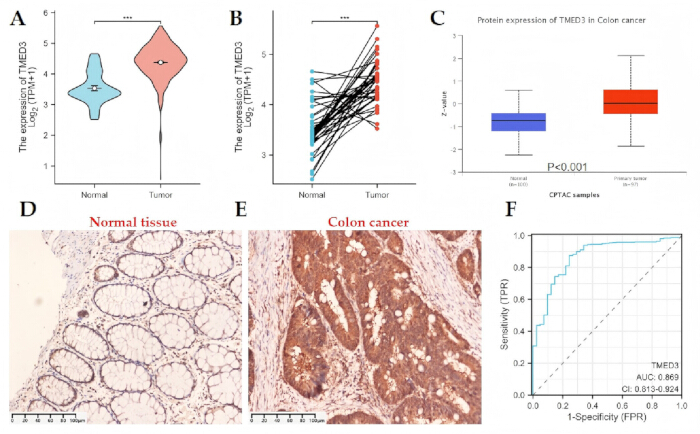
图9.TMED3在结肠癌中的表达、诊断价值及免疫组织化学验证。(A)基于TCGA数据集分析结肠癌组织与正常结肠组织之间TMED3 mRNA表达的差异。(B)结肠癌组织与配对的相邻正常组织中TMED3 mRNA表达的配对分析。(C)基于CPTAC/UALCAN数据集获得的结肠癌和正常组织中TMED3蛋白表达情况。(D)正常结肠组织中TMED3的代表性免疫组织化学染色。(E)结肠癌组织中TMED3的代表性免疫组织化学染色,显示TMED3表达升高。(F)受试者工作特征(ROC)曲线评估TMED3在结肠癌中的诊断价值。比例尺 = 100 µm。曲线下面积(AUC)为0.869,95%置信区间(CI)为0.813–0.924。根据情况采用Wilcoxon秩和检验或Wilcoxon符号秩检验进行统计学分析。***P < 0.001。 请点击此处查看该图的放大版本。
| 类型 | TMED3 | P 值 | χ2 | ||
| 低表达 | 高表达 | ||||
| 年龄 | |||||
| ≤ 55 | 25 | 15 | 10 | 0.13 | 2.34 |
| > 55 | 35 | 14 | 21 | ||
| 性别 | |||||
| 女性 | 21 | 10 | 11 | 0.94 | 0.007 |
| 男性 | 39 | 19 | 20 | ||
| T 分期 | |||||
| T1+T2 | 23 | 15 | 8 | 0.04 | 4.26 |
| T3+T4 | 37 | 14 | 23 | ||
| N 分期 | |||||
| N0 | 30 | 12 | 18 | 0.2 | 1.67 |
| N1+N2 | 30 | 17 | 13 | ||
| TNM 分期 | |||||
| I+II | 33 | 13 | 20 | 0.13 | 2.35 |
| III+IV | 27 | 16 | 11 | ||
表1:TMED3表达水平与结肠癌患者临床病理特征的关联性。 比较了低表达和高表达TMED3的结肠癌患者组之间的临床病理特征。采用卡方(χ2)检验分析TMED3表达水平与年龄、性别、T分期、N分期及TNM分期等临床病理变量之间的关联性。数据以各亚组中的患者例数表示。统计学显著性定义为 P < 0.05。
KM生存分析表明,与TMED3表达水平较低的患者相比,TMED3高表达的患者总体生存期(OS)显著更差(P = 0.031),疾病特异性生存期(DSS)也显著更差(P = 0.020)(图10A 和 10B)。时间依赖性ROC分析显示,TMED3表达水平对总体生存期的预测效能在1年、3年和5年时的AUC值分别为0.620、0.564和0.575(图10C)。此外,单因素和多因素Cox回归分析均表明,T分期、M分期、病理分期以及TMED3表达水平是与结肠癌患者总体生存相关的预后因素(Table 2)。这些结果提示,TMED3表达升高与结肠癌预后不良相关,尽管时间依赖性ROC分析显示其预测效能仅为中等水平。
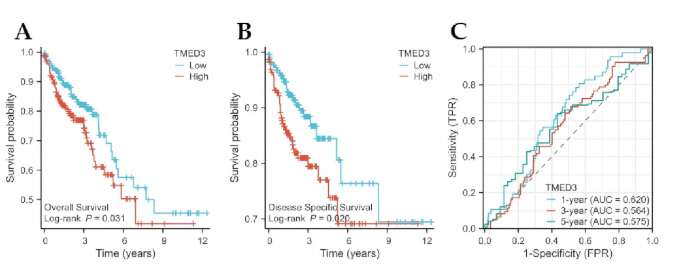
图 10.TMED3 表达在结肠癌中的预后意义。(A)Kaplan–Meier(KM)总生存(OS)曲线,比较结肠癌中 TMED3 高表达与低表达患者的生存情况。(B)Kaplan–Meier 疾病特异性生存(DSS)曲线,比较 TMED3 高表达与低表达患者的生存情况。(C)时间依赖性受试者工作特征(ROC)曲线,评估 TMED3 表达对 1 年、3 年和 5 年总生存率的预测效能。生存差异采用对数秩检验进行分析。请点击此处查看该图的放大版本。
| 特征 | 单变量分析 | 多变量分析 | ||
| 风险比 (95% CI) | P 值 | 风险比 (95% CI) | P 值 | |
| 性别 | 1.101(0.746–1.625) | 0.627 | ||
| T 分期 | 3.072(1.423–6.631) | 0.004 | 3.817(1.174–12.407) | 0.026 |
| N 分期 | 2.592(1.743–3.855) | <0.001 | 0.587(0.223–1.584) | 0.28 |
| M 分期 | 4.193(2.683–6.554) | <0.001 | 2.272(1.314–3.930) | 0.003 |
| 病理分期 | 2.947(1.942–4.471) | <0.001 | 3.115(1.032–9.401) | 0.044 |
| TMED3 | 1.537(1.037–2.277) | 0.032 | 1.599(1.039–2.462) | 0.033 |
表2:结肠癌患者总生存期相关预后因素的单变量与多变量Cox比例风险回归分析。 采用单变量和多变量Cox比例风险回归分析评估结肠癌患者临床病理特征及TMED3表达水平的预后意义。风险比(HR)以95%置信区间(95% CI)表示。分析变量包括性别、T分期、N分期、M分期、病理分期和TMED3表达水平。统计学显著性定义为P < 0.05。
药物敏感性分析表明,与TMED3低表达组相比,TMED3高表达组患者对5-氟尿嘧啶、拉帕替尼和曲美替尼的估计IC50值较低(图11)。这些发现提示,TMED3表达升高的结肠癌患者可能对这些化疗药物和靶向治疗药物更为敏感,表明TMED3表达水平与治疗反应之间可能存在关联。
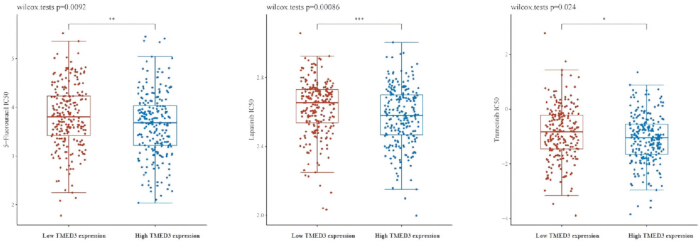
图11.TMED3表达水平与结肠癌化疗药物敏感性的相关性。 箱线图显示了在TMED3低表达组(G1)和高表达组(G2)中,5-氟尿嘧啶、拉帕替尼和曲美替尼的半数最大抑制浓度(IC50)估计值。较低的IC50值表示更高的药物敏感性。采用Wilcoxon秩和检验进行统计学显著性分析。*P < 0.05,**P < 0.01,***P < 0.001。 请点击此处查看该图的放大版本。
基因富集分析
利用MSigDB数据库中的KEGG数据集进行GSEA分析表明,结肠癌中与TMED3相关的基因在核糖体、抗原加工与提呈、氧化磷酸化以及磷酸戊糖途径等通路中显著富集(图12)。这些结果提示,TMED3可能通过上述通路参与结肠癌的肿瘤进展。
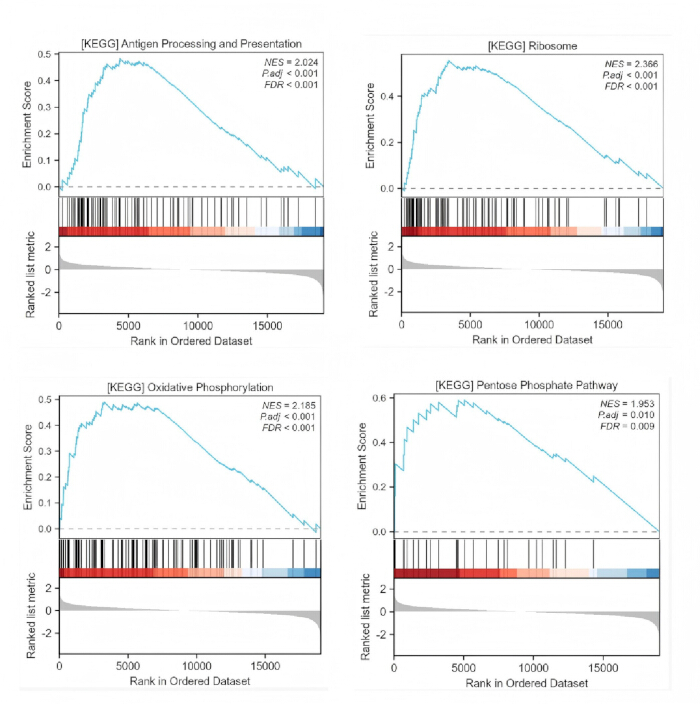
图12.结肠癌中与TMED3相关基因的基因集富集分析(GSEA)。GSEA图显示在结肠癌中,与TMED3相关的基因在抗原加工与呈递、核糖体、氧化磷酸化以及戊糖磷酸途径等通路中的富集情况。每个图中均标出了标准化富集评分(NES)、名义P值以及错误发现率(FDR)值。请点击此处查看该图的放大版本。
本研究证实,TMED3 在多种癌症中异常表达,与肿瘤进展、预后、免疫特征、肿瘤突变负荷(TMB)、微卫星不稳定性(MSI)以及药物敏感性相关。在结肠癌中,TMED3 的过表达与较差的生存预后相关,并具有较高的诊断价值。功能富集分析进一步提示,TMED3 可能参与多种癌症相关的代谢和信号通路。综上所述,这些发现支持进一步研究 TMED3 作为泛癌尤其是结肠癌潜在诊断和预后生物标志物的可能性。
数据可用性:
本研究中分析的数据集来自公开可用的数据库,包括癌症基因组图谱(The Cancer Genome Atlas, TCGA;https://portal.gdc.cancer.gov/projects/;访问时间:2025年7月1日)、UALCAN(http://ualcan.path.uab.edu/;访问时间:2025年7月1日)、cBioPortal(https://www.cbioportal.org/;访问时间:2025年7月5日)以及通过GSCA平台获取的癌症药物敏感性基因组学数据库(Genomics of Drug Sensitivity in Cancer, GDSC;https://guolab.wchscu.cn/GSCA/#/drug;访问时间:2025年7月5日)。本研究期间生成的所有经处理数据均已包含在文章中。
讨论
TMED蛋白是一类高度保守的含有emp24结构域的蛋白质,在真核细胞中以单体或二聚体形式存在20。TMED家族成员属于I型跨膜蛋白,参与囊泡介导的蛋白质运输和细胞内转运过程20。p24蛋白家族包含10个TMED成员,其中包括TMED3。越来越多的证据表明,TMED3在多种恶性肿瘤中异常表达,例如子宫内膜癌、骨肉瘤、透明细胞癌、肝细胞癌、前列腺癌和乳腺癌4,6,21,22,23。TMED3表达水平升高也与多种肿瘤类型的不良预后相关3,5,17,18,19。在肺鳞状细胞癌中,TMED3被证实可通过调控ezrin促进肿瘤进展,而沉默TMED3则可抑制细胞增殖、克隆形成、迁移以及凋亡相关蛋白的失调5。综上所述,这些研究提示TMED3在癌症的发生和发展中发挥重要作用;然而,其在泛癌中的生物学功能及分子机制仍有待进一步阐明。
在本研究中,整合了多个公共数据库,以全面评估 TMED3 在多种癌症中的表达模式、预后意义、免疫特征及潜在生物学功能。TMED3 在 26 种肿瘤类型中表达显著升高,这一发现通过多种癌症中配对的肿瘤组织与相邻正常组织分析进一步得到验证。一致地,CPTAC 数据显示 TMED3 蛋白在 BRCA、COAD、GBM、KIRC、LIHC、LUAD、LUSC、OV 和 UCEC 中表达升高。有趣的是,尽管 PAAD 组织中 TMED3 mRNA 表达升高,但在 UALCAN 数据库中观察到其蛋白表达降低,提示转录后调控、蛋白降解或翻译后修饰可能造成这一差异。既往研究表明,在乳腺癌细胞中过表达 TMED3 可促进 β-catenin 和 Axin-2 在 MCF-7 细胞胞质和细胞核中的累积,并增强 Wnt/β-catenin 通路下游靶基因(包括 c-myc、MMP7 和 TCF4)的表达,从而促进肿瘤细胞的增殖、迁移和侵袭24。类似地,已有报道指出 TMED3 在非小细胞肺癌中表达上调,而沉默 TMED3 可抑制肿瘤细胞的增殖和侵袭能力25。在本研究中,临床病理学分析显示,TMED3 在晚期 ACC、KIRC、KIRP 和 LUAD 中表达升高,而在晚期 UCEC 中表达降低,提示 TMED3 在癌症进展过程中可能具有肿瘤特异性的生物学作用。生存分析进一步表明,TMED3 高表达与 ACC、COAD 和 UVM 患者的不良总生存期(OS)和疾病特异性生存期(DSS)显著相关,支持 TMED3 在多种恶性肿瘤中具有潜在的预后价值。此外,启动子甲基化分析显示,BRCA、COAD、ESCA、HNSC、KIRC、KIRP、LIHC、LUAD、PAAD 和 PRAD 中 TMED3 甲基化水平升高,而 BLCA、TGCT 和 UCEC 中甲基化水平降低。这些结果表明,异常的启动子甲基化可能以肿瘤依赖性方式导致 TMED3 表达失调,并参与癌症的发生发展。
微卫星不稳定性(MSI)代表一种独特的癌症分子亚型,通常与免疫治疗的更好应答相关,因为这类肿瘤通常表现出较高的突变负荷和升高的PD-L1表达26,27。具有高肿瘤突变负荷(TMB)的肿瘤可产生大量来源于体细胞突变的新抗原,从而增强T细胞介导的抗肿瘤免疫活性,并可能提高对免疫检查点阻断治疗的敏感性28,29。在本研究中,TMED3表达在KIRC、STAD和UCEC中与TMB和MSI均呈正相关,表明TMED3可能与这些癌症类型的肿瘤免疫原性及免疫治疗应答性相关。越来越多的证据表明,肿瘤微环境(尤其是免疫和基质成分)在癌症进展、治疗反应、复发及患者预后中发挥关键作用。ESTIMATE算法根据免疫相关基因的表达模式计算基质评分、免疫评分和ESTIMATE总评分,既往研究已报道这些评分与前列腺癌、胶质母细胞瘤和结肠癌的临床结局存在显著关联30,31,32。我们的分析显示,TMED3表达在不同肿瘤类型中与基质评分、免疫评分和ESTIMATE评分的关联程度各异,提示TMED3可能通过调控肿瘤微环境参与肿瘤进展。此外,TMED3表达与多个免疫检查点相关基因(包括CD274(PD-L1)、PDCD1(PD-1)和CTLA4)存在相关性,尽管这些关联的方向和强度在不同肿瘤类型中有所差异。在ACC、KIRP、LGG、LIHC、THYM和UVM中,TMED3与免疫检查点标志物之间存在显著正相关,提示在这些癌症中TMED3表达升高的肿瘤可能对免疫治疗具有更高的敏感性。药物敏感性分析还揭示了TMED3表达与17-AAG、拉帕替尼(lapatinib)、PD-0325901、RDEA119和曲美替尼(trametinib)应答之间的关联,表明TMED3表达可能与治疗疗效存在潜在关系。
选择结肠癌进行免疫组织化学验证,结果证实,与正常结肠组织相比,结肠癌组织中TMED3的表达显著升高,这与既往研究结果一致7。临床病理学分析进一步揭示,TMED3表达水平与结肠癌的T分期之间存在显著相关性。此外,TMED3表现出潜在的诊断价值,而TMED3表达升高与患者较差的预后相关。然而,时间依赖性ROC分析显示,预测1年、3年和5年总生存期(OS)的AUC值仅略高于0.5,表明尽管具有统计学意义,其预测准确性仍有限。这些结果提示,目前TMED3作为探索性预后生物标志物的价值较大,尚不足以作为常规临床应用的可靠预测指标。单因素与多因素Cox回归分析进一步确认,T分期、M分期、病理分期以及TMED3表达水平是与结肠癌患者总生存期(OS)相关的独立预后因素。药物敏感性分析表明,TMED3表达升高的患者可能对常用治疗药物如5-氟尿嘧啶、拉帕替尼和曲美替尼更具反应性。此外,功能富集分析显示,结肠癌中与TMED3相关的基因主要富集于核糖体、抗原加工与提呈、氧化磷酸化以及磷酸戊糖途径等相关通路。
本研究系统评估了TMED3在多种癌症类型中的表达谱、预后价值及其与免疫相关的特征。然而,仍需考虑若干局限性。大多数研究结果基于公共数据库的生物信息学和多组学分析得出,实验验证仅限于结肠癌组织中的免疫组织化学分析。此外,尚未开展功能实验以探究TMED3在肿瘤进展中所起作用的具体分子机制。因此,尚需进一步的体外和体内研究,以更清晰地阐明TMED3在不同恶性肿瘤中的生物学功能及其潜在的治疗意义。
披露
利益冲突:
作者声明无竞争利益。
致谢
本工作由河北省医学科学研究项目(编号:20231832)资助。作者衷心感谢TCGA、GTEx、UALCAN和cBioPortal数据库所做出的贡献。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.5% 氨溶液 | 天津福宇精细化工有限公司 | CAS:1336-21-6 | N/A |
| 1% 酸性乙醇 | 宁波奇威生物技术有限公司 | CWGQ-HE-1001 | N/A |
| 10% 中性缓冲福尔马林 | 武汉华美生物技术有限公司 | H-H8060 | N/A |
| 100% 乙醇 | 天津福宇精细化工有限公司 | CAS:64-17-5 | N/A |
| 70% 乙醇 | 天津福宇精细化工有限公司 | CAS:64-17-5 | N/A |
| 80% 乙醇 | 天津福宇精细化工有限公司 | CAS:64-17-5 | N/A |
| 95% 乙醇 | 山东利润医疗科技有限公司 | CAS:64-17-5 | N/A |
| 阿尔新蓝染色 | Baso 诊断公司,珠海 | BA4121 | N/A |
| cBioPortal | 纪念斯隆-凯特琳癌症中心 | N/A | SCR_014555 |
| 柠檬酸盐抗原修复缓冲液 | Leica Biosystems Newcastle Ltd | AR9640-CN | N/A |
| clusterProfiler 包 | Bioconductor | N/A | SCR_016884 |
| DESeq2 软件包 | Bioconductor | N/A | SCR_015687 |
| 二氨基联苯胺四盐酸盐水合物 | Leica Biosystems Newcastle Ltd | DS9800-CN | N/A |
| ESTIMATE 软件包 | R 软件包 | 版本 1.0.13 | N/A |
| GSCALite 平台 | GSCALite | N/A | N/A |
| GTEx数据库 | GTEx 联盟 | N/A | SCR_013042 |
| 苏木精 | 宁波奇威生物技术有限公司 | CWGQ-HE-1001 | N/A |
| 过氧化氢 | OriGene Technologies, Inc | PV-6000D | N/A |
| Kaplan–Meier生存分析 | survival R 包 | 版本 3.2-7 | SCR_021137 |
| KEGG 基因集 | MSigDB | 版本 7.5.1 | SCR_016863 |
| 光学显微镜 | 蔡司科技(苏州)有限公司 | N/A | N/A |
| 石蜡包埋介质 | YL公司病理试剂部 | CAS:8002-74-2 | N/A |
| 基于聚合物的检测系统 | Leica Biosystems Newcastle Ltd | PV-6000 | N/A |
| R 统计分析软件 | R 统计计算基金会 | 版本 4.2.1 | SCR_001905 |
| 二抗兔抗小鼠IgG | Leica Biosystems Newcastle Ltd | DS9800-CN | N/A |
| TCGA数据库 | 国家癌症研究所 | N/A | SCR_003193 |
| TMED3 一抗 | CUSABIO Technology,美国休斯顿 | CSB-PA897107LA01HU | N/A |
| Tris缓冲盐溶液(TBS) | Leica Biosystems Newcastle Ltd | AR9590-CN | N/A |
| UALCAN数据库 | UALCAN | N/A | SCR_015827 |
| Wilcoxon 统计分析 | stats R 包 | N/A | SCR_003005 |
| 二甲苯 | 天津福宇精细化工有限公司 | CAS:1330-20-7 | N/A |