本研究评估了miR-21-5p的表达水平,及其与细胞黏附分子1的关联性,同时探讨了其在非小细胞肺癌组织和细胞系中与细胞迁移、增殖、炎症标志物表达及生存率之间的关系。
研究文章
miR-21-5p-细胞黏附分子1轴在非小细胞肺癌进展与预后中的作用
28 次观看
⸱
2026年9月11日
* These authors contributed equally
本文内容
摘要
摘要
研究表明,miR-21-5p 在非小细胞肺癌(NSCLC)中是一种重要的分子调控因子。细胞黏附分子1(CADM1)是一种潜在的抑癌基因,但miR-21-5p与CADM1在NSCLC进展中的调控关系尚不明确。采用定量逆转录PCR(qRT-PCR)检测NSCLC组织和细胞中miR-21-5p和CADM1的表达水平;通过双荧光素酶报告基因实验验证miR-21-5p与CADM1的靶向结合关系;采用Transwell实验检测细胞迁移能力;结合临床病理资料及生存分析探讨miR-21-5p的临床意义;通过生物信息学分析miR-21-5p靶基因的功能富集情况。结果显示,NSCLC组织中miR-21-5p的表达水平显著高于癌旁正常组织,且miR-21-5p高表达的患者总体生存期较短。miR-21-5p高表达是NSCLC患者生存的独立危险因素;miR-21-5p过表达可促进NSCLC细胞的迁移能力,并上调炎症因子的表达水平;双荧光素酶报告基因实验证实miR-21-5p可直接靶向CADM1;过表达CADM1可抑制NSCLC细胞的迁移能力,并下调炎症因子的表达水平;生物信息学分析显示,miR-21-5p的靶基因在多个与肿瘤发生发展相关的信号通路中显著富集。miR-21-5p通过靶向抑制CADM1促进NSCLC的进展,可能作为NSCLC的预后生物标志物和治疗靶点。
引言
在全球范围内,肺癌是导致癌症相关死亡的主要原因之一,其发病率持续上升1,2。在东亚人群中,男性肺癌发病率和死亡率分别为每10万人中222.1例和155.5例,女性则分别为每10万人中158.1例和87.3例。非小细胞肺癌(NSCLC)约占所有肺癌病例的80%,包含三种主要的组织学亚型3。与侵袭性极强的小细胞肺癌(SCLC)相比,NSCLC的进展和转移速度较慢;然而,由于早期临床症状不典型,超过75%的患者在确诊时已处于中晚期阶段,导致5年总体生存率长期处于较低水平4。肺癌的发生由癌基因激活和抑癌基因沉默共同驱动5,凸显了深入解析NSCLC分子机制以推动新型治疗策略发展的迫切需求6。
microRNA(miRNA,长度为18–25个核苷酸)通过与靶标mRNA的3′非翻译区(3′-UTR)结合,介导转录后基因抑制,从而引发翻译抑制或mRNA降解7。miRNA的生成始于RNA聚合酶II的转录,产生初级miRNA转录本,随后由RNase III酶切割形成发夹结构的前体miRNA(pre-miRNA)8。尽管大多数miRNA通过与mRNA 3′-UTR的部分或完全序列互补来抑制基因表达,但某些miRNA在特定细胞周期背景下可增强mRNA的翻译9。迄今为止,已鉴定出数百种人类miRNA,它们调控细胞增殖、分化和凋亡等核心生物学过程10。以往,异常表达miRNA的检测在技术上具有挑战性;高通量测序技术的出现使得能够快速、无偏倚地对疾病组织中失调的miRNA进行谱型分析11。本文聚焦于miR-21-5p,这是最早被鉴定的由RNA聚合酶II转录的miRNA之一,其致癌调控功能目前正受到广泛研究12。
miR-21-5p 编码于 TMEM49 基因的一个内含子中,在多种人类恶性肿瘤中持续高表达,包括食管癌、结直肠癌和肺癌13。现有的非小细胞肺癌(NSCLC)临床前数据证实了其致癌活性:miR-21-5p 水平升高通过沉默 PTEN 和 PDCD4 等抑癌基因,促进肿瘤增殖、上皮-间质转化(EMT)及远处转移14。然而,以往研究主要集中于 miR-21 调控的凋亡和增殖信号通路,极少有报道系统性地探讨 miR-21-5p/CADM1 调控轴在非小细胞肺癌中的作用15。细胞黏附分子1(CADM1)是多种上皮性肿瘤中公认的抑癌基因16;其通过维持细胞间黏附,阻止肿瘤细胞脱离和转移扩散,其表达下调与非小细胞肺癌患者肿瘤分期进展及生存预后不良相关。从机制上讲,CADM1 还可抑制促肿瘤的核因子κB(NF-κB)炎症信号通路,该通路通过诱导促炎性细胞因子分泌并重塑肿瘤微环境,从而促进转移17。尽管 miR-21-5p 的致癌作用和 CADM1 的抑癌功能已有独立报道,但在非小细胞肺癌中,miR-21-5p/CADM1 调控轴仍存在三个关键的知识空白:第一,miR-21-5p 对 CADM1 的直接结合与抑制作用在肺癌细胞中尚缺乏实验验证;第二,该调控轴是否通过下游炎症通路驱动恶性表型仍不明确;第三,miR-21-5p 与 CADM1 联合表达特征在临床非小细胞肺癌样本中的预后预测价值尚未被评估。
基于这些尚未解决的问题,我们提出一个核心机制假说:在非小细胞肺癌(NSCLC)中上调的miR-21-5p可直接结合CADM1基因的3′-非翻译区(3′-UTR),从而抑制CADM1的表达,进而解除CADM1对转移性炎症信号通路的抑制作用,最终促进NSCLC细胞的迁移并导致较差的临床预后。本研究设定三个预先定义的研究目标:(1)验证miR-21-5p对CADM1的直接分子靶向作用,并评估A549和H1299两种NSCLC细胞系中的细胞迁移能力;(2)阐明miR-21-5p/CADM1信号级联是否通过炎症信号转导途径调控NSCLC的转移潜能;(3)评估miR-21-5p/CADM1表达特征的临床预后价值,以识别可用于转移性NSCLC诊断的新生物标志物及潜在治疗靶点。
方案
本项回顾性研究已通过衢州市中医院伦理委员会审查并批准(批准号:202402208)。在样本采集前,已从每位纳入研究的患者或其法定监护人处获得书面知情同意书。
样本采集
原发性非小细胞肺癌(NSCLC)肿瘤组织通过手术从入组患者中获取,而其配对的癌旁正常肺组织则从国家临床活检工程技术研究中心(中国浙江省衢州市)回顾性收集。本队列研究共纳入了2019年1月至2024年12月期间连续入组的157例NSCLC患者样本。基于既往发表的NSCLC miRNA预后研究,157例配对样本的样本量在统计学上是合理的:假设中等效应值为0.5,α = 0.05,统计效能为80%,计算得出所需的最小样本量为122例。考虑到潜在的样本丢失、严重组织坏死以及失访患者的情况,我们在2019年1月至2024年12月期间连续纳入了157例符合条件的患者,以确保足够的统计效能。所有肿瘤组织及其配对的癌旁正常肺组织均来自同一患者的手术切除标本,构成用于后续比较分析的配对样本。
纳入标准为:(1)经术后病理活检确诊为原发性非小细胞肺癌的患者;(2)具有完整的临床基线资料、组织病理学分期及长期随访生存数据;(3)在组织取样前未接受过放疗、化疗或靶向治疗;(4)具备完整的配对肿瘤组织及癌旁组织标本。
排除标准为:(1)合并其他器官的继发性恶性肿瘤;(2)术后3个月内失访的患者;(3)标本存在严重坏死或组织量不足以进行后续分子检测。
所有新鲜组织样本在手术切除后15分钟内置于液氮中,随后转移至超低温冰箱,并在−80 °C下保存用于RNA和蛋白质提取。定期进行临床随访,总生存期从病理诊断之日开始计算,以月为单位,截止至患者死亡或末次随访时间点。
miR-21-5p 表达水平的分层
所有 157 例患者的 miR-21-5p 相对表达值按升序排列,并根据中位表达值进行分组。由于中位值附近存在多个相同数值,因此将表达值低于中位值的患者归入低表达组(n = 61);表达值等于或高于中位值的患者,包括所有中位值处的相同数值,均归入高表达组(n = 96)。该针对相同数值的分组规则在分组前已预先确定,以解决中位值重复的问题,且分组结果已通过原始的 qRT-PCR 定量数据进行交叉验证。
细胞培养
人非小细胞肺癌细胞系 A549 和 H1299 购自商业供应商(见材料表)。A549 细胞在 RPMI-1640 培养基中培养,H1299 细胞在 DMEM 培养基中培养。两种细胞培养基均添加 10% 热灭活胎牛血清(FBS)、青霉素(100 U/mL)和链霉素(100 µg/mL)。细胞在 37 °C、5% CO₂ 的湿润培养箱中进行标准条件培养。
在进行所有功能实验之前,采用短串联重复序列(STR)分析对 A549 和 H1299 细胞系的身份进行鉴定。每月使用商用基于 PCR 的支原体检测试剂盒进行支原体污染检测,仅使用支原体检测阴性的细胞进行后续实验。
收获处于对数生长期且形态完整的细胞用于瞬时转染。按照生产商说明书使用基于脂质的转染试剂(见材料表)。转染后50小时进行后续细胞检测。
细胞转染
进行转染时,将处于对数生长期、形态完整的细胞提前24小时接种于培养板中,使其融合度达到60%–70%。根据生产商说明书,使用基于脂质的转染试剂(见材料表)进行转染。实验共设四个组:模拟物阴性对照(mimic-NC)、miR-21-5p 模拟物、抑制物阴性对照(inhibitor-NC)和 miR-21-5p 抑制剂。核苷酸序列详见补充文件1。
转染后50小时提取总RNA,并通过定量逆转录PCR(qRT-PCR)检测miR-21-5p的相对表达水平,以验证转染效率。细胞迁移实验在转染后50小时进行。对于瞬时转染,细胞分别用终浓度为50 nM的miR-21-5p模拟物(mimic)或模拟物阴性对照(mimic-NC)处理;而miR-21-5p抑制剂和抑制剂阴性对照(inhibitor-NC)的处理浓度为100 nM。为避免因核酸投入量差异带来的混杂效应,所有四个处理组的转染核酸总量保持一致。
采用细胞计数试剂盒-8(CCK-8)检测细胞增殖。将稳定转染的细胞以每孔 3 × 10³ 个细胞的密度接种于 96 孔板中,每组设六个技术重复孔。接种后 24、48 和 72 小时,每孔加入 10 µL CCK-8 试剂,随后在 37 °C 下孵育 2 小时。使用酶标仪在 450 nm 波长处测定吸光度,以定量细胞增殖水平。
所有瞬时转染、CCK-8 和迁移实验均进行了不少于三个独立的生物学重复,每个生物学重复包含 3–6 个技术重复,具体如上所述。
定量逆转录 PCR
采用基于苯酚/胍的 RNA 提取试剂从 NSCLC 细胞及配对的临床肿瘤组织和相邻正常组织中提取总 RNA(参见材料表)。RNA 纯度和浓度通过紫外分光光度法测定;仅 OD 260/280 和 OD 260/230 比值在 1.8–2.1 范围内的样本用于逆转录。引物序列见补充文件 1。逆转录体系包含 500 ng 总 RNA、2 µL 逆转录缓冲液、1 µL dNTP 混合物、0.5 µL 逆转录酶、1 µL miRNA 特异性茎环引物或 mRNA 的 oligo(dT) 引物,以及无 RNase 水补足至 20 µL 总体积。qRT-PCR 扩增体系(总体积 20 µL)包含 10 µL SYBR Green qPCR 主混合液、0.4 µL 正向引物(10 µM)、0.4 µL 反向引物(10 µM)、2 µL 稀释的 cDNA 模板,以及 7.2 µL 无 RNase 水。
使用逆转录试剂盒对 CADM1 和 GAPDH 的信使RNA进行逆转录,而miR-21-5p则使用茎环引物进行逆转录,并以外源性cel-miR-39作为加标内参对照。外源性cel-miR-39加标物在总RNA提取完成后立即加入各RNA样本中,且在逆转录反应之前加入。作为一种在人类转录本中无同源序列的人工合成的 C. elegans 微小RNA,cel-miR-39可用于校正因不同临床组织样本间RNA提取效率差异、RNA降解损失以及逆转录效率变化所导致的偏差,从而作为miRNA定量分析的外源性通用归一化对照。采用基于荧光DNA结合染料的预混液在实时荧光定量PCR系统上进行qRT-PCR扩增(见材料表):95 °C预变性3 min,随后进行40个循环(95 °C变性10 s,60 °C退火30 s,72 °C延伸20 s),并进行熔解曲线分析以确认扩增特异性。每个样本设置三个生物学重复,每个生物学重复包含三个技术重复,相对表达量采用2⁻ΔΔCt法计算。用于CRP、TNF-α和IL-6 mRNA扩增的完整引物序列详见补充文件1,其中同时提供了CADM1、GAPDH及miR-21-5p的引物序列。
建立慢病毒介导的稳定 miR-21-5p 表达
将商业化的慢病毒载体 LV-miR-21-5p 和空载对照 LV-NC 在 293T 细胞中进行包装。将 miR-21-5p 前体序列插入携带嘌呤霉素抗性基因和 GFP 报告基因的慢病毒骨架中。转染后 48 小时和 72 小时收集慢病毒上清液,浓缩并纯化后用于细胞感染。
感染前24小时,将A549和H1299细胞接种至培养皿中,使其融合度达到50–60%。以MOI = 10(A549)和MOI = 15(H1299)进行感染,并加入5 µg/mL的polybrene以提高转染效率。感染后24小时更换培养基,继续培养48小时,随后进行嘌呤霉素筛选。
稳定细胞筛选使用 5 µg/mL 嘌呤霉素处理连续10天;未感染的空白细胞用于验证在7天内完全清除未转导细胞。分离单个GFP阳性克隆并扩增,以建立稳定的单克隆细胞系LV-21和LV-NC。
对于 CADM1 功能挽救实验,制备了商用的 LV-CADM1 过表达和 sh-CADM1 沉默慢病毒。设立四个实验组:LV-NC 组、LV-miR-21-5p 组、LV-CADM1 组以及 LV-miR-21-5p + LV-CADM1 挽救组。CADM1 慢病毒以与 miR-21-5p 载体相同的 MOI 值和嘌呤霉素筛选条件进行感染。所有挽救实验中的增殖和迁移实验均独立重复三次生物学重复。
验证稳定过表达 miR-21-5p
从收获的 LV-21 和 LV-NC 稳定细胞克隆中提取总 RNA。采用 cel-miR-39 作为外源性参照,通过 qRT-PCR 检测 hsa-miR-21-5p 的相对表达水平。选择 miR-21-5p 表达水平较 LV-NC 组上调超过 8 倍的细胞克隆用于后续所有功能实验,从而证实 miR-21-5p 稳定过表达细胞系构建成功。
双荧光素酶报告基因检测
构建了包含预测的 miR-21-5p 结合序列的野生型 CADM1 3'-UTR 报告基因质粒(WT-CADM1)以及结合种子区域发生突变的突变型 CADM1 3'-UTR 报告基因质粒(MUT-CADM1)。转染前 24 小时,将 A549 细胞接种至 24 孔板中,使其贴壁融合度达到 60%–70%。每孔共转染 500 ng WT/MUT 报告基因质粒、50 nM miR-21-5p 模拟物(mimic)或模拟物阴性对照(mimic-NC),以及固定质量比的海肾荧光素酶内部参照质粒。转染后培养 48 小时,充分裂解细胞,使用双荧光素酶检测试剂盒依次检测萤火虫荧光素酶和海肾荧光素酶的发光信号。相对荧光素酶活性以萤火虫发光值与海肾发光值的比值计算。每个实验组包含三个独立的生物学重复,每个生物学重复设三个技术重复,采用两组独立样本 t 检验对 mimic-NC 组与 miR-21-5p 模拟物组之间的相对荧光素酶活性进行统计学比较。
Transwell 迁移实验
在 Transwell 迁移实验中,将稳定转染的细胞悬浮于无血清培养基中,并以每孔 4 × 10⁴ 个细胞的密度接种至上室的插入式小室中。下室中加入含 10% FBS 的完全培养基,以建立趋化梯度。在 37 °C、含 5% CO₂ 的湿润环境中孵育 48 小时后,轻轻去除膜上表面未迁移的细胞。对迁移至膜下表面的细胞用甲醇固定,并用结晶紫染色。每小室随机选取五个显微镜视野,通过计数细胞数量来定量迁移细胞数。每个实验均进行三次独立的生物学重复,每次生物学重复包含三个技术重复。
统计分析
全部 体外 实验均至少进行三次独立的生物学重复,每次生物学重复均设有相应的技术重复。首先采用Shapiro-Wilk正态性检验评估数据分布,以指导后续统计分析。对于肿瘤组织与相邻正常组织之间的配对比较,根据数据分布情况,采用配对t检验或配对Wilcoxon符号秩检验。两个独立组间的比较则采用独立样本t检验或Mann-Whitney U检验。对于包含挽救实验在内的多个组间差异,采用单因素方差分析(ANOVA)并结合Bonferroni事后校正;而对于CCK-8增殖实验和划痕愈合实验等纵向数据集,则采用重复测量方差分析(repeated-measures ANOVA)进行分析。分类临床变量之间的关联性则采用 χ2 检测,以及miR-21-5p与 CADM1 通过 Pearson 相关性分析评估表达水平。采用 Kaplan-Meier 曲线分析患者生存情况,并通过 log-rank 检验进行组间比较。通过单因素和多因素 Cox 比例风险回归分析确定独立预后因素。统计学显著性定义为 P < 0.05。 < 0.05。多变量Cox回归根据年龄、性别、组织学类型、miR-21-5p水平和淋巴结状态进行校正(参照:年龄 ≤ 60岁、女性、鳞状细胞癌、低miR-21-5p、淋巴结阴性);通过Schoenfeld残差检验比例风险假设,单变量P值 < 0.05的变量纳入多变量分析 < 0.10 通过输入选择被纳入。
结果
miR-21-5p 表达水平与非小细胞肺癌患者临床病理特征的相关性
根据 miR-21-5p 表达水平的中位值,将 157 例非小细胞肺癌肿瘤样本分为低表达组(n = 61)和高表达组(n = 96)。卡方检验结果显示,miR-21-5p 表达水平与患者年龄(χ2 = 1.36,P = 0.2435)、性别(χ2 = 1.06,P = 0.3032)、组织学类型(χ2 = 1.09,P = 0.2965)或肿瘤大小(χ2 = 5.623,P = 0.0601)均无显著相关性;而 miR-21-5p 高表达与更晚期的肿瘤分级(χ2 = 16.25,P = 0.00006)、淋巴结转移阳性(χ2 = 12.17,P = 0.00049)以及更高的 T 分期(χ2 = 4.30,P = 0.117)显著相关,提示 miR-21-5p 可能发挥促癌作用,促进非小细胞肺癌的进展(表 1)。
非小细胞肺癌独立预后因素的多变量Cox比例风险回归分析
纳入年龄、性别、组织学类型、miR-21-5p表达水平和淋巴结转移的多变量Cox回归分析显示,miR-21-5p高表达(风险比[HR] = 3.066;95%置信区间[CI]:1.412–6.659;P = 0.005)和淋巴结转移阳性(HR = 22.295;95% CI:3.039–163.588;P = 0.002)是非小细胞肺癌患者总生存率差的独立不良预后危险因素,而患者年龄、性别和组织学亚型均无显著的独立预后影响(均P > 0.05)(表2)。
miR-21-5p的临床表达特征及其与CADM1和炎症因子的相关性
对配对的非小细胞肺癌肿瘤组织及癌旁正常组织进行qRT-PCR检测,结果显示,与正常对照组相比,癌组织中miR-21-5p的相对表达水平显著升高(图1A,P < 0.001)。Kaplan-Meier生存曲线显示,miR-21-5p高表达患者的总体生存率显著低于低表达患者(图1B,P = 0.0027)。非小细胞肺癌标本中炎症介质C反应蛋白(CRP)、肿瘤坏死因子α(TNF-α)和白细胞介素-6(IL-6)的mRNA丰度均显著上调(图1C,P < 0.01,P < 0.001)。Pearson相关性分析显示,在临床样本中,miR-21-5p与CADM1 mRNA表达之间存在极显著的负相关关系(r = -0.7773,95% CI:-0.8325 至 -0.7076,P < 0.0001,图1D)。
miR-21-5p 在非小细胞肺癌细胞中的细胞功能验证
qRT-PCR 确认了 miR-21-5p 模拟物在 A549 和 H1299 细胞中转染效率成功(图 2A)。Transwell 实验显示,miR-21-5p 过表达显著增加了两种细胞系的相对迁移能力和细胞迁移数量(图 2B、C)。对炎症因子的 qRT-PCR 检测表明,转染 miR-21-5p 模拟物后,CRP、TNF-α 和 IL-6 的 mRNA 水平显著升高,而使用 miR-21-5p 抑制剂则逆转了该上调效应(图 2D)。挽救实验验证显示,miR-21-5p 模拟物显著抑制 CADM1 的转录,而与 LV-CADM1 共转染则完全恢复了 A549 和 H1299 细胞中 CADM1 的 mRNA 表达水平(图 2E、F)。综上所述,这些细胞实验数据表明,miR-21-5p 通过抑制 CADM1 促进非小细胞肺癌细胞的迁移及炎症反应。
miR-21-5p 对 NSCLC 细胞增殖的影响
在 24 h、48 h 和 72 h 的 CCK-8 增殖曲线显示,miR-21-5p 模拟物转染显著提高了 A549 和 H1299 细胞在 450 nm 处的吸光度(OD)值,而 miR-21-5p 抑制剂则显著抑制了细胞活力,在 72 h 时观察到具有统计学意义的差异(图 3A、B;P < 0.001)。这些数据表明,miR-21-5p 对 NSCLC 细胞具有促进增殖的作用。
通过生物信息学预测和双荧光素酶报告基因实验验证 CADM1 为 miR-21-5p 的直接靶基因
联合使用三个在线 miRNA 靶基因预测数据库(miRWalk、StarBase、TargetScan)筛选 miR-21-5p 的下游候选基因,共获得 95 个重叠的靶基因(图 4A)。基因本体(GO)富集分析表明,这些候选基因主要富集于与细胞代谢、应激反应及转录调控相关的生物过程、细胞组分和分子功能(图 4B)。京都基因与基因组百科全书(KEGG)通路富集分析进一步显示,这些基因在肿瘤相关信号通路中显著富集,包括丝裂原活化蛋白激酶(MAPK)通路和 Ras 通路(图 4C)。双荧光素酶报告基因实验结果显示,miR-21-5p 模拟物显著抑制野生型 CADM1 3'-非翻译区(3'-UTR)报告基因的相对荧光素酶活性,而在突变型 CADM1 3'-UTR 报告基因组中未观察到抑制作用(图 4D,P < 0.01,ns:无显著性差异),证实了 miR-21-5p 与 CADM1 之间的直接结合。
通过挽救实验中抑制 CADM1 促进非小细胞肺癌恶性表型
qRT-PCR 验证了 miR-21-5p 模拟物和抑制剂在 A549 和 H1299 细胞中的转染效率(图 5A)。过表达 CADM1(LV-CADM1)可降低促炎因子 CRP、TNF-α 和 IL-6 的 mRNA 水平,而使用小干扰 RNA(si-CADM1)敲低 CADM1 则显著上调这些因子的表达(图 5B)。Transwell 迁移实验显示,转染 LV-CADM1 显著抑制了两种非小细胞肺癌细胞系的迁移能力(图 5C、D)。CCK-8 增殖检测进一步表明,LV-21 介导的促增殖效应可被 LV-CADM1 共转染完全抵消,而 si-CADM1 诱导的细胞生长加速则可通过 miR-21-5p 抑制剂得到挽救(图 5E、F)。综上所述,这些挽救实验数据证实 CADM1 作为功能性下游介质,介导了 miR-21-5p 所触发的非小细胞肺癌细胞增殖、迁移及炎症活化。
数据可用性:
支持本研究结果的源数据见补充文件2,并随已发表的文章一同提供。
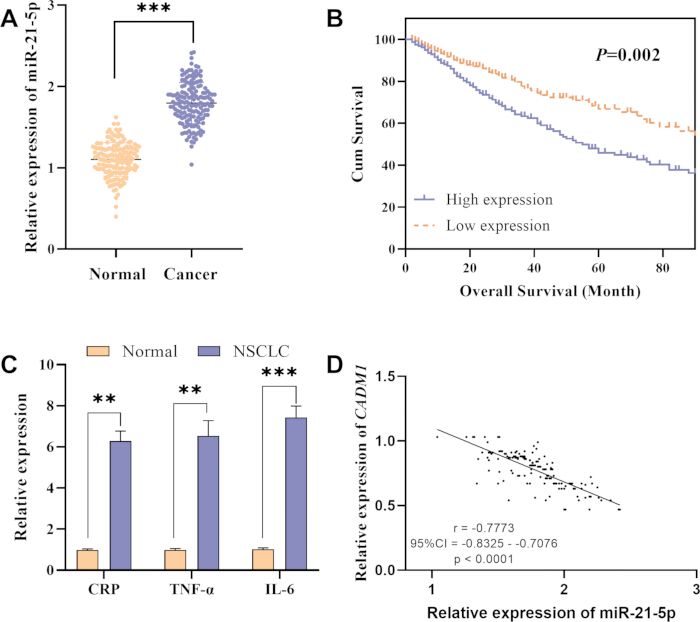
图1miR-21-5p、炎症因子的表达谱及其相关性 CADM1 在临床NSCLC样本中。 (A正常肺组织与非小细胞肺癌肿瘤组织中miR-21-5p的相对表达水平。B) 基于miR-21-5p表达水平分层的非小细胞肺癌患者总生存期的Kaplan-Meier生存曲线。C炎症因子的相对mRNA表达水平 CRP, TNF-α,以及 IL-6 在正常组织和非小细胞肺癌组织中。 (DPearson 相关性散点图显示 miR-21-5p 与 CADM1 mRNA 表达。**P < 0.01,***P < 0.001。用于面板 C:分别对CRP、TNF-α和IL-6在配对的肿瘤组织与相邻正常组织之间进行统计学比较;**P < 0.01,***P < 0.001 表示与配对的正常肺组织相比具有显著差异。所有图示均包含不少于3次独立的生物学重复;qRT-PCR 数据以均值 ± 标准差表示;配对 t采用 t 检验进行组间比较;散点图相关性分析使用 Pearson 检验。缩写: CADM1 = 细胞黏附分子1;CI = 置信区间;CRP = C反应蛋白;IL-6 = 白细胞介素-6;NSCLC = 非小细胞肺癌;TNF-α = 肿瘤坏死因子α 请点击此处以查看此图的放大版本。
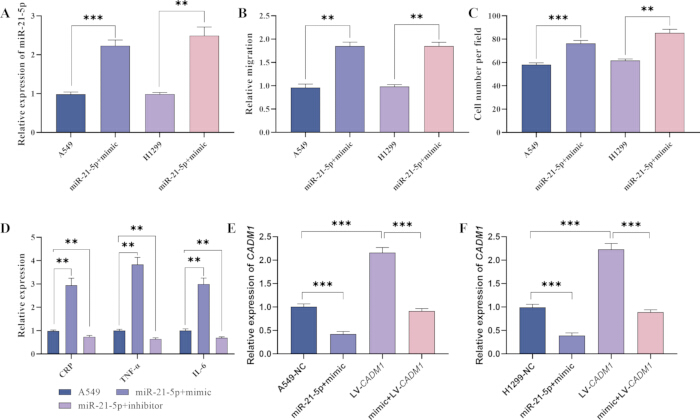
图2:miR-21-5p在A549和H1299非小细胞肺癌细胞中调控的细胞表型及CADM1表达。(A)转染mimic后miR-21-5p表达的qRT-PCR检测结果。(B)Transwell实验中相对细胞迁移的统计量化结果。(C)每显微视野迁移细胞数量的定量分析。(D)miR-21-5p过表达或抑制条件下CRP、TNF-α和IL-6的相对mRNA表达水平。(E)A549挽救实验组中CADM1的相对mRNA表达(NC、miR-21-5p mimic、LV-CADM1、mimic+LV-CADM1)。(F)H1299挽救实验组中CADM1的相对mRNA表达。**P < 0.01,***P < 0.001。所有细胞实验均独立重复三次生物学重复,每次包含三次技术重复;误差棒表示均值±标准差(SD);组间比较采用单因素方差分析(one-way ANOVA)并进行Bonferroni校正;各组标签严格对应方法部分描述的转染分组。缩写:CADM1 = 细胞黏附分子1;CRP = C反应蛋白;IL-6 = 白细胞介素-6;LV = 慢病毒载体;NC = 阴性对照;NSCLC = 非小细胞肺癌;qRT-PCR = 定量逆转录PCR;TNF-α = 肿瘤坏死因子α。请点击此处查看该图的放大版本。
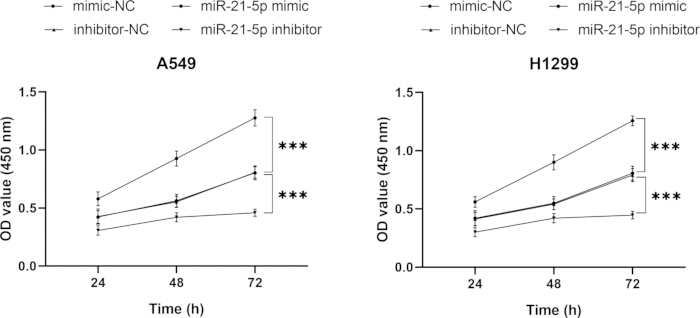
图 3:CCK-8 增殖曲线反映 miR-21-5p 过表达或敲低后的细胞活力。(A)转染 mimic-NC、miR-21-5p mimic、inhibitor-NC 或 miR-21-5p inhibitor 的 A549 细胞的 OD₄₅₀ 随时间变化的吸光度曲线。(B)四个转染组处理下的 H1299 细胞的 OD₄₅₀ 随时间变化的吸光度曲线。***P < 0.001。CCK-8 检测每组包含六个技术重复,共进行三次生物学重复实验;数据以均值 ± 标准差表示;采用重复测量方差分析进行时间点间的比较。缩写:CCK-8 = Cell Counting Kit-8;NC = 阴性对照;OD = 光密度。请点击此处查看该图的放大版本。
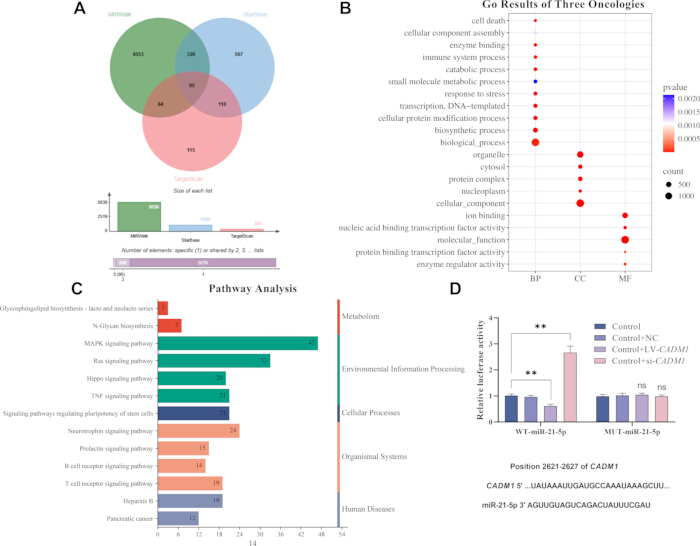
图4生物信息学筛选与miR-21-5p靶基因的双荧光素酶报告基因实验 CADM1. (A维恩图展示由miRWalk、StarBase和TargetScan预测数据库共同鉴定出的miR-21-5p靶基因。B) 交集靶基因的 GO 功能富集分析气泡图。CKEGG信号通路富集分析前几位的柱状图。D野生型与突变型双荧光素酶报告基因活性 CADM1 miR-21-5p 过表达后 3'-UTR 的变化。**P < 0.01;ns,无显著性差异。图 D 仅采用野生型(WT)CADM1 3'-非翻译区和MUT-CADM1 3'-UTR 与 miR-21-5p 模拟物/mimic-NC 共转染用于双荧光素酶检测;原始绘图草稿中标注的 Control/overexpression/interference 已在最终图示中调整为标准的 WT/MUT 分组。靶点预测分析采用三个在线数据库;富集 P 值通过 Benjamini-Hochberg FDR 校正;双荧光素酶实验设置三个生物学重复(每个生物学重复包含三个技术重复);误差线表示均值 ± 标准差;两组间比较 t- 用于统计比较的检验。缩写: CADM1 = 细胞黏附分子1;GO = 基因本体;KEGG = 京都基因与基因组百科全书;MUT = 突变体;NC = 阴性对照;ns = 无显著性差异;UTR = 非翻译区;WT = 野生型 请点击此处以查看此图的放大版本。
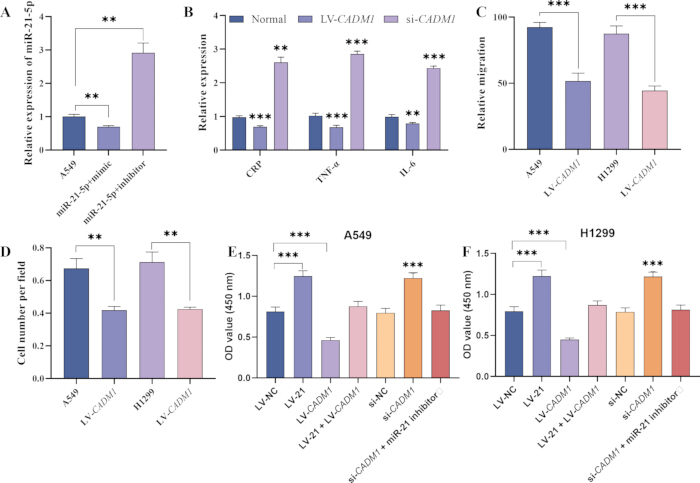
图 5:在 A549 和 H1299 细胞中验证 miR-21-5p/CADM1 调控轴的功能回复实验。(A)转染 miR-21-5p 模拟物或抑制剂后 miR-21-5p 的相对表达水平。(B)LV-CADM1 和 si-CADM1 组中 CRP、TNF-α 和 IL-6 的相对 mRNA 表达水平。(C)CADM1 过表达条件下细胞迁移能力的统计定量分析。(D)LV-CADM1 组每显微视野迁移细胞数量的定量分析。(E)A549 功能回复组的 CCK-8 OD₄₅₀ 值(LV-NC、LV-21、LV-CADM1、LV-21+LV-CADM1、si-NC、si-CADM1、si-CADM1+miR-21 抑制剂)。(F)H1299 功能回复组在相同转染处理下的 CCK-8 OD₄₅₀ 值。**P < 0.01,***P < 0.001。所有功能回复实验均包含三次独立的生物学重复;误差线表示均值 ± 标准差,多组比较采用单因素方差分析结合 Bonferroni 事后检验。缩写:CADM1 = 细胞黏附分子 1;CRP = C-反应蛋白;IL-6 = 白细胞介素-6;LV = 慢病毒载体;NC = 阴性对照;OD = 光密度;qRT-PCR = 定量反转录 PCR;si = 小干扰 RNA;TNF-α = 肿瘤坏死因子 α。请点击此处查看该图的放大版本。
| miR-21-5p 表达 | 总计 | x2 | P 值 | |||
| 低 | 高 | |||||
| 年龄(岁) | ≤60 | 24 | 29 | 53 | 1.357 | 0.244 |
| ˃60 | 37 | 67 | 104 | |||
| 总计 | 61 | 96 | 157 | |||
| 性别 | 男性 | 42 | 73 | 115 | 1.06 | 0.3032 |
| 女性 | 19 | 23 | 42 | |||
| 总计 | 61 | 96 | 157 | |||
| 组织学类型 | 鳞状细胞癌 | 31 | 41 | 72 | 1.09 | 0.2965 |
| 腺癌 | 30 | 55 | 85 | |||
| 总计 | 61 | 96 | 157 | |||
| 肿瘤分级 | Ⅰ-Ⅱ | 55 | 58 | 113 | 16.25 | 0.00006 |
| Ⅲ | 6 | 38 | 44 | |||
| 总计 | 61 | 96 | 157 | |||
| 淋巴结转移 | 阴性 | 41 | 37 | 78 | 12.17 | 0.00049 |
| 阳性 | 20 | 59 | 79 | |||
| 总计 | 61 | 96 | 157 | |||
| 肿瘤大小(cm) | ≤3 | 20 | 23 | 43 | 5.623 | 0.0601 |
| 3-7 | 40 | 62 | 102 | |||
| ˃7 | 1 | 11 | 12 | |||
| 总计 | 61 | 96 | 157 | |||
| T 分期 | T1 | 15 | 17 | 32 | 4.295 | 0.117 |
| T2 | 36 | 52 | 88 | |||
| T3 | 10 | 27 | 37 | |||
| 总计 | 61 | 96 | 157 | |||
表1:非小细胞肺癌患者中miR-21-5p表达水平与临床病理特征的关联性。 数值以患者例数表示。采用χ2检验评估关联性。缩写:NSCLC = 非小细胞肺癌。各项χ2检验均针对分类的临床病理变量进行,所有分析均纳入全部157例患者样本。
| n | P 值 | 相对风险 | 95% 置信区间 | |||
| 下限 | 上限 | |||||
| 年龄(岁) | ≤60 | 53 | 0.503 | 1.282 | 0.62 | 2.652 |
| ˃60 | 104 | |||||
| 性别 | 男性 | 115 | 0.339 | 1.418 | 0.693 | 2.901 |
| 女性 | 42 | |||||
| 组织学类型 | 鳞状细胞癌 | 72 | 0.515 | 1.261 | 0.627 | 2.537 |
| 腺癌 | 85 | |||||
| miR-21-5p 表达 | 高 | 96 | 0.005 | 3.066 | 1.412 | 6.659 |
| 低 | 61 | |||||
| 淋巴结转移 | 阴性 | 78 | 0.002 | 22.295 | 3.039 | 163.588 |
| 阳性 | 79 | |||||
表2:非小细胞肺癌患者总生存期的多变量Cox比例风险分析。数值以风险比及其95%置信区间表示。缩写:CI = 置信区间;NSCLC = 非小细胞肺癌。对完整的临床队列数据进行多变量Cox回归分析,计算独立预后筛查的风险比(HR)及95%置信区间(CI)。
补充文件1:转染和定量反转录PCR所用的寡核苷酸及引物序列。 该文件列出了miR-21-5p模拟物及其抑制剂、相应的阴性对照,以及用于CADM1、GAPDH、hsa-miR-21-5p和cel-miR-39的引物。所有序列均以5′–3′方向展示。缩写:CADM1 = 细胞黏附分子1;cel = Caenorhabditis elegans;GAPDH = 甘油醛-3-磷酸脱氢酶;hsa = Homo sapiens;miR = 微小RNA;PCR = 聚合酶链式反应。请点击此处下载该文件。
补充文件 2. 支持图表的源数据。 本文件包含用于生成论文中图表的基础数据集和统计分析结果,包括临床特征、表达分析、生存数据及相关统计结果。这些源数据支持正文中报告的研究结果。请点击此处下载该文件。
讨论
本研究系统证实了非小细胞肺癌临床组织中miR-21-5p表达升高,且其表达水平与炎症因子转录增强、细胞迁移和增殖能力增强相关;双荧光素酶报告、qRT-PCR及挽救实验鉴定CADM1为其直接功能靶点,生物信息学预测进一步表明miR-21-5p的下游靶基因富集于MAPK和Ras致癌信号级联通路,为miR-21-5p/CADM1轴可能参与肿瘤恶性进展相关信号通路提供了初步证据。
临床队列分析显示,miR-21-5p 高表达与肿瘤高级别、淋巴结转移以及较短的总生存期密切相关。多变量Cox回归分析证实miR-21-5p是一个独立的不良预后因素,提示miR-21-5p可能作为评估非小细胞肺癌(NSCLC)患者疾病进展风险和生存结局的潜在生物标志物。
体外功能实验表明,miR-21-5p 的过表达促进了非小细胞肺癌(NSCLC)细胞的增殖、迁移及炎症反应,而 CADM1 的上调则逆转了所有这些致癌表型;患者样本中 miR-21-5p 与 CADM1 呈负相关表达关系,结合细胞挽救实验数据,充分阐明了 miR-21-5p 通过直接抑制 CADM1 来驱动 NSCLC 恶性行为的调控机制。
与先前报道 miR-21-5p 在肺癌中的促癌作用一致,本研究进一步补充了完整的临床相关性数据和系统的挽救验证实验,从而巩固其促进肿瘤的功能;与现有研究仅关注单一转移表型不同,本研究通过 CADM1 靶点将 miR-21-5p 同时与细胞增殖及肿瘤炎性微环境联系起来,拓展了 miR-21-5p 在非小细胞肺癌(NSCLC)中的调控网络。
基于上述初步证据,组织中miR-21-5p表达的检测在NSCLC风险分层和预后评估中具有潜在的辅助价值,且miR-21-5p/CADM1轴可能为开发针对NSCLC进展干预策略提供新的候选分子靶点,但其临床治疗效果仍有待验证。
本研究存在若干局限性。它采用了 体外 细胞实验和一项单一的回顾性临床队列,无 体内 异种移植或独立外部队列验证。未进行其他增殖实验(如EdU和集落形成实验)、侵袭、凋亡及细胞周期检测。未开展外周血检测以评估无创诊断潜力, CADM1 蛋白水平的验证、完全重叠的靶基因列表以及系统的蛋白质-蛋白质相互作用(PPI)网络分析也尚未获得。未来的研究应解决这些局限性,并进一步探讨miR-21-5p的上游调控因子及下游效应 CADM1 信号转导。
综上所述,本研究提供了初步证据,表明miR-21-5p作为一种致癌性微小RNA,可通过直接靶向CADM1促进非小细胞肺癌(NSCLC)的增殖、迁移和炎症反应,其高表达提示患者预后不良。
披露
作者无相关财务或非财务利益需要披露。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10% 中性缓冲福尔马林 | Fisher Scientific(Fisherbrand)™) | SF100-4(典型) | 组织固定剂;组织切片至 &厚度小于5 mm,室温固定14–26小时 |
| 24孔细胞培养板 | Corning | 3526 | 用于接种转染细胞及进行伤口愈合(划痕)实验的培养板 |
| A549细胞系 | ATCC(或上海资源中心) | CCL-185 | 人非小细胞肺癌(NSCLC)细胞系(腺癌) |
| CCK-8 检测试剂盒 | Dojindo | CK04 | 增殖检测 |
| 细胞培养基(未指明) | Gibco(Thermo Fisher Scientific) | 多种(例如,RPMI-1640: 11875093,F-12K: 21127022) | NSCLC细胞系的基础培养基;确切组分取决于所用的细胞系 |
| cel-miR-39(外源性内参对照) | GenePharma(中国上海) | 定制(例如,B010302) | RNA分离过程中用于miRNA表达标准化的外参 |
| CO2 恒温培养箱(带加湿) | 赛默飞世尔科技(Heracell) | Heracell 150i (50116047) | 提供 37°C,5% CO2,以及细胞培养所需的饱和湿度 |
| CRP/TNF-α/IL-6 引物对 | Sangon Biotech | 定制合成 | 补充文件1中的完整序列 |
| 结晶紫染色液 | Solarbio | G1062 | 迁移细胞染色 |
| DMEM 培养基 | Gibco | 11965092 | 用于 H1299/293T 培养 |
| 双荧光素酶报告基因检测试剂盒 | Promega | E1910 | WT/MUT CADM1 3'UTR 检测 |
| 外源性 cel-miR-39 | Qiagen | 自定义外参对照 | RNA 提取后加入用于标准化 |
| 胎牛血清(FBS) | Gibco(Thermo Fisher Scientific) | 10437028 | 培养基中添加补充剂,终浓度为10%,以支持细胞生长 |
| 细口移液器吸头(例如, 10 µL 尖端 | Axygen(Corning) | T-300 | 用于手动刮取细胞单层以形成 "伤口" 间隙 |
| GAPDH(内源性对照) | 多家供应商(例如 Sangon Biotech、RiboBio;定制引物) | 自定义 | qRT-PCR中使用的mRNA标准化参照基因 |
| GO/KEGG(clusterProfiler 注释) | Bioconductor | 2026 构建 | |
| GraphPad Prism | GraphPad Software | v9.5.1 | 绘图 & 体外统计学 |
| H1299 细胞系 | 美国典型培养物保藏中心(或上海资源中心) | CRL-5803 | 源自淋巴结转移的人类非小细胞肺癌(NSCLC)细胞系 |
| 热灭活胎牛血清 | Gibco | 10099141 | 10% 工作浓度 |
| HEK-293T细胞系 | ATCC | CRL-3216 | RRID:CVCL_0063;每月进行STR检测,支原体检测为阴性 |
| 慢病毒包装混合物 | Genecopoeia(或Takara Bio) | HPK-LvT-100(Genecopoeia) | 提供用于慢病毒生产的包装质粒(gag/pol、rev、vsv-g) |
| 慢病毒-21 载体(LV-21) | GeneChem(中国上海)或 Genecopoeia | 自定义 | 用于构建稳定表达细胞系的含miR-21-5p的慢病毒载体 |
| 慢病毒-阴性对照载体(LV-NC) | 吉凯基因(上海,中国)或 GeneCopoeia | 自定义 | 不含 miR-21-5p 插入片段的阴性对照慢病毒载体 |
| 脂质转染试剂 | 赛默飞世尔科技 | L3000015 | 用于瞬时转染 |
| Lipofectamine 3000 转染试剂 | Invitrogen(Thermo Fisher Scientific) | L3000015 或 L3000008 | 基于脂质的转染试剂;转染后50小时进行后续实验 |
| 甲醇 | 国药集团 | 67-56-1 | 细胞固定 |
| 甲醇(固定剂/染色稀释液) | Sigma-Aldrich | 34860 | 用作结晶紫染色的固定剂或稀释液 |
| miR-21-5p 抑制剂/inhibitor-NC | GenePharma | 定制合成 | 补充文件1中的序列 |
| miR-21-5p 模拟物/mimic-NC | GenePharma | 定制合成 | 补充文件1中的序列 |
| miRDB | 华盛顿大学 | v6.0 | |
| miRWalk | 海德堡大学 | v3.0 | |
| 国家生物样本工程中心 | 中国国家生物样本库工程中心 | N/A | 提供肺癌组织样本的机构,附带记录的临床数据和组织病理学诊断 |
| 非小细胞肺癌组织(用于原代培养) | 上海瑞宝合生物科技有限公司 | 定制订单 | 组织来源;在含10% FBS的培养基中培养 37°C选择形态良好且处于对数生长期的细胞进行转染 |
| PCR仪 | Applied Biosystems(赛默飞世尔科技) | 7500 Fast (4406984) | 获取qRT-PCR扩增产物 |
| 青霉素-链霉素 | Solarbio | P1400 | 100 U/mL 青霉素, 100 μg/mL 链霉素 |
| 移液器(单通道) & 多通道 | Eppendorf | 研究增强系列 | 所有实验中精确的液体操作 |
| Polybrene | Sigma-Aldrich | H9268 | 最终 5 μg/mL 用于慢病毒感染 |
| 嘌呤霉素 | InvivoGen | ant-pr-1 | 5 μg/mL 用于稳定细胞筛选 |
| 嘌呤霉素二盐酸盐 | 赛默飞世尔科技(InvivoGen) | ant-pr-1(InvivoGen);P7255(Sigma-Aldrich) | 选择性抗生素,使用浓度为 5 μg/mL 建立稳定转染的细胞系 |
| R | R 基金会 | v4.2.1 | 包:clusterProfiler,ggplot2 |
| 逆转录试剂盒 | Takara | RR047 | miRNA 的茎环法反转录,mRNA 的寡核苷酸(dT)反转录 |
| 无RNase离心管 | Axygen(Corning) | MCT-150-C | 用于RNA储存与处理的1.5 mL无RNase离心管 |
| RPMI-1640 培养基 | Gibco | 11875093 | 用于 A549 培养 |
| si-CADM1 | GenePharma | 定制合成 | 补充文件1中的序列 |
| si-NC | GenePharma | 定制合成 | 补充文件1中的序列 |
| SPSS | IBM | v26.0 | 临床/Cox回归分析 |
| SYBR Green qPCR Master Mix | 罗氏 | 4913914001 | qRT-PCR 扩增 |
| TargetScan | 麻省理工学院 | v8.2 | |
| 总RNA提取试剂 | Takara | 9109 | 基于苯酚/胍的裂解 |
| Trans-well 小室 | 康宁(康斯特) | 3422(24孔, 8.0 µm) | 室温下在培养基中进行细胞转染;加入化学引物并孵育48 h |
| Transwell 迁移小室 | 康宁 | 3422 | 8 μm 孔径 |
| TRIzol试剂 | Invitrogen(Thermo Fisher Scientific) | 15596026 | 从组织样本中提取总RNA;通过OD260/280和OD260/230比值评估RNA质量 |
| 胰蛋白酶-EDTA(0.25%) | Gibco(Thermo Fisher Scientific) | 25200072 | 在将细胞接种至24孔板之前,从培养容器中分离细胞的方法 |
参考文献
- Bautista-Sánchez D, et al. The promising role of miR-21 as a cancer biomarker and its importance in RNA-based therapeutics. Mol Ther Nucleic Acids. 2020;20:409-20.
- Zhou J, et al. Global burden of lung cancer in 2022 and projections to 2050: incidence and mortality estimates from GLOBOCAN. Cancer Epidemiol. 2024;93:102693.
- Nicholson AG, et al. The 2021 WHO classification of lung tumors: impact of advances since 2015. J Thorac Oncol. 2022;17(3):362-87.
- The Lancet Regional Health – Europe. NSCLC: bridging the gap between clinical progress and real-world application. Lancet Reg Health Eur. 2024;38:100878.
- Reyes J, et al. Oncogenic and tumor-suppressive forces converge on a progenitor niche at the benign-to-malignant transition. Cell. 2026;189(10):2875-97.e53.
- Yu L, Yang R, Long Z, Tao Q, Liu B. Targeted therapy of non-small cell lung cancer: mechanisms and clinical trials. Front Oncol. 2024;14:1451230.
- O'Brien J, Hayder H, Zayed Y, Peng C. Overview of microRNA biogenesis, mechanisms of actions, and circulation. Front Endocrinol (Lausanne). 2018;9:402.
- Treiber T, Treiber N, Meister G. Regulation of microRNA biogenesis and its crosstalk with other cellular pathways. Nat Rev Mol Cell Biol. 2019;20(1):5-20.
- Ohno S, Kuroda M. Exosome-mediated targeted delivery of miRNAs. Methods Mol Biol. 2016;1448:261-70.
- Ell B, Kang Y. MicroRNAs as regulators of bone homeostasis and bone metastasis. Bonekey Rep. 2014;3:549.
- Dedeoğlu BG. High-throughput approaches for microRNA expression analysis. Methods Mol Biol. 2014;1107:91-103.
- Qu K, et al. Circulating miRNA-21-5p as a diagnostic biomarker for pancreatic cancer: evidence from comprehensive miRNA expression profiling analysis and clinical validation. Sci Rep. 2017;7(1):1692.
- Xu H, et al. Engineered exosomes transporting the lncRNA, SVIL-AS1, inhibit the progression of lung cancer via targeting miR-21-5p. Am J Cancer Res. 2024;14(7):3335-47.
- Chawra HS, et al. MicroRNA-21's role in PTEN suppression and PI3K/AKT activation: implications for cancer biology. Pathol Res Pract. 2024;254:155091.
- Huang Y, Feng G. MiR-423-5p aggravates lung adenocarcinoma via targeting CADM1. Thorac Cancer. 2021;12(2):210-7.
- Hartsough EJ, et al. CADM1 is a TWIST1-regulated suppressor of invasion and survival. Cell Death Dis. 2019;10(4):281.
- Li H, Gao J, Zhang S. Functional and clinical characteristics of cell adhesion molecule CADM1 in cancer. Front Cell Dev Biol. 2021;9:714298.