本方案描述了生成复合转基因斑马鱼的方法,以及对幼鱼和成鱼中与肿瘤相关的免疫细胞进行成像,并在肿瘤微环境中定量免疫细胞频率的技术。
方法文章
利用神经母细胞瘤斑马鱼模型对肿瘤微环境中免疫细胞的成像与定量分析
* These authors contributed equally
本文内容
摘要
摘要
肿瘤微环境(TME)中免疫细胞的募集是免疫调控和肿瘤进展的重要组成部分。在活体中研究免疫细胞与肿瘤细胞之间的时空关系,有助于揭示TME内的细胞相互作用。然而,利用传统成像和组织学方法在完整生物体中可视化并定量这些相互作用仍具挑战性。斑马鱼因其基因可操作性强、发育迅速,以及在早期发育阶段具有光学透明性,成为癌症研究的有力模型,可实现对荧光标记细胞的可视化观察 体内在此,我们介绍一种在神经母细胞瘤斑马鱼模型中生成、鉴定、成像并定量经不同荧光标记的免疫细胞与肿瘤细胞的实验方案。该方案包括复合转基因斑马鱼的繁育与筛选、幼鱼的活体成像、成年荷瘤鱼的制备与成像,以及对肿瘤区域周围和内部免疫细胞的定量分析。利用转基因报告基因品系,可实现 CD4+ 免疫细胞和 MYCN驱动的神经母细胞瘤细胞可在不同发育阶段进行可视化和分析。该工作流程能够评估免疫细胞在幼鱼和成鱼中相对于肿瘤的定位情况,并可用于比较不同疾病阶段免疫细胞的丰度。本方案提供了一种可重复的方法,用于成像和定量肿瘤微环境(TME)中的免疫细胞。 体内 利用斑马鱼,可能有助于在其他癌症模型中开展免疫-肿瘤相互作用的研究。
引言
肿瘤微环境(TME)是由肿瘤细胞、免疫细胞、成纤维细胞和血管细胞组成的生态系统1。TME 在癌症进展、治疗反应以及抗肿瘤免疫中发挥着关键作用。在 TME 内,免疫细胞是调控肿瘤命运的关键因素,既可以参与抗肿瘤反应,也可诱导免疫抑制2。了解免疫细胞在 TME 中的募集、分布和功能,对于阐明肿瘤逃避免疫监视的机制至关重要。然而,研究 TME 的传统方法,如终点组织学、流式细胞术和单细胞测序,仅能提供静态的观察结果,且通常需要破坏组织结构,导致空间信息和细胞间相互作用的丢失3,4,5,6,7。此外,这些方法在可视化和定量分析 TME 中免疫细胞方面存在局限性,尤其是在肿瘤发育的早期阶段。
斑马鱼(Danio rerio)因其成本低、发育迅速、身体相对透明以及高度保守的遗传特性,成为癌症研究的有力模型8,9。这些优势提供了一个可重复且可扩展的实验系统,能够在短时间内实现大样本量和高效的显微镜筛选10。重要的是,斑马鱼与人类在免疫学方面具有显著的保守性,包括先天性和适应性免疫系统的关键组分,使得研究结果与人类疾病密切相关11。这些特性对于研究神经母细胞瘤等儿童癌症尤为有用8。因此,已开发出多种斑马鱼免疫报告品系和癌症模型11。综上所述,斑马鱼作为一种有价值的体内模型,可用于研究肿瘤细胞与免疫细胞之间的相互作用,有助于揭示免疫调控如何影响肿瘤的发生发展,特别是在早期阶段。
以往研究斑马鱼肿瘤微环境(TME)主要依赖于肿瘤异种移植模型,并结合终点成像技术来评估免疫细胞在肿瘤内的定位12,13,14,15,16,17。尽管这些方法提供了有价值的见解,但其局限性在于依赖二维成像,无法全面捕捉TME的三维结构以及肿瘤发育过程中肿瘤细胞与免疫细胞之间的空间关系14。此外,肿瘤异种移植模型涉及人工移植人类肿瘤细胞,可能无法完全模拟自然状态下的肿瘤发生过程18。这些模型通常为短期实验,难以全面反映肿瘤进展过程,或肿瘤发育期间肿瘤细胞与免疫细胞之间空间关系的动态变化14,19。进一步地,该方法对TME中免疫细胞行为的空间组织、发育背景及生理相关性的呈现也较为有限。近期,我们及其他研究者已应用复合转基因斑马鱼模型,其中肿瘤细胞和免疫细胞被不同荧光标记物特异性标记,以实现对与肿瘤相关免疫细胞的可视化观察20,21。这类复合转基因斑马鱼可支持在整个动物体及肿瘤发育过程中对TME进行研究,从而促进在活体(in vivo)条件下对肿瘤-免疫相互作用的深入探究。
本文介绍一种利用共聚焦显微镜研究斑马鱼神经母细胞瘤模型肿瘤微环境(TME)中免疫细胞的方法。该方法采用标记免疫细胞的斑马鱼报告品系,以及一种经基因工程改造、在多巴胺-β-羟化酶启动子(dβh)驱动下过表达人源MYCN癌基因的斑马鱼品系,从而诱导产生类似于人类疾病的神经母细胞瘤20。在此复合转基因斑马鱼模型中,肿瘤细胞和免疫细胞分别被EGFP和mCherry差异性地标记。dβh启动子在交感-肾上腺谱系细胞中具有活性,已在多种斑马鱼神经母细胞瘤模型中得到应用22,23,24,25。此外,我们还利用Cd4启动子驱动mCherry荧光以可视化CD4+细胞15。通过Z轴层扫采集的共聚焦成像技术,可在肿瘤发育的不同阶段以三维形式观察TME,从而评估完整组织内肿瘤细胞与免疫细胞之间的空间关系。该方法可实现对肿瘤发育各阶段中免疫细胞相对于肿瘤细胞的空间分布特征的分析。
方案
所有动物实验操作均经波士顿大学乔巴尼安分校机构动物护理与使用委员会批准。 & Avedisian 医学院根据 PROTO202100001 号方案。生成复合转基因斑马鱼、幼体成像、成体组织制备及图像分析的整体工作流程总结如下 图 1.
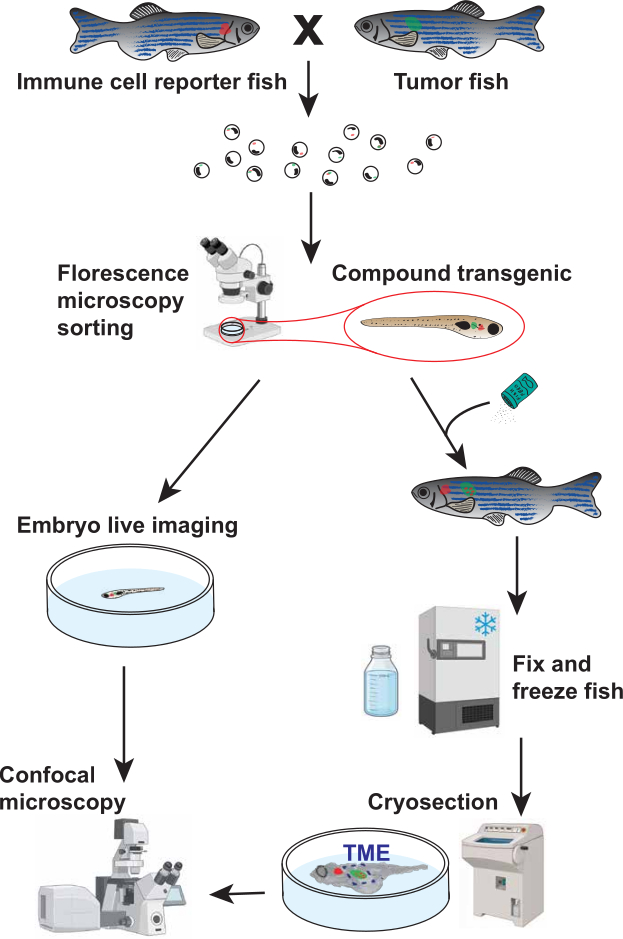
图 1斑马鱼肿瘤微环境(TME)内免疫细胞的可视化与定量分析工作流程。 实验流程示意图。将免疫报告基因斑马鱼与易患肿瘤的斑马鱼杂交,以产生在免疫细胞(红色)和肿瘤细胞(绿色)中均表达荧光标记的复合转基因后代。通过荧光显微镜筛选胚胎,以鉴定复合转基因鱼。选定的鱼在幼体发育期间进行活体共聚焦成像(<受精后21天(21 dpf)以内的斑马鱼可直接进行活体成像;超过21 dpf的个体则需经过固定、冷冻切片及共聚焦成像处理。该流程实现了对多个发育阶段肿瘤微环境(TME)相关免疫细胞的可视化观察与定量分析。本示意图部分内容使用BioRender绘制。 请点击此处查看此图的放大版本。
1. 通过繁育构建复合转基因斑马鱼品系
- 选择至少3月龄的成年免疫报告鱼和肿瘤鱼进行自然繁殖。
注意:关于代表性结果, Tg(cd4-1:mCherry) 杂合鱼与 Tg(dβh:MYCN; dβh:EGFP 杂合鱼以差异标记免疫细胞与肿瘤细胞15,23. - 在繁殖前夜,将双室交配缸用养鱼用水注至三分之二满。
- 将带格栅的顶部插入件放入交配室。使用分隔板将一只雄鼠与一只或两只雌鼠隔开。
- 将分隔板静置过夜。添加人造植物或其他丰容物品,以模拟自然繁殖条件。
注意:采用 1:2 的雄雌比例,可提高携带肿瘤的雄鱼与免疫报告鱼交配时成功产卵的概率。请勿将两条雄鱼与一条雌鱼共同交配,以免雄鱼之间发生竞争。 - 次日早晨,待设施照明开启后移除分隔板。
- 使用分隔板作为楔子,将带格栅的上层产卵室略微倾斜,以形成浅水区域。让鱼至少产卵1小时。
- 通过细网筛将水滤出,从交配室底部收集卵。
- 将鱼卵转移至无菌培养皿中,培养皿内盛有鱼用水,卵密度不超过每 50 毫米 1 枚。2 (每100毫米培养皿约200枚卵)。
- 清除死亡及未受精卵。
注意:健康的受精卵呈半透明圆形。请移除浑浊、发白、未受精或畸形的卵。 - 仔细检查鱼只,避免混入不同性别或造成转基因鱼缸交叉污染。
- 将雄性与雌性个体分别放回其各自的水族箱中。
- 将胚胎置于 28.5°C 培养箱中过夜培养。胚胎密度不得超过步骤 1.8 中规定的上限。
- 次日早晨对胚胎进行漂白处理以去除污染物。
- 配制工作用漂白剂溶液,浓度为 100 µ在 200 毫升系统用水中加入 1 升漂白剂。配制中和溶液,其组成为 0.5 克硫代硫酸钠溶于 150–200 mL 系统用水。
- 将存活的胚胎分选并转移至网状孔板插入件中。将插入件浸入漂白剂溶液中5分钟。
- 将插入片段直接转移至硫代硫酸钠溶液中。孵育2分钟以中和残留的漂白剂。
- 将胚胎在新鲜系统水的最终漂洗液中冲洗。使用洗瓶将胚胎轻柔地转移至装有新鲜系统水的洁净培养皿中。
- 漂白处理后,将胚胎放回培养箱。
- 在5龄期转移幼虫。–受精后第7天(7 dpf)或更晚,转移至含有5 ppt轮虫饲养水的大型养殖缸中进行培育。
- 制备5 ppt轮虫水:将1份轮虫储备水(15 ppt)与2份斑马鱼系统水混合。
- 在转移幼体前,使用电导率仪确认最终盐度为 5 ppt。
注意:在 3–5 日龄斑马鱼便于在饲养前识别易患肿瘤的个体。在此阶段分选 MYCN 胚胎可避免假阴性鉴定,因为神经嵴细胞中的 EGFP 表达可能在发育后期因 MYCN 诱导的细胞凋亡而减弱。
2. 筛选斑马鱼中的荧光标记物
- 使用系统水配制 0.4%(w/v)三卡因储备液。
- 将鱼转移至洁净的培养皿中,皿内仅加入足以覆盖底部的系统水。
- 加入三卡因储备液,使14日龄以下鱼类的最终浓度达到约0.005%(50 mg/L),14日龄以上鱼类达到约0.012%(120 mg/L)。通过观察鱼类基本无自主运动以确认麻醉充分。
- 待鱼麻醉至无法游动但仍可见鳃盖或心脏活动时,吸除培养皿中多余水分。
- 筛选鱼体荧光。在预期区域(例如,MYCN 鱼类的肾间腺区域)识别绿色或红色荧光。
- 使用硬毛分拣工具将鱼分组。
注意:应尽早分选易患肿瘤的斑马鱼,因为发育后期阶段 MYCN 诱导的细胞凋亡可能导致假阴性鉴定结果。对于幼鱼阶段成像或成鱼(2至4月龄)研究,应在成像前立即分选免疫报告基因斑马鱼。该方法可最大限度减少操作相关应激并提高存活率。 - 将阳性鱼与阴性鱼分别转移至含有系统水的独立水箱中,以继续进行饲养。
注意:步骤3描述的是对21日龄以下幼鱼的处理与成像操作。步骤4–6 描述老年鱼的固定、组织制备、成像及图像分析。
3. 幼虫活体装片与成像
- 将分选后的幼鱼置于含有三卡因鱼用水的 100 mm 培养皿中(适宜年龄浓度参见步骤 2.3)。
- 将麻醉后的幼虫转移至玻璃底成像皿中。
- 仅使用足以覆盖幼虫并维持镇静状态的溶液量。
- 制备 1%–1.5%低熔点琼脂糖(溶于鱼用水中)。加热琼脂糖溶液直至完全溶解。
- 使琼脂糖冷却1分钟。–2 分钟。将琼脂糖保持在 30°C。°使用加热块防止其在封片前凝固。
- 将每只幼虫侧向置于成像皿中。
- 施加约30–200 µ将琼脂糖溶液倾注于幼虫体表以固定之。幼虫体型较大时使用较多体积,体型较小时则使用较少体积。
- 琼脂糖凝固后,加入约100 µ在琼脂糖上方覆盖 0.005% 三卡因溶液。
- 使用共聚焦显微镜对幼虫进行成像。
- 使用配备共振扫描器的标准激光扫描共聚焦显微镜。使用 40× 数值孔径大于 1.10 的物镜。
- 将所有成像通道的针孔设置为 1.0 艾里单位 (AU)。
- 使用 488 nm 激光激发 EGFP,使用 594 nm 激光激发 mCherry。将激光输出功率保持在 25 mW 以下,以尽量减少光漂白和光毒性。使用范围指示查找表调整探测器增益和激光功率,以避免像素饱和和黑电平削波。探测器增益不得超过 800 V,因为更高的电压会引入过多噪声。
- 使用 0.42 的体素尺寸。 × 0.42 × 6.0 µm (x, y, z),分辨率为 1024 × 1024 像素,Z 轴步进间隔为 6.0 µm. 对目标完整体积进行连续光学切片采集,通常覆盖90层。–120 µ总成像深度为 m。使用在 16 位采集模式下运行的高灵敏度光电探测器。
- 以33.3 kHz(约1.58微秒/线)的共振扫描频率,采用单向线扫描方式采集图像。 µ像素驻留时间)。使用 2× 或 4× 通过平均处理来减少运动伪影,同时限制激光暴露。
注意:优化三卡因暴露时间以维持成像期间幼鱼的存活。成像结束后,向成像皿中添加鱼用水至约半满。
- 成像后立即向成像皿中加入新鲜鱼水。
- 使用硬毛刷轻轻将幼虫从琼脂糖中取出,并将其转移至盛有洁净养鱼水的培养皿中进行恢复。
- 待鱼恢复正常游动行为后,将其放回原饲养缸。
注意:对于超过21日龄的斑马鱼,必须通过冷冻切片去除覆盖肿瘤的皮肤,以实现高分辨率共聚焦成像。
4. 鱼类固定与冰冻切片
- 根据经批准的机构动物护理指南对鱼实施安乐死。
- 沿腹侧自肛门孔至肩带处切开切口,以暴露腹腔并促进固定液渗入内部组织。
- 使用镊子将鱼转移至一个装有4%多聚甲醛(PFA)磷酸盐缓冲盐水(PBS)溶液的1.5 mL离心管中,或转移至固定液体积至少为组织体积10倍的容器中。
注意:避免触碰肿瘤所在区域,以保持组织完整性。 - 将样品置于设置为轻柔连续振荡(30 rpm)的摇摆式摇床上,在 4°C 下孵育过夜至少 12 小时。°C.
**注意**:PFA 具有危险性、毒性,且可能致癌。请穿戴适当的个人防护装备,包括手套和护目镜。所有涉及 PFA 的操作均应在通风橱中进行,并避免吸入其蒸气。 - 移除 PFA,使用 1.5 mL 的 1× PBS 清洗样本至少四次。× PBS。每次洗涤过程中,将试管轻轻颠倒两到三次。
- 将鱼转移至用 PBS 配制的 30% 蔗糖溶液中。
- 将鱼置于冷房中孵育过夜,直至样本沉至直立管底部(约12小时),表明蔗糖已充分渗透。
- 用实验室纸巾轻轻吸去鱼体上多余的蔗糖溶液。
- 将鱼转移至储存管中。
- 将样品储存于 −80°直至成像前,置于 C 环境中。
注意:请在 3 个月内处理样品,以尽量减少荧光蛋白降解和信号损失。 - 将固定后的鱼体置于干冰上运送至冷冻切片机室。
- 将鱼体平放于塑料模具中,使其一个矢状面朝下。
- 添加最佳切割温度(OCT)化合物,直至完全覆盖斑马鱼。
- 将模具置于 −20°在 -20°C 或冷冻切片机中,直至 OCT 变白。
注意:冷冻前尽可能将鱼体摆放平整,以便获得厚度均匀的切片。 - 沿矢状面对斑马鱼进行冷冻切片以移除皮肤,便于后续整体成像。
- 冷却冷冻切片机样品台。
- 将室温 OCT 包埋剂涂布于样品托上。
- 将 OCT 鱼块牢固地按压入 OCT 层中。
- 冷冻样品夹和包埋块,直至新涂覆的 OCT 化合物变为白色。
- 将样品托安装至冷冻切片机中。
- 将组织块以14微米厚度进行冷冻切片。 µ直至刀片触及标本。
注意:标本在冷冻过程中可能发生位移,导致鱼在包埋块中的位置高于预期。当半透明组织取代不透明的 OCT 背景时,表明已进入标本。 - 将切片厚度减至7微米 µm.
- 继续切片,再切一刀。
注意:此操作步骤旨在移除皮肤,同时保持标本在矢状面上轮廓均匀。 - 通过识别所收集切片中的皮肤组织来确认终点。
注意:相较于眼部形态,切片中的皮肤外观是更可靠的判断指标。仅当皮肤组织遮挡肿瘤微环境成像时,才需执行此步骤。
- 用手轻轻温热卡盘。
- 使用镊子将 OCT 包埋块从卡盘上取下。注意避免扰动样本的切割面。
- 在 OCT 保持冷冻状态下,修整斑马鱼周围多余的 OCT。
- 待 OCT 软化至粘稠状时,用镊子将鱼从 OCT 包埋块中取出。
5. 去除皮肤后斑马鱼的封片与成像
- 将鱼置于玻璃底培养皿中,使其矢状切面朝向玻璃表面。
注意:在处理过程中,请始终保持斑马鱼的朝向。当斑马鱼从 OCT 包埋块中取出后,其被切片的一侧可能难以辨认。 - 制备 1%–1.5% 低熔点琼脂糖。
- 施加约30–50 µ将琼脂糖涂于鱼体背侧与腹侧以固定样本。
注意:避免将琼脂糖置于斑马鱼下方,因其可能降低成像质量。仅使用稳定所需的最少量琼脂糖。 - 样品运输过程中需置于冰上保存。样品固定后应在2小时内完成成像。
- 将样品运送至共聚焦显微镜设施。
- 使用共聚焦显微镜对样品进行成像。
- 使用配备共振扫描器的标准激光扫描共聚焦显微镜。当自发荧光影响图像质量时,可采用双光子显微镜。使用校正的20倍物镜。× 数值孔径不低于0.80的物镜。
- 将所有成像通道的针孔设置为 1.0 艾里单位 (AU)。
- 使用 488 nm 激光激发 EGFP,使用 594 nm 激光激发 mCherry。保持激光输出功率低于 25 mW。使用范围指示查找表(LUT)调整探测器增益和激光功率,以避免像素饱和和黑场剪切。探测器增益不得超过 800 V,因为更高电压会引入过多噪声。
- 按如下方式配置图像采集参数。
- 使用 0.42 的体素尺寸。 × 0.42 × 6.0 µm (x, y, z),分辨率为 1024 × 1024 像素,Z 轴步进间隔为 6.0 µm.
- 获取整个目标体积的光谱图像堆栈,通常涵盖总深度为90的Z轴堆栈采集范围。–120 µm (15–20 个光学切面)。
- 在组织表面正上方的液体空间启动图像采集,并持续进行直至达到目标成像深度,以确保样本的完整覆盖。
- 使用高灵敏度光电探测器在 16 位采集模式下获取图像。
- 以33.3 kHz共振扫描频率(约1.58微秒/线)进行单向线扫描采集图像。 µ像素驻留时间)为 8× 线平均。
6. 图像分析与定量
- 使用 Fiji(版本 1.54p)进行图像可视化。
- 打开共聚焦 Z 轴堆叠图像。
- 通过选择“图像”菜单合并颜色以查看通道叠加。 > 颜色 > 合并通道。
- 通过选择“图像”菜单生成包含成像区域的完整 z 轴范围投影。 > 堆叠 > Z 投影。输入感兴趣的切片范围以及最大强度投影类型。这将显示图像的二维投影。
注:对于幼鱼,可通过共聚焦显微镜捕获整个肿瘤微环境。因此,我们推荐采用体积归一化与定量方法进行肿瘤微环境分析。对于成鱼,无法通过共聚焦显微镜捕获整个肿瘤微环境;因此,我们推荐采用基于面积的归一化与定量方法。根据我们对幼鱼的分析与定量结果,两种方法均可提供可靠的生物学结果。
- 幼鱼肿瘤微环境的体积归一化与定量分析。
- 使用 MATLAB R2022b(从 Matlab 网站下载该软件包)和 Bio-Formats 软件包(从 openmicroscopy 网站下载)量化肿瘤体积。
- 用户运行一个执行以下任务的脚本:
- 提示用户从其计算机中选择一个 .CZI 文件。
- 读取图像并从包含肿瘤区域的通道中提取数据。
- 通过荧光阈值(可通过用户输入或机器学习实现)识别每张切片中的肿瘤区域,并对所有分析图像采用相同阈值以确保一致性。
- 勾勒肿瘤区域,并在所有切片的拼合图像中显示已勾勒的肿瘤区域,以供用户验证。
- 计算每层切片中肿瘤区域的面积(以像素为单位),并转换为毫米。2 利用图像的标尺和成像设置。
- 将肿瘤区域的面积乘以深度(该数值存储于文件中)’(元数据)以获取每个切片的体积。
- 将各切片的计算值相加,即可获得成像肿瘤及其周边区域在体素或毫米单位下的总体积。3.
- 将两个体积测量值均乘以10进行换算。4 用于肿瘤体积和106 对于周边区域而言。这将使标准化过程中的细胞数量与体积比例更为合理。
- 细胞计数。
- 打开共聚焦 z 轴堆叠图像。
- 通过选择“图像”菜单合并颜色以查看通道叠加。 > 颜色 > 合并通道。
- 通过选择“图像”菜单,生成包含成像区域完整z轴范围的3D视图。 > 堆叠 > 三维投影。选择最亮点作为投影方法,并将其他设置调整至所需数值。
- 由于细胞数量较少,需手动计数并列表统计,将位于肿瘤边界内的细胞与位于肿瘤边界外的细胞分开记录。
注意:位于肿瘤区域边界上的细胞应计为区域外细胞。
- 归一化。
- 对于肿瘤区域内的浸润细胞,将细胞数量除以经标定的肿瘤体积。对于肿瘤区域外的细胞,将肿瘤体积外的细胞数量除以经标定的完整图像体积减去肿瘤体积。
- 生成包含以下标题的表格: “鱼类鉴定”, “肿瘤体积”, “肿瘤区域内的细胞数量”, “# 肿瘤区域外的细胞数量”, “归一化细胞内部”, “归一化细胞外部”.
- 肿瘤微环境的区域标准化与定量分析。
- 使用矩形或手绘选择工具勾画肿瘤轮廓,以定义肿瘤感兴趣区域(ROI)。
- 通过按下相应按钮,将 ROI 添加至 ROI 管理器。 T 或通过选择 分析 > 工具 > ROI 管理器 > 添加.
- 使用 ImageJ 软件测量感兴趣区域(ROI)的面积。 分析 > 测量.
- 确认 面积 在……条件下被选中 设置测量 开始记录测量数据前。
- 将感兴趣区域保存至 ROI 管理器。
- 对所有图像应用相同的 ROI,使用 ROI 管理器 > 更多 > 多指标测量.
- 请勿在图像之间调整 ROI 的大小。
- 手动计数 ROI 内的细胞。若细胞数量较多,请通过选择 Cell Counter 插件进行计数。 插件 > 分析 > 细胞计数器。
- 当细胞质心位于 ROI 内时,通过左键点击标记每个已计数的细胞。
- 滚动浏览 z 轴堆栈以确认细胞身份。
- 避免在多个图像平面中重复计数同一细胞。
- 若细胞接触或位于肿瘤边界内,则单独计数浸润细胞。
- 即使细胞中心点位于 ROI 之外,仍应将浸润细胞记录为一个独立的类别。
- 将感兴趣区域面积从像素转换为毫米2.
- 获取像素宽度、像素高度及Z轴步进间隔信息。 图像 > 特性.
- 归一化细胞计数计算。
- 将每条鱼的原始细胞计数除以其对应的感兴趣区域面积值。
- 将所得数值记录为标准化细胞计数。
- 对于绝对密度测量,请使用从图像校准值中获取的物理面积进行计算。 图像 > 特性.
- 将原始细胞计数除以计算所得面积(mm²)。2).
- 记录结果,以细胞密度表示,单位为细胞/毫米。2.
结果
整体实验流程如图1所示。将成年Tg(cd4-1:mCherry)斑马鱼与Tg(dβh:MYCN;dβh:EGFP)斑马鱼杂交,以获得双转基因子代,其中CD4+细胞和表达dβh的细胞分别被mCherry和EGFP荧光蛋白差异标记。筛选具有适当荧光标记的胚胎,随后对幼体发育阶段的活体样本进行共聚焦成像分析,或对较大龄鱼体经固定和冷冻切片后进行共聚焦成像分析(图1)。
为了评估CD4+细胞在幼体发育期间与癌前神经母细胞瘤病变的关联,对复合转基因鱼在受精后7天和14天(dpf)进行了成像。选择这些时间点是基于斑马鱼淋巴细胞发育的阶段26,27。代表性共聚焦图像如图2A所示。在7 dpf时,无论是在对照组鱼还是表达MYCN的鱼中,CD4+细胞在dβh表达区域内部或周围均很少被观察到(图2A;补充视频1和2)。在14 dpf时,与对照组鱼的神经嵴来源的交感肾上腺前体区域相比,表达MYCN的鱼中与神经嵴来源的癌前肿瘤相关的CD4+细胞数量增加(图2A;补充视频3和4)。
为了校正肿瘤大小的差异以及共聚焦显微镜在幼鱼中完整捕获整个肿瘤的能力,我们比较了基于体积和基于面积的归一化方法。重要的是,在幼鱼中,基于体积和基于面积的归一化方法得出的结果具有可比性,这支持在成年鱼肿瘤无法通过共聚焦显微镜完整捕获时采用基于面积的归一化方法。定量分析显示,在两个时间点,各组之间在肿瘤周围CD4+细胞数量上均无显著差异(图2B,底部;对照组和MYCN组在7 dpf时n分别为4和6,在14 dpf时n分别为4和5)。相反,与对照组鱼相比,表达MYCN的鱼在14 dpf时分析区域内CD4+细胞的浸润程度显著更高(图2B,顶部;P < 0.05;对照组和MYCN组n分别为4和5)。数据以相对于肿瘤体积归一化的细胞计数(细胞/mm3)表示,并以均值±标准误(SEM)呈现。
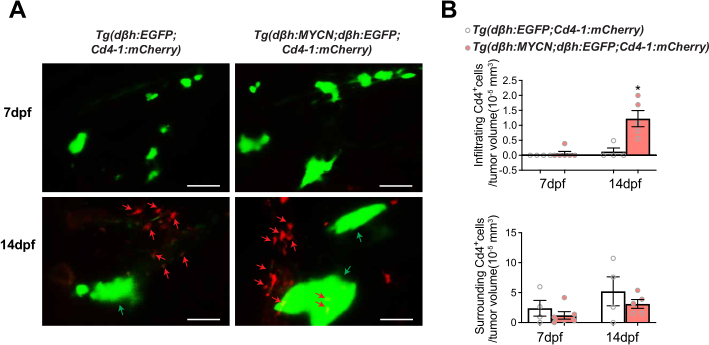
图2受精后14天,CD4+细胞与表达MYCN的神经母细胞瘤病灶的关联增加。 (A代表性共聚焦图像 Tg(dβh:EGFP;Cd4-1:mCherry 对照组鱼类和 Tg(dβh:MYCN;dβh:EGFP;Cd4-1:mCherry 受精后7天和14天的鱼类。EGFP阳性细胞(绿色)标记 dβh表达神经嵴来源/神经母细胞瘤细胞,以及CD4+ 细胞用 mCherry(红色)标记。箭头指示代表性 CD4+ 与神经嵴/肿瘤区域相关的细胞。比例尺 = 50 µm. (BCD4 定量分析+ 对照组和表达 MYCN 的斑马鱼在 7 和 14 天时神经嵴/肿瘤区域周围(底部)和浸润(顶部)的细胞。细胞计数已标准化为肿瘤体积(cells/mm3)。数据以均值表示 ± 扫描电镜。统计学比较采用非配对双尾检验进行。 t-测试。 P < 0.05。对照组和MYCN组在7 dpf时n分别为4和6,在14 dpf时n分别为4和5。数据代表三次独立实验的结果。 请点击此处查看此图的放大版本。
为了研究CD4+细胞与已形成肿瘤的关联,将经分选的复合转基因鱼饲养至成年,随后进行固定、冷冻切片和共聚焦成像分析(图1)。图中展示了4月龄鱼体内局部性和转移性神经母细胞瘤的代表性图像(图3A)。当在外周交感神经节以外检测到EGFP阳性肿瘤细胞时,该肿瘤被归类为转移性肿瘤。由于共聚焦显微镜无法捕获整个肿瘤体积,我们采用基于面积的定量方法进行分析。结果显示,与局部性肿瘤相比,转移性肿瘤周围或浸润其中的CD4+细胞数量显著增加(图3B;P < 0.05;每组n = 4)。数据以每单位肿瘤面积标准化后的细胞计数(细胞/mm2)表示,并以均值 ± 标准误(SEM)呈现。
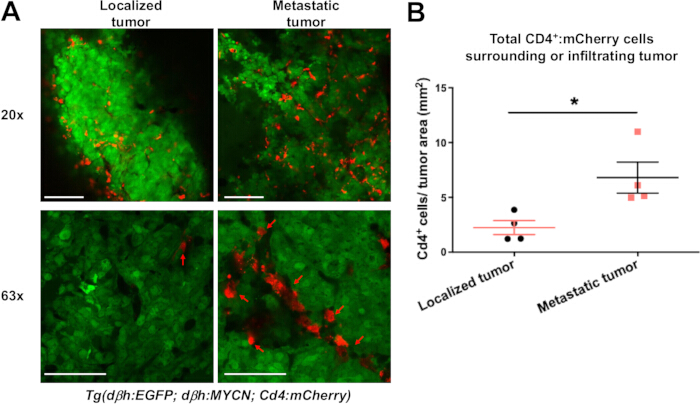
图3.转移性神经母细胞瘤的肿瘤微环境中CD4+细胞浸润增加。(A)4月龄同窝出生的Tg(dβh:MYCN;dβh:EGFP;Cd4-1:mCherry)斑马鱼中局部性和转移性神经母细胞瘤的代表性共聚焦图像。肿瘤细胞用EGFP标记(绿色),CD4+细胞用mCherry标记(红色)。箭头指示与肿瘤组织相关的典型CD4+细胞。使用20×和63×物镜获取的图像显示为独立的视野。比例尺 = 100 µm(20×)和50 µm(63×)。 (B)围绕或浸润局部性和转移性肿瘤的总CD4+细胞数量的定量分析。细胞计数已根据方案中所述方法归一化至肿瘤大小。数据以均值 ± 标准误表示。统计学比较采用非配对双尾t检验进行。P < 0.05。每组n = 4。数据代表三次独立实验的典型结果。请点击此处查看该图的放大版本。
这些发现表明,该方案可用于可视化和定量 CD4+ 斑马鱼肿瘤发育多个阶段中与神经母细胞瘤病灶相关的细胞。
补充视频1:受精后7天对照斑马鱼的代表性共聚焦z轴层扫图像。 对一条在受精后7天(dpf)的 Tg(dβh:EGFP;Cd4-1:mCherry) 对照斑马鱼进行三维共聚焦成像。EGFP阳性的神经嵴来源细胞显示为绿色,CD4+ 细胞显示为红色。在此发育阶段,dβh 表达区域内部或周围观察到的 CD4+ 细胞较少。 请点击此处下载该文件。
补充视频 2:表达 MYCN 的斑马鱼在受精后 7 天的代表性共聚焦 z 轴层扫图像。 对一只在受精后 7 天(dpf)的 Tg(dβh:MYCN;dβh:EGFP;Cd4-1:mCherry) 斑马鱼进行三维共聚焦成像。表达 MYCN 的 EGFP 阳性前恶性神经母细胞瘤细胞显示为绿色,CD4+ 细胞显示为红色。与对照组鱼类相似,在这一早期发育阶段,肿瘤区域内部或周围观察到的 CD4+ 细胞较少。 请点击此处下载该文件。
补充视频3:受精后14天对照斑马鱼的代表性共聚焦z轴层扫图像。 对一条在受精后14天(dpf)的 Tg(dβh:EGFP;Cd4-1:mCherry) 对照斑马鱼进行三维共聚焦成像。EGFP阳性的神经嵴来源细胞显示为绿色,CD4+ 细胞显示为红色。CD4+ 细胞分布稀疏,且与 dβh 表达区域的关联有限。 请点击此处下载该文件。
补充视频 4. 表达 MYCN 的斑马鱼在受精后 14 天的代表性共聚焦 z 轴层扫图像。 对一只在受精后 14 天(dpf)的 Tg(dβh:MYCN;dβh:EGFP;Cd4-1:mCherry) 斑马鱼进行三维共聚焦成像。表达 MYCN 的 EGFP 阳性前恶性神经母细胞瘤细胞显示为绿色,CD4+ 细胞显示为红色。与同龄对照组斑马鱼相比,在肿瘤区域增大的部位可观察到 CD4+ 细胞的积累增多并发生浸润,该结果与图 2B 中的定量分析一致。 请点击此处下载该文件。
讨论
本方案利用斑马鱼作为模型生物 体内 用于可视化和定量肿瘤微环境中免疫细胞的模型。成功实施该方法需考虑多个关键因素。首先,必须合理选择并验证复合转基因斑马鱼品系。应筛选幼鱼中预期的荧光表达模式,必要时通过基因分型加以确认。实验前需验证免疫报告基因和癌基因的表达,以确保实验组与对照组的准确分配。其次,在共聚焦成像过程中,准确定位目标区域至关重要。可利用明场成像识别解剖标志,辅助目标组织的定位。例如,在成像前体区域的肿瘤时,可利用眼睛作为定位参考。第三,斑马鱼的正确摆放位置对于充分暴露成像区域至关重要。摆放不当可能降低图像质量或遮蔽目标组织。最后,适当的固定与 immobilization 是减少活体成像过程中运动伪影的必要条件。应优化三卡因(Tricaine)浓度和成像时长,在保持幼鱼存活的同时确保图像质量。
在活体成像过程中,可通过降低激光强度和缩短曝光时间来最小化光毒性。对于成年样本,在操作和成像准备期间应将组织保持在冰上,因为反复冻融可能改变组织完整性。在冷冻切片及从OCT包埋剂中取出组织后,需特别注意小心处理样本。
解读成像结果时需考虑报告基因的特异性。多个免疫报告基因品系可标记多种免疫细胞群体。例如,除传统的T细胞外,CD4的表达也见于巨噬细胞等其他细胞群体28。此外,mpeg不仅在巨噬细胞中表达,在B细胞中也有检测到29。Lysc可同时标记中性粒细胞和巨噬细胞30。因此,仅凭荧光报告基因的表达可能不足以明确确定细胞身份。可结合其他验证方法,如RNAscope、流式细胞术、定量反转录聚合酶链式反应或单细胞RNA测序,以补充基于成像的观察结果,并对所标记的细胞群体进行更深入的分子表征。
该方法存在若干局限性。该方法依赖于荧光报告基因的表达,因此无法独立确认免疫细胞的身份或功能状态。此外,目前针对成年鱼的图像分析基于有限层数的投影共聚焦数据集,可能无法充分捕捉肿瘤微环境(TME)内复杂的三维细胞关系。最后,该方法还需要构建和维持复合转基因斑马鱼品系,这可能会限制部分实验室的可及性。
尽管存在这些局限性,该方案仍为可视化斑马鱼神经母细胞瘤病灶中相关免疫细胞提供了一种切实可行的方法。与传统的终点组织学相比,该方法能够保持组织结构的完整性,并实现对完整组织内荧光标记细胞的成像20,21。该工作流程可应用于多个发育阶段,并可适配于其他荧光报告基因品系。除神经母细胞瘤外,已有多个研究对黑色素瘤与免疫细胞(包括CD4+细胞、巨噬细胞和CD8+细胞)在肿瘤微环境(TME)中的相互作用进行了成像15,21,31,32。综上,这些特点使该方案成为研究斑马鱼肿瘤微环境中免疫细胞定位的一个有用平台。
披露
作者声明无竞争利益。
致谢
我们感谢美国国立卫生研究院(NIH;1UL1TR001430、CA215059 和 NS140967)、美国癌症协会(RSG-17-204-01-TBG)、美国国家科学基金会(1911253)以及 Alex’s Lemonade Stand 基金会对 H.F. 的资助;X.Q. 获得了 Warren Alpert 杰出学者奖学金的支持。Y.W. 受波士顿大学本科生研究机会计划(UROP)和 St. Baldrick’s 暑期奖学金计划资助。M.V. 受 St. Baldrick’s 暑期奖学金计划资助。本文内容仅由作者负责,不一定代表 NIH 的官方观点。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 200 µL 凝胶上样枪头 | MilliporeSigma | 1022-0600 | 用于幼体操作 |
| 人工水草 | The Hidden Reef | 62874200000000000 | 可选的繁殖环境 enrichment |
| 次氯酸钠溶液(漂白剂) | Fisher Scientific | 50371500 | 用于胚胎去污染 |
| 细胞计数插件 | 美国国立卫生研究院 (NIH) | N/A | 用于细胞定量的 Fiji 插件 |
| 计算机与显示器 | HP | 2TB68A8#ABA | 用于图像采集与分析 |
| 共聚焦显微镜 | Zeiss | LSM 710 | 用于幼体和成体成像 |
| 塑料冷冻模具 | Epredia | 22-050-160 | 用于 OCT 包埋 |
| 冷冻切片机 | Thermo Fisher Scientific | 95-664-0EC70 | 用于冷冻切片 |
| 干冰 | Fisher Scientific | N/A | 用于样品运输 |
| Fiji 软件 | 美国国立卫生研究院 (NIH) | Version 1.54p | 图像分析软件 |
| 细网筛网 | Carolina Biological | 651345 | 用于胚胎收集 |
| 鱼类培养箱 | VWR | 35960-056 | 维持在 28.5°C |
| 镊子 | Fisher Scientific | 10-316B | 用于样品操作 |
| 玻璃底培养皿 | IBIDI | 81218-200 | 用于成像 |
| 低熔点琼脂糖 | Prolab Supply | 9012-36-6 | 用于幼体和成体封片 |
| 交配缸(主缸、隔板、带格栅部分) | Carolina Biological | 161937 | 用于斑马鱼繁殖 |
| 旋转摇床 | Midsci | R2D-30 | 用于过夜孵育期间的固定 |
| OCT 包埋剂 | Tissue-Tek | 4583 | 冷冻切片的包埋介质 |
| 多聚甲醛(PFA) | Sigma Aldrich | 158127-500G | 固定剂 |
| 塑料培养皿 | MilliporeSigma | BR452000 | 用于胚胎和幼体操作 |
| 磷酸盐缓冲液(PBS) | Gibco | 14080-055 | 用于洗涤和固定步骤 |
| 塑料移液管 | Fisher Scientific | 50-998-100 | 用于胚胎和幼体转移 |
| 剃须刀片 | Fisher Scientific | 12-640 | 用于样品制备过程 |
| 电导率仪 | YSI | EC300ACC-04 | 用于验证轮虫培养用水的盐度 |
| 轮虫 | The Hidden Reef | 116151603 | 用于幼体饲养 |
| 硫代硫酸钠 | Thermo Fisher Scientific | AAA1762936 | 用于漂白剂中和 |
| 蔗糖 | Fisher Scientific | S25590A | 冷冻保护试剂 |
| 三卡因甲磺酸盐 | Western Chemical | NC0872873 | 麻醉剂;由 Fisher Scientific 销售 |
| 镊子 | Fisher Scientific | 12-000-122 | 用于样品操作 |
| 正置荧光显微镜 | Leica | M165 | 用于荧光筛选 |
参考文献
- Anderson NM, Simon MC. The tumor microenvironment. Curr Biol. 2020;30(16):R921-R925.
- Kumagai S, Momoi Y, Nishikawa H. Immunogenomic cancer evolution: A framework to understand cancer immunosuppression. Sci Immunol. 2025;10(105):eabo5570.
- Keren L, et al. A structured tumor-immune microenvironment in triple negative breast cancer revealed by multiplexed ion beam imaging. Cell. 2018;174(6):1373-1387.e19.
- Gerner MY, et al. Histo-cytometry: A method for highly multiplex quantitative tissue imaging analysis applied to dendritic cell subset microanatomy in lymph nodes. Immunity. 2012;37(2):364-376.
- Pittet MJ, Weissleder R. Intravital imaging. Cell. 2011;147(5):983-991.
- Wienke J, et al. The immune landscape of neuroblastoma: Challenges and opportunities for novel therapeutic strategies in pediatric oncology. Eur J Cancer. 2021;144:123-150.
- Spitzer MH, Nolan GP. Mass cytometry: Single cells, many features. Cell. 2016;165(4):780-791.
- Roy D, et al. Zebrafish—A suitable model for rapid translation of effective therapies for pediatric cancers. Cancers (Basel). 2024;16(7):1361.
- White RM, et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2008;2(2):183-189.
- MacRae CA, Peterson RT. Zebrafish as tools for drug discovery. Nat Rev Drug Discov. 2015;14(10):721-731.
- Miao KZ, et al. Tipping the scales with zebrafish to understand adaptive tumor immunity. Front Cell Dev Biol. 2021;9:660969.
- Povoa V, et al. Innate immune evasion revealed in a colorectal zebrafish xenograft model. Nat Commun. 2021;12(1):1156.
- Wang J, et al. Novel mechanism of macrophage-mediated metastasis revealed in a zebrafish model of tumor development. Cancer Res. 2015;75(2):306-315.
- Loveless R, Shay C, Teng Y. Unveiling tumor microenvironment interactions using zebrafish models. Front Mol Biosci. 2020;7:611847.
- Dee CT, et al. CD4-transgenic zebrafish reveal tissue-resident Th2- and regulatory T cell-like populations and diverse mononuclear phagocytes. J Immunol. 2016;197(9):3520-3530.
- Murali Shankar N, et al. Preclinical assessment of CAR-NK cell-mediated killing efficacy and pharmacokinetics in a rapid zebrafish xenograft model of metastatic breast cancer. Front Immunol. 2023;14:1254821.
- Tan KE, et al. LMO1 expression in neuroblastoma cells reprograms tumor-associated macrophages to promote metastasis. iScience. 2026;29(3):115144.
- Fior R, et al. Single-cell functional and chemosensitive profiling of combinatorial colorectal therapy in zebrafish xenografts. Proc Natl Acad Sci U S A. 2017;114(39):E8234-E8243.
- Fazio M, et al. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 2020;20(5):263-273.
- Qin X, et al. CKLF instigates a “cold” microenvironment to promote MYCN-mediated tumor aggressiveness. Sci Adv. 2024;10(11):eadh9547.
- Ludin A, et al. CRATER tumor niches facilitate CD8+ T cell engagement and correspond with immunotherapy success. Cell. 2025;188(24):6720-6736.e26.
- Zhu S, et al. LMO1 synergizes with MYCN to promote neuroblastoma initiation and metastasis. Cancer Cell. 2017;32(3):310-323.e5.
- Tao T, et al. The pre-rRNA processing factor DEF is rate limiting for the pathogenesis of MYCN-driven neuroblastoma. Oncogene. 2017;36(27):3852-3867.
- Zimmerman MW, et al. MYC drives a subset of high-risk pediatric neuroblastomas and is activated through mechanisms including enhancer hijacking and focal enhancer amplification. Cancer Discov. 2018;8(3):320-335.
- Dankert EN, Look AT, Zhu S. Unraveling neuroblastoma pathogenesis with the zebrafish. Cell Cycle. 2018;17(4):395-396.
- Langenau DM, et al. In vivo tracking of T cell development, ablation, and engraftment in transgenic zebrafish. Proc Natl Acad Sci U S A. 2004;101(19):7369-7374.
- Lam SH, et al. Development and maturation of the immune system in zebrafish, Danio rerio: A gene expression profiling, in situ hybridization and immunological study. Dev Comp Immunol. 2004;28(1):9-28.
- Zhen A, et al. CD4 ligation on human blood monocytes triggers macrophage differentiation and enhances HIV infection. J Virol. 2014;88(17):9934-9946.
- Ferrero G, et al. The macrophage-expressed gene (mpeg)1 identifies a subpopulation of B cells in the adult zebrafish. J Leukoc Biol. 2020;107(3):431-443.
- Hall C, et al. The zebrafish lysozyme C promoter drives myeloid-specific expression in transgenic fish. BMC Dev Biol. 2007;7:42.
- Lorenzini F, et al. Melanoma innervation, noradrenaline and cancer progression in zebrafish xenograft model. Cell Death Discov. 2025;11(1):260.
- Ramakrishnan G, et al. Real-time imaging reveals a role for macrophage protrusive motility in melanoma invasion. J Cell Biol. 2025;224(2):e202403096.
重印与许可
本文已发表
视频即将推出