本文介绍一种稳健的方法,可在多孔低熔点琼脂糖水凝胶基质中物理固定液-液相分离凝聚体,同时不破坏其内部的液体动力学特性。该方法可最大限度减少液滴沉降、融合以及表面润湿伪影,从而实现数小时内可重复的成像和定量生物物理分析。
本文内容
摘要
摘要
由液-液相分离形成的生物大分子凝聚体 increasingly 被认为是细胞的基本组织单元,在RNA加工到应激颗粒组装等过程中发挥重要作用。体外利用纯化的蛋白质和RNA重建此类凝聚体可提供模型系统,但液滴会随时间发生粗化、沉降并在表面铺展,导致在实验时间尺度内定量测量出现显著变异性。将这些凝聚体包埋于一种稀疏、光学透明且化学惰性的水凝胶中——本文中该水凝胶由0.3–1.0% w/v的低熔点琼脂糖(LMA)制备——可在三维空间中稳定液滴,从而支持使用需要较长测量时间或需重复测量的实验方法。本文提供了一套详细的LMA储备液制备、液滴形成及包埋的逐步操作方案,并给出了特定下游生物物理检测方法的应用示例。我们还证明,在代表性测试体系中,LMA包埋后特定液滴性质(如分子扩散)得以保留。由于该方法可兼容共聚焦显微镜、宽场显微镜或超分辨率显微镜、光漂白后荧光恢复(FRAP)以及核磁共振波谱等多种技术,因此可用于健康与疾病相关生物大分子凝聚体的定量表征。
引言
液-液相分离(LLPS)驱动细胞内无膜细胞器和生物分子凝聚体的形成,包括应激颗粒、P小体和核仁1,2,3,4,5。这些凝聚体能够富集特定的蛋白质和核酸,同时与周围的细胞质或核质保持快速交换——这是类液体行为的一个典型特征1,2,3,4,5。LLPS的失调已被证实与多种疾病相关,例如神经退行性疾病3,6,7,同时也参与多种病毒(如SARS-CoV-2)的复制过程8,9,10,11,12。
体外利用纯化的蛋白质和RNA在明确的缓冲条件下重建凝聚体,已成为研究液-液相分离(LLPS)机制的核心方法3,4。然而,在试管中或玻璃表面形成的液滴容易出现三种主要的人工假象:(i)重力沉降,导致液滴聚集在底部;(ii)融合,即液滴随时间推移融合成更少但更大的结构;(iii)表面润湿,即液滴在盖玻片上铺展并部分吸附。这些现象降低了定量测量的可重复性,使得在生理相关尺度下对单个液滴进行追踪变得困难13。此外,这些现象还限制了需要数分钟至数小时长时间测量的方法(如核磁共振[NMR]波谱法或STORM等超分辨率显微技术)的应用,并阻碍了在长时间尺度上进行重复测量。
通过水凝胶网络进行物理固定可同时解决上述三种假象。琼脂糖在34–38 °C以下温度形成物理交联的凝胶。在0.3–1.0% w/v的浓度下,琼脂糖的网孔尺寸足够大,能够包埋完整的微米级液滴,同时又具有足够的孔隙率,不会阻碍液滴内部的分子动力学13。此外,琼脂糖基质的孔隙性允许大分子和小分子在包埋的液滴内外自由扩散。对于特别温度敏感的体系,例如含有折叠结构域的蛋白质,或涉及上临界/下临界溶液温度(UCST/LCST)型相分离的体系,可改用低熔点琼脂糖(LMA),其凝胶化温度为26–30 °C。其他抗润湿方法(如表面钝化)可减少凝聚物的黏附从而降低润湿性,但通常需要特殊的制备步骤,且无法防止液滴沉降或融合。相比之下,琼脂糖包埋提供了一种操作简便、广泛适用的凝聚物空间固定方法。重要的是,已有研究证实,在琼脂糖浓度不超过1.0% w/v时,其不会干扰融合肉瘤(FUS)及其他RNA结合蛋白在液滴形成过程中的构象状态13。本实验方案标准化了琼脂糖包埋技术,适用于多种感兴趣的相分离蛋白或蛋白-RNA体系,提供了试剂制备与样品制备的逐步操作指南。
方案
1. 琼脂糖母液的制备
重要提示:制备琼脂糖母液时应使用与制备相分离样品相同的缓冲液(以下简称“液滴缓冲液”),以避免缓冲液不匹配14。示例:核衣壳蛋白样品使用缓冲液 A(25 mM HEPES、50 mM NaCl,pH 7.2)配制,则琼脂糖母液也应使用相同的缓冲液 A 配制。
注意:最终实验条件,包括但不限于缓冲液组成、蛋白质浓度、添加剂的使用以及最终样品体积,高度依赖于所研究的具体生物体系及具体的下游应用。同样,图像采集参数、仪器设置和数据分析也强烈依赖于样品和具体实验。例如,SARS-CoV-2 核衣壳蛋白与 poly(A) 的样品制备方法见图 1A(共聚焦荧光显微镜)。
- 将适量的低熔点琼脂糖(LMA)或普通琼脂糖称重后放入含有液滴缓冲液的1.5 mL离心管中。示例:配制2% w/v的储备液时,将20 mg琼脂糖溶解于1 mL缓冲液A中。
注意:最终琼脂糖储备液浓度应为1–2% w/v,具体取决于样品中所需的终浓度。不建议超过2% w/v,因为浓度过高会导致移液困难。在高浓度琼脂糖情况下,可剪去移液器吸头的尖端以方便移液。请参阅讨论部分以确定样品是否需要使用LMA或普通琼脂糖。 - 将琼脂糖储备液置于加热块或水浴中加热至80–90 °C,并通过涡旋充分溶解琼脂糖(约需10分钟)。
警告:熔融琼脂糖温度较高,操作时需小心。 - 将琼脂糖储备液在加热块或水浴中平衡至37 °C(LMA)或55 °C(普通琼脂糖)。确认在此温度下溶液保持澄清且呈液态。如有需要,可用温度计确认琼脂糖储备液的实际温度。
暂停点:熔融状态的琼脂糖储备液可在保温条件下保存30–60分钟。
强烈建议使用水浴加热,以确保加热更均匀,并能更精确地维持目标温度。这一点在处理LMA时尤为重要,因为温度的微小偏差可能导致琼脂糖提前凝胶化。 - 完成样品制备(第2节)后,将剩余的琼脂糖储备液储存于+4 °C。再次使用前,请按照上述步骤1.2和1.3重新熔解并重新平衡温度。
注意:建议琼脂糖储备液在+4 °C下保存不超过2周,且经历的冻融循环次数不应超过2–3次。应遵循良好生产规范以防止污染。若储备液无法正常重熔或重凝,或出现可见污染,应提前弃用。
2. 样品制备
- 将所有直接接触琼脂糖的材料(如移液器吸头、离心管、显微镜载玻片)置于加热块或培养箱中预热约2–3分钟,使其温度升至约37 °C。
- 按照第1节所述制备琼脂糖母液。
- 根据标准方案配制液滴缓冲液、相分离组分(如蛋白质或RNA储备液)以及其他添加剂(如拥挤剂、染料)。平衡至室温(RT)。示例:缓冲液A(25 mM HEPES,50 mM NaCl,pH 7.2)、核衣壳蛋白储备液(60 µM,溶于缓冲液A)、poly(A)储备液(30 µM,溶于缓冲液A)。
注意:对于光漂白后荧光恢复(FRAP)、共聚焦荧光显微镜或随机光学重建显微镜(STORM)实验,需分别向蛋白质或RNA储备液中加入少量荧光标记的蛋白质或RNA(推荐: <5% 标记组分 - 计算样品所需的液滴缓冲液、琼脂糖储备液、相分离组分(如目标蛋白或RNA)以及任何附加添加剂(如拥挤剂)的体积。示例:6 µL 缓冲液A,5 µL 2% 琼脂糖储备液(终浓度0.5%),5 µL 核衣壳蛋白(终浓度15 µM),4 µL poly(A)(终浓度6 µM),终体积20 µL。
注意:尽管具体体积高度依赖于实验所用的培养皿、试管、培养板或其他容器,但通常情况下,3 mm NMR 试管使用 150 µL,6通道显微载玻片用于显微镜或荧光漂白恢复(FRAP)实验时使用 20 µL,18孔显微载玻片用于随机光学重建显微镜(STORM)实验时使用 20–30 µL(参见材料表)。- 作为起始值,标准生物物理实验采用终浓度0.3–0.5% w/v琼脂糖,长期稳定(如老化实验)采用0.8–1.0% w/v。
注意:为实现样本的长期稳定与保存,应采取措施防止样本脱水(例如密封样本容器、置于湿化 chamber 中保存,并添加蒸发屏障),并确保在长时间孵育过程中缓冲液成分和 pH 值保持稳定。 - 对于核磁共振样品,在样品中加入终浓度为5%(v/v)的D2O用于锁场。
注意:所有其他组分的浓度及总样本体积在很大程度上取决于具体应用和实验设置。
- 作为起始值,标准生物物理实验采用终浓度0.3–0.5% w/v琼脂糖,长期稳定(如老化实验)采用0.8–1.0% w/v。
- 将相应体积的缓冲液、相分离组分、琼脂糖储备液和添加剂加入预热的1.5 mL离心管中。
注意:建议先加入缓冲液和琼脂糖,随后加入其他补充添加剂。进一步建议最后加入相分离组分以触发凝聚体的形成。然而,最佳混合顺序取决于具体体系,应预先确定。这一点尤其重要,因为对于某些体系而言,化学计量比和添加顺序会显著影响液滴大小或区室化程度。示例:核衣壳样品的混合顺序为,首先加入缓冲液A,其次加入琼脂糖储备液,然后加入核衣壳蛋白,最后加入poly(A),体积参见步骤2.4中的说明。在此样品中,LLPS由poly(A)的加入触发。对于LLPS产生明显浊度的体系,浊度可作为定性质量控制指标;但浊度出现的时间和可见性依赖于具体体系,缺乏即时浊度本身并不表明实验方案失败。- 将试管保持在加热块或水浴中,同时用移液器上下吹打数次。避免引入气泡。
注意:在琼脂糖仍处于液态时,液滴可能发生融合。因此,在启动凝胶化之前,通过调整在加热块或水浴中预孵育的时间,可作为一种有效手段,用于研究不同大小的液滴。在选定预孵育时间间隔之前,先在无琼脂糖条件下表征液滴生长动力学,可使研究者可重复地获得特定尺寸范围的液滴。
- 将试管保持在加热块或水浴中,同时用移液器上下吹打数次。避免引入气泡。
- 用于显微镜 / FRAP 样品:
- 使用普通移液器将样品快速转移至所选显微镜载玻片上(例如,带盖玻片底部的通道式显微镜载玻片)。
- 在室温下静置凝胶5–10分钟(参见讨论部分的注释)。
注意:在此期间请勿移动显微镜载玻片。避免荧光样品暴露于光照。 - 根据标准方案测量样品。示例:转盘共聚焦显微镜,100倍1.45数值孔径平场复消色差油镜,Cy3染料激发波长561 nm,Cy3通道激光功率30%,曝光时间100 ms,明场通道光强6%,曝光时间50 ms。进行FRAP实验时:漂白区域为1/10th 液滴直径的中心位置进行测量,采集25帧预漂白图像(无延迟采集),60帧漂白后图像(每1秒采集一帧),漂白激光脉冲参数为15毫秒、70%激光功率。使用开源软件对FRAP恢复曲线进行全尺度归一化分析;仅在进行拟合时报告动力学拟合参数。
- 用于STORM样品:
- 使用普通移液器将样本快速转移至所选的STORM载玻片(例如,18孔带盖玻片底的腔室载玻片)中,以液滴形式加入样本。
- 在室温下静置凝胶化5–10分钟(参见讨论部分的注释)。
注意:在此期间请勿移动显微镜载玻片。避免荧光样品暴露于光照下。 - 用STORM缓冲液充满整个孔,按照标准方案密封反应孔。
- 在测量前将样品平衡至少1–2小时,以使STORM缓冲液充分扩散进入琼脂糖水凝胶。
注意:如果在STORM成像过程中荧光染料出现闪烁现象,则可轻松验证STORM缓冲液已成功扩散至样品中。根据样品的具体情况,可能需要更长的平衡时间。 - 根据所采用的标准方案进行样品检测。示例:Ti2 倒置显微镜,SR apochromat TIRF 100x 1.49 油镜,高度倾斜薄层照明。每个样品采集 20,000 帧图像,视场为 64 × 64 像素,使用 125 mW 647 nm 激光(针对 Cy5 染料)曝光时间为 10 ms,并辅以 20 mW 405 nm 激光促进分子从长寿命暗态向基态转变。图像通过多发射源拟合的最大似然估计方法进行处理。进行漂移校正,仅包含定位精度达到或优于 25 nm 的数据点用于最终成像。最终图像采用平均移位直方图法生成,放大倍数为 20 倍(最终图像中 1 像素 = 8 nm)。
- 用于核磁共振(NMR)样品:
- 使用预热的细长玻璃移液管将样品迅速转移至核磁共振管中,并将样品注入管底。
- 在室温下静置凝胶化5–10分钟(参见讨论部分的注释)。
注意:在此期间不要晃动核磁管。 - 根据所用标准方案测量样品。示例:使用PATXI常温探头的750 MHz核磁共振仪,3 mm样品管,25 °C下采集数据,扩散(DOSY)实验采用标准脉冲序列(stebpgp1s19),参数设置如下:4,096个数据点,累加扫描32次,梯度强度2–95%,扩散时间0.08 s,梯度脉冲持续时间12 ms,弛豫延迟(d1)5 s。
结果
本方案以 FUS N 端结构域(FUS NTD)或 SARS-CoV-2 核衣壳(N)蛋白与 poly(A) 或 s2m RNA 形成的凝聚相液滴作为代表性示例,涵盖了仅含蛋白质及蛋白质-RNA 两类液滴。为评估琼脂糖在测试条件下是否对凝聚相液滴的形成产生可检测的影响,我们在含有或不含 0.5% w/v 低熔点琼脂糖(LMA)的情况下,利用 N 蛋白与 poly(A) 形成液滴。由于 LMA 在室温下约 5 分钟后即凝固,我们在该时间点采集荧光显微图像,观察到两种情况下液滴的大小大致相同(图 1A、B)。为展示琼脂糖对液滴润湿与融合的抑制作用,我们在样品制备后 60 分钟采集了另一组图像。结果显示,嵌入琼脂糖中的液滴大小未发生明显变化,而未添加 LMA 的液滴则因融合和表面润湿而显著增大(图 1A、B)。尽管我们在成核后相对较早地将液滴包埋,但通过调整包埋前的孵育时间,也可实现对不同大小液滴的包埋。尽管液滴被包埋于琼脂糖水凝胶中,其测得的凝聚相动力学未表现出可检测的改变。荧光漂白后恢复(FRAP)实验显示,样品中无论是否含有 LMA,其恢复曲线以及表观液滴扩散行为均高度相似(图 1C)。此外,先前针对 FUS NTD 凝聚相的扩散有序核磁共振波谱(DOSY)实验表明,在琼脂糖浓度为 0.25–1% w/v 范围内,其扩散速率未受到可检测的影响(图 1D)(改编自 Emmanouilidis 等人13)。这些结果表明,琼脂糖水凝胶适用于在空间和时间上固定相分离形成的凝聚相液滴,从而支持在较长时间尺度上的重复测量。
尽管显微镜和FRAP测量的记录速度相对较快(几秒到几分钟),但某些实验需要数分钟(例如STORM、一维1H NMR)甚至数小时(例如二维[15N 1H] HSQC NMR)才能完成数据采集。对于此类实验,液滴在整个采集过程中保持静止且不随时间发生沉降至关重要。在此,我们展示了N蛋白与s2m RNA形成的液滴在LMA中可被稳定足够长的时间,以完成STORM成像(图1E)。此外,FUS NTD液滴在含有或不含琼脂糖的情况下所获得的核磁共振(NMR)谱线宽度相似,表明在此条件下琼脂糖水凝胶与蛋白质之间无明显相互作用(图1F)(改编自Emmanouilidis等13)。相比之下,嵌入琼脂糖的凝聚体谱图显示出更高的信号强度,这可能是因为未稳定的液滴在NMR管中发生沉降,从而不再可用于检测(图1F)(改编自Emmanouilidis等13)。综上所述,在琼脂糖水凝胶中稳定凝聚体不仅能够实现时间序列实验,还可允许使用采集时间较长的检测方法,同时在所测试的代表性体系中保持所测液滴的性质不变。
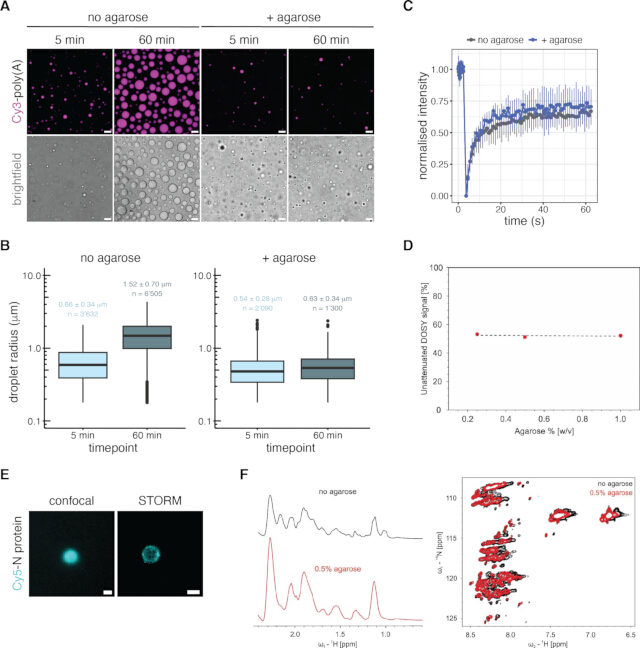
图1: 通过琼脂糖包埋实现凝聚物稳定,且未检测到对测量液滴性质的显著干扰。(A) 荧光显微镜观察 15 µM 核衣壳蛋白与 6 µM 缓冲液A(25 mM HEPES,50 mM NaCl,pH 7.2)中的Cy3-poly(A)(5%标记)在含(+琼脂糖)或不含(无琼脂糖)0.5% w/v LMA的情况下进行实验。混合/琼脂糖包埋后5分钟或60分钟采集图像。图像来自n = 2次独立实验中获取的7张图像,具有代表性。比例尺 = 5 µm. (B) (所示凝聚体液滴半径的量化A)。数据以箱线图表示(箱体 = 四分位距,中线 = 中位数,须线 = 其余数据范围,点 = 离群值)。每种条件下分析的液滴平均半径 ± 标准差(sd)及液滴数量直接标注在图上。数据符合正态分布。在统计推断中,单个液滴未被视为独立的生物学重复。未进行统计检验;分布情况仅作描述性展示。 (C) 所示液滴的FRAPA在5分钟时间点。使用561 nm激光(Cy3)进行光漂白。数据表示归一化荧光强度(每种条件n = 3个独立重复的平均值 ± 标准差),通过将漂白区域的信号相对于漂白前信号、同一样本中的未漂白区域以及背景荧光进行归一化处理获得。 (D) 未衰减的 DOSY 信号 200 µM 缓冲液B(30 mM HEPES、200 mM KCl、600 mM 尿素,pH 7.3)中含0.25%、0.5%或1.0% (w/v) 普通琼脂糖的FUS NTD蛋白。N = 1。 (E) 共聚焦荧光显微镜与STORM成像图像 15 µM Cy5标记的核衣壳蛋白(5%标记)与 6 µM 缓冲液A(含0.5% w/v LMA)中的病毒s2m RNA。代表三次独立实验的结果。比例尺 = 1 µm 在两张图像中均 (F) 1D 1H NMR 谱图(左)和 2D [15N 1H] HSQC NMR 谱图(右) 200 µM FUS NTD 在含或不含 0.5% w/v 普通琼脂糖的缓冲液 B 中。N = 1。图示(D)和(F) 来自 Emmanouilidis 等人的研究。13 请点击此处以查看此图的放大版本。
讨论
琼脂糖包埋生物分子凝聚物的成功依赖于多个因素。首先,琼脂糖必须维持在足够高的温度以防止过早凝胶化,同时又不能过高以免干扰生物分子的结构或相互作用。低熔点琼脂糖的凝胶化温度为 26–30 °C,熔点为 60–65 °C,而普通琼脂糖的凝胶化温度为 34–38 °C,熔点为 90–95 °C。其次,快速混合并转移至最终反应容器(例如 NMR 管)至关重要,因为时间或温度上的微小偏差都可能导致包埋不均,从而影响实验的可重复性。
尽管存在这些关键点,该方法仍可轻松适应不同的实验需求。对于含有内在无序蛋白或不易发生热变性的相分离体系,可使用普通琼脂糖代替低熔点琼脂糖(LMA)以降低成本。在制备含有折叠结构域蛋白或其他易受热变性影响的温度敏感性(生物)分子的样品时,应使用LMA以防止变性。可设置仅加热而不加琼脂糖的对照样品,以区分琼脂糖包埋效应与短暂升温带来的影响。为降低温度依赖性变性效应的风险,低熔点琼脂糖特别适用于温度敏感性样品,同时可通过调节琼脂糖浓度来调控网络孔径大小和机械限制程度。对于高度敏感的扩散测量(例如最近开发的名为LLPS REDIFINE15,16的核磁共振方法),通常优选能够防止沉降的最低琼脂糖浓度,一般为0.3–0.5% w/v。对于需要数周至数月稳定性的成熟实验,则优选0.8–1% w/v的浓度。这些参数应进行优化,以确保在不显著改变凝聚体形态或动态特性的前提下实现有效稳定,并始终根据具体体系进行调整。此验证需比较有无琼脂糖包埋的样品(其他条件完全相同),或比较不同琼脂糖浓度(以排除浓度依赖性的网络效应),例如通过显微镜评估液滴形态、荧光漂白恢复技术(FRAP)评估扩散,或采用其他适合评估研究者关注的液滴特性的方法。
凝胶时间是另一个重要的考虑因素。琼脂糖凝固所需的时间取决于多种因素,例如缓冲液类型、pH值、琼脂糖终浓度、起始温度,以及使用的是低熔点琼脂糖还是普通琼脂糖。通常情况下,琼脂糖在5–10分钟内凝固。琼脂糖储备液的凝胶化过程可作为样品凝胶化的参考指标。类似地,在琼脂糖包埋前调整预孵育时间,可实现对不同液滴尺寸的可重复表征。缓冲液的选择也至关重要14。必须使用与样品制备相同的缓冲液来配制琼脂糖储备液,以避免缓冲液不匹配。所选缓冲液应是已知能使该体系发生相分离的缓冲液。
应针对每个系统考虑其温度敏感性。许多相分离系统表现出热可逆的相变行为,称为UCST/LCST型液-液相分离(LLPS)。因此,在琼脂糖混合过程中短暂暴露于稍高温度的条件必须经过验证,以确保不会干扰相变行为或所测量的液滴特性。如果出现问题,通常可通过优化温度条件、缩短操作时间或调整琼脂糖浓度来解决。例如,尽管低熔点琼脂糖(LMA)储存液的理想加热温度为37 °C,但在33–35 °C时仍可保持液态。
故障排除非常重要,因为根据样品和实验设置的不同,可能会出现不同的失败模式。如果液滴在与琼脂糖混合后溶解,可能是由于低熔点琼脂糖(LMA)温度过高或缓冲液不匹配所致。此时,LMA 储液应精确保持在目标温度或略低几度,并使用与目标蛋白/RNA 相同的缓冲液配制。如果在移液枪头中发生过早凝胶化,可能是由于 LMA 温度过低或枪头未预热所致。为避免此问题,枪头和离心管应预热至 37 °C,操作者应快速操作,并确保加热金属块保持在目标温度。如果随时间推移出现润湿、融合或沉降现象,可能是由于凝胶过于稀疏或凝胶化不均匀所致。此时可提高 LMA 浓度,并确保在室温下实现均匀凝胶化。如果琼脂糖溶液中存在可见颗粒,可能是由于琼脂糖未完全溶解所致。此时应将琼脂糖加热至完全透明,并在使用前充分混匀(例如涡旋振荡)。如果在混合或移液过程中引入了气泡,可能会影响成像并导致凝聚物分布不均。为尽量减少气泡产生,应通过缓慢吹打溶液进行轻柔混匀。如果观察到凝胶化不均或凝聚物分布不均,可能是由于混合不充分或凝胶化过程中存在局部温度梯度所致。此时应在加热金属块(或水浴)上完成所有组分的添加,立即但轻柔地混匀,并在均匀的温度条件下使其固化。应避免剧烈的温度梯度;建议在室温下固化(避免在冰箱中固化)。在长期实验中,样品蒸发可能改变溶质浓度和凝聚物性质。为尽量减少蒸发,应适当密封样品,并尽可能将其置于湿度可控的环境中。
与多聚甲醛固定等方法不同,琼脂糖包埋不会对样品产生化学固定作用。因此,凝聚物仍保持动态特性,这有利于功能研究,但限制了长期保存。对于较长时间的实验,必须采取预防措施以防止蒸发以及缓冲液成分改变(例如 pH 值变化)。此外,尽管琼脂糖在这些检测中通常具有较低的相互作用性,但仍需考虑其对扩散或局部环境可能产生的间接影响。如果怀疑存在琼脂糖与生物分子之间的相互作用(例如蛋白质与琼脂糖的非特异性结合),可考虑使用具有匹配网孔尺寸和孔隙率的替代水凝胶基质,如光交联的聚乙二醇二丙烯酸酯(PEG-DA)。应通过在有无基质条件下测量荧光漂白后恢复(FRAP)来验证是否存在相互作用。
除了化学固定外,常用的表面钝化策略包括使用牛血清白蛋白(BSA)、聚乙二醇(PEG)或表面活性剂包被的表面以及支撑脂双层,以减少凝聚相的黏附和润湿。尽管这些方法能有效降低表面相互作用,但无法阻止凝聚相的移动、沉降或融合。因此,琼脂糖包埋通过提供物理固定的同时保持凝聚相的动力学特性,可作为上述方法的补充,特别适用于需要样品位置稳定的长时间实验、三维成像以及定量测量。因此,方法的选择应根据实验目的来确定。
总体而言,琼脂糖水凝胶提供了一种简单而有效的方法,可在三维空间中稳定凝聚相。该方法可防止液滴润湿和融合,且在所测试的代表性体系中,不会显著干扰所测得的内在特性,从而能够进行时间序列实验以及需要长时间采集数据的技术,例如核磁共振波谱分析15。尽管由于多种原因,该方法可能并不适用于所有相分离体系,但本文所介绍的方法适用于多种生物分子凝聚相的研究,尤其有助于探究与神经退行性疾病机制相关的成熟过程17。
披露
作者声明无利益冲突。
致谢
本工作获得了瑞士国家科学基金会(SNSF)资助项目 310030-215555(F.H.-T.A.)、4078P0_198253(F.H.-T.A.)、CRSII5_205922(F.H.-T.A.)、205321_204920(F.H.-T.A.)、NCCR RNA & Disease 资助项目 51NF40-182880(F.H.-T.A.)以及 EMBO 长期奖学金 LTF-388-2018(L.E.)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 离心管 | 任何品牌均可 | N/A | |
| 18 孔腔室载玻片 | ibidi | 81816 | 用于 STORM |
| 低熔点琼脂糖 | Sigma-Aldrich | A9414 | 分子生物学级 |
| 超纯琼脂糖 | Invitrogen | 16500500 | |
| 通道载玻片 | ibidi | 80606 | 用于显微镜观察 |
| 共聚焦显微镜 | Nikon | N/A | |
| Cy5 染料,NHS 化学修饰 | Jena Biosciences | FP-201-CY5 | 用于蛋白质标记 |
| D2O(重水) | Sigma-Aldrich | 151882 | |
| easyFRAP | Koulouras 等,2018 | N/A | https://pubmed.ncbi.nlm.nih.gov/29901776/ |
| Everspark 2.0 dSTORM 缓冲液 | idylle | KMO|ETE+ | |
| FUS NTD 蛋白 | N/A | N/A | 本实验室重组表达,具体方法见参考文献 13(Emmanouilidis 等,Nat Chem Biol 2021) |
| 加热块或水浴锅 | 任何品牌均可 | N/A | 任意型号均可 |
| HEPES | Sigma-Aldrich | H3375 | |
| 图像分析软件 | Fiji | N/A | https://fiji.sc/ |
| KCl | Sigma-Aldrich | P5405 | |
| NaCl | Sigma-Aldrich | S9888 | |
| NMR 波谱仪 | Bruker | N/A | 750 MHz,PATXI 室温探头,更多细节见参考文献 13(Emmanouilodis 等,Nat Chem Biol 2021) |
| NMR 管 | Bruker | N/A | 3 mm,玻璃材质 |
| P10、P20、P200 和 P1000 移液器 | 任何品牌均可 | N/A | |
| pCp-Cy3 染料 | Jena Biosciences | NU-1706-CY3 | 用于 RNA 标记 |
| poly(A) RNA | N/A | N/A | 本实验室体外转录制备,长度约 50 个核苷酸,具体方法见 Kathe 等,Mol Biol Cell 2024 |
| s2m RNA | N/A | N/A | 本实验室体外转录制备,长度为 45 个核苷酸,序列:5'-GGUUCACCGAGGCCACGCGGAGU ACGAUCGAGUGUACAGUGAACC-3',具体方法见 Kathe 等,Mol Biol Cell 2024 |
| SARS-CoV-2 核衣壳蛋白 | N/A | N/A | 本实验室重组表达,具体方法见 Kathe 等,Mol Biol Cell 2024 |
| 绘图软件(例如 R) | R-Project | 版本 4.2.1 | https://www.r-project.org/ |
| STORM 显微镜 | Nikon N-STORM | N/A | |
| ThunderSTORM 插件 | Ovesny 等,2014 | N/A | https://pmc.ncbi.nlm.nih.gov/articles/PMC4207427/ |
| 移液器吸头 | 任何品牌均可 | N/A | |
| TopSpin | Bruker | 版本 3.2 和 4.1 | |
| 尿素 | Sigma-Aldrich | U5128 |
参考文献
- Alberti S. Phase separation in biology. Curr Biol. 2017;27(20):R1097-102.
- Rabouille C, Alberti S. Cell adaptation upon stress: the emerging role of membrane-less compartments. Curr Opin Cell Biol. 2017;47:34-42.
- Boeynaems S, et al. Protein phase separation: a new phase in cell biology. Trends Cell Biol. 2018;28(6):420-35.
- Hyman AA, Weber CA, Jülicher F. Liquid-liquid phase separation in biology. Annu Rev Cell Dev Biol. 2014;30:39-58.
- Banani SF, Lee HO, Hyman AA, Rosen MK. Biomolecular condensates: organizers of cellular biochemistry. Nat Rev Mol Cell Biol. 2017;18(5):285-98.
- Patel A, et al. A liquid-to-solid phase transition of the ALS protein FUS accelerated by disease mutation. Cell. 2015;162(5):1066-77.
- Shen Y, et al. The liquid-to-solid transition of FUS is promoted by the condensate surface. Proc Natl Acad Sci U S A. 2023;120(33):e2301366120.
- Brocca S, Grandori R, Longhi S, Uversky V. Liquid-liquid phase separation by intrinsically disordered protein regions of viruses: roles in viral life cycle and control of virus-host interactions. Int J Mol Sci. 2020;21(23):9045.
- Scoca V, Di Nunzio F. Membraneless organelles restructured and built by pandemic viruses: HIV-1 and SARS-CoV-2. J Mol Cell Biol. 2021;13(4):259-68.
- Su J, Wilson M, Samuel C, Ma D. Formation and function of liquid-like viral factories in negative-sense single-stranded RNA virus infections. Viruses. 2021;13(1):126.
- Etibor TA, Yamauchi Y, Amorim MJ. Liquid biomolecular condensates and viral lifecycles: review and perspectives. Viruses. 2021;13(3):366.
- Guseva S, et al. Measles virus nucleo- and phosphoproteins form liquid-like phase-separated compartments that promote nucleocapsid assembly. Sci Adv. 2020;6(14):eaaz7095.
- Emmanouilidis L, et al. NMR and EPR reveal a compaction of the RNA-binding protein FUS upon droplet formation. Nat Chem Biol. 2021;17(5):608-14.
- Kathe NC, Novakovic M, Allain FHT. Buffer choice and pH strongly influence phase separation of SARS-CoV-2 nucleocapsid with RNA. Mol Biol Cell. 2024;35(5):ar73.
- Novakovic M, Schmoll J, Emmanouilidis L, Allain FHT. Using solution NMR to characterize biomolecular condensates under biphasic conditions. J Vis Exp. 2026;(230):e70530.
- Novakovic M, et al. LLPS REDIFINE allows the biophysical characterization of multicomponent condensates without tags or labels. Nat Commun. 2025;16(1):4628.
- Emmanouilidis L, et al. A solid beta-sheet structure is formed at the surface of FUS droplets during aging. Nat Chem Biol. 2024;20(8):1044-52.
重印与许可
