我们建立了一种原代大鼠星形胶质细胞模型,该模型为研究 Alexander 病(AxD)提供了一个具有生理相关性的体系,可用于探究 GFAP 聚集、病理学修饰以及星形胶质细胞功能障碍。该体系弥合了体外(in vitro)与体内(in vivo)研究之间的差距,为探索 AxD 的病理机制以及发现神经退行性疾病的治疗靶点提供了一个可靠的平台。
本文内容
摘要
摘要
星形胶质细胞在维持中枢神经系统稳态、支持神经元功能以及应对损伤或疾病方面发挥着至关重要的作用。星形胶质细胞功能障碍 increasingly 被认为是神经退行性疾病的关键致病因素,其中包括 Alexander 病(AxD)——一种由胶质纤维酸性蛋白(GFAP)基因突变引起的罕见且致命的疾病。这些突变导致 GFAP 蛋白聚集、Rosenthal 纤维形成以及进行性星形胶质细胞功能障碍。尽管 in vivo 动物模型提供了复杂的细胞环境,但现有的 in vitro 和 in vivo 模型在准确模拟星形胶质细胞复杂的细胞背景和功能方面仍存在局限性。为解决这一问题,我们建立了一种细胞模型,利用来自野生型(WT)和 AxD 模型大鼠的原代星形胶质细胞,以研究 GFAP 突变的功能性影响。该具有生理相关性的系统可深入探究星形胶质细胞特异性的机制,包括 GFAP 聚集、氧化应激反应以及病理学修饰。对于无法获得 AxD 模型大鼠的研究人员,慢病毒转导提供了一种替代方法,可将与 AxD 相关的 GFAP 突变引入正常大鼠来源的星形胶质细胞中,从而拓宽该方法的适用性。与永生化星形胶质细胞系或使用重组蛋白的 in vitro 研究相比,原代星形胶质细胞能更好地保留天然的细胞结构和分子特征,为研究 GFAP 的动态变化、溶解性以及星形胶质细胞对氧化损伤和病理修饰等应激因素的反应提供了可靠的实验平台。该细胞模型弥合了分子水平与系统水平研究之间的鸿沟,为探索 AxD 中星形胶质细胞功能障碍提供了一个可控的实验框架。通过补充现有研究方法,原代星形胶质细胞培养加深了我们对 AxD 病理机制的理解,并为识别神经退行性疾病的潜在治疗靶点提供了有价值的工具。
引言
星形胶质细胞是一类特化的胶质细胞,遍布整个中枢神经系统(CNS),在维持脑内环境稳态、调控神经元活动以及应对损伤或疾病方面发挥关键作用1。其功能包括神经递质的清除与再循环、细胞外离子和水的稳态调节,以及对神经环路功能的支持。星形胶质细胞分泌的分子对成年大脑中突触的发育和突触可塑性至关重要2。当中枢神经系统受到损伤或发生疾病时,星形胶质细胞会发生反应性改变,介导促炎或抗炎信号通路,从而在特定情况下发挥神经保护作用,但也可能促进中枢神经系统病理进程3。星形胶质细胞功能的失调正日益被认识到是影响中枢神经系统健康与疾病的关键因素4,5。
胶质纤维酸性蛋白(GFAP)是一种III型中间丝(IF)蛋白,是星形胶质细胞的主要细胞骨架成分,大多数但并非全部星形胶质细胞均表达GFAP。在中枢神经系统(CNS)损伤后,GFAP表达上调,可作为组织损伤严重程度的标志物。6尽管GFAP传统上被认为与结构功能相关7,其功能意义仍鲜有研究。GFAP 基因突变可导致 Alexander 病(AxD)8,一种罕见的神经退行性疾病,其特征为GFAP聚集、Rosenthal纤维形成以及进行性星形胶质细胞功能障碍。尽管 体外 生化研究9,10,11 和 体内 动物模型12,13 尽管为AxD病理提供了见解,但未能捕捉到星形胶质细胞功能的复杂细胞环境14.
为了克服这些局限性,我们建立了一种细胞模型,该模型使用来自野生型(WT)和AxD模型大鼠的原代星形胶质细胞13。该系统保留了星形胶质细胞固有的细胞结构和分子特征,可用于研究GFAP聚集、氧化应激反应以及与AxD相关的病理改变。对于无法获得AxD模型大鼠的研究人员,慢病毒转导提供了一种替代方法,可将与AxD相关的GFAP突变导入来自正常大鼠的星形胶质细胞中10。
与永生化细胞系相比,原代星形胶质细胞保留了星形胶质细胞群体的异质性和复杂性 体内,为研究星形胶质细胞特异性机制提供了一个生理学上相关联的平台15。与 体外 使用重组蛋白的研究9原代星形胶质细胞天然表达GFAP及其他星形胶质细胞特异性标志物,可在天然细胞环境中研究与疾病相关的变异10,16,17此外,原代星形胶质细胞有助于研究其对氧化损伤等应激刺激的功能性反应18 和炎症19,这在简化的模型中难以复制 体外 系统
在轴索性营养不良症(AxD)研究中,原代星形胶质细胞通过弥合分子水平与系统水平研究之间的鸿沟,补充了生化分析和体内研究方法。尽管生化检测聚焦于GFAP突变的分子特性,但缺乏细胞层面的复杂性;而体内模型虽能捕捉系统性效应,却不适用于深入的细胞机制研究。原代星形胶质细胞提供了一个兼具细胞复杂性和实验可控性的中间体系,符合当前神经退行性疾病研究的趋势,即强调利用细胞模型来阐明疾病机制并识别潜在治疗靶点20。
本论文介绍了原代大鼠星形胶质细胞作为 Alexander 病(AxD)研究的细胞模型的建立与应用。通过实现野生型(WT)与 AxD 星形胶质细胞之间的直接比较,该方法克服了其他技术的关键局限性,并通过慢病毒转导提高了实验的可及性。这些发现有助于深入理解 AxD 中星形胶质细胞的功能障碍,并为神经退行性疾病的治疗研究提供了有价值的工具。
方案
本方案所使用的动物实验已获得国立清华大学生命科学与医学学院动物实验委员会(NTHU IACUC 批准号:109088 和 111060)的批准,并遵循《实验室动物照护与使用指南》的相关规定。
1. 培养基、盖玻片、培养皿和培养板的准备
- 开始前,请确保已配制并准备好以下溶液(表1),以供使用。
- 使用前通过高压灭菌对剪刀和镊子进行灭菌,以确保无菌状态。
- 用硼酸缓冲液配制浓度为 0.02 mg/mL 的多聚-L-赖氨酸(PLL)溶液。
- 加入足量的 PLL 溶液,使其完全覆盖盖玻片或培养皿/板的底部,确保包被均匀。
- 将 PLL 包被的盖玻片和培养皿置于超净工作台中,于室温孵育过夜。
- 次日,小心移除 PLL 溶液,并用新鲜无菌水将包被后的盖玻片或培养皿/板清洗三次,以去除残留的 PLL。
注意:必须彻底清洗 PLL 包被的培养瓶/板或盖玻片,以去除可能对细胞活力产生不利影响的残留 PLL。
2. 原代星形胶质细胞培养的制备
注意:示意图见图1。
- 将新生1至3天的大鼠幼崽置于冰上诱导低体温后,进行断头术,分离头部与身体。
- 将头部置于60 mm培养皿中,并用镊子固定两侧。使用精细剪刀,轻轻解剖头部顶部的皮肤。
- 使用精细剪刀在头部顶点处做切口,小心打开颅骨。轻柔分离并移除颅骨的两半。
- 用镊子从基部夹取脑组织,并转移至含有解剖液的60 mm培养皿中。
- 将每个半球以内侧面向上放置,以暴露中线结构。
- 在解剖显微镜下,轻轻去除中脑和脑干组织,保留含有皮层和海马的完整半球。
- 使用精细镊子轻轻剥离脑膜,最好以完整的一片取出。仔细检查脑裂中是否残留有隐藏的脑膜,并彻底清除。
- 将解剖好的脑组织转移至超净工作台。使用1 mL移液器吸除解剖液,加入新鲜的解剖液。
- 使用无菌手术刀片将组织切碎。
- 将切碎的组织转移至含有5 mL消化液的15 mL离心管中。将离心管置于37º在37°C水浴中孵育15分钟,每5分钟轻轻振荡试管,以确保酶与组织充分作用。
- 孵育后,让组织沉降到管底。吸除上清液,加入5 mL解离培养基。
- 将试管倒置5次以洗涤组织。静置3分钟,使组织沉淀,然后使用新鲜的解剖液重复洗涤过程三次。
- 最后一次洗涤后,吸除上清液,加入2.5 mL解剖培养基和2.5 mL维持培养基。
- 使用10 mL移液管将溶液上下吹打10–15次,以充分混悬组织。
- 让离心管静置3分钟,使组织沉淀。将上清液(含细胞)转移至新的50 mL锥形管中。
- 向含有已沉淀组织的原管中加入 5 mL MEM 培养基。用 10 mL 移液管再吹打 10–15 次,直至大部分组织块消失。
- 将细胞悬液通过无菌滤器 40 µm 细胞滤筛过滤至含有5 mL维持培养基的洁净50 mL锥形管中。
- 将过滤后的细胞悬液在200 × g下离心 × 室温下,5 分钟,离心力为 g。
- 移除上清液,然后轻轻敲击离心管以松动细胞沉淀。
- 加入5 mL MEM培养基,上下吹打10次以重悬细胞沉淀。将细胞悬液置于37º细胞计数时使用 C 水浴。
- 稀释 10 μL 细胞悬液的 90 µL MEM培养基。使用移液器充分混匀 200 µL 移液器吸头
- 添加 20 μL 稀释后的细胞悬液 20 µL 用台盼蓝染色,使用血细胞计数板对细胞进行计数。
- 在培养容器中接种细胞,具体如下:对于24孔板,接种2 × 10⁵ 每孔细胞数;对于6孔板,接种5 × 10⁵ 每孔细胞数;对于6 cm培养皿,接种1 × 10⁶ 每皿细胞数
- 将培养板或培养皿放入组织培养箱中。避免将细胞在室温下放置过长时间。
- 在接种后4 h,于显微镜下观察细胞,以确认其已贴附于基质。
- 铺板后24小时,将培养基更换为新鲜的维持培养基。
- 每2至3天更换一半新鲜维持培养基,以维持培养。
- 7天后,细胞应达到约80%融合度,即可用于实验。
注意:为确保星形胶质细胞培养的最佳条件,所有操作步骤均须在无菌环境中进行,最好在层流罩内完成,以避免污染。此外,确保所有试剂均已预热至 37°C 在适用的情况下,去除软脑膜时需格外仔细,残留的脑膜组织可能干扰细胞培养。此外,在细胞接种和计数过程中,应避免将细胞长时间置于室温下,以维持细胞的活力与完整性。
3. 慢病毒颗粒的制备与转导
注意:示意图见图2。
- 在含有新鲜培养基(表1)的10 cm2 培养皿中接种HEK293T细胞。
- 将细胞在37ºC培养箱中培养过夜,使其融合度达到50%–60%。
- 在1 mL Opti-MEM中加入20 µg编码GFAP或其变体的慢病毒质粒、5.6 µg包装载体和1.8 µg包膜载体。
- 向含DNA的溶液中加入45 µL转染试剂。
- 轻轻混匀,并在室温下孵育15分钟。
- 将转染液直接加入HEK293T细胞中,在37°C细胞培养箱中孵育4小时。
- 吸除转染液,并更换为新鲜培养基。
- 继续培养细胞2天。
- 收集细胞培养上清液,并更换为新鲜培养基。
- 次日再次收集细胞培养上清液,并更换为新鲜培养基。
- 第三天收集最终的细胞培养上清液。
- 将步骤3.9–3.11收集的上清液合并至一个50 mL锥形管中。
- 使用60 mL注射器将合并后的上清液通过0.45 µm滤膜过滤,以去除碎片。
- 将过滤后的上清液在室温下以1,400 × g离心5分钟,以去除死细胞。
- 将澄清的上清液转移至超速离心管中。
- 在4°C下以100,000 × g离心70分钟,沉淀慢病毒颗粒。
- 小心移除上清液,避免扰动管底的沉淀。
- 通过轻柔吹打,用600 µL Opti-MEM培养基重悬沉淀。
- 将重悬的慢病毒颗粒分装为每份50 μL,保存于-80°C备用。
- 在6孔板中接种原代星形胶质细胞,并使其融合度达到50%–70%(第2节)。
- 将所需量的慢病毒颗粒置于冰上解冻。
- 向每孔加入50 µL慢病毒颗粒,并补充8 µg/mL Polybrene。
- 轻轻摇动培养板,确保病毒和Polybrene均匀分布。将细胞置于37ºC细胞培养箱中孵育4–8小时。
- 小心吸除含病毒的培养基,避免扰动细胞。
- 更换为新鲜培养基,并继续培养2–3天。
- 对转导后的细胞进行下游分析,如使用免疫荧光显微镜观察中间丝网络的形成,或通过免疫印迹检测GFAP表达。
注意:操作慢病毒颗粒时,必须使用适当的个人防护装备(PPE)以确保安全。此外,为保持病毒颗粒的完整性,应避免反复冻融。
4. 免疫荧光显微镜
- 轻轻吸去含有贴壁细胞盖玻片的孔板中的培养基,避免扰动细胞。
- 使用以下固定液之一固定细胞:对于原代星形胶质细胞,使用 3.2% (wt/vol) 多聚甲醛;对于星形胶质细胞-神经元共培养体系,使用 3.2% (wt/vol) 多聚甲醛和 4% (wt/vol) 蔗糖。
- 在室温下将盖玻片置于固定液中孵育 15 分钟。除非另有说明,后续所有步骤均在室温下进行。
- 用磷酸盐缓冲液 (PBS) 漂洗固定后的细胞三次,以去除残留固定液。
- 将细胞在封闭缓冲液(含 5% (vol/vol) 正常山羊血清的 PBS)中加入 0.2% (vol/vol) Triton X-100,于室温孵育 15 分钟,以通透细胞膜。
- 用 PBS 漂洗通透处理后的细胞三次。
- 根据生产商推荐的浓度,将一抗用封闭缓冲液稀释,配制一抗溶液。
- 将盖玻片置于一抗溶液中,在室温下孵育至少 1 小时。
- 用 PBS 漂洗盖玻片三次,以去除未结合的一抗。
- 将偶联荧光染料的山羊抗小鼠和山羊抗兔二抗按 1:500 稀释比例溶于封闭缓冲液中,配制二抗溶液。
- 将盖玻片置于二抗溶液中,在室温下孵育 1 小时。
- 用 PBS 漂洗盖玻片三次,以去除未结合的二抗。
- 使用镊子小心地将盖玻片转移至载玻片上。
- 用封片剂封固盖玻片,以保持荧光信号稳定。
- 用透明指甲油轻轻封固盖玻片边缘,防止移动和封片剂蒸发。
- 待指甲油完全干燥后,再进行成像操作。
- 制备好的载玻片可用于免疫荧光显微镜或共聚焦显微镜成像。
注意:为确保实验成功,所有试剂(如 PBS、封闭缓冲液和抗体)应新鲜配制并保持无菌。操作盖玻片时需小心,避免损伤细胞或刮伤玻璃表面。在抗体孵育过程及封片后应避免光照,以防荧光信号发生光漂白。此外,应根据具体的实验条件优化抗体浓度和孵育时间。
5. 免疫印迹
- 用 PBS 清洗星形胶质细胞两次,以去除残留的培养基和碎片。
- 将培养板或培养皿置于冰上,以最大限度减少蛋白质降解。每次处理一个孔,彻底吸除 PBS。
- 加入含有蛋白酶和磷酸酶抑制剂的预冷放射免疫沉淀分析(RIPA)裂解缓冲液。对于 6 孔板,每孔加入 250 µL;对于 6 cm 培养皿,每皿加入 500 µL。
- 使用细胞刮刀将所有星形胶质细胞彻底刮入 RIPA 缓冲液中(50 mM Tris,pH 8.0,150 mM NaCl,1% (wt/vol) NP-40,5 mM 乙二胺四乙酸(EDTA),0.5% (wt/vol) 脱氧胆酸钠,以及 0.1% (wt/vol) SDS,1 mM 苯甲基磺酰氟 [PMSF])。
- 将刮下的细胞转移至置于冰上的 1 mL 玻璃匀浆器(Dounce 匀浆器)中。用研杵轻轻研磨细胞进行匀浆。
- 将匀浆后的细胞裂解物在冰上孵育 10 分钟,以确保完全裂解。保留 20 µL 总裂解物用于通过二辛可宁酸(BCA)法测定蛋白浓度。
- 在 4ºC 下以 13,500 × g 离心 10 分钟,沉淀不溶性蛋白。
- 小心将上清液转移至洁净离心管中。保留 20 µL 上清液用于通过 BCA 法测定蛋白浓度。
- 通过甲醇/氯仿沉淀法浓缩上清液。
- 将所得沉淀物重悬于 0.1 mL Laemmli 上样缓冲液中(25 mM Tris-HCl(pH 6.8),1% (w/v) SDS,12.5% (v/v) 甘油,0.01% (w/v) 溴酚蓝,355 mM β-巯基乙醇)。
- 将沉淀物用 Laemmli 上样缓冲液重悬,并通过超声处理使其分散。
- 以 10% 功率进行三次超声处理,每次脉冲 0.5 秒。保持探头尖端朝向管底,避免产生泡沫。
- 对 RIPA 上清液和总细胞裂解物均进行二辛可宁酸(BCA)蛋白定量分析 。
- 将蛋白样品上样至 12% 或 15% 的十二烷基硫酸钠聚丙烯酰胺凝胶电泳(SDS-PAGE)凝胶中。在 200 V 恒定电压下电泳 45 分钟。
- 使用湿转系统将凝胶中的蛋白转移至硝酸纤维素膜。按照制造商说明,在 100 V 条件下转膜 70 分钟。
- 将膜置于含 5% (wt/vol) 牛血清白蛋白(BSA)的 Tris 缓冲盐水(含 0.1% (wt/vol) Tween-20,TBST)中,在室温下轻轻摇动封闭至少 1 小时。
- 根据制造商说明,用 TBST 稀释一抗。在 4ºC 轻轻摇动孵育过夜。
- 用 TBST 洗涤膜三次,每次洗涤 5 分钟。
- 用 TBST 按 1:500 比例稀释荧光或辣根过氧化物酶(HRP)标记的二抗(或按制造商指定比例)。
- 在室温下轻轻摇动孵育二抗溶液 1 小时。
- 用 TBST 洗涤膜三次,每次洗涤 5 分钟。
- 根据制造商说明,使用荧光或增强化学发光(ECL)方法显影膜。
- 使用成像系统观察蛋白条带。
注意:为防止蛋白质降解,除抗体孵育和封闭步骤外,所有操作均应在冰上或 4ºC 进行。确保所有缓冲液、试剂和设备在使用前均已预冷,以在整个过程中维持低温。避免上样过量导致条带拖尾,并根据具体实验优化抗体浓度和孵育时间。
6. 共培养用原代神经元的制备
- 使用二氧化碳作为吸入性麻醉剂处死怀孕大鼠。取出子宫并置于无菌培养皿中。
- 从胎鼠中取出脑组织,并放入含有解剖液的6 cm培养皿中。确保组织始终浸没在溶液中,以防止干燥。
- 按照前述方法(步骤2.7)解剖分离大脑皮层并去除软脑膜。
- 将解剖后的组织转移至超净工作台。
- 使用1 mL移液器吸除解剖液,并向培养皿中加入新鲜的解剖液。
- 使用无菌手术刀片将脑组织切成小块。
- 将切碎的组织转移至含有5 mL预热至37 ºC的神经元解离培养基(表1)的15 mL离心管中。
- 将离心管置于37 ºC水浴中孵育30分钟,每隔5分钟轻轻振荡一次,以确保酶与组织充分作用。
- 从水浴中取出离心管,静置使组织沉降至管底。使用1 mL移液器吸头小心吸除上清液,避免扰动组织沉淀。
- 向离心管中加入5 mL预热的解剖液,轻轻倒置5次以洗涤组织。静置3分钟使组织沉淀,然后重复洗涤过程三次,每次均使用新鲜解剖液。
- 最后一次洗涤后,吸除上清液,向管中加入2.5 mL解剖液和2.5 mL铺板培养基。
- 使用10 mL移液器将溶液上下吹打10–15次,进行组织吹打分散。
- 静置离心管3分钟,待组织沉淀后,将上清液(含细胞)转移至新的50 mL锥形离心管中。
- 向原离心管(含沉淀组织)中加入5 mL铺板培养基。
- 再次使用10 mL移液器吹打10–15次,直至大部分组织块消失。
- 将细胞悬液通过无菌40 µm细胞滤网,滤入含有5 mL铺板培养基的洁净50 mL锥形离心管中。
- 在室温下以200 × g离心5分钟。
- 吸除上清液,轻轻敲击离心管使细胞沉淀松散。加入5 mL预热的铺板培养基,上下吹打10次以重悬细胞沉淀。
- 按照前述方法(步骤2.21和2.22)进行细胞计数。细胞计数过程中将细胞悬液保持在37°C水浴中。
- 将神经元直接接种于培养容器中的原代星形胶质细胞上层,具体如下:24孔板每孔接种1.45 × 10⁵个细胞;6孔板每孔接种5 × 10⁵个细胞;6 cm培养皿每皿接种1 × 10⁶个细胞。
- 将培养板或培养皿置于设定为37ºC、5% CO₂的组织培养孵箱中。避免细胞在室温下长时间放置,以维持细胞活性。
- 铺板后4小时,将铺板培养基更换为神经元维持培养基。
- 每隔3–4天更换一半的新鲜神经元维持培养基。
注意:共培养的神经元在体外培养7–10天(DIV)后即可用于实验。
结果
不同时间点分离后原代星形胶质细胞培养的形态学概述如下所示 图3皮质细胞悬液接种后,部分星形胶质细胞在最初24小时内即贴附于培养皿表面。图 3A)。在最初的3到5天内,培养物中含有细胞碎片和正在死亡的神经元(图 3B),因为培养基已优化,可支持星形胶质细胞的存活与生长。接种后7天,星形胶质细胞开始形成单层,表明培养已成功建立图3C)。在培养中维持的离解神经元会经历明确的分化阶段,最终发育出清晰的神经突图3D–F)。这些神经元可培养在玻璃盖玻片上形成单层,或接种于原代星形胶质细胞之上以进行共培养实验,从而为研究星形胶质细胞-神经元相互作用提供了一个多功能平台。
按照本方案制备来自正常大鼠的原代星形胶质细胞后,我们研究了与 Alexander 病(AxD)相关的 GFAP 突变对中间纤维(IF)网络形成的影响。为便于开展此项研究,以 pLEX-MCS 慢病毒载体中的野生型 GFAP 为模板,通过定点诱变技术构建了野生型 GFAP(图 4A)以及多种突变型 GFAP,包括 E373K(图 4B)、R376W(图 4C)、D395Y(图 4D)、D417A(图 4E)和 Q426L(图 4F)(参见补充文件 1和补充图 1)。随后,通过慢病毒感染将 GFAP 表达载体转导至原代星形胶质细胞中。感染过程包括在含 8 μg/mL 多聚素(polybrene)的条件下,以感染复数(MOI)为 10 的慢病毒孵育细胞。在此条件下,免疫荧光显微镜检测显示约 70%–80% 的星形胶质细胞成功被感染。采用双标免疫荧光显微镜分析转导的 GFAP 与内源性大鼠 GFAP 的分布关系。使用抗人 GFAP 单克隆抗体检测转导的人源 GFAP(图 4A–F,绿色通道),而使用可识别大鼠 GFAP 和转导人源 GFAP 的抗 panGFAP 多克隆抗体显示总体 GFAP 分布情况(图 4A–F,红色通道)。在表达野生型 GFAP 的星形胶质细胞中,纤维状网络均匀分布于整个细胞质中(图 4A)。相比之下,突变型 GFAP(图 4B–F,绿色通道)主要形成细胞质内聚集体,这些聚集体常常破坏并导致内源性中间纤维网络塌陷(图 4B–F,红色通道)。通过免疫印迹法检测全细胞裂解液,确定野生型与突变型 GFAP 的相对表达水平(图 4G)。转导野生型(图 4G,第 2 泳道)或突变型(图 4G,第 3–7 泳道)GFAP 均可产生预期大小的蛋白,且表达水平相当。为评估突变型 GFAP 形成的细胞质聚集体是否相较于野生型蛋白具有不同的溶解特性,采用放射免疫沉淀分析(RIPA)缓冲液提取转导后的星形胶质细胞16。对上清液(图 4H)和沉淀物(图 4I)组分进行免疫印迹分析,结果显示其溶解性存在显著差异。在表达野生型 GFAP 的细胞中,大部分蛋白可被有效提取至上清液中(图 4H,第 2 泳道)。相反,突变型 GFAP 更难被提取,大部分蛋白保留在沉淀物组分中(图 4I,第 3–7 泳道)。这些结果表明,与 AxD 相关的 GFAP 突变可促进不溶性聚集体的形成,从而改变原代星形胶质细胞中 GFAP 的溶解特性。
为了探究R237H GFAP突变及过表达如何影响中间丝的组织结构和中间丝网络的形成,我们分析了来源于野生型(WT)大鼠或携带纯合R237H基因敲入突变的Alexander病(AxD)模型大鼠的原代星形胶质细胞中GFAP形成网络的能力13。免疫荧光共聚焦显微镜结果显示,在WT星形胶质细胞中,GFAP形成了分布于整个细胞质中的结构良好的丝状网络,并与波形蛋白(vimentin)中间丝共定位(图5A)。相比之下,在纯合突变型星形胶质细胞中,约70%的GFAP阳性细胞含有明显的细胞质聚集物(图5B)。这些聚集物常常破坏波形蛋白中间丝网络,导致其塌陷并聚集成大的核周聚集物。GFAP阳性细胞中含聚集物的比例量化结果见(图5C)。为在蛋白水平评估GFAP的表达情况,我们从WT和纯合突变型星形胶质细胞中制备了全细胞裂解液。使用抗全GFAP抗体进行免疫印迹检测显示,纯合突变型星形胶质细胞中的总GFAP水平略有升高(图5D,第2道),较WT星形胶质细胞(图5D,第1道)增加了1.3倍(图5E)。为确定突变型GFAP的过表达是否改变了可溶性与不可溶性GFAP池之间的动态平衡,我们分离了上清液和沉淀组分,并通过免疫印迹进行分析(图5F)。GFAP在上清液与沉淀组分之间分布的量化结果见(图5G)。在WT星形胶质细胞中(图5F,第1和第2道),GFAP在上清液和沉淀组分中的分布大致均等。然而,纯合突变型星形胶质细胞在沉淀组分中表现出更高的GFAP水平(图5F,第4道),表明GFAP更多地被隔离进入细胞质聚集物中。值得注意的是,纯合突变型星形胶质细胞中GFAP聚集物的积累还与沉淀组分中泛素化GFAP蛋白的检出相关(图5F,第4道),进一步支持这些细胞的细胞质聚集物中存在病理修饰的GFAP。
星形胶质细胞在维持神经元健康和功能方面发挥着关键作用。为了确定星形胶质细胞中R237H GFAP突变体的累积是否通过非细胞自主机制影响神经元,我们采用了星形胶质细胞–神经元共培养体系。将大鼠胚胎第18天(E18)的原代神经元接种于培养10–12天的原代星形胶质细胞上,并继续成熟培养10天。随后对共培养体系进行固定,并使用抗βIII微管蛋白抗体进行免疫染色,以评估神经元形态。与野生型星形胶质细胞(图6B)共培养的神经元(图6A)表现出显著更长的神经突生长(图6C),相比之下,与纯合突变型星形胶质细胞(图6E)共培养的神经元(图6D)则明显较短。定量分析显示,与野生型星形胶质细胞共培养的神经元相比,与纯合突变型星形胶质细胞共培养的神经元其神经突长度减少了76%(图6G)。这些结果表明,突变型GFAP在星形胶质细胞中的累积严重损害了其支持神经元正常发育和形态的能力。这种功能障碍可能促成了Alexander病(AxD)典型的神经退行性表型。
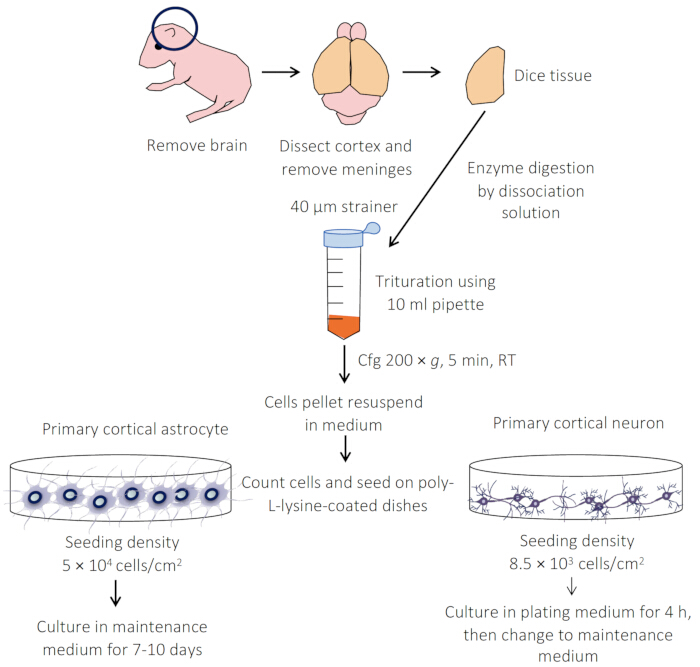
图1:原代星形胶质细胞和神经元培养方案的总体流程。 从组织中仔细分离大脑皮层,使用胰蛋白酶或木瓜蛋白酶对组织进行酶消化。随后将解离的细胞接种至预先准备好的盖玻片、培养皿或培养板上。星形胶质细胞和神经元均在维持培养基中培养,可维持培养长达28天。请点击此处查看该图的放大版本。
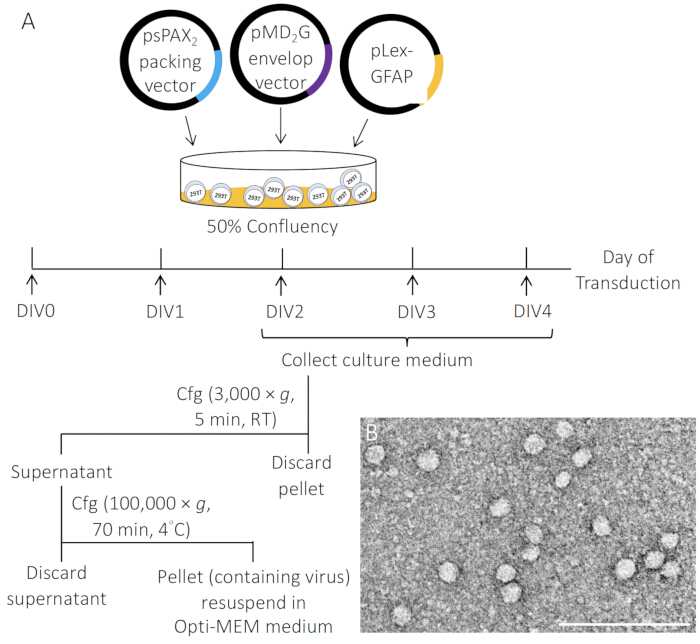
图2慢病毒颗粒产生的示意图. (A) 按照4:3:1的比例,使用转染试剂将pLEX-MCS–GFAP载体、psPAX2包装载体和pMD2.G包膜载体共转染293T细胞,短暂产生慢病毒。含有慢病毒颗粒的培养上清液在转染后2–4天收集 体外 (体外培养天数),经 0.45 μm 滤膜过滤μm 过滤以去除碎片,并通过高速离心进行浓缩。B) 慢病毒颗粒的电子显微镜图像。比例尺,500 nm。 请点击此处以查看此图的放大版本。
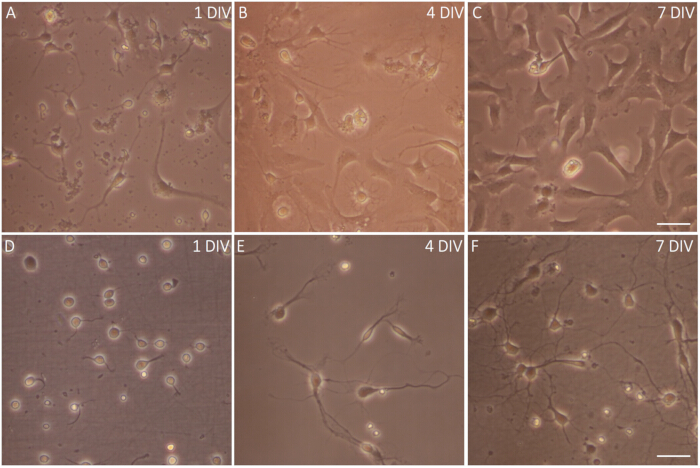
图3:原代星形胶质细胞和神经元的相差显微图像。 (A–C)原代星形胶质细胞培养物在分离后不同时间点的形态学概览。(A)接种后第一天,部分星形胶质细胞已贴附于培养瓶底部。(B)接种后第四天,星形胶质细胞层开始形成。(C)接种后第七天,星形胶质细胞层已接近汇合状态。需注意,在这些培养条件下,神经元几乎完全缺失。 (D–F)接种后不久,(D)皮层神经元开始从胞体周围延伸出片状结构。(E)在随后数天的培养过程中,(F)神经元分化持续进展,部分神经元发育出分支状突起,表明更复杂的神经元网络正在形成。比例尺:20 μm。 请点击此处查看该图的放大版本。
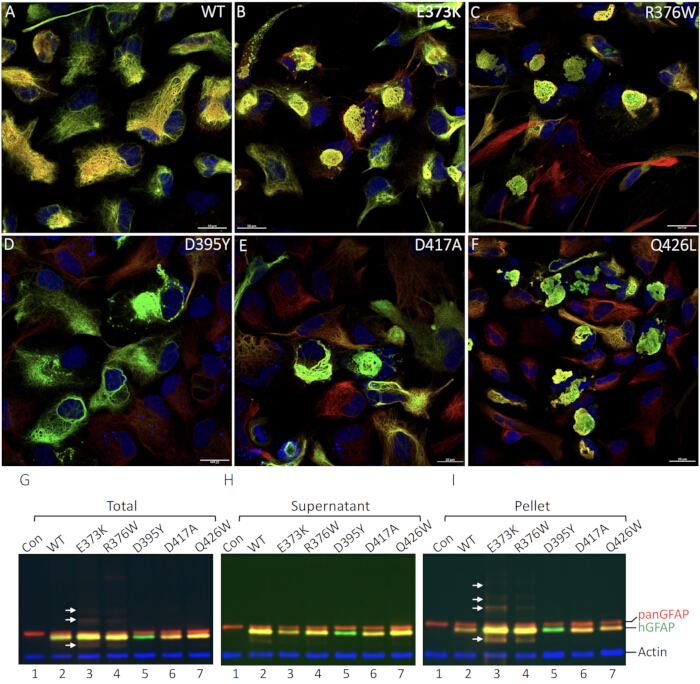
图4:野生型和突变型GFAP在原代星形胶质细胞中的丝状结构组织与溶解特性。(A–F)原代大鼠星形胶质细胞分别转导了野生型(A)或与Alexander病(AxD)相关的突变体,包括E373K(B)、R376W(C)、D395Y(D)、D417A(E)和Q426L(F)GFAP。细胞经固定后,使用抗人GFAP抗体(绿色通道)和抗panGFAP抗体(红色通道)进行免疫荧光染色。图中显示合并图像,细胞核通过DAPI染色(蓝色通道)显示。野生型GFAP主要组装成丝状网络结构(A),而大多数转导的突变型GFAP蛋白在细胞质中形成聚集体(B–F)。比例尺,20 μm。(G–I)突变型GFAP表达水平及溶解特性的分析。原代星形胶质细胞未经转导(G–I,第1道)或转导了指定的GFAP构建体(G–I,第2–7道)。转导后72小时,用RIPA裂解缓冲液裂解细胞,并对所得的总裂解液(G)、上清液(H)和沉淀物(I)组分进行免疫印迹分析,使用抗人GFAP抗体(绿色通道)和抗panGFAP抗体(红色通道)。以抗肌动蛋白抗体(蓝色通道)杂交的印迹作为上样对照。右侧标注了人GFAP(hGFAP)、总GFAP(panGFAP)和肌动蛋白的位置。需注意的是,携带D395Y GFAP突变的星形胶质细胞在抗panGFAP抗体染色的红色通道中未见信号,可能是由于该突变破坏了抗体识别的表位所致。当星形胶质细胞转导E373K GFAP时,免疫印迹分析显示在单体GFAP条带上下方出现额外的免疫阳性条带(箭头所示)。下方条带可能为降解产物,上方条带则对应于发生泛素化修饰的GFAP。请点击此处查看该图的放大版本。
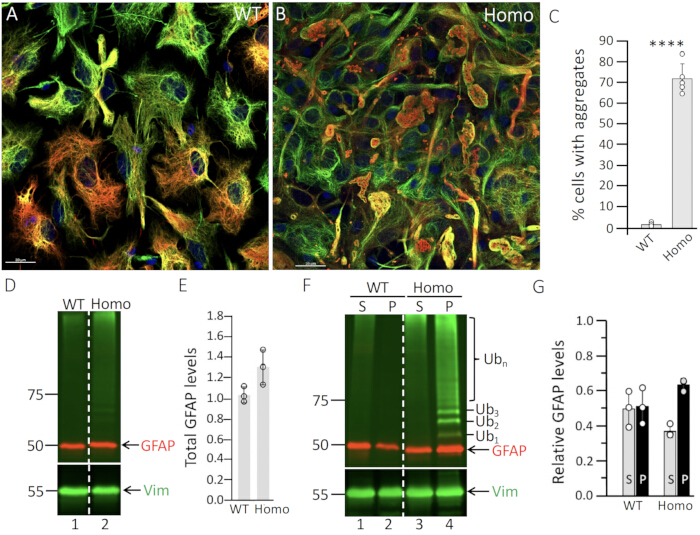
图5:源自纯合突变大鼠的星形胶质细胞中 GFAP 的聚集。 来自(的原代星形胶质细胞A)野生型或(B) 纯合突变大鼠培养至14天体外培养期(DIV)后,使用针对GFAP(红色通道)和波形蛋白(vimentin,绿色通道)的抗体进行双标免疫荧光显微镜检测。图中显示合并图像,细胞核经DAPI染色(蓝色通道)显示。比例尺, 20 μm. 在野生型星形胶质细胞中(A),GFAP 形成了与波形蛋白共定位的丝状中间纤维网络。相比之下,大多数纯合突变型星形胶质细胞中含有同时表达 GFAP 和波形蛋白的 GFAP 聚集体(B). (C) 对野生型和纯合突变型星形胶质细胞中携带聚集体的细胞进行定量。数据来自三次独立实验,以均值 ± 标准误(SE)表示,并呈现为柱状图。统计分析采用双尾 t 检验;****p < 0.0001. (D–G) GFAP 在野生型和纯合突变型星形胶质细胞中的表达水平及溶解性特征。在体外培养第14天(14 DIV)时,使用 RIPA 缓冲液提取原代星形胶质细胞的总细胞裂解物(D),以及上清液(S)和沉淀(P)组分(F)通过免疫印迹分析,分别使用针对 GFAP(红色通道)、泛素(绿色通道)和波形蛋白(绿色通道)的抗体进行检测。左侧显示分子质量标记物(单位为 kDa),右侧标明 GFAP、波形蛋白(Vim)和泛素(Ub)的位置。Ub1–3 代表单、双和三泛素化的 GFAP 蛋白,而 Ubn 指示多聚泛素化的 GFAP 蛋白。图中虚线位于(D 和 F) 表示泳道在同块凝胶上电泳,但不连续。注意,泛素化的 GFAP 蛋白仅在纯合突变型星形胶质细胞的沉淀组分中被检测到F,第4泳道)。GFAP水平的定量结果如图所示(E,G)。每个白点代表一个生物学重复(n = 3)。数据以均值 ± 标准差表示。 请点击此处以查看此图的放大版本。
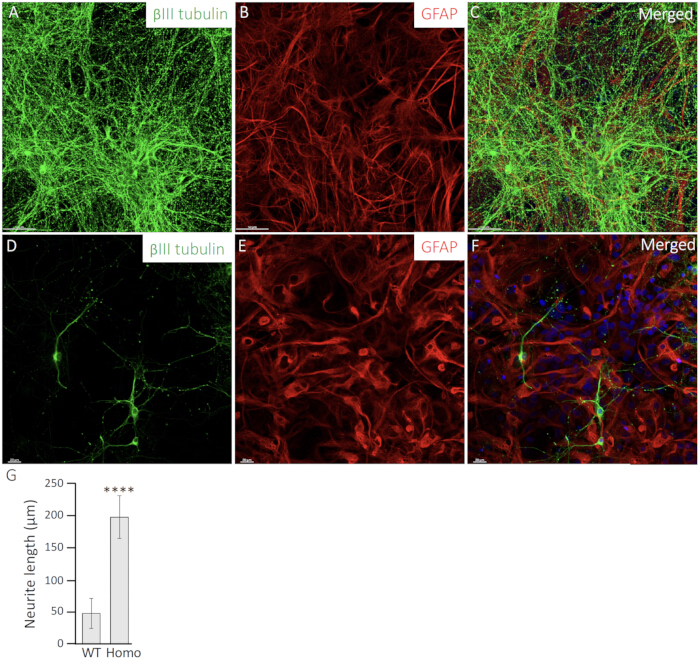
图6:纯合突变星形胶质细胞中突变型GFAP的表达改变神经元轴突形态。 将原代神经元(A、D)分别与野生型星形胶质细胞(B)或纯合突变型星形胶质细胞(E)共培养。使用抗βIII微管蛋白抗体(绿色通道)对神经元进行免疫染色以显示其形态(A、D),星形胶质细胞(B、E)则使用抗GFAP抗体标记(红色通道)。合并图像如图(C、F)所示,细胞核经DAPI染色(蓝色通道)。比例尺为20 μm。(G)与野生型或纯合突变型星形胶质细胞共培养的神经元的轴突长度被量化,并以柱状图表示。数据以均值±标准差表示。采用双尾t检验评估统计学显著性,野生型与R237H突变型星形胶质细胞之间的显著差异以 ****P < 0.0001 表示。请点击此处查看该图的放大版本。
| 组分 | 终浓度 | |
| 解剖液 | 10× HBSS | 10% |
| 1 M HEPES , pH 7.4 | 10 mM | |
| 100× 青霉素-链霉素 | 1× | |
| 消化液 | 2.5% 胰蛋白酶 | 0.25% |
| 1 M HEPES , pH 7.4 | 10 mM | |
| 150 mM CaCl2 | 1.5 mM | |
| DNase I (15,000U) | 80 U | |
| 10× HBSS | 10% | |
| 维持培养基 | 胎牛血清 | 10% |
| 100× 青霉素-链霉素 | 1× | |
| MEM | 97% | |
| 神经元消化液 | 100 mM 丙酮酸钠 | 1 mM |
| 10% 葡萄糖 | 0.10% | |
| 1 M HEPES, pH 7.4 | 10 mM | |
| 0.5 M EDTA | 5 mM | |
| 2 mg/mL 半胱氨酸 | 0.2 mg | |
| 木瓜蛋白酶 | 67 U | |
| 150 mM CaCl2 | 1.5 mM | |
| DNase I (15,000U) | 80 U | |
| 神经元铺板培养基 | 胎牛血清 | 5% |
| GlutaMax-1 | 1% | |
| 10% 葡萄糖 | 0.06% | |
| 100× 青霉素-链霉素 | 1× | |
| 神经元维持培养基 | Neurobasal 培养基 | 97% |
| B27 | 1/50 | |
| GlutaMax-1 | 0.5 mM | |
| 100× 青霉素-链霉素 | 1% | |
| 293T 细胞培养基 | 含 10% DMEM | 90% |
| 胎牛血清 | 10% | |
| 谷氨酰胺 | 2 mM | |
| 100× 青霉素-链霉素 | 1% |
表1:培养基的成分。
补充文件 1:GFAP 突变型慢病毒载体构建物。 GFAP 突变通过定点诱变技术获得。请点击此处下载该文件。
补充图1:通过定点诱变生成的GFAP基因突变示意图。请点击此处下载该文件。
讨论
原代星形胶质细胞培养已显著推动了我们对星形胶质细胞在健康与疾病中作用的理解。在McCarthy和de Vellis21开创性工作的基础上,这些培养体系对于研究Alexander病(AxD)至关重要,因其能够深入探究星形胶质细胞特异性过程,特别是AxD突变对GFAP组装及聚集体形成的影响。
原代星形胶质细胞的成功分离与培养依赖于多个关键步骤,这些步骤影响细胞的存活率、纯度和可重复性。脑组织的快速而精确的解剖,结合对胰蛋白酶浓度和消化时间的仔细优化,对于防止组织降解并确保完全解离为单细胞悬液至关重要。轻柔吹打及使用无菌细胞筛网可进一步提高细胞纯度,去除碎片和细胞团块。随后进行低速离心,并用新鲜培养基小心重悬细胞,有助于维持较高的细胞活力和生长状态,同时减少实验变异性和污染风险。细胞分离后,表面包被材料的选择对于确保细胞牢固贴壁并实现实验目标至关重要。聚-L-赖氨酸(PLL)因其成本效益高且能有效促进细胞强粘附而常被使用,但其他包被材料如层粘连蛋白22,23和胶原蛋白24 可能更接近模拟 体内 条件或促进特定的细胞研究。理解这些影响有助于研究人员设计出能够获得相关且可重复结果的实验。
尽管存在技术上的挑战,该方案仍然不可或缺,因其提供了比永生化细胞系更具生理相关性的模型。然而,必须认识到其存在若干局限性:1)星形胶质细胞的分离与培养过程技术要求较高,需要专门的技能和设备;与已建立的细胞系相比,该方法耗时更长,且易受变异性影响,可能对实验的可重复性造成影响。2)星形胶质细胞在不同脑区表现出显著的区域异质性 体内25,26,且在中枢神经系统(CNS)不同区域存在不同的细胞亚群。原代星形胶质细胞培养通常来源于特定脑区,如大脑皮层或海马,可能无法完全反映CNS内星形胶质细胞群体的多样性。3)星形胶质细胞的分离与培养过程常因创伤性操作、酶消化及暴露于人工培养环境而诱导其进入反应性状态。尽管这种反应性状态有助于研究反应性星形胶质增生,但其可能无法准确代表星形胶质细胞在损伤或疾病中的生理反应 体内这可能导致非生理性的假象,从而影响实验结果。4) 原代星形胶质细胞培养缺乏大脑中复杂的微环境 体内,包括与神经元、小胶质细胞、内皮细胞以及细胞外基质成分的相互作用。这些相互作用对星形胶质细胞的功能及其对刺激的响应至关重要,缺乏这些因素会限制完全模拟其生理功能的能力 体内 行为。5) 来源于啮齿类动物(如大鼠或小鼠)的原代星形胶质细胞在分子和功能特性上可能与人类星形胶质细胞存在显著差异27,28这些因素可能引入非生理性的假象,凸显了谨慎设计实验并合理解读结果的重要性。为应对这些挑战,可增加额外的纯化步骤,例如磁珠细胞分选29 或基于FACS的分离30,可能获得更纯的星形胶质细胞群体。尽管这些方法增加了实验方案的复杂性,但有助于更精确地研究星形胶质细胞的特异性功能。
与某些先进方案不同,本文所述方法依赖于常规的细胞培养材料,无需昂贵的设备。此外,本方案通过在细胞分离后直接接种培养,省去了额外的摇床振荡或传代步骤31,从而简化了原代培养的制备过程。该方法可能更有利于维持胶质纤维酸性蛋白(GFAP)的表达以及星形胶质细胞的活化状态。该方法操作简便、可重复性强,适用于来自中枢神经系统(CNS)任何区域的细胞,为研究人员提供了一种多功能的工具。通过本方案富集获得的原代星形胶质细胞可保留其天然的细胞结构、信号通路及功能特性,因此适用于多种细胞生物学和生物化学研究16,17,32。在具备中等技术水平并谨慎操作的前提下,这些细胞培养物可长期维持高存活率,并为研究星形胶质细胞的形态、功能和行为提供有价值的见解。尽管本方案专门设计用于从出生后大鼠大脑皮层中分离星形胶质细胞,但也可轻松调整用于从小鼠或其他脑区(如海马或脊髓)中分离细胞。这种灵活性使该方法在神经科学研究中具有广泛的应用前景。在疾病建模方面,来源于AxD模型大鼠的星形胶质细胞能够重现与疾病相关的GFAP突变、Rosenthal纤维形成以及对压力的病理反应33,为研究AxD的发病机制提供了强有力的平台。
来源于正常大鼠的原代星形胶质细胞可通过慢病毒转导进行遗传学操作,以研究AxD突变对GFAP组装及聚集体形成的影响9,33。该过程中的关键步骤之一是选择合适的提取缓冲液,因为它显著影响转导星形胶质细胞中突变型GFAP溶解特性的评估34。RIPA缓冲液(放射免疫沉淀分析缓冲液)含有离子型和非离子型去污剂,能够有效溶解GFAP丝状结构,同时保留聚集体10,有助于实现本研究目标所依赖的全面生化分析。
总体而言,原代星形胶质细胞培养为研究星形胶质细胞生物学及疾病机制(尤其是 Alexander 病)提供了一个多功能且强大的平台。通过优化实验方案并克服现有局限性,研究人员可提高实验的可重复性与可靠性,使该方法成为深入理解星形胶质细胞功能以及发现与 GFAP 相关星形胶质细胞病治疗靶点的关键手段。
披露
作者无任何利益冲突需要披露。
致谢
感谢 Tracy Hagemann 博士(美国威斯康星大学麦迪逊分校怀斯曼中心)提供 R237H 基因敲入大鼠。本研究由国家科学与技术委员会资助(项目编号:111-2320-B-007-008 和 112-2320-B-007-006,授予 N.-H. L. 和 M.-D. P.)。作者感谢中国台湾国立清华大学共聚焦成像核心实验室的支持,该实验室由国家科学与技术委员会(NSTC-114-2740-M-007-001)资助。我们还感谢中国台湾国立清华大学仪器中心提供电子显微镜的使用权限。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1 M HEPES,pH 7.4 | Gibco | 15630-080 | |
| 100× 青霉素-链霉素溶液 | Gibco | 15140-122 | |
| 10× 亨克氏平衡盐溶液(HBSS) | Gibco | 14180-046 | |
| 2.5% 胰蛋白酶 | Gibco | 15090046 | |
| 30% 丙烯酰胺/双丙烯酰胺溶液 37.5:1 | Biorad | 1610158 | |
| 抗GFAP抗体 | Cell Signaling Technology | 12389 | |
| 抗人GFAP抗体 | Biolegend | 837202 | 克隆号 SMI21 |
| 抗panGFAP抗体 | Agilent | GA524 | |
| 抗泛素抗体 | Millipore | ST 1200 | 克隆号 FK2 |
| 抗波形蛋白抗体 | Sigma-Aldrich | V6389 | 克隆号 V9 |
| 抗-β III 微管蛋白抗体 | Biolegend | 801201 | |
| B27添加剂 | Gibco | 17504044 | |
| 氯化钙(CaCl2) | Arcos | 34961 | |
| 细胞培养相关试剂 | |||
| ChemiDoc成像系统 | BioRad | NA | |
| 考马斯亮蓝染料 | USB | 32826 | |
| 半胱氨酸 | Sigma-Aldrich | C1276 | |
| 二硫苏糖醇(DTT) | UR | DTT | |
| DNase I | Sigma-Aldrich | D5025 | |
| 达恩斯匀浆器 | Wheaton | ||
| 杜尔贝科改良伊格尔培养基(DMEM) | Corning | 10-013-CM | |
| 无内毒素质粒DNA提取试剂盒 | Qiagen | 12943 | |
| 增强型化学发光(ECL)试剂 | PerkinElmer | NEL 105001 | |
| 乙二胺四乙酸(EDTA) | USB | 15699 | |
| 胎牛血清 | Gibco | A5209401 | |
| 葡萄糖 | Sigma-Aldrich | G8270 | |
| GlutaMax | Gibco | 35050-061 | |
| 最低必需培养基(MEM) | Corning | 10-010-CVR | |
| NaCl | Honeywell | 31434S | |
| Neurobasal培养基 | Gibco | 21103049 | |
| Optima XE-90 超速离心机 | Beckman | NA | |
| 木瓜蛋白酶 | Worthington | LS003126 | |
| 苯甲基磺酰氟(PMSF) | ACROS ORGANICS | 215740050 | |
| 聚乙烯亚胺 | Sigma-Aldrich | P3143 | |
| 聚-L-赖氨酸 | Sigma-Aldrich | P6516 | |
| 氯化钾(KCl) | Honeywell | 12636 | |
| 罗丹明抗肌动蛋白抗体 | BioRad | 12004164 | |
| 十二烷基硫酸钠(SDS) | USB | 75819 | |
| 丙酮酸钠 | Gibco | 11360070 | |
| StarBright Blue 520 山羊抗小鼠IgG | Biorad | 12005867 | |
| StarBright Blue 700 山羊抗兔IgG | BioRad | 12004161 | |
| 蔗糖 | Sigma-Aldrich | S5391 | |
| SW-28 转子 | Beckman | NA | |
| TansIT-LT1 转染试剂 | Mirus | MR-MIR-2300 | |
| TEMED | USB | 76320 | |
| 三(羟甲基)氨基甲烷(Tris) | USB | 75825 | |
| 吐温X-100 | Sigma-Aldrich | T9284 | |
| β-巯基乙醇 | Sigma-Aldrich | M3148 |
参考文献
- Verkhratsky A, Nedergaard M. Physiology of astroglia. Physiol Rev. 2018;98(1):239-389.
- Eroglu C, Barres BA. Regulation of synaptic connectivity by glia. Nature. 2010;468(7321):223-31.
- Sofroniew MV. Astrogliosis. Cold Spring Harb Perspect Biol. 2014;7(2):a020420.
- Sofroniew MV, Vinters HV. Astrocytes: biology and pathology. Acta Neuropathol. 2010;119(1):7-35.
- Brandebura AN, Paumier A, Onur TS, Allen NJ. Astrocyte contribution to dysfunction, risk and progression in neurodegenerative disorders. Nat Rev Neurosci. 2023;24(1):23-39.
- Sofroniew MV. Molecular dissection of reactive astrogliosis and glial scar formation. Trends Neurosci. 2009;32(12):638-47.
- Hol EM, Pekny M. Glial fibrillary acidic protein (GFAP) and the astrocyte intermediate filament system in diseases of the central nervous system. Curr Opin Cell Biol. 2015;32:121-30.
- Brenner M, et al. Mutations in GFAP, encoding glial fibrillary acidic protein, are associated with Alexander disease. Nat Genet. 2001;27(1):117-20.
- Lin NH, Jian WS, Perng MD. Deletions in glial fibrillary acidic protein leading to alterations in intermediate filament assembly and network formation. Int J Mol Sci. 2025;26(5):1913.
- Yang AW, et al. Effects of Alexander disease-associated mutations on the assembly and organization of GFAP intermediate filaments. Mol Biol Cell. 2022;33(8):ar69.
- Lin NH, Perng MD. Experimental approaches for biochemical analysis of glial fibrillary acidic protein and its disease-associated variants. J Vis Exp. 2025;(225).
- Hagemann TL, Connor JX, Messing A. Alexander disease-associated glial fibrillary acidic protein mutations in mice induce Rosenthal fiber formation and a white matter stress response. J Neurosci. 2006;26(43):11162-73.
- Hagemann TL, et al. Antisense therapy in a rat model of Alexander disease reverses GFAP pathology, white matter deficits, and motor impairment. Sci Transl Med. 2021;13(620):eabg4711.
- Hagemann TL. Alexander disease: models, mechanisms, and medicine. Curr Opin Neurobiol. 2022;72:140-7.
- Lange SC, et al. Primary cultures of astrocytes: their value in understanding astrocytes in health and disease. Neurochem Res. 2012;37(11):2569-88.
- Lin NH, Yang AW, Chang CH, Perng MD. Elevated GFAP isoform expression promotes protein aggregation and compromises astrocyte function. FASEB J. 2021;35(5):e21614.
- Lin NH, Jian WS, Snider N, Perng MD. Glial fibrillary acidic protein is pathologically modified in Alexander disease. J Biol Chem. 2024;300(7):107402.
- Goya-Iglesias N, et al. Alexander disease mutations differentially sensitize glial fibrillary acidic protein (GFAP) to posttranslational modifications and network disruption by oxidants. Redox Biol. 2026;92:104103.
- Olabarria M, Putilina M, Riemer EC, Goldman JE. Astrocyte pathology in Alexander disease causes a marked inflammatory environment. Acta Neuropathol. 2015;130(4):469-86.
- Lee HG, Wheeler MA, Quintana FJ. Function and therapeutic value of astrocytes in neurological diseases. Nat Rev Drug Discov. 2022;21(5):339-58.
- McCarthy KD, de Vellis J. Preparation of separate astroglial and oligodendroglial cell cultures from rat cerebral tissue. J Cell Biol. 1980;85(3):890-902.
- Olsen ML, et al. Functional expression of Kir4.1 channels in spinal cord astrocytes. Glia. 2006;53(5):516-28.
- Strack A, et al. Chemokines are differentially expressed by astrocytes, microglia and inflammatory leukocytes in Toxoplasma encephalitis and critically regulated by interferon-gamma. Acta Neuropathol. 2002;103(5):458-68.
- East E, Golding JP, Phillips JB. A versatile 3D culture model facilitates monitoring of astrocytes undergoing reactive gliosis. J Tissue Eng Regen Med. 2009;3(8):634-46.
- Zhang Y, Barres BA. Astrocyte heterogeneity: an underappreciated topic in neurobiology. Curr Opin Neurobiol. 2010;20(5):588-94.
- Oberheim NA, Goldman SA, Nedergaard M. Heterogeneity of astrocytic form and function. Methods Mol Biol. 2012;814:23-45.
- Vasile F, Dossi E, Rouach N. Human astrocytes: structure and functions in the healthy brain. Brain Struct Funct. 2017;222(5):2017-29.
- Oberheim NA, et al. Uniquely hominid features of adult human astrocytes. J Neurosci. 2009;29(10):3276-87.
- Peterson IL, et al. Isolation and monoculture of functional primary astrocytes from the adult mouse spinal cord. Front Neurosci. 2024;18:1367473.
- Agalave NM, et al. Isolation, culture, and downstream characterization of primary microglia and astrocytes from adult rodent brain and spinal cord. J Neurosci Methods. 2020;340:108742.
- Du F, et al. Purity, cell viability, expression of GFAP and bystin in astrocytes cultured by different procedures. J Cell Biochem. 2010;109(1):30-7.
- Lin NH, et al. The role of gigaxonin in the degradation of the glial-specific intermediate filament protein GFAP. Mol Biol Cell. 2016;27(25):3980-90.
- Lin NH, Perng MD. Synergistic effects of glial fibrillary acidic protein mutation and overexpression in the pathogenesis of Alexander disease. Int J Mol Sci. 2026;27(10).
- Perng M, et al. The Alexander disease-causing glial fibrillary acidic protein mutant, R416W, accumulates into Rosenthal fibers by a pathway that involves filament aggregation and the association of alpha B-crystallin and HSP27. Am J Hum Genet. 2006;79(2):197-213.
重印与许可
本文已发表
视频即将推出