Membrantransport beinhaltet den Transport von Proteinen von der Plasmamembran ins Zellinnere (d.h. Endozytose), gefolgt vom Transport zu Lysosomen zum Abbau oder zur Plasmamembran zum Recycling. Die in diesem Artikel beschriebenen Methoden dienen der Untersuchung der Endozytose und des Recyclings von Plasmamembranproteinen.
Methodenartikel
Die Cell-basierten L-Glutathion Schutz Assays zur Endozytose und Recycling von Plasmamembranproteinen Studieren
In diesem Artikel
Zusammenfassung
Zusammenfassung
Membrantransport beinhaltet den Transport von Proteinen von der Plasmamembran ins Zellinnere (d.h. Endozytose), gefolgt vom Transport zu Lysosomen zum Abbau oder zur Plasmamembran zum Recycling. Die zellbasierten L-Glutathion-Schutzassays können verwendet werden, um die Endozytose und das Recycling von Proteinrezeptoren, Kanälen, Transportern und Adhäsionsmolekülen zu untersuchen, die an der Zelloberfläche lokalisiert sind. Der endozytäre Assay erfordert die Markierung von Zelloberflächenproteinen mit einem zellmembranundurchlässigen Biotin, das eine Disulfidbindung und den N-Hydroxysuccinimid (NHS)-Ester enthält, bei 4 ºC - einer Temperatur, bei der kein Membrantransport stattfindet. Die Endozytose von biotinylierten Plasmamembranproteinen wird durch Inkubation bei 37 ºC induziert. Anschließend wird die Temperatur wieder auf 4 ºC gesenkt, um den endozytären Transport zu stoppen, und die Disulfidbindung in Biotin, das kovalent an Proteine gebunden ist, die an der Plasmamembran verblieben sind, wird mit L-Glutathion reduziert. Zu diesem Zeitpunkt bleiben nur Proteine, die endozytiert wurden, vor L-Glutathion geschützt und bleiben somit biotinyliert. Nach der Zelllyse werden biotinylierte Proteine mit Streptavidin-Agarose isoliert, die aus Agarose eluiert wird, und das biotinylierte Protein von Interesse wird durch Western Blot nachgewiesen. Während des Recycling-Assays werden die Zellen nach der Biotinylierung bei 37 °C inkubiert, um endozytäre Vesikel mit biotinylierten Proteinen zu beladen, und die Disulfidbindung in Biotin, die kovalent an Proteine gebunden ist, die an der Plasmamembran verbleiben, wird mit L-Glutathion bei 4 ºC reduziert, wie im endozytären Assay. Anschließend werden die Zellen erneut bei 37 °C inkubiert, damit biotinylierte Proteine aus endozytären Vesikeln in die Plasmamembran zurückgeführt werden können. Die Zellen werden dann bei 4 °C inkubiert, und die Disulfidbindung in Biotin, die an Proteine gebunden ist, die an die Plasmamembranen zurückgegeben werden, wird mit L-Glutathion reduziert. Die biotinylierten Proteine, die vor L-Glutathion geschützt sind, sind diejenigen, die nicht in die Plasmamembran zurückgeführt wurden.
Einleitung
Alle lebenden Zellen verarbeiten Informationen, indem sie Fracht wie extrazelluläre Liganden, Mikroorganismen, Nährstoffe, Transmembranproteine und Lipide von der Plasmamembran zu endozytären Vesikeln transportieren (d.h. Endozytose). Ein reziproker Prozess, der als Recycling bezeichnet wird, gleicht die Endozytose aus und gibt einen Großteil der internalisierten Membran und Fracht an die Zelloberfläche zurück. Das Gleichgewicht zwischen Endozytose und Recycling steuert die Zusammensetzung der Plasmamembran und versorgt die Zellen mit Informationen, die in Zeit und Raum aufgelöst wurden. Endozytose und Recycling sind Hauptregulatoren verschiedener zellulärer Funktionen wie Nährstoffaufnahme und -stoffwechsel, Entwicklung, Proliferation, Differenzierung und Polarität, Reprogrammierung, Migration, Zelladhäsion und -migration, Zytokinese und Neurotransmission1-3. Endozytäre und Recyclingwege sind sehr dynamisch und hochgradig koordiniert und ermöglichen es den Zellen, das Äquivalent der gesamten Plasmamembran 1-5x pro Stunde umzudrehen.
Die zellbasierten L-Glutahion-Schutzassays sind nützlich, um die Endozytose und das Recycling von Transmembranproteinen einschließlich Rezeptoren, Kanälen, Transportern und Adhäsionsmolekülen in epithelialen und nichtepithelialen Zellenzu untersuchen 4-8. Wir haben zuvor die Endozytose und das Recycling des Mukoviszidose-Transmembran-Leitfähigkeitsregulators (CFTR) in menschlichen Atemwegsepithelzellen und HEK293-Zellen9-15 untersucht. Die im Manuskript beschriebenen biotinylierungsbasierten Assays sind optimiert für die Untersuchung der Endozytose und des Recyclings in Epithelzellen, die unter polarisierenden Bedingungen auf semipermeablen Wachstumsträgern kultiviert wurden. Diese Protokolle können modifiziert werden, um die Endozytose und das Recycling von Proteinen in Epithelzellen zu untersuchen, die in plastischen Gewebekulturschalen oder in nichtepithelialen Zellen kultiviert wurden. Die Abbildungen 1 und 2 enthalten Beispiele für endozytäre und Recycling-Assays in epithelialen und nichtepithelialen Zellen.
Endozytäre Assays werden wie zuvor beschrieben9-15 durchgeführt. Die Zellen werden auf kollagenbeschichteten semipermeablen Wachstumsstützen kultiviert11,14. Alternativ können Zellen in mit Kollagen beschichteten Gewebekulturschalen aus Kunststoff kultiviert werden10,15. Die Zellen werden schnell auf 4 °C abgekühlt, um den Membrantransport zu stoppen, und die Plasmamembranproteine werden bei 4 °C mit einem zellmembranundurchlässigen Biotin markiert. Biotin reagiert mit ε-Amin von Lysinresten und die Disulfidbindung ist thiol-spaltbar. Nach der Biotinylierung werden die Zellen bei 37 °C inkubiert, um den Proteintransport zu induzieren und endozytäre Vesikel für 2,5, 5,0, 7,5 oder 10 Minuten zu beladen. Anschließend werden die Zellen auf 4 °C abgekühlt und die Disulfidbindung in Biotin, das kovalent an Plasmamembranproteine gebunden ist, mit L-Glutathion (GSH) reduziert. An diesem Punkt des Protokolls sind nur Proteine, die von der Plasmamembran endozytiert wurden, vor GSH geschützt und bleiben somit biotinyliert. Zellen, die nach der Biotinylierung bei 4 °C verbleiben, ohne bei 37 °C oder der GSH-Behandlung zu inkubieren, würden dazu dienen, die Menge an biotinyliertem CFTR zum Zeitpunkt Null zu bestimmen. Zellen, die nach der Biotinylierung bei 4 °C verbleiben, ohne Inkubation bei 37 °C, aber mit GSH-Behandlung, würden dazu dienen, die Effizienz der Disulfidbindungsreduktion zu bestimmen. Im Anschluss an die oben beschriebenen Behandlungen werden Zellen lysiert, biotinylierte Proteine werden durch Streptavidin-Agarose isoliert, in SDS-Probenpuffer eluiert und durch SDS-PAGE getrennt. Das interessierende Protein wird in den biotinylierten Proben durch Western Blot nachgewiesen. Die Menge an biotinyliertem Protein bei 4 °C zum Zeitpunkt Null (ohne die Erwärmung um 37 °C) wird als 100 % angesehen. Die Menge an Protein, die nach einer GSH-Behandlung bei 4 ºC biotinyliert verbleibt, gilt als Hintergrund und wird von der Menge an Protein subtrahiert, die nach dem Erwärmen auf 37 ºC zu verschiedenen Zeitpunkten biotinyliert bleibt. Die Proteinendozytose wird nach Subtraktion des Hintergrunds berechnet und ausgedrückt als Prozentsatz des biotinylierten Proteins zu jedem Zeitpunkt nach der Erwärmung auf 37 ºC im Vergleich zu der Menge an biotinyliertem Protein, die zum Zeitpunkt Null vorhanden ist.
Recycling-Assays werden wie zuvor beschrieben durchgeführt11,16. Die Zellen werden auf kollagenbeschichteten semipermeablen Wachstumsstützen kultiviert11. Alternativ können Zellen auf mit Kollagen beschichteten Gewebekulturschalen aus Kunststoff kultiviert werden13. Die Zellen werden nach der Biotinylierung auf 37 °C erwärmt, um endozytäre Vesikel mit biotinylierten Proteinen zu beladen. Der Zeitpunkt der ersten Inkubation bei 37 ºC wird durch den Zeitpunkt bestimmt, zu dem die Endozytose des interessierenden Proteins während des linearen Anstiegs des endozytären Signals das Maximum erreicht. Die Zeit ist proteinspezifisch und kann vom Zelltyp und den Zellkulturbedingungen abhängen. Nach unseren Erfahrungen erreichte die CFTR-Endozytose ein Maximum bei 5,0 bzw. 7,5 min13,14 (Abbildungen 1 und 2). Anschließend werden die Zellen sofort auf 4 °C abgekühlt und die Disulfidbindung in Biotin, das an Plasmamembranproteine gebunden ist, wird mit GSH reduziert. Anschließend werden die Zellen entweder lysiert, um die Menge des endozytierten Proteins von Interesse zu bestimmen, oder sie werden für verschiedene Zeiträume erneut auf 37 °C erwärmt, damit das endozytierte biotinylierte Protein von Interesse zur Plasmamembran recycelt werden kann. Anschließend werden die Zellen wieder auf 4 °C abgekühlt, und die Disulfidbindung an Biotin, die an Proteine gebunden ist, die an die Plasmamembranen zurückgeführt werden, wird mit GSH reduziert. Das Recycling des interessierenden Proteins wird aus der Differenz zwischen der Menge an biotinyliertem Protein nach der ersten und zweiten GSH-Behandlung bestimmt.
Die Machbarkeit der endozytären und Recycling-Assays hängt von mehreren Faktoren ab. Erstens ist die Bildung von Zellmonoschichten eine Voraussetzung, und Zellen, die keine Monoschicht bilden oder als Mehrschichten wachsen, sind für die in diesem Manuskript beschriebenen Assays nicht geeignet. Zweitens sind die Häufigkeit des interessierenden Proteins auf der Zelloberfläche und das Vorhandensein eines Antikörpers zum Nachweis des Proteins durch Western Blotting entscheidend. Wir empfehlen, dass die Steady-State-Häufigkeit des Proteins zunächst in Ganzzelllysaten (WCL) bestimmt wird. Drittens soll die Fähigkeit getestet werden, das spezifische Zelloberflächenprotein zu biotinylieren. Biotin bindet sich an Lysinreste. Die Effizienz der Biotinylierung hängt also zum Teil von der Anzahl der Lysinreste in der extrazellulären Domäne des Proteins ab. Dementsprechend empfehlen wir, die Proteinsequenz zu screenen, um festzustellen, ob Lysinreste in der/den extrazellulären(n) Domäne(n) vorhanden sind. Nicht alle Lysinreste der extrazellulären Domäne sind aufgrund der Proteinfaltung für Biotin gleichermaßen zugänglich. Daher sollte eine Proteinbiotinylierung im stationären Zustand, gefolgt von Western Blotting, durchgeführt werden, um nicht nur die Stetigkeitshäufigkeit des Proteins an der Zelloberfläche zu bestimmen, sondern auch die Durchführbarkeit der auf Biotinylierung basierenden Assays für das interessierende Protein zu untersuchen.
Dieses Protokoll ist optimiert für die Untersuchung der Endozytose und des Recyclings von Wildtyp-CFTR in menschlichen Atemwegsepithelzellen CFBE41o-kultiviert auf 24 mm semipermeablen Wachstumsträgern in der Luft-Flüssig-Grenzfläche9,10,13-15. CFTR polarisiert zur apikalen Membrandomäne; Somit beschreibt das Protokoll die Biotinylierung der apikalen Membrandomäne. Die Biotinylierung der basolateralen Membrandomäne wird erforderlich sein, um die Endozytose und das Recycling von Proteinen, die zur basolateralen Membran polarisieren, zu untersuchen. Das in diesem Manuskript beschriebene endozytäre Assay-Protokoll hat 6 Bedingungen: Nur biotinyliert (BT = Zeit Null; Probe a); GSH-Kontrolle (GSH; Probe b); und die endozytären Zeitpunkte von 2,5, 5,0, 7,5 oder 10 Minuten (Proben c; Tabelle 1). Die Anzahl und/oder Länge der endozytären Zeitpunkte im Protokoll kann nach Bedarf geändert werden.
Der Recycling-Assay wird durchgeführt, nachdem der Zeitpunkt bestimmt wurde, zu dem die Endozytose des interessierenden Proteins während des linearen Anstiegs des endozytären Signals das Maximum erreicht. Dieser Zeitpunkt wird verwendet, um endozytäre Vesikel mit dem interessierenden Protein zu beladen, bevor das Recycling induziert wird. Die Zeit ist proteinabhängig und kann je nach Zelltyp und Kulturbedingungen variieren15. Wir haben bereits festgestellt, dass die CFTR-Endozytose bei 7,5 Minuten in humanen Atemwegsepithelzellen CFBE41o, die CFTR15 stabil exprimieren, ein Plateau erreichte. Im Gegensatz dazu erreichte die CFTR-Endozytose bei 5,0 Minuten in HEK293-Zellen, die CFTR13 stabil exprimierten, ein Plateau. Das in diesem Manuskript beschriebene Recycling-Assay-Protokoll hat 5 Bedingungen: Nur biotinyliert (BT = Zeit Null; Probe a); GSH-Kontrolle (GSH; Probe b); 5,0 min Endozytose (Endo; Probe c), 5,0 min Endozytose, gefolgt von den 2,5 oder 5,0 min Recycling-Zeitpunkten (Rec; Proben d; Tabelle 2). Die Anzahl und/oder Länge der Recycling-Zeitpunkte im Protokoll kann nach Bedarf geändert werden.
Protokoll
1. Zellen säen
- 24 mm Filter mit 10 % Kollagen I vorbehandeln (10 % Kollagen I in Minimal Essential Medium (MEM) vorbereiten, die gesamte Oberfläche des Filters mit der Kollagenlösung bedecken, unter UV-Licht bei Raumtemperatur 30 min inkubieren und in einem Zellkulturinkubator bei 37 ºC für 1 Stunde das überschüssige Kollagen absaugen).
- Bereiten Sie das Zellkulturmedium vor (MEM, das 20 min lang mit CO2 begast wurde, 10 % fötales Rinderserum (FBS), 50 E/ml Penicillin, 50 E/ml Streptomycin, 2 mM L-Glutamin, 0,5 μg/ml Puromycin)
- Seed von CFBE41o-Zellen auf sechs 24 mm Filtern für Endozytose bzw. Recycling bei 1 x 10⁶/Filter.
- Entfernen Sie das apikale Medium am Tag nach der Aussaat und füttern Sie täglich nur von der basolateralen Seite.
- 24 Stunden vor dem Versuch mit einem negativen Selektionsantibiotikum füttern. Führen Sie das Experiment mit CFBE41o-Zellen 6-10 Tage nach der Aussaat durch.
2. Vorbereitungen vor dem Experiment (ähnlich für den Endozytose- und Recycling-Assay)
- Richten Sie eine Bank im Kühlraum ein. Endozytäre und Recycling-Assays sollten im Kühlraum durchgeführt werden, mit Ausnahme der Inkubation bei 37 °C. Platten mit den 24-mm-Filtern sollten direkt auf der Tischplatte im Kühlraum platziert werden.
- Schalten Sie den 37 ºC heißen Inkubator ein.
- Bereiten Sie 500 ml PBS++, pH 8,2 vor (Dulbecco's Phosphate Buffered Kochsalzlösung (PBS), 1 mM Magnesiumchlorid und 0,1 mM Calciumchlorid, pH 8,2) und bewahren Sie 250 ml bei 37 °C in einem Inkubator und 250 ml bei 4 °C im Kühlraum auf.
- Füllen Sie die Vertiefungen in eine 6-Well-Platte mit PBS++, pH 8,2, 37 °C und halten Sie sie im Inkubator bei 37 °C.
- Füllen Sie die Vertiefungen in eine weitere 6-Well-Platte mit PBS++, pH 8,2, 4 °C und halten Sie sie im Kühlraum bei 4 °C.
- 100 ml PBS++, pH 8,6 bei 4 °C zubereiten und im Kühlraum aufbewahren.
- Biotin, das die Disulfidbindung und den NHS-Ester enthält, ist innerhalb von 30 Minuten nach dem Biotinylierungsschritt Biotin mit einer Konzentration von 0,8 mg/ml in PBS++, pH 8,2, 4 °C herzustellen (das Volumen des Biotin-Puffers sollte die gesamte Oberfläche des Filters vollständig bedecken); wir empfehlen einen Filter von 1,5 ml/24 mm.
- Bereiten Sie 100 ml GSH-Puffer in Wasser mit einem pH-Wert von 8,6 vor und kühlen Sie es auf 4 ºC ab (75 mM Natriumchlorid, 1 mM Magnesiumchlorid und 0,1 mM Calciumchlorid, 50 mM GSH, 80 mM Natriumhydroxid und 10 % FBS). GSH und Natriumhydroxid sollten kurz vor dem Experiment zugegeben werden. Überprüfen Sie den pH-Wert und stellen Sie ihn auf 8,6 ein; Natriumhydroxid neutralisiert die Carboxylgruppen und deprotoniert die Hälfte der Cysteinreste in Glutathion. Es ist stark gepuffert am pKa dieses Cysteins, der 8,64 beträgt. (Bereiten Sie das gleiche Volumen GSH-Puffer für den Recycling-Assay vor).
- Bereiten Sie 50 ml Lysepuffer mit einem pH-Wert von 8,2 vor und halten Sie ihn bei 4 °C (25 mM HEPES, pH 8,2, 1 % (v/v) Triton X-100, 10 % (v/v) Glycerin); fügen Sie einen vollständigen Proteasehemmer-Cocktail pro 50 ml Lysepuffer hinzu und kühlen Sie ihn auf 4 κC ab. Überprüfen Sie den pH-Wert nach der Zugabe von Complete, da es zu einem Abfall des pH-Werts kommen kann.
- Bereiten Sie den Laemli-Probenpuffer mit 100 mM DTT vor.
- Bereiten Sie 1x Laufpuffer vor (100 ml 10x Laufpuffer, 900 ml Wasser).
- 1x Transferpuffer vorbereiten und auf 4 ºC abkühlen lassen (100 ml 10x Transferpuffer ohne Natriumdodecylsulfat (SDS), 200 ml Methanol, 700 ml Wasser).
3. Endozytärer Assay
CFTR polarisiert zur apikalen Membrandomäne; somit beschreibt das Protokoll die Biotinylierung der apikalen Membrandomäne. Die Biotinylierung der basolateralen Membrandomäne wird erforderlich sein, um die Endozytose von Proteinen zu untersuchen, die zur basolateralen Membran polarisieren.
Arbeitsablauf: Biotinylierung von Zelloberflächenproteinen bei 4 ºC → Erwärmung auf 37 ºC zur Beladung endozytärer Vesikel mit biotinylierten Proteinen → Abkühlung auf 4 ºC zur Unterbindung des endozytären Transports → Verringerung der Disulfidbindung in Biotin, die an Proteine gebunden ist, die an der Zelloberfläche vergeblieben sind → Zelllyse → Isolierung von biotinylierten (d. h. endozytierte) Proteine mit Streptavidin Agarose → Elution biotinylierter Proteine aus Streptavidin Agarose → Proteinelektrophorese und Western Blotting.
- Bringen Sie die Platte mit sechs 24-mm-Filtern (Tabelle 1: Proben a-c) aus dem Zellkultur-Inkubator und geben Sie sie schnell auf die Platte, die mit kaltem (4 ºC) PBS++, pH 8,2 auf Eis gefüllt ist.
- Lassen Sie PBS++ die apikale Oberfläche überlaufen, um schnell die gesamte Oberfläche abzudecken. Bringen Sie die Platte auf Eis in den Kühlraum und stellen Sie sie auf die Arbeitsplatte.
- Entfernen Sie PBS++ schnell, indem Sie die Platte auf den Kopf stellen und die Filter an Ort und Stelle halten, um ein Herausfallen zu verhindern. Geben Sie ~2 ml PBS++ auf die apikale und basolaterale Seite.
- Waschen Sie die Filter mit ~2 ml kaltem PBS++, pH 8,2 3x für 2 min. Saugen Sie die Wäsche jeweils von einer Seite, apikal oder basolateral, ab und fügen Sie jeweils auf einer Seite frisches PBS++, pH 8,2 hinzu.
- Saugen Sie die letzte Wäsche ab und geben Sie 1 ml PBS++, pH 8,2 auf die basolaterale Seite. 1,5 ml des Biotin-Puffers auf die apikale Seite geben und 30 min im Dunkeln inkubieren. Vermeiden Sie es, Puffer auf die kontralaterale Seite zu verschütten.
- Den Biotin-Puffer von der apikalen Seite absaugen und mit PBS++, pH 8,2 3x für 2 min waschen.
- Stellen Sie zwei Filter (Tabelle 1: Proben a und b) in eine andere Platte, geben Sie ~2 ml PBS++, pH 8,2 auf die apikale und basolaterale Seite und bewahren Sie sie im Kühlraum auf. Bewahren Sie die restlichen 4 Filter in einer Platte auf (Tabelle 1: Proben c) und fügen Sie ~2 ml PBS++ pH 8,2 auf der apikalen und basolateralen Seite jedes Filters hinzu. Stellen Sie die Platte auf Eis und stellen Sie sie auf die Arbeitsplatte neben dem 37 °C heißen Inkubator.
- Übertragen Sie die Filter schnell vom Eis auf die Platte in den 37 °C heißen Inkubator, der mit vorgewärmtem PBS++ pH 8,2 gefüllt ist, und inkubieren Sie jeweils einen Filter präzise für 2,5, 5,0, 7,5 oder 10 Minuten, wobei Sie die gesamte Oberfläche jedes Filters mit warmem PBS++ pH 8,2 bedecken.
- Während der Inkubation füllen Sie vier Vertiefungen in der Platte vollständig auf Eis mit kaltem (4 ºC) PBS++ pH 8,2.
- Drehen Sie nach der angegebenen Inkubationszeit jeden Filter auf den Kopf, um das warme PBS++ (37 ºC) mit einem pH-Wert von 8,2 abzutropfen und auf Eis auf die Platte zu legen. Fügen Sie kaltes PBS++ mit einem pH-Wert von 8,2 hinzu, um die apikale Seite zu überlaufen und die gesamte Oberfläche jedes Filters schnell zu bedecken.
- Nachdem Sie die Filter auf Eis umgefüllt haben, bringen Sie die Platte in den Kühlraum und stellen Sie sie auf die Tischplatte.
- PBS++ in allen Filtern (Proben a-c) von beiden Seiten absaugen und die basolaterale Seite mit 1 ml PBS++ pH 8,6 füllen. 1,5 ml PBS++, pH 8,6 auf die apikale Seite des Filters a geben (Tabelle 1: Probe a).
- Reduzieren Sie die Disulfidbindung in Biotin, das an die apikalen Membranproteine gebunden ist, mit dem GSH-Puffer (pH 8,6) in den Filtern b und c (Tabelle 1: Probe b und c).
- 1,5 ml des GSH-Puffers auf die apikale Seite geben, 15 Minuten inkubieren und sechsmal wiederholen.
- Halten Sie 1 ml PBS++ pH 8,6 auf der basolateralen Seite. Vermeiden Sie es, den Puffer auf die basolaterale Seite zu verschütten.
- Nach Abschluss des Vorgangs 3.15 werden alle Filter (Tabelle 1: Proben a, b und c) kurz mit PBS++ pH 8,2 2x gewaschen, die Wäsche apikal und basolateral abgesaugt und die Platte mit den Filtern in einem 45°-Winkel eingestellt, um die gesamte Wäsche wieder abzulassen.
- Legen Sie die Platte flach auf die Tischplatte, geben Sie 500 μl Lysepuffer auf die apikale Seite jedes Filters und inkubieren Sie sie im Kühlraum unter Schütteln für 15 Minuten.
- Zellen mit einem Gummipolizisten abkratzen und in einem 1,5 ml Eppendorf-Röhrchen auffangen.
- Bei 14.000 x g für 10 min bei 4 °C schleudern.
- Füllen Sie die Überstände in frische 1,5-ml-Röhrchen um und entsorgen Sie die Pellets. Die Überstände werden nun als Ganzzelllysate (WCL) bezeichnet.
- 100 μl Laemli-Probenpuffer mit DTT auf 50 μl WCL (10 % der gesamten WCL) geben und 30 min bei 37 °C inkubieren (WCL-Proben).
- Bereiten Sie 200 μl Aliquots mit 50 % Streptavidin-Agarose vor und entfernen Sie den gesamten Waschpuffer mit einer 27-G-Nadel, die an einer Absaugung befestigt ist: Waschen Sie 2x mit 1 ml PBS, Pelletkügelchen mit Impulsschleudern zwischen den Wäschen; waschen Sie einmal mit 1 ml Lysepuffer, um sich auszugleichen, bevor Sie WCL hinzufügen; trocknen Sie die Agarose vor der Zugabe von WCL mit einem Saugen.
- Die verbleibende WCL mit gewaschener Streptavidin-Agarose inkubieren (das Volumen mit Lysepuffer auf 1,2 ml erhöhen und mindestens 2 Stunden im Dunkeln oder O/N im Kühlraum drehen).
- Waschen Sie die Streptavidin-Agarose-Biotinyl-Proteinkomplexe dreimal mit 1 ml Lysepuffer (der Lysepuffer muss während des Waschens kein Complete enthalten), schleudern Sie die Agarose zwischen den Wäschen und saugen Sie sie nach dem letzten Waschen trocken.
- Die Streptavidin-Agarose-biotinylierten Proteinkomplexe werden mit 65 μl Laemli-Probenpuffer mit DTT bei 85 °C für 5 min inkubiert.
- Pulsieren Sie und sammeln Sie die eluierten biotinylierten Proteinkomplexe.
- Laden Sie 7,5 % der Gele mit 40 μl der WCL-Proben und dem gesamten Volumen der biotinylierten (BT) Proben pro Well.
- Führen Sie Gele bei 120 V in SDS mit laufendem Puffer aus.
- Übertragen Sie Proteine für 1,5 Stunden (bis zu <400 A) in einem Transferpuffer ohne SDS bei 90-95 V auf eine PVDF-Membran .
- 5 % fettfreie Milch in TBS-T mit 0,1 % O/N blockieren. Beide Membranen mit dem monoklonalen Anti-CFTR-Maus-Antikörper CFF596 und einem Anti-Maus-HRP-konjugierten Sekundärantikörper abtupfen.
- Führen Sie eine Chemilumineszenz durch. Reblot beide Membranen entweder mit Anti-Ezrin- oder Anti-Aktin-Antikörpern.
4. Recycling-Assay
Arbeitsablauf: Biotinylierung von Zelloberflächenproteinen bei 4 ºC → Erwärmung auf 37 ºC, um endozytäre Vesikel mit biotinylierten Proteinen zu beladen → Abkühlung auf 4 ºC, um endozytären Transport zu stoppen → Verringerung der Disulfidbindung in Biotin, die an Proteine gebunden ist, die an der Zelloberfläche verbleiben → Erwärmung auf 37 °C, damit biotinylierte Proteine aus endozytären Vesikeln an die Zelloberfläche recyceln können → Abkühlung auf 4 ºC zur Unterbindung des endozytären Transports → Verringerung der Disulfidbindung in Biotin, das an Proteine gebunden ist, die an die Zelloberfläche zurückgeführt wurden → Zelllyse → Isolierung von biotinylierten Proteinen (d. h. solchen, die nicht recycelt wurden) mit Streptavidin Agarose → Elution von biotinylierten Proteinen aus Streptavidin Agarose → Proteinelektrophorese und Western Blotting.
- Biotinylieren Sie die apikalen Oberflächenproteine in fünf 24-mm-Filtern (Tabelle 2: Proben a-d) nach dem im Endozytären Assay (Abschnitt 3.1-3.6) beschriebenen Verfahren.
- In den Kühlraum werden zwei Filter in eine neue Platte eingesetzt (Tabelle 2: Proben a und b), ~2 ml PBS++, pH 8,2 auf die apikale und basolaterale Seite gegeben und im Kühlraum aufbewahrt.
- Bewahren Sie die restlichen 3 Filter in einer Platte (Tabelle 2: Proben c und d) mit ~2 ml PBS++ pH 8,2 auf der apikalen und basolateralen Seite jedes Filters auf. Stellen Sie die Platte mit den Filtern c und d auf Eis und stellen Sie sie auf die Bank außerhalb des 37 °C Inkubators.
- Übertragen Sie die Filter schnell von der Platte auf Eis auf die mit vorgewärmtem PBS++ pH 8,2 gefüllte Platte in den Inkubator und bewahren Sie sie 5,0 min lang auf.
- Füllen Sie während der Inkubation 3 Vertiefungen der Platte auf Eis mit kaltem (4 ºC) PBS++ pH 8,2.
- Übertragen Sie die Filter nach der 5,0-minütigen Inkubation bei 37 ºC auf die Platte auf Eis. Lassen Sie das kalte PBS++ pH 8,2 die apikale Seite überlaufen und bedecken Sie schnell die gesamte Oberfläche jedes Filters.
- Bringen Sie die Platte auf Eis in den Kühlraum und stellen Sie sie auf die Arbeitsplatte.
- Saugen Sie PBS++ pH 8,2 von beiden Seiten der Filter a, b, c und d ab und geben Sie 1 ml PBS++ pH 8,6 auf die basolaterale Seite.
- Bewahren Sie die Filter a und b getrennt von den Filtern c und d auf. Geben Sie 1 ml PBS++ pH 8,6 auf die apikale Seite der Filter a und b.
- Reduzieren Sie die an der Zelloberfläche verbleibende Disulfidbindung in Biotin in den Filtern b, c und d nach dem im endozytären Assay beschriebenen Verfahren (Schritte 3.13-3.15).
- Die Filter b, c und d 2x kurz mit PBS++ pH 8,2 waschen und durch frische PBS++, pH 8,2 ersetzen. Setzen Sie die Filter d in eine neue Platte ein und bringen Sie sie auf Eis auf die Tischplatte außerhalb des 37 °C Inkubators.
- Übertragen Sie die Filter schnell von der Platte auf Eis auf die Platte im Inkubator, der mit vorgewärmtem PBS++ pH 8,2 gefüllt ist, und inkubieren Sie jeweils einen Filter genau für 2,5 oder 5,0 Minuten, wie oben in den Schritten 4.4-4.9 beschrieben.
- Die Disulfidbindung in Biotin, das an die apikalen Membranproteine gebunden ist, wird mit dem GSH-Puffer nach der zweiten Inkubation bei 37 ºC in den Filtern d reduziert, wie in 4.4 beschrieben, mit der Ausnahme, dass während dieses Schritts nur drei 15-minütige Inkubationen mit dem GSH-Puffer durchgeführt werden. Halten Sie die Filter a, b und c in PBS++ pH 8,6 während dieses Schritts auf der apikalen und basolateralen Seite.
- Für die Zelllyse und das Western Blotting werden die im endozytären Assay beschriebenen Verfahren (Schritte 3.16-3.31) angewendet.
Ergebnisse
Die Endozytose von CFTR wurde in CFBE41o--Zellen untersucht, die auf kollagenbeschichteten Filtern kultiviert wurden (Abbildung 1). Biotinyliertes CFTR wurde mittels Western Blot mit einem mausmonoklonalen Antikörper, Klon 596, und einem Anti-Maus-Horseradish-Peroxidase-Antikörper unter Verwendung des Western-Blot-Detektionssystems gefolgt von Chemilumineszenz sichtbar gemacht. Die Quantifizierung des biotinylierten CFTR erfolgte durch Densitometrie unter Verwendung von Belichtungen innerhalb des linearen dynamischen Bereichs des Films. Die CFTR-Endozytose wurde berechnet, nachdem der Hintergrund subtrahiert worden war, und als Prozentsatz des biotinylierten CFTR zu jedem Zeitpunkt nach Erwärmung auf 37 ºC im Vergleich zur Menge des biotinylierten CFTR zum Zeitpunkt null ausgedrückt (Abbildungen 1A und 1B). Die CFTR-Endozytose war zwischen 0–7,5 min linear. Experimente, bei denen der Hintergrund-CFTR >10 % betrug, wurden aufgrund einer ineffizienten GSH-Behandlung ausgeschlossen (Abbildung 1D).
Das Recycling von CFTR wurde in HEK293-Zellen untersucht, die in kollagenbeschichteten Zellkulturschalen kultiviert wurden (Abbildung 2). Die Endozytose von CFTR verlief zwischen 0,0 und 5,0 min linear und erreichte nach 5,0 min ein Maximum (Abbildung 2A). Daher wurden die Zellen 5,0 min bei 37 °C inkubiert, um endozytotische Vesikel mit biotinylierten Proteinen, einschließlich CFTR, zu beladen (Abbildungen 2B und 2C). Das Recycling des endozytierten CFTR wurde als Differenz zwischen der Menge an biotinyliertem CFTR nach der ersten und der zweiten GSH-Behandlung berechnet.
Tabelle 1. Endozytose-Assays.
| Endozytose | BT | GSH | Endo-2,5 | Endo-5,0 | Endo-7,5 | Endo-10,0 |
| Probe | a | b | c2,5 | c5,0 | c7,5 | c10,0 |
| Biotin | + | + | + | + | + | + |
| 37 ºC | (-) | (-) | 2,5 min | 5,0 min | 7,5 min | 10 min |
| GSH | (-) | + | + | + | + | + |
Tabelle 2. Recycling-Assay.
| Recycling | BT | GSH | Endo-5 | Rec-2.5 | Rec-5.0 |
| Probe | a | b | c | d2.5 | d5.0 |
| Biotin | + | + | + | + | + |
| 1. 37 ºC | (-) | (-) | 5 min | 5 min | 5 min |
| 1. GSH | (-) | (-) | + | + | + |
| 2. 37 ºC | (-) | (-) | + | + | + |
| 2. GSH | (-) | (-) | (-) | 2,5 min | 5 min |
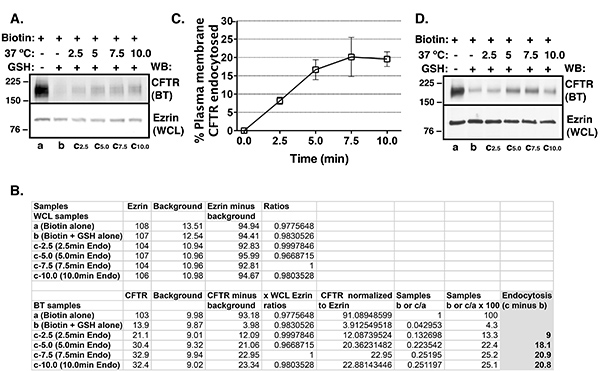
Abbildung 1. Zusammenfassung der durchgeführten endozytotischen Assays zur Bestimmung der CFTR-Endozytose in CFBE41o--Zellen. Die Zellen wurden auf kollagenbeschichteten Filtern kultiviert. Repräsentative Western Blots (A), repräsentative Densitometrie-Werte (B) und Zusammenfassung der Experimente (C), die die CFTR-Endozytose als Funktion der Zeit zeigen. Selektive biotinylierung der Zelloberfläche in Kombination mit Western Blotting wurde verwendet, um die Menge an CFTR in der Plasmamembran zu bestimmen. Die Proteinmenge wurde mittels Densitometrie quantifiziert, wobei Belichtungszeiten im linearen dynamischen Bereich des Films verwendet wurden. Zum Zeitpunkt null wurde die Menge an biotinyliertem (BT) CFTR als 100 % angenommen (Tabelle 1: Probe a). Zum Zeitpunkt null wurde die Menge an BT-CFTR, die nach GSH-Behandlung verblieb, als Hintergrundsignal für CFTR betrachtet (Probe b; beachten Sie, dass dies ein anderer Hintergrund ist als der, der von allen Proben subtrahiert wurde, wie in Abbildung 1B dargestellt). Der CFTR-Hintergrund betrug 6,7 ± 0,9 % (Mittelwert ± Standardfehler des Mittelwerts) in den für die Analyse herangezogenen Experimenten. Der CFTR-Hintergrund wurde von der Menge an BT-CFTR nach 2,5, 5,0, 7,5 oder 10 min Wärmebehandlung bei 37 °C abgezogen (Probe c minus Probe b). Die CFTR-Endozytose wurde als Prozentsatz des verbliebenen biotinylierten CFTR zu den Zeitpunkten 2,5, 5,0, 7,5 oder 10 min nach Subtraktion des Hintergrunds angegeben. Die CFTR-Endozytose verlief zwischen null und 7,5 min linear. Die Menge an Ezrin im Gesamtzelllysat (WCL) diente als Ladekontrolle. 4 Experimente pro Gruppe. Experimente, bei denen der CFTR-Hintergrund >10 % betrug, wurden aufgrund ineffizienter GSH-Behandlung ausgeschlossen (D). Die Menge an biotinyliertem CFTR in der GSH-Kontrolle (Probe b) betrug im ausgeschlossenen Experiment 14,5 %.
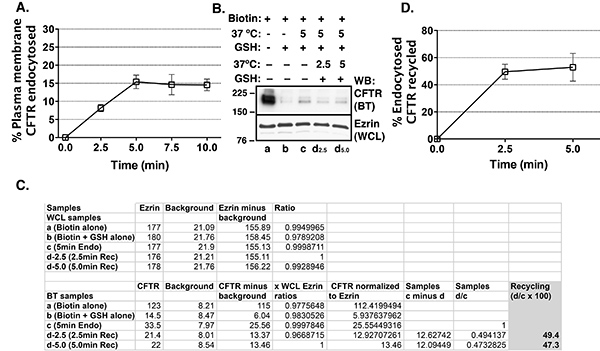
Abbildung 2. Zusammenfassung der Endozytose- und Recyclingsassays in HEK293-Zellen mit stabiler Expression von CFTR. Die Zellen wurden in kollagenbeschichteten Zellkulturschalen kultiviert. Zusammenfassung der Daten, die zeigen, dass die CFTR-Endozytose zwischen 0 und 5 min linear war (A). Daher wurden in den Recyclingsassays endozytotische Vesikel durch Erwärmen auf 37 °C für 5 min mit biotinylierten (BT) Proteinen, einschließlich CFTR, beladen. Die Proteinmenge wurde mittels Densitometrie unter Verwendung von Belichtungszeiten im linearen dynamischen Bereich des Films quantifiziert. Repräsentativer Westernblot (B), repräsentative Densitometrie-Werte (C) und Zusammenfassung der Experimente (D), die das CFTR-Recycling in Abhängigkeit von der Zeit zeigen. Zum Zeitpunkt null wurde die Menge an BT-CFTR als 100 % angenommen (Tabelle 2: Probe a). Zum Zeitpunkt null wurde die Menge an BT-CFTR nach GSH-Behandlung als Hintergrundsignal für CFTR betrachtet (Probe b; beachten Sie, dass dies ein anderer Hintergrund ist als derjenige, der von allen Proben in C subtrahiert wurde). Experimente, bei denen der Hintergrund-CFTR-Wert >10 % betrug, wurden aufgrund ineffizienter GSH-Behandlung ausgeschlossen. Endozytotische Vesikel wurden durch Inkubation bei 37 °C für 5 min mit BT-Proteinen, einschließlich CFTR, beladen, gefolgt von einer GSH-Behandlung, um Biotin von an der Plasmamembran verbliebenen Proteinen abzuspalten (Proben c und d). Die Menge an BT-CFTR nach 5 min Erwärmung bei 37 °C und anschließender GSH-Behandlung repräsentiert endozytiertes CFTR (Probe c). Nach der 5-minütigen Erwärmung bei 37 °C und der ersten GSH-Behandlung wurden die Zellen erneut für 2,5 bzw. 5,0 min bei 37 °C erwärmt, um das Recycling der endozytierten Proteine an die Plasmamembran zu ermöglichen, und das Biotin an recyceltem CFTR wurde durch die zweite GSH-Behandlung entfernt (Proben d). Zu diesem Zeitpunkt blieb nur das CFTR biotinyliert, das nicht aus Endosomen an die Plasmamembran zurücktransportiert wurde (Proben d). Das CFTR-Recycling wurde berechnet als Differenz zwischen BT-CFTR nach der ersten GSH-Behandlung (Probe c) und nach der zweiten GSH-Behandlung nach 2,5 und 5,0 min (Proben d) und als Prozentsatz des endozytierten CFTR ausgedrückt. Das CFTR-Recycling war schnell und erreichte nach 2,5 min ein Maximum. Die Ezrin-Menge im Gesamtzelllysat (WCL) diente als Ladekontrolle. 3 Experimente pro Gruppe.
Diskussion
Der Erfolg von endozytären und Recycling-Assays hängt von einer effizienten Biotinylierung von CFTR an der Plasmamembran ab. Biotin muss unmittelbar vor der Verwendung hergestellt werden, da der NHS-Ester-Anteil leicht hydrolysiert und nicht reaktiv wird. Darüber hinaus erfordert der Biotinylierungsschritt eine strenge Temperaturkontrolle bei 4 ºC, um den Proteintransport zu stoppen. Wenn die Temperatur während des Biotinylierungsschritts über 4 ºC angehoben wird, kann es zu Proteintransport kommen, der zur Biotinylierung variabler Mengen an CFTR führt.
Der Erfolg von endozytären und Recycling-Assays hängt auch von einer effizienten Reduktion der Disulfidbindung im biotinylierten CFTR ab, die an der Plasmamembran verbleibt. Die Menge an CFTR, die nach der GSH-Behandlung noch biotinyliert ist, sollte <10 % der gesamten biotinylierten CFTR zum Zeitpunkt Null betragen. Versuche, bei denen die Menge an biotinyliertem CFTR in der GSH-Kontrollprobe >10 % beträgt, sollten ausgeschlossen werden. Abbildung 1D zeigt ein "fehlgeschlagenes" Experiment, bei dem die Menge an biotinyliertem CFTR in der GSH-Kontrolle 14,5 % betrug. Eine unzureichende Reduktion der Disulfidbindung im biotinylierten CFTR kann sekundär zu einer schlechten Temperaturkontrolle während des Experiments führen. Wenn die Temperatur während der GSH-Behandlung über 4 ºC ansteigt, kann es zu einem Proteintransport kommen, und das biotinylierte CFTR, das infolge des unbeabsichtigten Temperaturanstiegs endozytiert wird, erhöht die CFTR-Hintergrundtemperatur. Alternativ kann eine unzureichende Reduktion der Disulfidbindung im biotinylierten CFTR aus einer verringerten Halbwertszeit von GSH in wässriger Lösung resultieren, die durch Oxidation an der Luft oder durch einen ungeeigneten pH-Wert verursacht wird. Wie bereits festgestellt, bleibt GSH bei pH 8,64 stark gepuffert. Unserer Erfahrung nach reduzierten sechs 15-minütige Behandlungen mit dem GSH-Puffer die Disulfidbindung um mehr als 90%, effizienter als eine 90-minütige Behandlung.
Die Zellkultur erfordert besondere Aufmerksamkeit. Biotin muss in intakten Zellen in die Plasmamembrandomäne gelangen, wo das Protein von Interesse exprimiert wird. Wir haben die auf Biotinylierung basierenden endozytischen und Recycling-Assays verwendet, um die Endozytose und das Recycling von CFTR zu untersuchen, das in der apikalen Membrandomäne exprimiert wird. Diese Assays können auch verwendet werden, um den endozytären Transport von Proteinen zu untersuchen, die sich in der basolateralen Membrandomäne in Zellen befinden, die auf semipermeablen Wachstumsträgern kultiviert wurden. Epithelzellen, die mehrere Schichten bilden, sind für diese Assays nicht geeignet, da Biotin und GSH-Puffer nur die oberste Zellschicht zum Nachweis der apikalen Membranproteine oder die untere Schicht zum Nachweis der basalen Membranproteine erreichen. Epithelzellen, die auf Kunststoff kultiviert wurden, können während der Assays anfälliger für das Abwaschen sein. Ein zufälliger Verlust von Zellen während des Experiments beeinträchtigt die Ergebnisse. Wir empfehlen eine regelmäßige Untersuchung der Monolayer-Integrität unter dem Mikroskop in Experimenten, bei denen Zellen in plastischen Gewebekulturschalen kultiviert werden. Das Überziehen von Gewebekulturschalen mit Kollagen kann die Zelladhärenz erhöhen.
Die biotinylierten Proteinproben sollten routinemäßig auf Kontamination mit intrazellulären Proteinen untersucht werden. Der Nachweis intrazellulärer Proteine in den biotinylierten Proteinproben kann auf eine unzureichende Waschung der Streptavidin-Agarose-biotinylierten Proteinkomplexe nach Inkubation mit WCL hinweisen. Der erste Schritt besteht also darin, die Wascheffizienz zu erhöhen. Darüber hinaus ermöglicht das Vorhandensein von Zellen mit beeinträchtigter Integrität der Plasmamembran den Zugang von Biotin zu intrazellulären Proteinen. Western Blotting für ein Protein, das ausschließlich in einem intrazellulären Kompartiment wie dem endoplasmatischen Retikulum exprimiert wird, könnte zum Nachweis der Biotinylierung intrazellulärer Proteine verwendet werden. Alternativ können Zytoskelettproteine wie Aktin oder Ezrin verwendet werden, um die Kontamination der biotinylierten Proteinproben mit intrazellulären Proteinen zu testen. Zytoskelettproteine können Komplexe mit Transmembranproteinen bilden, und geringe Mengen der Zytoskelettproteine können in den biotinylierten Proteinproben nachgewiesen werden. Nach unserer Erfahrung beträgt das Verhältnis von biotinyliertem/WCL-Ezrin oder Aktin jedoch <1:1.000 und somit eignen sich diese Proteine für die Bestimmung der Zellmembranintegrität in den biotinylierungsbasierten Assays.
Die Biotinylierungsreaktion kann mit Glycin oder Tris abgeschreckt werden, um nicht umgesetztes Biotinylierungsreagenz zu entfernen, wie zuvor berichtet17. Darüber hinaus kann GSH mit Jodacetamid6 gestillt werden. Nach unserer Erfahrung können das nicht umgesetzte Biotinylierungsreagenz und GSH durch schonendes Waschen mit PBS++ ohne den Einsatz von Quenching-Reagenzien effizient entfernt werden.
Die Wahl von Streptavidin vs. Neutravidin Agarose zur Isolierung der biotinylierten Proteinkomplexe sollte von Fall zu Fall entschieden werden. Unserer Erfahrung nach bietet Streptavidin-Agarose eine effiziente Isolierung der biotinylierten Proteinkomplexe mit minimaler Bindung von nicht-biotinylierten Proteinen, im Gegensatz zur Neutravidin-Agarose, bei der die unspezifische Bindung in Konzentrationen auftritt, die die Assay-Ergebnisse beeinträchtigen (unveröffentlichte Beobachtung).
Offenlegungen
Die Autoren erklären, dass sie keine konkurrierenden finanziellen Interessen haben.
Danksagungen
Diese Studie wurde unterstützt durch die U.S. National Institutes of Health (NIH) Zuschüsse R01HL090767, R01HL090767-02S1, P30 DK06010 und den NepCure Foundation Established Investigator New Direction Grant, (an A.S.-U.).
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| CFBE41o-Zellen | Referenz10,11,13,14,15 | ||
| HEK293 Zellen | Referenz13 | ||
| Minimal Essential Medium (MEM) | Gibco | 11095 | |
| L-Glutamin | Cellgro | 25-005-CL | |
| Penicillin | Sigma | P0781 | |
| Streptomycin | |||
| Puromycin | InvivoGen | ant-pr-1 | |
| PureCol Rinder-Kollagen Lösung Typ I | Advanced Biomatrix | 5005-B | |
| Kulturreagenzien | |||
| Dulbecco' s Phosphatgepufferte Kochsalzlösung (PBS) | Gibco | 14190 | |
| Calciumchlorid | Sigma | C3306 | |
| Magnesiumchlorid | Sigma | M2670 | |
| Natriumchlorid | Sigma | S3014 | |
| EZLink Sulfo-NHS-SS-Biotin | Pierce | 21331 | |
| L-Glutathion reduziert (GSH) | Sigma | G6529 | |
| Streptavidin-Agarose-Harz | Thermo Fisher | 20353 | |
| Natriumhydroxid | Sigma | 224165 | |
| fötales Rinderserum | Gemini Bioscience | 100-106 | |
| Milli-Q Wasser | Millipore | Advantage System | |
| HEPES | Sigma | H3375 | |
| Triton X-100 | Bio Rad | 161-0407 | |
| Glycerol | FisherScientific | G33 | |
| Laemli Probenpuffer | BioRad | 161-0737 | |
| Dithiothreitol (DTT) | Sigma | 646563 | |
| Complete Protease Inhibitor-Cocktail | Roche | 1697498 | |
| Streptavidin-Kügelchen | Thermo Scientific | 20353 | |
| Chemilumineszenz | Perkin Elmer | NEL104001EA | |
| Reagenzien | |||
| Fettfreie Trockenmilch | Nelke | N/A | |
| Tween-20 | BioRad | 170-6539 | |
| Tris-gepufferte Kochsalzlösung (TBS) | BioRad | 170-6435 | |
| Rinderserumalbumin (BSA) | Gibco | 15120 | |
| Primär und sekundär | |||
| Antikörper gegen monoklonales | |||
| Foundation Therapeutics, Inc., Chapel Hill, NC | Anti-Ezrin | ||
| Laufpuffer 10x | BioRad | 161-0772 | |
| Transferpuffer 10x ( ohne SDS) | BioRad | 161-0771 | |
| Methanol | Fisher | A4129 | |
| Scharzähler | Beckman Coulter | Z1Coulter Partikelzähler | |
| Standard Zelle Kulturausrüstung | |||
| Zellkulturhaube mit UV-Licht | |||
| Vorratskolben | |||
| Transwell-Filter-24mm | Corning | 3412 | |
| 4 cm Zellkulturschalen | |||
| pH-Meter | |||
| 15 ml und 50 ml konische Röhrchen | |||
| 1,5 ml Eppendorf Tuben | |||
| Gummipolizist | |||
| Kühlraum | |||
| Eiskübel und Eis | |||
| 27 G Nadeln | |||
| 37 º C Inkubator | |||
| Thermometer | |||
| Tischzentrifuge | |||
| Gekühlte Zentrifuge | |||
| Elektrophoresegerät | |||
| Entwickler | |||
| Film | GE Amersham | 28-9068-36 | |
| PVDF-Membran | Millipore | IPVH00010 | |
| ImageJ Software | NIH |
Referenzen
- Sigismund, S., et al. Endocytosis and signaling: cell logistics shape the eukaryotic cell plan. Physiol. Rev. 92, 273(2012).
- Andersson, E. R. The role of endocytosis in activating and regulating signal transduction. Cell Mol. Life Sci. 69, 1755(2012).
- Grant, B. D., Donaldson, J. G. Pathways and mechanisms of endocytic recycling. Nat. Rev. Mol. Cell Biol. 10, 597(2009).
- Bretscher, M. S., Lutter, R. A new method for detecting endocytosed proteins. EMBO J. 7, 4087(1988).
- Watts, C., Davidson, H. W. Endocytosis and recycling of specific antigen by human B cell lines. EMBO J. 7, 1937(1988).
- Graeve, L., Drickamer, K., Rodriguez-Boulan, E. Polarized endocytosis by Madin-Darby canine kidney cells transfected with functional chicken liver glycoprotein receptor. J. Cell Biol. 109, 2809(1989).
- Garza, L. A., Birnbaum, M. J. Insulin-responsive aminopeptidase trafficking in 3T3-L1 adipocytes. J. Biol. Chem. 275, 2560(2000).
- Le, T. L., Joseph, S. R., Yap, A. S., Stow, J. L. Protein kinase C regulates endocytosis and recycling of E-cadherin. Am. J. Physiol. Cell Physiol. 283, C489(2002).
- Swiatecka-Urban, A., et al. PDZ-domain interaction controls the endocytic recycling of the cystic fibrosis transmembrane conductance regulator. J. Biol. Chem. 277, 40099(2002).
- Swiatecka-Urban, A., et al. Myosin VI Regulates Endocytosis of the Cystic Fibrosis Transmembrane Conductance Regulator. J. Biol. Chem. 279, 38025(2004).
- Swiatecka-Urban, A., et al. The short apical membrane half-life of rescued uF508-CFTR results from accelerated endocytosis uF508-CFTR in polarized human airway epithelial cells. J. Biol. Chem. 280, 36762(2005).
- Swiatecka-Urban, A., et al. Pseudomonas aeruginosa inhibits endocytic recycling of CFTR in polarized human airway epithelial cells. Am. J. Physiol. Cell. Physiol. 290, C862(2006).
- Swiatecka-Urban, A., et al. Myosin Vb is required for trafficking of the cystic fibrosis transmembrane conductance regulator in Rab11a-specific apical recycling endosomes in polarized human airway epithelial cells. J. Biol. Chem. 282, 23725(2007).
- Ye, S., et al. c-Cbl facilitates endocytosis and lysosomal degradation of cystic fibrosis transmembrane conductance regulator in human airway epithelial cells. J. Biol. Chem. 285, 27008(2010).
- Cihil, K. M., et al. Disabled-2 protein facilitates assembly polypeptide-2-independent recruitment of cystic fibrosis transmembrane conductance regulator to endocytic vesicles in polarized human airway epithelial cells. J. Biol. Chem. 287, 15087(2012).
- MacEachran, D. P., et al. The Pseudomonas aeruginosa secreted protein PA2934 decreases apical membrane expression of the cystic fibrosis transmembrane conductance regulator. Infect. Immun. 75, 3902(2007).
- Pagano, A., Crottet, P., Prescianotto-Baschong, C., Spiess, M. In vitro formation of recycling vesicles from endosomes requires adaptor protein-1/clathrin and is regulated by rab4 and the connector rabaptin-5. Mol. Biol. Cell. 15, 4990(2004).
Nachdrucke und Genehmigungen
