Das Ziel dieses Protokolls ist es, mittels elektronenparamagnetischer Resonanz (EPR) überwachter Redox-Titrationen verschiedene Cofaktoren von Saccharomyces cerevisiae Nar1 zu identifizieren. Redox-Titrationen bieten eine sehr robuste Möglichkeit, Mittelwertpotentiale verschiedener redoxaktiver Cofaktoren in Enzymen und Proteinen zu erhalten.
Ein Abonnement von JoVE ist erforderlich, um diesen Inhalt anzuzeigen. Melden Sie sich an oder beginnen Sie noch heute mit einer kostenlosen Testphase.
Methodenartikel
EPR Wachte Redox-Titration der Cofaktoren von
In diesem Artikel
Zusammenfassung
Zusammenfassung
Elektronenspinresonanz (EPR) überwacht Redoxtitrationen sind eine leistungsfähige Methode, um die Mittelpunktpotential von Kofaktoren in Proteinen zu bestimmen und in ihrer nachweisbaren Redoxzustand Identifizierung und Quantifizierung der Cofaktoren.
Die Technik ist komplementär zur direkten Elektro (Voltammetrie) nähert, wie sie geben keine Information über Elektronentransferraten, aber die Identität und Redoxzustand der Cofaktoren in die untersuchte Protein. Das Verfahren ist allgemein anwendbar auf jedes Protein, das eine paramagnetische Elektronenresonanz (EPR) nachweisbar Cofaktor.
Eine typische Titration benötigt 2 ml Protein mit einem Cofaktor-Konzentration im Bereich von 1-100 uM. Das Protein wird mit einem chemischen Reduktionsmittel (Natriumdithionit) oder Oxidationsmittel (Kaliumferricyanid), um die Probe bei einer bestimmten Potential poise titriert. Ein Platindraht und eine Ag / AgCl-Referenzelektrode auf ein Volt angeschlossenMessgerät, das Potential der Proteinlösung zu messen. Ein Satz von 13 verschiedenen Redoxvermittler verwendet, um zwischen den Redox-Cofaktoren des Proteins und den Elektroden zu äquilibrieren. Proben werden bei verschiedenen Potentialen und der Elektronenspinresonanz-Spektren, charakteristisch für die verschiedenen Redox-Cofaktoren in die Protein gezogen, werden gemessen. Die Handlung der Signalintensität gegenüber dem Potential der Probe wird unter Verwendung der Nernst-Gleichung, um das Mittelpunktpotential des Cofaktors zu bestimmen.
Einleitung
Auffällig ist, dass die grundlegenden chemischen Prozesse Erhaltung des Lebens auf diesem Planeten, die Photosynthese, die Stickstoff-Fixierung und die Atmung, werden von großen Proteinkomplexen, die eine breite Palette von organischen und anorganischen Redox-Cofaktoren katalysiert. Es wurde geschätzt, dass etwa 30% aller Proteine eines oder mehrere Metall-Cofaktoren enthalten. 1,2 Identifizierung und Charakterisierung der Redox-Cofaktoren können durch direkte Elektrochemie (zB Proteinfilm Voltammetrie) oder Redox-Titration festgestellt werden. Die beiden Techniken ergänzen sich in ihrer Art und Anwendbarkeit. Voltammetrie bietet schnelle Bestimmung der Mittelpunktspotentiale und Elektronentransfer Kinetik der Kofaktoren, die mit einer Elektrodenoberfläche reagieren kann. 3,4 Normalerweise funktioniert gut für den Elektronentransfer-Proteinen wie Cytochrom c oder Ferredoxin. Und es funktioniert manchmal komplexer Proteine, die an einer Elektrodenoberfläche immobilisiert wurden. Detaillierte Kenntnisse über dieNatur Kofaktoren im Protein zur Verfügung stehen, da die Voltammogramm nicht geben keine direkte Information über die Identität der Co-Faktor. Redoxtitrationen sind mühsam durchzuführen und erfordern mg Proteinmengen. Sie bieten jedoch Informationen über die Mittelpunktpotential, und die Identität des Cofaktors. 5 ferner in einer einzigen Titration mehrere Cofaktoren in einem Protein kann überwacht werden.
Das Prinzip einer Redoxtitration ist, dass die redoxaktive Protein oder Enzym chemisch reduziert oder oxidiert. Um sicherzustellen, dass die Co-Faktoren mit den Reduktionsmittel oder Oxidationsmittel Redoxmediatoren werden verwendet, reagieren. Diese Redoxmediatoren reagieren auch mit einer Elektrode, so daß das Potential der Lösung gemessen werden kann. Die Mediatoren wirken als Redox-Puffer und äquilibrieren zwischen den Cofaktoren in dem Protein und der Elektrode. Nach chemisch poising das Potential auf den gewünschten Wert, wird eine Probe gezogen und schnell in flüssigem Stickstoff eingefroren await weiteren Analyse mit spektroskopischen Methoden. EPR-Spektroskopie ist insbesondere in dieser Hinsicht nützlich, da sie zur quantitativen Messung paramagnetischen Metallzentren oder organische Reste sein.
Die Redox-Titration kann in zwei Richtungen durchgeführt werden: von niedrig zu hoch oder von hoch auf niedrig Mittelpunktpotential. Die Wahl ist abhängig von der Stabilität der Cofaktoren im Studium. Oft ist es ratsam, auf niedrigem Potential starten und Oxidationsmittel, um schrittweise erhöhen das Risiko. Dies wird als ein oxidatives Titration und wird hier beschrieben. Hier zeigen wir die Redox-Titration des Eisen-Schwefel-Cluster mit Protein Nar1 aus Saccharomyces cerevisiae. Dieses Protein beteiligt ist, wahrscheinlich als Gerüstprotein, im Cytosol-Eisen-Schwefel-Cluster-Biosynthese-Maschinerie (CIA-Weg). 6,7
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Protokoll
1. Vorbereitung der Einrichtung und Lösungen
- Bereiten Pufferlösung, die 100 mM Tris, 250 mM NaCl und 10% Glycerin bei pH 8,5. Entlüften Sie die Puffer durch Spülen mit Argon. Führen Sie den Puffer in einer anaeroben Kammer.
- Teilen Sie den Puffer in zwei Bereiche. Zu einer Portion (Puffer A) in 1 mM DL-Dithiothreit (DTT, M r 154.25 g / mol) und 1 mM L-Cystein. Der andere Teil (Puffer B) enthält keine Reduktionsmittel.
- Bereiten Oxidations- und Reduktionslösungen. Auffüllen auf 1 ml Lösung von 2, 20 und 200 mM Kaliumferricyanid (FIC, M r 329,26 g / Mol) und Natriumdithionit (SD, M r 174.11 g / mol) in anaeroben Puffer B.
- Bereiten Vermittler Mischung wie folgt:
- Hinzufügen 160 uM von jedem der folgenden Redoxmediatoren und 50 mM NaCl Puffer B: N, N, N ', N' -tetramethyl-p-phenylendediamine (TMPD, M r 237,17 g / mol, E '0 0,276 V) , 2,6-Dichlorphenol-Indophenol(DCIP, M r 290,08 g / mol, E '0 0,217 V), Phenazinethosulfat (PES, M r 334,4 g / mol, E' 0 0,055 V), Methylenblau (M r 319,85 g / mol, E ' 0 0,011 V), Resorufin (M r 235,17 g / mol, E '0 -0,051 V), Indigodisulphonate (M r 466,35 g / mol, E' 0 -0,125 V), 2-Hydroxy-1,4-naphtaquinone ( M r 174.15 g / mol, E '0 -0,145 V), Anthrachinon-2-sulfonat (M r 328,28 g / mol, E' 0 -0,225 V), Phenosafranin (M r 322,8 g / mol, E '0 -0,252 V), Safranin O (M r 350,84 g / mol, E '0 -0,280 V), Neutralrot (M r 288,8 g / mol, E' 0 -0,340 V), Benzylviologen (M r 409,4 g / mol, E '0 -0,350 V) und Methylviologen (M r 257,16 g / mol, E' 0 -0,440 V).
- Wickeln Sie die Flasche mit Aluminiumfolie, die Vermittler zu schützens aus Licht.
- Herstellung von 10 mg / ml S. cerevisiae Strep-Tags Nar1 Protein (181 & mgr; M r 55,2 kDa) in Puffer A Express S. cerevisiae Nar1 in E. coli als Strep-markierte Protein mit Hilfe eines pET24a Expressionsvektor. Reinige das Protein in einer anaeroben Kammer mit Strep-Tactin Chromatographiemedium (IBA) und reinigt unter Verwendung einer Protein-Reinigungssystem wie Akta Reiniger (GE Healthcare).
- Bereiten Sie die Redoxtitration Setup in einer anaeroben Kammer wie folgt:
- Schließen Sie eine Ag / AgCl-Referenzelektrode und eine Platindrahtelektrode in das Titriergefäss. Verbinden Sie die beiden Elektroden mit einem Voltmeter, die von mV bis V messen kann
- Legen Sie einen kleinen Rührstab.
- Stellen Sie das Titriergefäss über einem Magnetrührer.
- Füllen Sie das Titriergefäß mit Puffer B, Mittler-Mix-Lösung und Proteinlösung auf bis zu 2 ml, das heißt, um Endkonzentrationen von 72 & mgr; M-Protein und 38 & mgr; M von jedemVermittler. Hinweis: in Abhängigkeit von der Proteinkonzentration und der erforderliche Mediatorkonzentrationen der Mengen der drei Lösungen angepasst werden.
- Rühre 30 Minuten und schalten Sie das Voltmeter.
- Bereiten Sie 10 saubere Quarzglasrohre EPR. Einführung der Rohre in der anaeroben Kammer.
- Füllen Sie eine kleine (ca. 200 ml) mit flüssigem Stickstoff Dewar mit flüssigem Stickstoff.
2. Führen Sie Redoxtitration
- Warten, bis das Potential der Lösung stabil ist. Hinweis: In der Praxis bedeutet dies, dass das Potenzial driftet weniger als 1 mV pro Minute.
- Notieren Sie sich das Potenzial durch das Voltmeter angegeben.
- Zeichnen Sie die erste Probe von 200 ul und spritzen in ein EPR-Röhrchen.
- Das Röhrchen mit einem Gummistopfen und entfernen Sie den Schlauch aus dem anaeroben Kammer.
- Frieren Sie das Rohr in Flüssigstickstoff, wie folgt: Vorsicht! Dies muss langsam erfolgen, da sonst das Rohr zu brechen.
- Führen Sie zuerst die tip des Rohrs in den flüssigen Stickstoff.
- Warten Sie, bis ein Zischen zu hören ist. Hinweis: Dies kann bis zu 10 Sekunden dauern.
- Langsam fügen Sie den Rest der Röhre, so dass das Musterteil vollständig untergetaucht ist.
- Hinzufügen eines kleinen aliquoten 1-2 ul der 2 mM SD zu der Lösung in das Titriergefäss um das Potential der Lösung auf -0,6 V. abzusenken
Hinweis: Wenn mehr als 10 & mgr; l und hinzugefügt werden, der dem 20-mM-Lösung zu wechseln. Da es sehr schwierig ist, auf einen bestimmten Potentialwert poise werden die Ist auf dem Voltmeter zeichneten Werte notiert und verwendet, um die Titrationskurve zu konstruieren. - Zeichnen Sie eine Probe, wie in Schritt 2,3 bis 2,5 beschrieben.
- Notieren Sie sich die tatsächliche Potenzial durch das Voltmeter angegeben.
- Oxidationsmittel hinzuzufügen, bis das Potential von ca. 50 mV erhöht. Beginnen Sie, indem Sie einen kleinen aliquoten 1-2 ul der 2 mM FIC Lösung. Wenn mehr als 10 & mgr; l und hinzugefügt werden, der dem 20-mM-Lösung zu wechseln.
- Notieren Sie how viel der Lösungen wurde hinzugefügt. Hinweis: Dies ist notwendig, um für die Probenverdünnung während der Titration zu korrigieren.
- Zeichnen Sie ein Muster wie in der Schritte 2,3-2,5 beschrieben.
- Notieren Sie sich die tatsächliche Potenzial durch das Voltmeter angegeben.
- Wiederholen Sie die Schritte 2,9 und 2,12, bis das Potential Bereich von -0,6 V bis 0,2 V abgedeckt wurde und alle 10 EPR Röhren sind jeweils mit 200 ul gefüllt.
Hinweis: Da das Volumen mit jedem Rücknahmen zu verringern ist die Positionierung der Elektroden muss unter Umständen angepasst werden, einen guten Kontakt mit der Lösung ohne Störung des Rühren. Es kann schwierig sein, das Potential nach der Entnahme der letzten Probe und damit das Potential dieser Probe möglicherweise weniger genau zu messen. - Wahlweise speichern die gefrorenen EPR Proben in flüssigem Stickstoff bis die EPR-Messungen stattfinden kann.
3. Messen Titration Samples Mit EPR-Spektroskopie und Datenanalyse
- Nehmen EPR-Spektren der verschiedenenTitration Proben wie folgt:
- Verwenden Sie eine Hochvakuumpumpe, um einen Quarz Kryostat auf <10 -5 bar zu evakuieren.
- Schalten Sie die Wasserkühlung des EPR Magnet. Öffnen die Strömung von trockener Luft durch das EPR Höhle.
- Einschalten der Stromversorgung des Magneten und dem Rechner des EPR.
- Führen Sie einen Frequenzkalibrierungsprogramm. Stellen Sie die EPR-Messparameter. Schließen Sie den Kryostaten auf das flüssige Helium-Dewar. Kühlen Sie den Hohlraum mit 9-16 K.
- Einführung der EPR Probe in den Hohlraum. Notieren Sie sich die EPR-Spektrum.
- Identifizieren Sie die verschiedenen Arten EPR und verwenden Sie den besten Spektren, um die Signale zu quantifizieren. Erreichen EPR Quantifizierung durch doppelte Integration des Spektrums und Vergleich mit dem Spektrum von einer externen Kupferstandardlösung 10 mM CuSO 4/10 mM HCl / 2 M NaClO 4. 8
- Stellen Sie die Titrationskurve wie folgt:
- Zeichnen Sie die EPR-Signalamplitude in einem g-Wert, der charakteristisch für die para istmagnetische Spezies von Interesse gegen das Potenzial.
- Ändern Sie das EPR-Signal Amplitudenskala, ein Spin / Molekül Skala mit Hilfe der EPR Quantifizierung von Schritt 3.2.
- Korrigieren der Signalamplitude von jeder Probe für die Verdünnung, die durch die Zugaben von Oxidations- oder Reduktionsmittel stattgefunden hat.
- Korrigieren das Potential für die Mittelpunktpotential der Ag / AgCl-Referenzelektrode.
Anmerkung: Die Ag / AgCl Referenzelektrode (mit gesättigter KCl) ein Mittelpunktpotential von 0,194 V gegen die Standardwasserstoffelektrode (SHE) bei 25 ° C. Deshalb, wenn das Potential auf dem Voltmeter circa -0.6 V, das Potential mit Bezug auf die SHE -0,4 V.
- Setzen Sie das Signal an die Nernst-Gleichung wie folgt:
Für eine Spezies, die paramagnetische im reduzierten Zustand ist: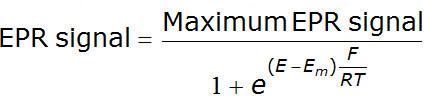
Für eine Spezies, die paramagnetischen in oxidized Zustand: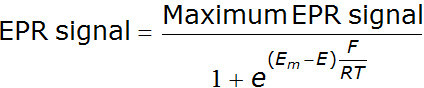
Für eine Spezies, die paramagnetischen in einem Zwischenzustand ist: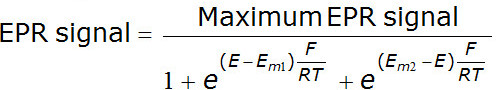
Diese Gleichungen gelten für Redox-Reaktionen, bei denen ein Elektron übertragen wird, so dass n = 1.
E = Potenzial in Volt
E m = Mittelpunktpotential in Volt
F = Faraday-Konstante = 96.480 C · mol -1
R = Gaskonstante = 8,314 J · K -1 · mol -1
T = Temperatur in Kelvin
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Ergebnisse
Die Redox-Titration des Eisen-Schwefel-Cluster-enthaltenden Proteins Nar1 aus Saccharomyces cerevisiae, führte zur Identifizierung von drei verschiedenen Kofaktoren: Nar1: a [3Fe 4S] -Cluster, a [4Fe-4S] Cluster und eine einkernige Fe entfernt (Figur 1) . Die EPR-Signale werden durch ihre g-Werte gekennzeichnet: für die [3 Fe-4S] + g z 2.01 g Crossover 2,00 (1B); für die [4Fe-4S] +, g z 2,02 g y 1,93, g x
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Diskussion
Die Reihe von 13 Redoxmediatoren ermöglicht eine Redoxgleichgewicht in der Lösung im Bereich von -0.45 bis +0,3 V gegen SHE (Tabelle 1 und Abbildung 3). Weit oberhalb und unterhalb dieser Potentiale alle Mediatoren entweder vollständig reduziert oder vollständig oxidiert und somit keine weitere Äquilibrierung mit den redox-aktiven Zentren des Proteins erfolgen kann. Dies ist ein wichtiger Begriff, wie in der Literatur manchmal Redoxtitrationen sind mit nur zwei oder drei Vermittler durc...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Offenlegungen
Die Autoren haben nichts zu offenbaren.
Danksagungen
Diese Arbeit wurde durch ein Forschungsstipendium von der Dutch National Research School Kombination, Katalyse durch Chemical Design (NRSC-Katalyse) Kontrollierte unterstützt. Dr. HY Steensma und Dr. GPH van Heusden an der Universität Leiden sind für ihre Unterstützung bei der rekombinanten Expression von S. anerkannt cerevisiae Nar1.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Referenzelektrode (Ag/AgCl) | Radiometer | ||
| Chemikalien | Sigma-Aldrich | ||
| EPR-Spektrometer | Bruker | ||
| N,N,N',N' -Tetramethyl-p-phenylendediamin (TMPD) & Middot; (HCl)2 | 637-01-4 | ||
| 2,6-Dichlorphenol-Indophenol (DCIP), Natriumsalz | 620-45-1 | ||
| Phenazin-Ethosulfat (PES) | 10510-77-7 | ||
| Methylenblau | 122965-43-9 | ||
| Resorufin, Natriumsalz | 34994-50-8 | ||
| Indigodisulfonat (Indigokarmin) | 860-22-0 | ||
| 2-Hydroxy-1,4-naphtachinon | 83-72-7 | ||
| Anthrachinon-2-sulfonat Na+ H2O | 153277-35-1 | ||
| Phenosafranin | 81-93-6 | ||
| Safranin O | 477-73-6 | ||
| Neutralrot | 553-24-2 | ||
| Benzyl viologen | 1102-19-8 | ||
| Methyl viologen | 1910-42-5 |
Referenzen
- Lippard, S. J., Berg, J. M. Principles of Bioinorganic Chemistry. , University Science Books. (1994).
- Bertini, I. Bioinorganic Chemistry. , University Science Books. 611(1994).
- Leger, C., et al. Enzyme Electrokinetics: Using Protein Film Voltammetry To Investigate Redox Enzymes and Their Mechanisms. Biochemistry. 42, 8653-8662 (2003).
- Hagen, W. R. Direct Electron Transfer of Redox Proteins at the Bare Glassy Carbon Electrode. Eur. J. Biochem. 182, 523-530 (1989).
- Pierik, A. J., et al. Redox Properties of the Iron-Sulfur Clusters in Activated Fe-Hydrogenase from Desulfovibrio vulgaris (Hildenborough). Eur. J. Biochem. 209, 63-72 (1992).
- Balk, J., Pierik, A. J., Netz, D. J., Muhlenhoff, U., Lill, R. The Hydrogenase-like Nar1p is Essential for Maturation of Cytosolic and Nuclear Iron-Sulphur Proteins. EMBO J. 23, 2105-2115 (2004).
- Sharma, A. K., Pallesen, L. J., Spang, R. J., Walden, W. E. Cytosolic Iron-Sulfur Cluster Assembly (CIA) System: Factors, Mechanism, and Relevance to Cellular Iron Regulation. J. Biol. Chem. 285, 26745-26751 (2010).
- Aasa, R., Vänngård, T. EPR Signal Intensity and Powder Shapes. A Reexamination. J. Magn. Reson. 19, 308-315 (1975).
- Balk, J., Pierik, A. J. A., Netz,, J, D., Mühlenhoff, U., Lill, R. Nar1p, a conserved eukaryotic protein with similarity to Fe-only hydrogenases, functions in cytosolic iron-sulphur protein biogenesis. Biochem. Soc. Trans. 33, 86-89 (2005).
- Hennessy, D. J., Reid, G. R., Smith, F. E., Thompson, S. L. Ferene - a new spectrophotometric reagent for iron. Can. J. Chem. 62, 721-724 (1984).
- Flint, D. H., Emptage, M. H., Guest, J. R. Fumarase A from Escherichia coli: purification and characterization as an iron-sulfur cluster containing enzyme. Biochemistry. 31, 10331-10337 (1992).
- Hagedoorn, P. L., Driessen, M. C., Mvd Bosch,, Landa, I., Hagen, W. R. Hyperthermophilic Redox Chemistry: a Re-evaluation. FEBS Lett. 440, 311-314 (1998).
- Tadesse, M. A., D'Annibale, A., Galli, C., Gentili, P., Sergi, F. An assessment of the relative contributions of redox and steric issues to laccase specificity towards putative substrates. Organic & biomolecular chemistry. 6, 868-878 (2008).
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Nachdrucke und Genehmigungen
