Die Aufzeichnung von Ca2+-Strömen an der präsynaptischen Freisetzungsgesichtsmembran ist der Schlüssel zu einem präzisen Verständnis des Ca2+-Eintritts und der Neurotransmitterfreisetzung. Wir präsentieren eine akute Dissoziation des Neunauge-Rückenmarks, die funktionelle isolierte retikulospinale Axone liefert, die eine Aufzeichnung direkt von der Freisetzungsgesichtsmembran einzelner präsynaptischer Endungen ermöglichen.
Ein Abonnement von JoVE ist erforderlich, um diesen Inhalt anzuzeigen. Melden Sie sich an oder beginnen Sie noch heute mit einer kostenlosen Testphase.
Methodenartikel
Akute Dissoziation von Neunauge retikulospinale Axone in den Aufnahme von der Trennfläche Membran einzelner Funktions präsynaptischen aktivieren
In diesem Artikel
Zusammenfassung
Zusammenfassung
Synaptischen Übertragung ist ein extrem schnelles Verfahren. Aktionspotential angetrieben Einstrom von Ca 2 + in den präsynaptischen Terminal durch spannungsabhängige Kalziumkanäle (VGCCs) in der Trennfläche Membran befindet, ist der Auslöser für die Fusion von Vesikeln und die Freisetzung von Neurotransmittern. Entscheidend für die Schnelligkeit der synaptischen Übertragung ist die räumliche und zeitliche Synchronität zwischen der Ankunft des Aktionspotentials, VGCCs und der Neurotransmitter-Freisetzung Maschinen. Die Möglichkeit, direkt aufzeichnen Ca2 + Ströme von der Trennfläche Membran der einzelnen präsynaptischen ist zwingend notwendig für eine genaue Verständnis der Beziehung zwischen präsynaptischen Ca2 + und die Freisetzung von Neurotransmittern. Zugang zu der präsynaptischen Membran Trennfläche für elektrophysiologische Aufzeichnung ist nicht verfügbar in den meisten Präparaten und präsynaptischen Ca2 +-Eintrag wurde mit bildgebenden Techniken und makroskopischen Strom MeasureMe gekennzeichnetNTS - Techniken, die nicht über ausreichende zeitliche Auflösung zu Ca 2 +-Eintrag zu visualisieren. Die Charakterisierung der VGCCs direkt an einzelnen präsynaptischen war nicht in zentralen Synapsen möglich und wurde bisher erfolgreich nur in der Kelch-Typ-Synapse des Kükens Ciliarganglion und in Ratten Kelche erreicht. Wir haben erfolgreich in der Riesensynapse retikulospinale der Neunauge Rückenmark durch die Entwicklung einer akut dissoziierten Vorbereitung des Rückenmarks, die isoliert retikulospinale Axone mit funktionellen präsynaptischen frei von postsynaptischen Strukturen ergibt adressiert dieses Problem. Wir können fluoreszenzkennzeichnen und zu identifizieren einzelnen präsynaptischen und Ziel sie für die Aufnahme. Mit dieser Vorbereitung, wir haben VGCCs direkt an der Trennfläche der einzelnen präsynaptischen Enden mittels Immunhistochemie und Elektro Ansätze aus. Ca 2 + Ströme wurden direkt an der Trennfläche Membran o aufgezeichnetf einzelnen präsynaptischen Terminals, die erste derartige Aufnahme an zentralen Synapsen durchgeführt werden.
Einleitung
Synaptischen Übertragung ist eine extrem schnelle und präzise Prozess. Aktionspotential Invasion der präsynaptischen Terminal führt zum Öffnen VGCCs in der Trennfläche Membran, die daraus resultierende Erhöhung der präsynaptischen Ca2 + als Auslöser für die Fusion von Vesikeln und die Freisetzung von Neurotransmittern 1 wirkenden entfernt. Alle diese Schritte werden innerhalb von hundert Mikrosekunden 2, und erfordern daher enge räumliche Kopplung von VGCCs auf die Fusion von Vesikeln Maschinen 3. Präsynaptischen Ca2 + Flüsse wurden in erster Linie durch bildgebende Ansätze mit Ca2 +-sensitiven Farbstoffen 4 gekennzeichnet. Einbau Ca 2 +-Puffer, die Ca 2 + modulieren präsynaptischen Neuronen wurde verwendet, um indirekt zu charakterisieren, die die Beziehung zwischen präsynaptischen Calcium und Neurotransmission 3. Darüber hinaus Modulation der präsynaptischen Ca2 +-Konzentration frei von Uncaging Ca 2 + 5 oder Aufnahme macroscopic Ca 2 + Strömungen in Verbindung mit Maßnahmen der Fusion von Vesikeln und / oder Freisetzung verwendet; wie Kapazitätsmessungen 6 oder postsynaptischen Antworten 2, um die gleiche Frage anzugehen. Allerdings Charakterisierung Ca2 + Ströme direkt an der Trennfläche, die Fachgruppe der präsynaptischen Membran, wo Depolarisation der Membran ist in Ca 2 + übersetzt Ströme Auslösung synaptischen Vesikel Fusion und Freisetzung von Neurotransmittern, ist integraler Bestandteil erhalten eine genaue Messung der Ca 2 + Voraussetzung für die synaptischen Vesikel Fusion. Darüber hinaus ist die Fähigkeit, direkt zu charakterisieren Ca2 + Ströme an einzelnen präsynaptischen Enden, verbunden mit genauen gleichzeitige Messungen Vesikelverschmelzung und Freisetzung ermöglicht eine genaue Erläuterung der zeitlichen Beziehung zwischen dem Zeitverlauf des Aktionspotentials, präsynaptischen Ca 2 + Strom, Fusion von Vesikeln und loslassen. Zugriff auf die Trennfläche Membranist nicht in der Mehrheit der präsynaptischen Enden durch Anlagerung von den postsynaptischen Dendriten zu schließen. Diese Unzugänglichkeit ist ein großes Hindernis bei der Charakterisierung von VGCCs, da es verhindert, dass direkte Messungen von Strom an einzelnen präsynaptischen Terminals. Direkte Charakterisierung der präsynaptischen Ca2 + Ströme bei einzelnen präsynaptischen bisher nicht im Zentrum von Synapsen möglich und wurde nur in zwei Kelchtyp präsynaptischen erreicht worden; Kelch-Typ-Synapse der Küken Ciliarganglion 7-10 und Ratten Kelche 11,12. In allen anderen präsynaptischen einschließlich der riesigen retikulospinale Synapse in der Neunauge Rückenmark 13, hat der Mangel an Zugang zu der präsynaptischen Membran Trennfläche die Verwendung der indirekten Ansätze notwendig, wie Ca 2 +-Bildgebung zu präsynaptischen Ca2 + Flüsse zu studieren.
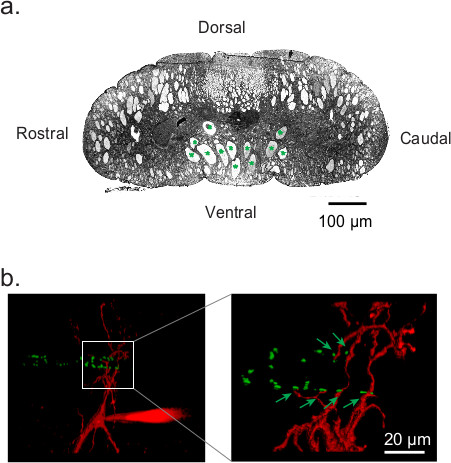 Abbildung 1. Neunauge Riesen retikulospinale Synapse. (A) Querschnitt von Neunauge Rückenmark zeigt dorso-ventralen Ausrichtung. Retikulospinale Axone sind mit grünen Stern markiert. (B) 3-D-Rekonstruktion des retikulospinale Synapse im Rückenmark, die Neunauge präsynaptischen Axon retikulospinale machen zahlreiche en passant Kontakte (durch grüne Pfeile markiert) auf der postsynaptischen Neuron 13. Präsynaptischen Terminals wurden mit Alexa Fluor 488 Hydrazid Phalloidin (grün) markiert worden, während der postsynaptischen Neuron mit Alexa Fluor 568 Hydrazid (rot) gefüllt wurde.
Neunauge Riesen retikulospinale Axone, in der ventralen Region des Rückenmarks parallel zur rostral-kaudale Achse 1a, Form mehrerer en passant synaptische Kontakte liegt auf Neuronen desVorderhorn des Rücken 14 1b 13. Makroskopischen Ganzzell Ca2 + Ströme wurden von retikulospinale Axone im Rückenmark intakt 13,15 aufgezeichnet. Allerdings vorherigen Blindversuche direkte Messung von Ca2 + Ströme in retikulospinale Axone im Rückenmark intakt Neunauge mit Cell-Attached-Patch-Clamp-Technik erfolglos 13 aufgrund fehlender Zugang zu der präsynaptischen Membran Trennfläche durch den gegenüberliegenden postsynaptischen Prozesse bewährt Abbildung 1b. Die Trennfläche Membran zuvor zugänglich durch Entfernen der postsynaptischen Neuron 11, mechanische Störung des Synapse vor der Aufzeichnung 12 oder enzymatische Behandlung in Verbindung mit mechanischer Dissoziation 16 hergestellt. Angesichts der komplexen Organisation des Rückenmarks, kann es äußerst schwierig sein würde, die postsynaptischen Neuron identifizieren und zurückgezogen werden mechanisch oder stören the Synapse. Daher haben wir beschlossen, enzymatische Behandlung 17, gefolgt von mechanischen Dissoziation zu verwenden.
Mit diesem Ansatz haben wir eine akut dissoziierten Vorbereitung der Neunauge Rückenmark, das lebensfähig isoliert retikulospinale Axone mit funktionellen präsynaptischen ohne jegliche postsynaptischen Prozesse ergibt entwickelt, wodurch eine uneingeschränkte Zugriff auf die einzelnen präsynaptischen Terminals. In Verbindung mit einem Standard-Umkehrmikroskop und Fluoreszenz-Bildgebung ermöglicht es uns zu erkennen und gezielt einzelne fluoreszenz identifiziert präsynaptischen Terminals, mit einer Patch-Pipette, die eine Aufzeichnungslösung, die Ca 2 + Ströme 4c und 4d-Isolate, für die Aufnahme mit zell angebracht Voltage-Clamp-Technik. Ca 2 + Ströme wurden direkt an der präsynaptischen Membran Trennfläche der einzelnen präsynaptischen 4f aufgezeichnet. Dies ist eine significaNT im Bereich der synaptischen Übertragung Durchbruch, da es die erste derartige Aufnahme bei zentralen Synapsen durchgeführt werden soll.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Protokoll
1. Herstellung von Poly-D-Lysin-Hydrobromid
- Vorbereitung 1 mg / ml Poly-D-Lysin-Hydrobromid in 0,1 M Boratpuffer (pH 8,5).
- Aliquoten und bei -20 ° C.
2. Poly-Lysin-Beschichtung von Deckgläser
Hinweis: Führen Sie alle Reinigungs und Beschichtungsschritte in einer laminaren Strömungskammer.
- Deck Ort in eine Petrischale mit 1 N Salzsäure (HCl) für 2 Stunden.
- Saugen Sie alle HCl und spülen mit 70% Ethanol (EtOH) 2-3 x.
- Lassen Sie in 70% EtOH für 1 Stunde.
- Saugen Sie alle 70% EtOH und spülen Sie mit 100% EtOH 2-3x.
- Lassen Sie in 100% EtOH für 2 Stunden. Saugen Sie alle EtOH.
- Trocken tupfen und mit Filterpapier an der Luft trocknen für ein paar Sekunden.
- Ort O / N auf 1 mg / ml Poly-Lysin-Lösung.
- Spülen Deckgläser nächsten Tag mit Millipore-Wasser 4-5x.
- Luft trocknen Poly-Lysin beschichtete Deckgläser auf Glasrollen in einer sauberen Petrischale.
- Für immunohistochemistry, verwenden 35 x 10 mm Petrischale Deckel. Bereiten Sylgard (polydimethylsilioxane, PDMS) ausgekleidet Gerichte durch Gießen PDMS (Elastomer und Härter 10: 1 nach Gewicht) in die Schüssel zu einer Dicke von 0,3 cm und lassen bei 30 ° CO / N eingestellt. Sobald dies eingestellt, schneiden Sie ein 2 cm x 1 cm in die PDMS eingelassen. Sauber und Beschichtung der Einsatz mit Poly-Lysin folgenden wie oben erwähnt für Deck die gleichen Schritte.
- Shop poly-Lysin beschichtete Deckgläser und Geschirr in der Laminar-Flow-Kammer bedeckt bis zur Verwendung (bis zu 2 Wochen, aber erzielen beste Ergebnisse Klebstoff durch die Vorbereitung regelmäßig alle 3-4 Tage).
- Bereiten Sie eine PDMS-Block, der in der vibrierenden Gewebe Slicer Pin das Rückenmark. Mischung Elastomer A und Elastomer B 1: 1 beträgt. Gießen Sie in einer 100 x 15 mm Petrischale und lassen Sie O / N bei 30 ° C eingestellt. Schneiden Sie ein rechteckiges Stück der PMDS und kleben Sie es auf die Schneidegrundplatte mit Epoxy-Kleber. Lassen Sie den Kleber zur Festsetzung der PDMS in Kraft gesetzt und in Scheiben schneiden mehrere dünne Schnitte von der Oberfläche eine Wohnung zu erhaltenOberfläche, um das Gewebe zu fixieren.
3. Akute Dissoziation von Neunauge Rückenmark zu Isolierte retikulospinale Axone Ausbeute
- Betäuben eine ammoecoete oder Erwachsener Neunauge (Petromyzon marinus) mit Tricaine Methansulfonats (MS-222; 100 mg / L). Narkose hinzufügen in das Wasser, in einen Plastikbecher mit einem Deckel abgedeckt, die das Neunauge geopfert werden.
- Enthaupten Neunauge in kaltem (4 ° C) Ringer-Lösung der folgenden Zusammensetzung (in mm): 130 NaCl, 2,1 KCl, 2,6 CaCl 2, 1,8 MgCl 2, 4 HEPES, 4 Dextrose (pH-Wert 7,6, die Osmolarität 270 mOsm) und nehmen Körper Wandmuskulatur Rückenfläche des Rückenmarks aus.
- Hirnhaut entfernen Primitiva von der dorsalen Oberfläche des Rückenmarks mit einer feinen Pinzette. Sie ventralen Hirnhaut Primitiva in diesem Stadium nicht entfernen.
- Geschnitten Rückenmark in 1 cm lange Stücke schneiden.
- PIN eines Rückenmarkstück mit feinen Insektenstifte, dorsale Seite nach oben, auf ein PDMS ausgekleidet Schneiden BODENPLAte (siehe 2.12) in einer vibrierenden Gewebe Schneidemaschine Kammer mit eiskalter Ringer-Lösung.
- Entfernen eines zentralen Abschnitts der dorsalen Säule des Rückenmarks durch Schneiden entlang der rostro-kaudalen Achse mit der Klinge, hinter intakte Rückenstützenabschnitte am rostralen und kaudalen Enden dienen als während der Dissoziation 2a und 2b behandelt. Verwenden langsamste Geschwindigkeit Einstellung, die das Schneiden und eine Tiefeneinstellung, die nur die dorsalen Säule Verlassen des zugrunde liegenden retikulospinale Axon Spalte unbeschädigt entfernt 2b ermöglicht.
- Inkubieren Scheiben geschnitten Rückenmark Stücke bei RT für 45 min in einem Cocktail von 1 mg / ml Protease (Typ XIV aus Streptomyces griseus) und 1 mg / ml Kollagenase in Ringer-Lösung (Typ IA aus Clostridium histolyticum) (aus El Manira & Bussières angepasst 1997 17).
- Pin Enzym-behandelten Rückenmark Stücke mit feinen Nadeln in einem PDMS ausgekleidet Petrischale Containing Kälte (4 ° C) Ringer-Lösung.
- Ventralen Hirnhaut entfernen Primitiva mit feinen Pinzette.
- Geschnitten seitlichen Flächen des Rückenmarks mit einem Skalpell in der Mitte des geschnittenen Rückenabschnitt Verlassen der Mittelsäule retikulospinale Axone intakt in das Rückenmark 2d.
- Geben Sie einen Tropfen Immersionsöl auf dem Objektiv.
- Legen Sie die Poly-Lysin beschichtete Deckglas (3a, Oberteil, rotes Rechteck) in den Schlitz der Aufnahmekammer 3 und Vakuum Fett auf alle Kanten (Raum zwischen roten und blauen Rechtecke in 3a, um eine Dichtung zu erleichtern. Schraube die oben einrasten. Setzen Sie die Kammer in dem Einsatz auf der Aufzeichnungs rig.
- Hinzufügen Ringer-Lösung in die Aufzeichnungskammer unter Verwendung einer Pasteurpipette.
- Schließen Sie den Abfluss Schlauch der Druckflasche mit Frostschutzmittel in die thermoelektrische Kühlvorrichtung Eingangsschlauch. Schließen Sie den Ausgut Schlauch der thermoelektrischen Kühlvorrichtung mit dem Eingangsende des Außenkühlmantel und dem Ausgangsende zu dem Reservoir 3b.
- Legen Sie ein Stück des Rückenmarks zu einer Zeit, in der Aufnahme Kammer und sanft trennen das Rückenmark Aufrechterhaltung es entlang der Deckglas zu allen Zeiten mit Teflon beschichtet Pinzette bis Axone isoliert 2e und 2f.
- Bringen des Aufzeichnungslösungstemperatur auf 10 ° C durch Leiten des unter Druck (Stickstoffgas in die Flasche geschoben) Frostschutzmittellösung (durch Verschiebung), über die thermoelektrische Kühlvorrichtung, durch die äußere Kühlmantel der Aufnahmekammer 3b.
- Ermöglichen Axone für 1 h nach der Dissoziation bei 10 ° C erholen.
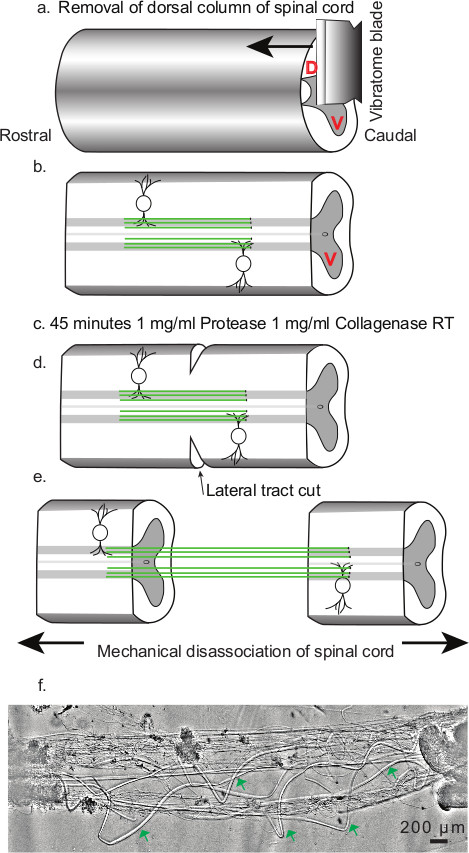
(A) Entfernung von dorsalen Säule. Der Pfeil zeigt die Richtung des Schneidens des Gewebes. Die Rückenwirbel werden durch das Alphabet D (red Schriftfarbe) gekennzeichnet, während die ventralen Hörnern des Alphabets V (roter Schrift Farbe). (B) dorsalen Säule in dem zentralen Abschnitt des Rückenmarks Aussetzen der retikulospinale Axone entfernt (grüne Linien ). Die ventralen Hörner, die nach dem Schneiden Prozess intakt bleiben, werden durch das Alphabet V (rot Schriftfarbe) gekennzeichnet. (C) 45 min Behandlung mit Protease und Kollagenase Enzymen Cocktail (1 mg / ml). (D) Schneiden von Seitenbahnen des Rückenmarks; die die Position, Richtung und Ausmaß der seitlichen Schnitt. (e) mechanische Dissoziation des Rückenmarks. Pfeile zeigen Position der Zange und die Richtung der Trennkraft während Dissoziation. (F) Vertreve Beispiel dissoziiert retikulospinale Axon Vorbereitung. Grüne Pfeile markieren Bereiche mit akut dissoziiert retikulospinale Axone ohne postsynaptischen Prozesse.
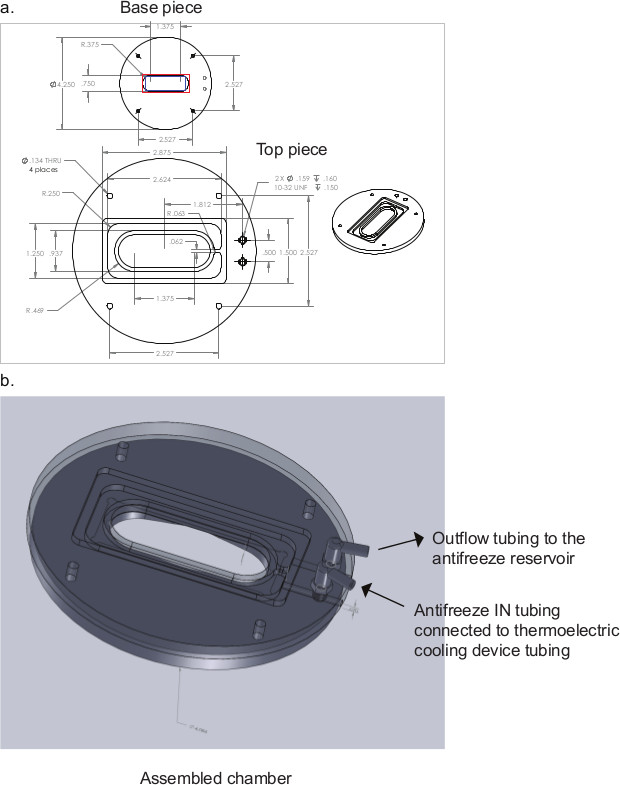
Abbildung 3. Schematische Darstellung der Aufnahme Kammer für die Elektrophysiologie Experimente. Maße vorgesehenen Zoll. In basepiece Diagramm (a) gezeigt rote Rechteck zeigt Positionierung des Deckglases in dem Deckglas Nut in der basepiece. Der Bereich zwischen der roten und blauen Rechteck, in dem basepiece Diagramm (a) gezeigt ist, wo die Hochvakuumfett angewendet wird. (B) zeigt die Aufnahme Kammer montiert.
4. Kennzeichnung und Identifizierung von präsynaptischen Enden mit FM 1-43
- Beschriften Sie präsynaptischen Terminals, durch den Einbau von FM 1-43 in vesicles während der synaptischen exo-Endozytose in der Hoch K + Depolarisation. Perfundieren Vorbereitung mit 5 uM FM 1-43 (in 5 ml Ringer-Lösung, die 30 mM KCl).
- Perfusion Präparat mit 1 mg / ml Advasep-7 (in 5 ml Ringer-Lösung), um überschüssigen Farbstoff FM) 18 zu entfernen.
- Perfusion Zubereitung mit Ringerlösung für 15 Minuten, um jede Remant Farbstoff und dem Advasep auszuwaschen.
- Bild mit 100 × Ölimmersionsobjektiv (NA 1,25) an einem invertierten Fluoreszenzmikroskop, in Verbindung mit einer digitalen CCD-Kamera und Bildaufnahme-Software Mikromanager unter Verwendung von Standardfluoreszenzbildgebungsprotokolle.
- Identifizieren fluoreszenzmarkierten präsynaptischen Enden für die Aufnahme 4c und 4d Ziel.
5. Immunhistochemie von isolierten retikulospinale Axone
- Füllen Gericht Einsatz (Protokoll Abschnitt 2.10.) Mit zweiwertigen Ionen (Ca 2 + und Mg 2 +) kostenlosRinger-Lösung.
- Fertigen Patch-Pipetten in einem P-87-Mikropipette Puller. Legen Sie eine kleine Menge von Nahtkleber an einem Ende des Poly-Lysin-Einschub mit einer Patch-Pipette (1,5 mm Durchmesser Glasaußen) und Absaugung (mit einem Silikonschlauch 0,89 mm Innendurchmesser mit einer Mikropipette Spitze an der Ansaugseite beigefügt).
- Führen Sie Dissoziationen mit dem gleichen Verfahren wie in Abschnitt 3 Protokoll 2 erwähnt. Platzieren Sie ein Ende des Rückenmarks auf der Naht Kleber und drücken Sie vorsichtig mit einer Pinzette, um sie stark an der Oberfläche haftet. Legen Sie einen Tropfen Leim Naht am anderen Ende des Einsatzes und sanft dehnen das Rückenmark bis Axone dissoziiert sind und sich die freie Ende des Rückenmarks, indem Sie sie vorsichtig über die Nahtkleber. Fixieren durch sanftes Herunterdrücken mit der Zange.
- Austausch zweiwertigen Ringerlösung mit regelmäßigen Ringer-Lösung durch Perfusion.
- Axone erlauben, für 20 min nach dissoc erholeniation bei 10 ° C aufweist.
- Fix dissoziiert Axone in 4% Paraformaldehyd (PFA) für 20 min {in phosphatgepufferter Kochsalzlösung (PBS, (mM) NaCl 137, KCl 2,7, Na 2 HPO 4 10 KH 2 PO 4 1,8, pH 7,4) hergestellt}. Filtern PFA Lösung vor, indem sie durch einen 0,2 um-Spritzenfilter verwenden.
- Auswaschen der PFA durch Perfusion 0,1 M Glycin (in PBS) für 10 min.
- Inkubieren in 0,1% Triton-X (in PBS) für 10 min.
- Durch Perfusion PBS für 20 min waschen.
- Blockieren mit 5% fettfreier Milch (in PBS) für 6 Stunden bei 4 ° C ist.
- Fügen Sie in primären Antikörpers an VGCC von Interesse (1: 200-Verdünnung in PBS) und Inkubation für 20 h bei 4 ° C.
- Durch Perfusion PBS für 20 min waschen.
- Blockieren mit 5% fettfreier Milch (in PBS) für 10 min bei 4 ° C ist.
- Fügen in sekundären Antikörper (1: 400-Verdünnung in PBS) und Inkubation in Dunkelheit für 2 h bei 4 ° C ist.
- Durch Perfusion mit PBS für 20 min waschen.
- Block mit 1% Rinderserum Albumin (in PBS) für 20 min.
- Fügen Sie in Alexa Fluor 488 Phalloidin (5 Einheiten / ul Arbeitskonzentration; Lager in Methanol 200 Einheiten / ml) hergestellt.
- Durch Perfusion mit PBS für 20 min waschen.
- Bild mit 100X Wasserimmersionslinse auf konfokalen Mikroskop.
6. Elektrophysiologische Aufnahme
- Herzustellen Aluminosilicatglas Patch-Pipetten (2-5 Pipettenwiderstand MQ) in einem P-87-Mikropipette Puller. Design Patch-Pipette, so dass Pipettenspitze umfasst ganze präsynaptischen Terminal Durchmesser.
- PDMS Mantel Patchpipetten durch Eintauchen der Patch-Pipette unter 50-60 psi Druck in PDMS 23 (Anschluss Silikonschlauch, 0,89 mm Innendurchmesser, mit einem Stickstoffgaszylinder verbunden ist, um das hintere Ende der Patch-Pipette) und Trocknen unter Verwendung einer Heiß Pistole. Alternativ manuell Beschichtung der Pipette mit PDMS, eine Beschichtung, so nahe an der Spitze, wie möglich, unter einer zusammengesetzten Mikroskop.
- Feuerpolitur Patch-Pipetten mit einem MICRoforge (a custom built Platin Filament auf die Bühne einer Verbindung Mikroskop montiert).
- Identifizieren isoliert Axone zeigen beschriftet präsynaptischen Enden durch Fluoreszenzmikroskopie.
- Füllen Aufzeichnungslösung (Ca 2 + entwickelt, um Ströme zu isolieren; 10 mM CaCl 2 oder 90 mM BaCl 2 als Ladungsträger, gepufferte HEPES pH 7,6, Osmolarität 270 mOsm) in der Patch-Pipette mit einer Spritze.
- Legen Patch-Pipette in die Pipettenhalter und Position über Bad mit einem motorisierten Manipulator MP225. Senken Sie die Patch-Pipette in das Bad und die Position gegen das Gesicht eines fluoreszenz identifiziert präsynaptischen Terminal.
- Schieben Sie den Patch-Pipette langsam, bis ein Kontakt mit der Membran gemacht. Zu diesem Zeitpunkt erreicht eine Gigaohm Dichtung durch sanftes Saugen Mund durch einen Schlauch der Pipettenhalter befestigt.
- Um die für die Aufnahme einzelner Kanal Ca2 + Ströme benötigt extrem niedrigen Hintergrundgeräuschpegel zu erreichen, benötigen Sie ein Axopatch 200B mit einer gekühlten heads für die Aufnahmen. Beispieldaten bei 20-50 kHz und Filter mit einem 5 kHz Bessel-Filter. Führen Sie die Datenerfassung mit Hilfe eines Axograph X.
- Verwenden Sie ein Standard-Schritt-Protokoll, in Schritten von 10 mV als Stimulus. Enthalten einen Vorimpuls in dem Protokoll, vor der Schritt-Protokoll, um eine maximale Aktivierung von Ca 2 +-Kanäle zu gewährleisten. Integrieren Sie eine 10 mV Leck Schritt in die Schritt-Protokoll für die post-Analyse Subtraktion der Leckströme.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Ergebnisse
Diese Dissoziation Protokoll Erträge gesunde und funktionelle isoliert retikulospinale Axonen frei von Projektionen postsynaptischen 2f, die aber dennoch behalten funktionellen präsynaptischen Enden der Lage, hervorgerufen synaptischen Vesikel Exo-und Endozytose 4c und 4d. Abschnitte der isolierten Regionen der retikulospinale Axone kann unter Lichtmikroskopie eindeutig identifiziert werden klar von anderen neuronalen Prozesse ermöglicht uneingeschränkten Zugriff auf da...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Diskussion
Unsere Dissoziation Protokoll ist durch Abgabe isoliert retikulospinale Axonen frei von Projektionen postsynaptischen 2f signifikant, aber dennoch funktionellen präsynaptischen 4c und 4d zu behalten. Das Fehlen von postsynaptischen Prozesse gegen die präsynaptischen Terminal ermöglicht den direkten Zugriff auf die Aufnahme der präsynaptischen Membran Trennfläche bei Einzel präsynaptischen Terminals, die zuvor in zentralen Synapsen nicht möglich ist und in nur zwei präsy...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Offenlegungen
Die Autoren haben keine konkurrierenden finanziellen Interessen oder andere Interessenkonflikte offenzulegen.
Danksagungen
Diese Arbeit wurde unterstützt von NINDS, RO1NS52699 und MH84874 to SA.
Wir möchten Dr. Dave Featherstone (Department of Biological Sciences, University for Illinois at Chicago) dafür danken, dass er uns den Nahtkleber zur Verfügung gestellt hat, der in der immunhistochemischen Arbeit verwendet wurde. Wir danken Michael Alpert für seine Kommentare und das Korrekturlesen des Manuskripts.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 0,2 &Mikro; m Spritzenvorsatzfilter | EMD Millipore | SLGV004SL | |
| 22 x 60 mm Deckgläser | Fisherbrand | 12545J | |
| Advasep-7 | Cydex Pharmaceuticals | ADV7 | |
| Alexa Fluor 488 Phalloidin | Invitrogen/Life Technologies | A12379 | |
| Alexa-633 konjugierter Ziegen-Anti-Kaninchen-Sekundärantikörper | Invitrogen/Life Technologies | A21070 | |
| Frostschutzmittel | Prestone | ||
| Borsäure | Sigma-Aldrich | B7660 | |
| Rinderserumalbumin | Sigma-Aldrich | A7906 | |
| Hellfeld-Lichtquelle | Dolan-Jenner | Fiberlite 180 | |
| Calciumchlorid | Sigma Aldrich | C4901 | |
| Kollagenase Typ IA aus Cloristridium Histolyticum | Sigma-Aldrich | C9891 | |
| Deckglas | Fisher-Scientific | 12-545-J | |
| Dextrose | Sigma-Aldrich | D9559 | |
| Digitale CCD-Kamera | Hamamatsu | C8484-03G01 | |
| Präparierzange feine Zange | Fine Science Tools | 91150-20 | |
| Präparierzange | Fine Science Tools | 11251-20 | |
| Seziermikroskop | Leica Biosystems | Leica MZ 12 | |
| Sezierschere | Fine Science Tools | 15025-10 | |
| Sezierschere fein | Fine Science Tools | 91500-09 | |
| Sezierschere ultrafein | Fine Science Tools | 15000-08 | |
| FM 1-43 | Invitrogen/Life Technologies | T3163 | |
| Glycin | Sigma-Aldrich | G7126 | |
| HEPES | Sigma-Aldrich | H7523 | |
| Hochvakuumfett | Dow-Corning | ||
| Salzsäure | Fisherbrand | SA-56-500 | |
| Tauchöl | Fisher-Scientific | M2000 | |
| Stickstoffgastank in Industriequalität | Praxair | UN1066 | |
| Insektenstifte | Fine Science Tools | 26002-10 | |
| Flüssiger Nahtkleber | Braun Veterinary Cair Division | 8V0305 | Der Nahtkleber, den wir in unseren Experimenten verwendet haben, wurde uns von einem anderen Labor zur Verfügung gestellt. Es wird nicht mehr hergestellt. Wir haben einen Histoacryl-Nahtkleber für die zukünftige Verwendung von Aesculap (Ts1050071FP) beschafft |
| Magnesiumchlorid | Sigma-Aldrich | M2670 | |
| Methanol | Sigma-Aldrich | 154903 | |
| Fettfreie Trockenmilch | Cell Signaling Technology | 9999S | |
| P-87 Mikropipettenabzieher | Sutter Instruments | ||
| Paraformaldehyd | Sigma-Aldrich | P6148 | |
| Perfusionspumpe | Cole-Palmer | Masterflex C/L | |
| Petrischale 100 x 15 mm | Fisher-Scientific | 875712 | |
| Petrischale 35 x 10 mm | Fisher-Scientific | 875712 | |
| Poly-D-Lysinhydrobromid | Sigma-Aldrich | P1024 | MW > 300.000 |
| Kaliumchlorid | Sigma-Aldrich | P9333 | |
| Kaliumphosphat monobasisch | Sigma-Aldrich | P5379 | |
| Primärantikörper R-Typ Calciumkanal | Alomone Labs | ACC-006 | |
| Protease Typ XIV aus Streptomyces Griseus | Sigma-Aldrich | P5147 | |
| Skalpellklingen | World Precision Instruments | 500240 | |
| Schot Duran Druckflasche | Fisher-Scientific | 09-841-006 | |
| Silikonschlauch für den Leimauftrag | Cole-Palmer | 07625-26 | |
| Schneidegrundplatte | Leica Biosystems | 14046327404 | |
| Schneidekammer | Leica Biosystems | 14046230132 | |
| Natriumchlorid | Sigma-Aldrich | S7653 | |
| Natriumhydroxid | S8045 | ||
| Natriumphosphat zweibasisch | Sigma-Aldrich | S9763 | |
| Natriumtetraborat | Sigma-Aldrich | B3545 | |
| Sylgard 160 Silikonelastomer Kit | Dow Corning | SYLGARD® 160 | Vorbereitung Elastomer A und Elastomer B 10:1 nach Gewicht |
| mischen Sylgard 184 Silikonelastomer Kit | Dow Corning | SYLGARD® 184 | Zur Vorbereitung Elastomer und Härter 10:1 Gew.-% mischen |
| Teflonbeschichtete Pinzette | Fine Science Tools | 11626-11 | |
| Tricain-Methansulfonat | Sigma-Aldrich | A5040 | |
| Vibratom-Klingen | World Precision Instruments | BLADES | |
| Xenon-Lampe | Nikon |
Referenzen
- Katz, B., Miledi, R. The timing of calcium action during neuromuscular transmission. Journal of Physiology. 189 (3), 535-544 (1967).
- Sabatini, B. L., Regehr, W. G. Timing of neurotransmission at fast synapses in the mammalian brain. Nature. 384 (6605), 170-172 (1996).
- Augustine, G. J., Adler, E. M., Charlton, M. P. The calcium signal for transmitter secretion from presynaptic nerve terminals. Annals of the New York Academy of Sciences. 635, 365-381 (1991).
- Zucker, R. S. Calcium and transmitter release. Journal of Physiology Paris. 87 (1), 25-36 (1993).
- Delaney, K. R., Shahrezaei, V. Uncaging Calcium in Neurons. Cold Spring Harbor protocols. (12), (2013).
- Paradiso, K., Wu, W., Wu, L. G. Methods for patch clamp capacitance recordings from the calyx. Journal of Visualized Experiments. (6), 244(2007).
- Stanley, E. F. The calyx-type synapse of the chick ciliary ganglion as a model of fast cholinergic transmission. Canadian Journal of Physiology and Pharmacology. 70, S73-S77 (1992).
- Church, P. J., Stanley, E. F. Single L type calcium channel conductance with physiological levels of calcium in chick ciliary ganglion neurons. The Journal of Physiology. 496 (Pt 1), 59-68 (1996).
- Stanley, E. F. Single calcium channels and acetylcholine release at a presynaptic nerve terminal. Neuron. 11 (6), 1007-1011 (1993).
- Weber, A. M., Wong, F. K., Tufford, A. R., Schlichter, L. C., Matveev, V., Stanley, E. F. N-type Ca(2+) channels carry the largest current implications for nanodomains and transmitter release. Nature Neuroscience. 13 (11), 1348-1350 (2010).
- He, L., Wu, X. S., Mohan, R., Wu, L. G. Two modes of fusion pore opening revealed by cell attached recordings at a synapse. Nature. 444 (7115), 102-105 (2006).
- Sheng, J., He, L., et al. Calcium channel number critically influences synaptic strength and plasticity at the active zone. Nature Neuroscience. 15 (7), 998-1006 (2012).
- Photowala, H., Freed, R., Alford, S. Location and function of vesicle clusters, active zones and Ca2+ channels in the lamprey presynaptic terminal. The Journal of Physiology. 569. 569 (Pt 1), 119-135 (2005).
- Rovainen, C. M. Synaptic interactions of reticulospinal neurons and nerve cells in the spinal cord of the sea lamprey. Journal of Comparative Neurology. 154 (2), 207-223 (1974).
- Takahashi, M., Freed, R., Blackmer, T., Alford, S. Calcium influx independent depression of transmitter release by 5 HT at lamprey spinal cord synapses. The Journal of Physiology. 532 (2), 323-336 (2001).
- Stanley, E. F., Goping, G. Characterization of a calcium current in a vertebrate cholinergic presynaptic nerve terminal. The Journal of Neuroscience. 11 (4), 985-993 (1991).
- El Manira, A., Bussières, N. Calcium channel subtypes in lamprey sensory and motor neurons. Journal of Neurophysiology. 78 (3), 1334-1340 (1997).
- Kay, A. R., Alfonso, A., et al. Imaging synaptic activity in intact brain and slices with FM1 43 in C elegans lamprey and rat. 24 (4), 809-817 (1999).
- Betz, W. J., Bewick, G. S. Optical analysis of synaptic vesicle recycling at the frog neuromuscular junction. Science. 255 (5041), 200-203 (1992).
- Bleckert, A., Photowala, H., Alford, S. Dual pools of actin at presynaptic terminals. Journal of Neurophysiology. 107 (12), 3479-3492 (2012).
- Gustafsson, J. S., Birinyi, A., Crum, J., Ellisman, M., Brodin, L., Shupliakov, O. Ultrastructural organization of lamprey reticulospinal synapses in three dimensions. The Journal of Comparative Neurology. 450 (2), 167-182 (2002).
- Broadie, K., Featherstone, D. E., Chen, K. Electrophysiological Recording in the Drosophila Embryo. Journal of Visualized Experiments. (27), (2009).
- Rae, J. L., Levis, R. A. A method for exceptionally low noise single channel recordings. Pflügers Archiv European Journal of Physiology. 420 (5-6), 618-620 (1992).
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Nachdrucke und Genehmigungen
