Diese Methode ermöglicht die Generierung von tetraploiden und triploide Caenorhabditis Nematoden aus jeder diploiden Belastung. Polyploid Stämme von dieser Methode erzeugt wurden verwendet, um Chromosom Interaktionen in meiotischen Prophase zu untersuchen, und diese Methode ist nützlich für die Prüfung wichtiger Grundfragen in Zelle, Entwicklungsstörungen, evolutionär, und Krebsbiologie.
Methodenartikel
Manipulation der Diploidie in Caenorhabditis elegans
In diesem Artikel
Zusammenfassung
Zusammenfassung
Mechanismen, bei denen ganze Genom Polyploidie spielen eine wichtige Rolle in der Entwicklung und Evolution; Darüber hinaus wurde eine abnorme Generation von tetraploiden Zellen zugeordnet das Fortschreiten von Krebs und die Entwicklung von Resistenzen. Bis jetzt wurde es nicht möglich, die Diploidie eines mehrzelligen Tieres leicht zu manipulieren, ohne meist sterile nachkommen zu erzeugen. Präsentiert hier ist ein einfaches und schnelles Protokoll zur Erzeugung von tetraploiden Caenorhabditis Elegans Tiere aus jeder diploiden Belastung. Diese Methode ermöglicht dem Benutzer, eine Vorspannung in Trennung der Chromosomen während der Meiose, letztlich erhöhen Diploidie in C. Eleganszu schaffen. Diese Strategie setzt auf die vorübergehende Verringerung der Expression des Gens Rec-8 , diploide Gameten zu generieren. Eine Mutante Rec-8 produziert diploide Gameten, die potenziell tetraploiden nach Befruchtung produzieren können. Diese gefügig Regelung wurde zur tetraploide Sorten tragen Mutationen und Chromosomen-Rearrangements Einblick in chromosomale Dynamik und Interaktionen während der Paarung und Synapsis in Meiose zu generieren. Diese Methode ist effizient für die Erzeugung von stabilen tetraploiden Sorten ohne genetische Marker, kann auf jede diploide Sorte angewendet werden und kann verwendet werden, um triploid C. Elegansableiten. Diese einfache Methode ist nützlich für die Untersuchung von anderen grundlegenden biologischen Fragestellungen Genom Instabilität, gen Dosierung, biologische Skalierung, extrazelluläre Signalgebung, Anpassung, Entwicklung von Resistenzen gegen Medikamente, Stress und Mechanismen der Artbildung.
Einleitung
Gesamte Genom Polyploidie existiert in der gesamten Natur und ist oft ein notwendiger Schritt in der Anpassung, Artbildung, Organogenese, Wundheilung und biologische Skalierung; Es ist auch bekannt, um Krebs und Resistenz gegen Drogen1,2,3,4,5,6,7,8, zu fördern 9 , 10 , 11 , 12. Landwirtschaft und Fischerei generieren polyploid Pflanzen, Fische und Schalentiere durch chemische Behandlung (z. B.Colchicin und Orzalin) erhalten schnellere Wachstumsraten und sperriger pflanzliche und tierische13, 14,15. Experimentelle und ineffiziente Produktion von tetraploiden existiert für die Maus und Zebrafisch Modell Systeme16,17. Jedoch sind die meisten oder alle polyploid vielzelligen Tiere erzeugt Hochkultur tödliche oder steril und somit nicht ideal für Laboruntersuchungen über die Auswirkungen von Polyploidie in einem mehrzelligen Organismus. Infolgedessen wurde kein Verständnis des gesamten Genoms Polyploidization in mehrzelligen Organismen zu eng verwandten Arten von evolutionären den letzten Polyploidization Veranstaltungen18,19,20 begrenzt . Ein Weg zum Abfragen der biologischen Rolle oder die Folgen eines Polyploidization voraus ist die Verwendung des Modellsystems C. Elegans . Vor allem C. Elegans ist ein gefügig genetisches System, das normalerweise als einen diploiden vorhanden ist, enthält nur fünf Autosomen (A) und einem Geschlechtschromosomen (X) pro Genom, ist transparent, so dass für in-Vivo -Beobachtung von biologischen Prozessen, und hat einen kurzen Lebenszyklus von 3-4 Tage (vom Ei bis zum geschlechtsreifen Erwachsenen). C. Elegans hat sich gezeigt, dass man als ein tetraploider reproduzieren ist die häufigste Form des gesamten Genoms Polyploidie in der Natur. Triploide Tiere erzeugt werden können, durch die Kreuzung von tetraploiden mit diploiden, aber ihre Diploidie ist nicht stabil, und die Stämme werden innerhalb von ein paar Generationen diploid.
In den letzten Jahrzehnten nur eine Handvoll von lebensfähigen und fruchtbaren C. Elegans tetraploiden Sorten wurden isoliert im Labor mit einer Strategie, die ist mühsam und generiert nur begrenzte Arten der Stämme21,22, 23. diese Strategie erzeugt C. Elegans tetraploiden durch Hitzeschock Behandlungen, die betrifft vermutlich Chromosom Segregation in den Keimzellen, gefolgt von einem Screening für vermeintliche polyploider Tiere mit Hilfe von genetischen Markern. Diese tetraploiden waren äußerst nützlich bei der Anfrage wie diese Nematoden bestimmt ob Sie männlich oder Zwitter geworden. Spätere Studien verwendet die verfügbaren Sorten, um die Wachstum, gen-Dosis und Regulierung der Synapsis während der Meiose in diesem Nematoden21,24,25,26zu untersuchen. Leider wurden diese Untersuchungen durch die Schwierigkeit bei der Generierung neuer tetraploiden Sorten und der Hintergrund genetischen Markern diese Stämme enthalten begrenzt. Hier dargestellt ist ein einfache und schnelle Protokoll, stabile tetraploiden zu generieren, das zur Erzeugung von Stämme zur Regulierung der Synapsis während der Meiose27zu studieren.
Wie in der Natur kann Polyploidization durch die Bildung von diploiden anstelle von haploiden Gameten entstehen. Unsere Feststellung, dass eine Meiose-spezifische Cohesin Komponente mutierten Rec-8 diploide Spermien erzeugt und Eizellen darauf hingewiesen, dass die Rec-8 gen umzuwerfen ergäbe sich bei der Herstellung von tetraploiden Nachkommen (Abbildung 1)27, 28,29. Generierung von tetraploiden Sorten werden einfach umzuwerfen Rec-8 durch RNA-Interferenz (RNAi) für zwei Generationen um zu Phenocopy die Rec-8 mutierte diploide Gameten. Vermeintliche Polyploids können leicht durch ihre längere identifiziert werden als normale Körpergröße. Polyploids werden als vollständige oder teilweise tetraploiden bestätigt, durch zählen der Anzahl der Chromosomen pro Zellkern sobald stabile Linien hergestellt werden.
Die hier beschriebene Strategie ermöglicht die Erzeugung von stabile tetraploiden Caenorhabditis Nematoden Stämme von ursprünglichen diploiden genetischen Hintergrund oder Karyotyp ohne den Einsatz von genetischen Markern. Da dieses Protokoll effizient, vielseitig und einfach als das zuvor verwendete Schema ist, wird es die Werkzeuge, um die Rolle der Polyploidization in grundlegenden Prozesse der Entwicklung, Genomstabilität und Entwicklung in mehrzelligen Abfrage erweitern. Organismen. Die absehbare Einschränkung bei der Verwendung dieses Protokolls ist resistent gegen RNAi genetische Hintergründe.
Protokoll
1. Einstellung des Rec-8 RNAi (Tag 1 bis 3 in Abbildung 2)
Dieses Protokoll wird von Kamath und Ahringer30geändert.
- Bereiten Sie für die Induktion von Rec-8 DsRNA Ausdruck in Escherichia coliNematoden Wachstum Medium (NGM) Agar-Platten31 ergänzt mit einer Endkonzentration von 1 mM Isopropyl-β-D-2-Thiogalactopyranoside (IPTG) und 100 µg/mL Ampicillin. Bis zur Nutzung für bis zu 4 Wochen im Dunkeln bei 4 ° C lagern.
- Streifen HT115 Bakterien tragen die Rec-8 (W02A2.6)-Klon vom Ahringer Labor Bibliothek30 Rec-8 Klon auf Luria Brühe (LB) Teller mit 100 µg/mL Ampicillin und 50 µg/mL Tetracyclin ergänzt. Wachsen Sie über Nacht in einem Shaker bei 37 ° C.
- Am 1. Tag impfen Sie einzelne Kolonien aus den frisch gestreiften einzelnen Kolonien der Rec-8 RNAi Klon in 4 mL LB enthält 100 µg/mL Ampicillin und 50 µg/mL Tetracyclin tragen HT115 E. Coli -Bakterien. Wachsen Sie die Bakterienkultur Übernachtung im Shaker oder eine Bandage bei 37 ° C.
- Induzieren Sie am nächsten Morgen (Tag2), Herstellung von double-Stranded (ds) RNA für Rec-8 W02A2.6 in die HT115 Bakterienkultur durch Hinzufügen einer Endkonzentration von 1 mM IPTG und schütteln für 40 min bei 37 ° C.
- Nach Induktion Saatgut NGM/IPTG Platten mit 100-200 µL HT115 Rec-8 Bakterien und Platten bei Raumtemperatur in die dunkle Nacht (Tag3) zu speichern.
- Fügen Sie am nächsten Morgen (Tag 4), die gewünschten Nematoden Sorte der induzierten HT115 Rec-8 Bakterien Platten wie in Schritt 2.1 unten beschrieben.
(2) generieren und Isolieren von tetraploiden (Tag 4-16 in Abbildung 2)
- Am 4. Tag legen 3-4 junge L4 (vierten Larvenstadium) Hermaphroditen die gewünschte diploiden Belastung für die NMG/IPTG Platten ausgesät mit HT115 Rec-8 Bakterien, die am Vortag veranlaßt worden hatte (Schritt 1.5, oben). Wachsen Sie Nematoden bei 15 ° C im Dunkeln.
- Wiederholen Sie die Schritte 1.3 und 1.4 ab 3 Tage nach Schritt 2.1, die drei Tage, bevor die ersten Nachkommen (F1s) von diesem Schritt L4s geworden sein wird. Das Timing dieses Schrittes wird davon abhängen, wie schnell eine Nematoden Belastung bei 15 ° C wächst. Einige diploiden mutierte Stämme sind langsame Züchter, und dieses Timing müssen fein tuning um tetraploiden zu isolieren.
- Am 8. Tag (nach 4 Tagen der Rec-8 RNAi Fütterung Behandlung) 20 (2 Hermaphroditen/Petrischale) von der F1 (erste filial-Generation) L4 Hermaphroditen in der HT115 Rec-8 Bakterien auf frisch induzierte HT115 Rec-8 RNAi angebaut und zu self-fertilize.
- Alternativ induziert Transfer 20 F1 L4 Hermaphroditen gewachsen in den HT115 Rec-8 Bakterien auf frisch HT115 Rec-8 RNAi Bakterien zusammen mit unbehandelten Männchen der gleichen Sorte (2 Hermaphroditen mit 4-6 Rüden/Platte).
- Am Tag 13, Start screening für F2 (zweite Filiation) nachkommen, die lange erscheinen (Lon) oder insgesamt größer als der Wildtyp; übertragen Sie Lon Einzeltier auf regelmäßige OP50 oder HB101 Stämme von E. Coli -Bakterien. Screening-F3 (dritte kindliche) Nachkommen weiter; Allerdings F3 Nachkommen aus der gleichen Platte nicht unabhängige Stämme angesehen werden, wenn sie sich etabliert, denn sie könnten Geschwister aus dem gleichen bereits F2 Mutter.
Hinweis: Vermeintliche tetraploiden sind leicht erkennbar, denn sie sind deutlich länger als diploiden. Wildtyp Hermaphroditen sind zwei Drittel kürzer als tetraploiden. Weil es länger ist, macht ein tetraploider Körper einen weiteren Zug, als es bewegt sich vorwärts durch die Generierung von sinusförmigen Wellen Körper Biegen von Kopf zu Endstück (Abb. 3A). - Lon-Würmer, self-fertilize und Vermehrung durch Kommissionierung Lon Nachkommen bis in Ermangelung von Rec-8 RNAi Behandlung nur Lon Nachkommen gezeugt sind zu ermöglichen. Dies kann zwei bis drei weitere Generationen dauern. LON Würmer oft steril sind und nicht nachkommen.
3. Überprüfung der tetraploide Sorten (Film 1 und Abb. 3A, B)
Hinweis: Tetraploide Sorten können durch zählen der Anzahl der Chromosomen in ihrer unbefruchteten Eizellen validiert werden. Fluoreszenz-Mikroskopie kann verwendet werden, für die Anzahl der Chromosomenpaare in ungedüngten diploiden Oozyten (vor der meiotischen Divisionen), Bildschirm, wenn die Belastung einen fluoreszierenden Marker für Chromosomen hat. Bei fehlender fluoreszierende Chromosom Marker können tetraploide Nematoden untersucht werden durch Festsetzung der Nematodes und Färbung mit einem DNA-Farbstoff; siehe unten für ein Protokoll für die Festsetzung von Ethanol und ganze Tier 4 ', 6-Diamidine-2-Phenylindole Dihydrochloride (DAPI) Färbung.
- Ganze Tier DAPI-Färbung
Hinweis: Tetraploide Sorten tragen 12 angeschlossenen Chromosomenpaare können durch DAPI Färbung dieser Tiere und zählen die Anzahl der DAPI Körper in seine unbefruchteten Eizellen überprüft werden.- Platz 5 bis 10 µL der M9 Puffer31 auf einen Objektträger übertragen dann 6-10 Nematoden bis zum Tropfen.
- Zeichnen Sie unter dem sezierenden Mikroskop sich die meisten der M9 aus dem Drop-ohne Entfernen der Nematodes mit einem fusselfreien Reinigungstuch. Dann sofort Tropfen Sie einen 10 µL Ethanol 90 % auf die Würmer. Lassen Sie die Würmer Trocknen vollständig, aber für nicht länger als ein paar Sekunden.
- Sobald das Ethanol verdampft (Dies kann gesehen werden wie es unter dem Mikroskop sezierenden geschieht), fügen Sie eine zusätzliche 10 µL Ethanol 90 % auf die Würmer.
- Wiederholen Sie Schritt 3.1.3 noch dreimal.
- Sobald die letzte Tropfen von Ethanol verdampft ist, fügen Sie 6 µL Farbstoff DAPI oder Hoechst am empfohlene Endkonzentration in den Montage-Medien Wahl (z. B. einer 1:1,000 Verdünnung von 2 ng/µL DAPI Lager Konzentration in M9). Für die langfristige Speicherung der Folien kann 0,5 % p-Phenylendiamin aufgelöst in 20 mM Tris-HCl, pH 8,8, in 90 % Glycerin als antifade-Lösung statt M9 nur, verwendet werden.
- Die Würmer auf der Folie mit einem Deckgläschen abdecken und die Ränder des Deckglases mit Nagellack versiegeln. Punktzahl in einem Fluoreszenzmikroskop (Schritt 3.1.7) mindestens 10 min nach dem Hinzufügen des Deckglases. Folien ohne Antifade können für ein paar Tage bei 4 ° C vor scoring gespeichert werden, aber die Qualität der Fluoreszenz beginnt nach ein paar Tagen zurückgehen.
- Mit einem fluoreszierenden Mikroskop bei 100 X Vergrößerung Ergebnis die Anzahl der einzelnen DAPI Körper (vermutlich einzigen Chromosomenpaare) in der reifste unbefruchtete Eizelle, die grenzt unmittelbar an die Samentasche und die Samentasche noch nicht getreten oder die Gebärmutter.
- Einzelnen DAPI Körper innerhalb einer Eizelle Kern zu erzielen, verwenden Sie das Mikroskop Feinfokus während zählen langsam von der Spitze des Nucleus Eizelle nach unten bewegen. Dann erzählen Sie den gleichen Kern während der Bewegung des Fokus in die entgegengesetzte Richtung (alsovon unten nach oben auf den Kern), die gezählte Anzahl der DAPI Körper zu bestätigen.
- Ergebnis der reifsten unbefruchteten Eizelle in jedem der beiden Gonaden in mindestens zehn Hermaphroditen pro stabile Lon-Sorte. Wildtyp Eizellen haben 6 DAPI Körper im Durchschnitt, 5 Autosome Paare und Sex Chromosomenpaar. Die Anwesenheit von 12 DAPI-Einrichtungen in der Eizelle der stabile Lon-Stämme zeigt, dass die Tiere in dieser Sorte entweder teilweise (4 Sets von Autosomen, 3 Chromosome) oder (4 Sätze der Autosomen, 4 Chromosome sind) tetraploiden.
- Berechnen Sie die durchschnittliche Anzahl der DAPI Körper aus mehreren (mindestens 10) Eizellen pro Stamm beobachtet. Einige Chromosomenpaare zu berühren oder rechts oben auf einander, so dass die Anzahl der DAPI in eine Eizelle stellen ist oft kleiner als die tatsächliche Anzahl der Chromosomenpaare.
- (Optional) Stabile Lon-Stämme, wo die durchschnittliche Anzahl der DAPI Körper 12 ist zu testen, ob sie vollständige (4A, 4 X) oder teilweise (4A, 3 X) sind, weiter zu validieren tetraploiden durch Immunfluoreszenz gegen Chromosom Achse Proteine wie HTP-332Färbung. Diese Färbung wird Chromosomenpaare unterscheiden, indem Sie zeigen eine kreuzförmige Muster aus einzelnen unverbunden Chromosomen in der teilweisen tetraploiden vorhanden.
Ergebnisse
Beeinträchtigung des Rec-8 meiotischen Cohesin Komponente Funktionsergebnisse in diploiden Gameten:
Bildgebung der meiotischen Divisionen von Cohesin Komponente mutierten Rec-8 offenbart Spermien und Eizellen mögliche Mechanismen für die Erzeugung von tetraploide Tiere (Abbildung 1)27,29,33. Mechanistisch, unterscheiden sich die meiotische Teilung Mängel des Rec-8 mutierten Spermium und Eizelle; Allerdings sind sowohl weibliche als auch männliche diploide Gameten von Rec-8 Mutant produziert.
Im Wildtyp Meiose homologe Chromosomen werden vorübergehend durch Crossover Rekombination miteinander verbunden und geben Sie die erste meiotische Teilung als Einheit oder Bivalent (Abbildung 1A)34. Während der ersten Teilung homologe Chromosomen (homologe) trennen voneinander, während Schwester-Chromatiden in jedes Homolog zusammen bis der zweiten Liga bleiben. Obwohl das Muster der Chromosom Abtrennung in weiblichen und männlichen Gameten gleich ist, sind Eizelle Divisionen asymmetrisch, während Spermatocyte Divisionen symmetrisch sind und eine spezialisierte Zytokinese zu unterziehen. In jeder Division verwirft die Hälfte des Messguts Teilung die Eizelle in einem kleinen Polkörper. So entsteht jede Eizelle Vorläufer einer einzigen haploiden Eizelle und zwei Polkörper (Abbildung 1 b, C)35. Im Gegensatz dazu entsteht ein einzelnes Spermatocyte Vorläufer vier funktionale Spermatids durch zwei symmetrischen Abteilungen unterziehen. Die zweite Liga endet mit vier Spermatids angehende Weg vom restlichen Körper. Diese Cytokinese ist etwas Besonderes, dass die Muster und Anzahl der Spermatids richtet sich nach der Zentrosomen-36.
In der Vorläufer der Rec-8 mutierten Gameten Crossover Rekombination zwischen Homologen Chromosomen findet nicht statt und homologe sind nicht als ein Bivalent zu Jahresbeginn die erste meiotische Teilung29,34verbunden. Schwester Chromatiden jedes Homolog zu trennen voneinander entfernt in der first Division statt zu bleiben zusammen bis der zweiten Liga, wie in Wildtyp Gameten. Interessanterweise unterscheidet sich der Rec-8 mutierten Phänotyp während der zweiten Liga in männlichen und weiblichen Gameten, dass Eizellen Versagen der Zytokinese zu unterziehen, während Spermatozyten, ein relativ normales Zytokinese (Abbildung 1 b– unterziehen ( F) 27 , 28 , 29. diploide Oozyten entstehen, weil sie in der zweiten Liga Chromosom Segregation und Cytokinese scheitern, daher sie nicht Extrudieren der zweiten Polkörper (Abbildung 1 b, C). Spermatozyten in Rec-8 Germlines unterziehen Spermatid angehende oder Zytokinese, aber beide Sätze von Chromosomen eines Spermatids zu einem diploiden Spermatid und ein Spermatid fehlt Chromatin führen oft zu trennen (Abbildung 1– F)27. Quantifizierung des Anteils der Rec-8 Sperma fehlt Chromatin zeigt Abbildung 1F.
Die Bildung von weiblichen und männlichen diploiden Gameten in Rec-8 Mutanten vorgeschlagen, dass diese mutierten Phänotyp potenziell verwendet werden könnten, um vollständige Genom tetraploiden Sorten zu erzeugen.
Generation von tetraploiden C. Elegans Stämme:
Das Vorhandensein einer Mutation im gen Rec-8 in allen erzeugten tetraploiden Sorten kann vermieden werden, indem Sie Rec-8 durch RNAi29,37vorübergehend umwerfen. Dies setzt voraus, dass die Reduzierung der Rec-8 Funktion durch RNAi diploide Gameten, die potenziell zu gesamten Genoms tetraploide Tiere führen könnte erzeugen würden, wie Rec-8 Mutanten29,37. Wesentlich zu diesem Protokoll ist, daß Rec-8 Mutanten sowohl Anlass zu diploiden Gameten und sire eine ziemlich große Zahl junger, im Gegensatz zu anderen meiotischen Mutanten, die aneuploiden Keimzellen und sind meist steril oder embryonale/Larven letale hervorrufen.
Mehrere tetraploide Sorten entstanden durch die Fütterung von C. Elegans Bakterien mit dem Ausdruck Rec-8 DsRNA verwenden entweder eine der beiden Strategien (siehe Protokoll, Abbildung 2und Tabelle 1)27. Tetraploiden können durch selbst befruchtende Zwitter für zwei bis drei Generationen in Petrischalen mit Bakterien mit dem Rec-8 DsRNA Ausdruck erzeugt werden. Durch diese Strategie, die einen Zwitter in frisch gelegt wird wird gemacht Rec-8 RNAi Platten und seine Nachkommenschaft ein paar Tage später auf neue Teller mit frisch induzierte Rec-8 RNAi mit dem Ausdruck ihrer Bakterien (siehe Protokoll) übertragen. Darüber hinaus können tetraploiden erzeugt werden, durch Kreuzung der ersten Generation von Hermaphroditen gefüttert Bakterien Rec-8 DsRNA mit unbehandelten Männer des gleichen Genotyps in Petrischalen mit Bakterien, die mit dem Ausdruck Rec-8 DsRNA ( zum Ausdruck bringen Abbildung 2). In diesem Fall sind die Männchen in das Kreuz die Rec-8 RNAi Bakterien von der L4-Bühne ab, während der Paarung ausgesetzt. Beide Regelungen ergeben sich tetraploide Tiere27. Tabelle 1 zeigt die tetraploide Sorten gewonnen, mit dem hier vorgestellten Schema. Triploide und tetraploide C. Elegans sind größer als diploiden, aber triploide Sorten sind instabil und neigen dazu, sich in ein oder zwei Generationen diploid tetraploide Sorten sind relativ stabile22,23. Vermeintliche tetraploide Sorten wurden als größer als die ursprüngliche Sorte (Lon) Hermaphroditen identifiziert, die nur Lon Nachkommen (Abbildung 3A) gezeugt. LON Tiere sind leicht zu identifizieren - Wildtyp diploiden Tieren sind zwei Drittel der Länge der tetraploiden und ihren Körpern machen Sie keine zusätzliche Biegung, die während seiner sinusförmige Bewegung nach vorne (Abbildung 3A) wahrgenommen werden kann.
Tetraploide Sorten wurden durch ein Screening auf das Vorhandensein von 12 Chromosomenpaare in Eizellen von tetraploiden Hermaphroditen, die im Vergleich zu sechs Chromosomenpaare in Eizellen von diploiden Hermaphroditen (Abb. 3 b, Cund Film 1) bestätigt.
Tetraploide Klassen:
Zwei Arten von tetraploiden Hermaphroditen wurden identifiziert: eine wünschten Männer bei gleicher Frequenz als diploid Hermaphroditen und andererseits zeugte Männchen bei viel höheren Frequenzen (Tabelle 1). Diese beiden Arten von tetraploiden Hermaphroditen haben gezeigt, dass unterscheiden sich, da die Klasse produzieren Frequenzen ähnlich denen der diploide Männchen tetraploiden für alle seine Chromosomen (4A, 4 X), sind während der Klasse erzeugen hohe der Männer Frequenzen Hermaphroditen, die tetraploiden für die Autosomen aber Triploidie für die Geschlechtschromosomen (4, 3 X). Die späteren Klasse von tetraploiden sind stabil und 4A, 3 X Hermaphroditen und 4A, 2 X Rüden zu produzieren.
Tetraploide Sorten wachsen langsamer und produzieren im Vergleich zu den diploiden, denen Sie abgeleitet wurden, wie für die Stämme, die mit der vorherigen Methode22,23generiert Brut verkleinert. Madl und Herman22 vorgeschlagen, dass der gestiegene Anteil von Toten Embryonen in die tetraploiden Sorten konnte aufgrund von Aneuploidie in der Eizelle, aber oberflächliche Prüfung der tetraploiden Sorten nicht hinreichend offenbart hat erhöhte Anzahl von aneuploiden Eizellen noch abnorme Eizelle oder Spermatocyte Abteilungen, um die beobachtete Rückgang der Brut Größe (Movie 2und Abbildung 3, D) zu berücksichtigen.
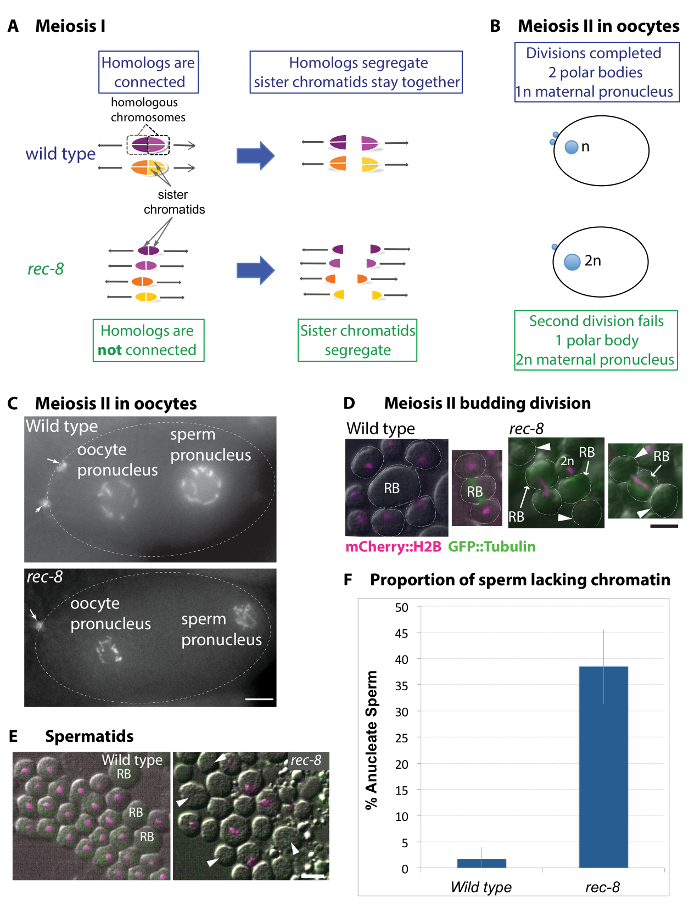
Abbildung 1: Gametogenese in Rec-8 Mutante bedeutet mögliche Mechanismen für die Erzeugung von stabilen polyploid Flecken. (A) schematische Darstellung der Chromosom Organisation und Segregation Muster in Wildtyp und Rec-8 mutierten meiotische Divisionen. Im Wildtyp Meiose trennen homologe Chromosomen in die erste meiotische Teilung. Schwester-Chromatiden in jedes Homolog an dem gleichen Spindel Pol orientieren und zusammen bleiben, bis die zweite Liga. Im Rec-8 Mutanten homologe bilden keine Frequenzweichen und sind damit nicht verbunden. Im Gegensatz zu wilden Art, Rec-8 Schwester Schwesterchromatiden voneinander zu orientieren und in die erste meiotische Teilung zu trennen. (B) Darstellung der Wildtyp und Mutanten Eizellen mit den weiblichen Vorkern und extrudierten Polkörper (männliche Vorkern ist nicht abgebildet). Wildtyp Eizellen führen zwei asymmetrische meiotische Divisionen in der Extrusion von zwei Polkörper. Im Rec-8 Mutanten schlägt fehl, jedoch die zweite Polkörper Extrusion was zu einer diploiden Eizelle. (C) Bilder von Wildtyp und Rec-8 mutierten Eizellen mit dem Ausdruck mCherry::histone H2B. Pfeile zeigen zwei Polkörper in der Wildtyp-Eizelle und einer in den Rec-8 -Mutanten. Maßstabsleiste ist 5 µm. (D und E) Live-Bilder von Spermatids aus Wildtyp und Rec-8 mutierte Tiere, die mit dem Ausdruck mCherry::histone H2B (Magenta). Pfeilspitzen zeigen kernlosen Spermatids. Maßstabsleiste ist 2 µm. (D) Spermatozyten durchläuft den Zweitligisten (angehende) in den Wildtyp und Mutanten Rec-8 . Der Wildtyp Spermatozyten unterziehen symmetrische Divisionen wiederum vier angehende Spermatids, jeweils mit einem haploiden Chromosom Ergänzung. Im Rec-8 mutierten Spermatozyten ist Chromosom Abtrennung in der second Division beeinträchtigt. In den meisten Fällen bleibt eine einzige Masse des Chromatins im restlichen Körper (RB) oder in einem der zwei Schwester Spermatids in die zweite meiotische Teilung. Dies führt zu kernlosen Rec-8 mutierten Spermien (gekennzeichnet durch Pfeilspitzen) oder diploide Spermien. (E)-Live-Bilder von Post-angehende Spermatids in Wildtyp und Mutanten Rec-8 visualisiert mit differential Interferenz-Kontrast (DIC) und Fluoreszenz-Mikroskopie. Wildtyp Spermatids alle haben ähnliche Chromatids Massen. REC-8 mutierten Spermatids bilden kernlosen Sperma. (F) Quantifizierung der Wildtyp und Rec-8 mutierten kernlosen Sperma. REC-8 durch Mutation entstehende Variationen produziert 38,5 % der kernlosen Spermien im Vergleich zu weniger als 1,6 % in Wildtyp. Fishers exakter Test zeigt, dass eine Mutante Rec-8 deutlich höhere Inzidenz von kernlosen Spermien (p ≤0.0001) gegenüber dem Wildtyp. Fehlerbalken darzustellen Standardabweichungen. Bitte klicken Sie hier für eine größere Version dieser Figur.
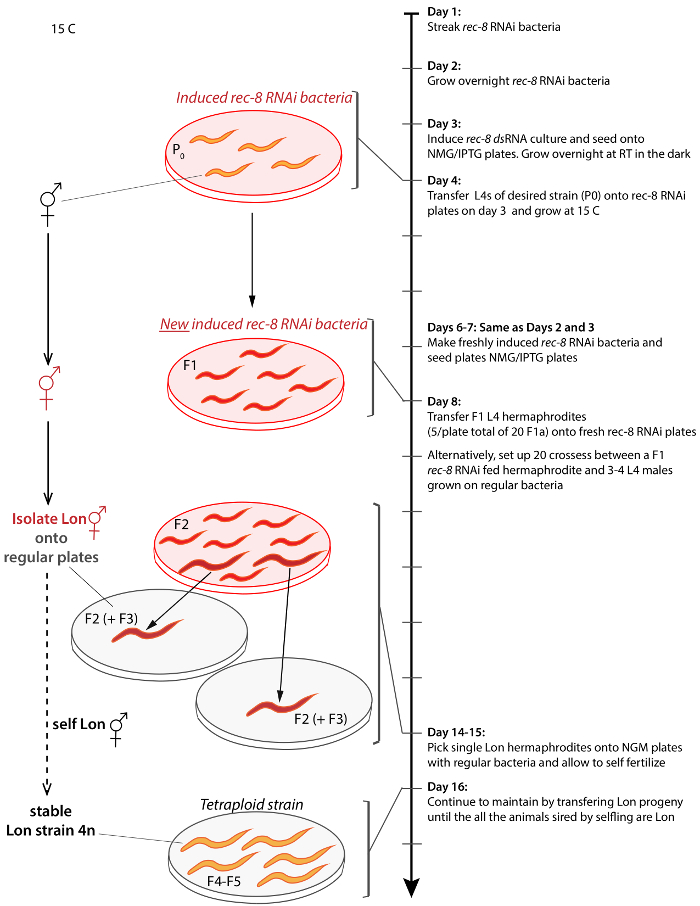
Abbildung 2: Schema zur Erzeugung und tetraploide C. Elegans aus jedem Stamm zu isolieren. Pfeil auf der rechten Seite stellt die Chronik des Protokolls ab Tag1 und Tag 17 voran. Ähnliche Ergebnisse können durch Kreuzung Hermaphroditen zu unbehandelten Männern am Tag 9 erreicht werden. Klammern verbinden die Darstellung eines Schritts in die Timeline. Unbehandelte Tieren sind Orange, behandelte Tiere sind rot, Lon-Tiere sind in der Größe größer, Rec-8 DsRNA Ausdruck Bakterien wird dargestellt, wie transparente Platten mit transparenten roten Hintergrund und regelmäßige OP50 Bakterien ist auf transparent grau dargestellt Hintergrund-Platten. Prozedur wird bei 15 ° C erfolgt, sofern nicht anders angegeben. Bitte klicken Sie hier für eine größere Version dieser Figur.

Abbildung 3: tetraploider Beispiele. (A) Hellfeld Bild ein tetraploider (MSC2) Tier und der diploiden Belastung, die es (AV740) abgeleitet wurde. Tetraploide C. Elegans sind insgesamt größer und länger (Lon) als der diploiden. Dieser Unterschied in der Körpergröße ergibt sich eine zusätzliche sinusförmigen Kurve des Körpers des bewegenden tetraploiden und kann als ein Kriterium zum Bildschirm für tetraploide Derivate verwendet werden. Maßstabsleiste ist 0,1 mm. (B, C) Fluoreszenzbilder der diploiden (AV740) und tetraploide (MSC1) am weitesten ausgereiften unbefruchtete Eizelle Nulcei, vor die meiotischen Divisionen. Sekundäre Screening erfolgt anhand der Anzahl der Chromosomenpaare in unbefruchteten Eizellen der etablierten Lon Stämme, wie im Film 1 für ein MSC1 Stamm Mcherry::H2B und GFP::β-Tubulin in die Keimbahn auszudrücken. Maßstabsleiste ist 5 µm. (D) Bilder aus einem Zeitraffer (Movie 2) von tetraploiden Eizelle meiotische Divisionen Darstellung in der Regel normal Meiose. Pfeilspitzen markieren Polkörper und eine gestrichelte Linie markiert die Rinde der Eizelle in die Samentasche und umgeben von Spermien; t = Zeit in Minuten verfallen. Maßstabsleiste ist 10 µm. Bitte klicken Sie hier für eine größere Version dieser Figur.
| Genotyp | Tetraploide Derivat (Sätze von Autosomen: # der Chromosome) * | Elterlichen Belastung (diploiden) |
| meIs16 [Pie-1p::mCherry:: seiner 58 + unc-119(+)]; | MSC1 (4A:4 X) | MSC0 |
| ruIs57 [Pie-1p::GFP::b-Tubulin + unc-119(+)] | MSC2 (4A:3 X) | |
| MSC3 (4A:4 X) | ||
| MSC5 (4A:3 X) | ||
| MSC6 (4A:4 X) | ||
| MSC8 (4A:4 X) | ||
| UNC-119(ED3) III; ddIs6; ddIs6 [Tbg-1::GFP + unc-119(+)]; ltIs37; ltIs37 [pAA64; Pie-1p::mCherry::HIS-58 + unc-119(+)] IV | MSC14 (4A:3 X) | TMR17 |
| MSC15 (4A:3 X) | ||
| MSC16 (4A:4 X) | ||
| SPO-11 (me44) / nT1 IV; + / nT1 [qIs51 [Myo-2::gfp Ppes-10::gfp, PF22B7.9::gfp]] V | AV800& | AV776 |
| meIs8 [Pie-1p::gfp::cosa-1 + unc-119(+)] II; | AV809& | AV727 |
| ltIs37 [Pie-1p::mCherry:: seiner 58 + unc-119(+)] IV; | ||
| ltIs38 [pie-1p::gfp::ph(PLC1delta1) + unc-119(+)] | ||
| meIs8 [Pie-1p::gfp::cosa-1 + unc-119(+)] II; mnT12 (X; IV) | AV826& | AV695 |
| mIn1 [dpy-10(e128) mIs14 [Myo-2::gfp Pes-10::gfp]] / | AV810& | DR2078 |
| BLI-2(e768) unc-4(e120) II | ||
| ruIs32 [Pie-1::GFP::H2B + unc-119(+)] III | AV822& | AZ212 |
| AV823& | ||
| C. Briggsae - mfIs42 [Cel-Sid-2 + Cel-Myo-2::DsRed] | AV824& | JU1018 |
Tabelle 1: tetraploider Sorten erzeugt. * Durch die Anzahl der Bivalents (verbundene homologe Paare) und Univalents (individuelle homologe) in Eizellen vor der meiotischen Divisionen neben der Anteil der Männchen gezeugt scoring abgeleitet.
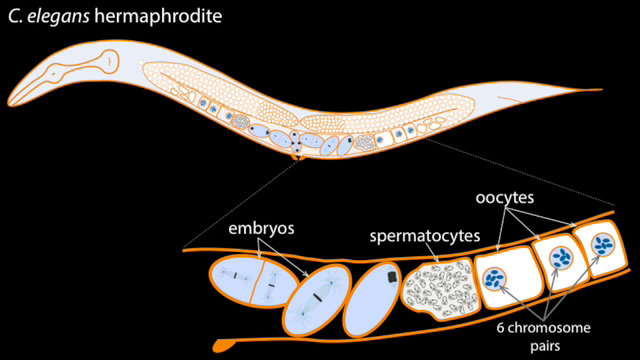
Movie 1: Screening zu bestätigen, ob stabile Lon-Stämme sind voll oder teilweise tetraploiden. Film beginnt mit einem Diagramm ein Wildtyp Zwitter Hervorhebung der Region abgebildet (unbefruchtete Eizellen) tetraploiden durch zählen Chromosomenpaare zu identifizieren. Im Anschluss an das Diagramm eine Reihe von Z-Stapel Filme und Projektionen zeigen Keimdrüsen diploide und tetraploide Tiere fixiert und DAPI gefärbt oder live-Bilder von Stämmen, die mit dem Ausdruck Mcherry::H2B Histon. Screening erfolgt durch zählen der Anzahl der angeschlossenen homologen Chromosomenpaare in der unbefruchteten Eizellen. Zählung der entweder MCherry oder DAPI gefärbten Körper geschieht in der unbefruchteten Eizelle, die Spermien Speicherung Samentasche (der "-1 Eizelle") am nächsten. Chromosomen in diesen Eizelle sind die meisten kondensiert und getrennt voneinander, erlaubt eine genauere Homolog zählt Paare. Mehr als 10 Tiere pro Stamm wurden überprüft, um sicherzustellen die-1 Eizelle Chromosom Grafen genau waren. Stack-Dicke beträgt 0,2 µm. Bitte klicken Sie hier um dieses Video anzusehen. (Rechtsklick zum download)
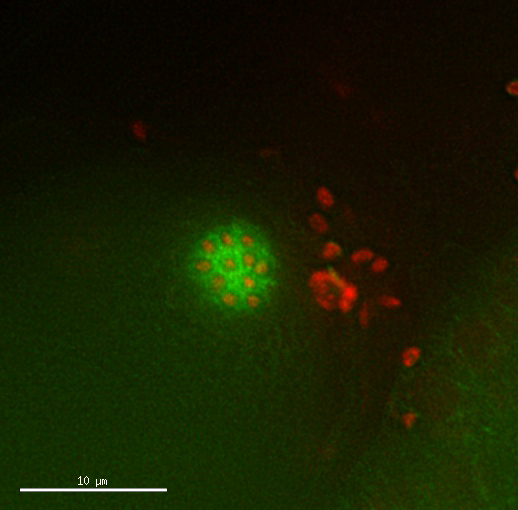
Movie 2: tetraploider Eizelle Divisionen erscheinen normal. Zeitraffer der Teilung der Eizelle eine tetraploide Sorte mit dem Ausdruck Mcherry::H2B Histon und GFP::β-Tubulin. Timing und Muster der Divisionen erscheinen normal. Bilder, die alle 2,5 min. Bitte klicken Sie hier um dieses Video anzuzeigen. (Rechtsklick zum download)
Diskussion
Produktion von haploiden Gameten (n) ist Schlüssel zum Generieren einer diploiden (2n) Zygote bei Befruchtung. Diese Reduzierung des Genoms ist während der Meiose mit zwei aufeinander folgenden Zellteilungen nach einer einzigen Genom Duplizierung erreicht. Haploid generieren Gameten, C. Elegans, wie bei den meisten anderen Metazoen trennen mütterlich und väterlich abgeleitet homologe in der first Division, während Schwester-Chromatiden aus jeder Homolog zu, in der zweiten Liga trennen. Eine Art und Weise das gesamte Genom Polyploidie entsteht in der Natur ist durch die Generierung von Gameten, die nicht auf die Hälfte ihrer Genomgröße während der Meiose.
Es ist bekannt seit über 50 Jahren die tetraploiden Nematoden C. Elegans sind lebensfähig und fruchtbar. Nigon23und späteren Madl und Herman22, generiert und eine Handvoll von C. Elegans tetraploiden durch meiotische Chromosomen Segregation stören identifiziert mit Hitzeschock Behandlungen und mit genetischen Markern, beziehungsweise. Eine einzige zusätzliche C. Briggsae tetraploide Sorte abgeleitet wurde, unter Verwendung dieses Protokolls über 30 Jahre später24. Diese tetraploiden wurden genutzt, um zu untersuchen, wie C. Elegans zu bestimmen, ob männlich oder zwittrig, wie Diploidie Wachstum und Größe reguliert zu werden und zu analysieren, Paarung und Synapsis Meiose25,26, 38 , 39 , 40. doch diese und andere Studien erfordern den Einsatz von spezifischen tetraploiden oder triploid Stämme durch die Schwierigkeiten bei der Generierung von tetraploiden Sorten durch diese Methode begrenzt waren.
Das hier beschriebene Protokoll ermöglicht die Erzeugung von stabilen voll 4A, 4 X und teilweise 4A, 3 X tetraploiden Caenorhabditis Nematoden Stämme aus einem initial diploiden genetischen Hintergrund oder ohne den Einsatz von genetischen Markern Chromosomen.
Tetraploidy ergeben sich durch mehr als ein Mechanismus in C. Elegans:
Madl und Herman vorgeschlagen, dass die tetraploiden Sorten, die sie wahrscheinlich generiert eine triploide Zwischenzustand abgeleitet. Ihre Stämme wurden durch Auswahl über mehrere Generationen hinweg oder über die vermeintliche Triploidie Mittelstufe mit diploiden Männchen22erhalten. Die Mängel im Chromosom Partitionierung in Rec-8 Mutanten, dass Anlass zu diploiden Eizellen und Spermien vorschlagen, ein weiterer möglichen Mechanismus durch den tetraploide Tiere mit dem Rec-8 RNAi Regelung27entstehen können.
Rec-8 RNAi behandelt Hermaphroditen könnte produzieren diploiden Oozyten und Spermatozyten, die tetraploide Tiere nach Befruchtung hervorrufen würde. Mit dieser Möglichkeit ist die Tatsache, dass einige der geklonten F2 Hermaphroditen führte zu stabile Lon-Stämme in der nächsten Generation, was darauf, dass hindeutet die geklonten Lon F2 Hermaphrodites wo bereits tetraploiden. An der Kreuzung-Regelung ist die erste Generation der Rec-8 RNAi behandelt Hermaphroditen mit unbehandelten Männchen gekreuzt. Diploide Spermatozyten könnte noch bei Männern entstehen, weil das Kreuz erfolgt in Anwesenheit von Bakterien, die mit dem Ausdruck Rec-8 DsRNA und somit Männchen Rec-8 RNAi während der Paarung für mindestens 3 Tage ausgesetzt sind. Daher könnte die Lon-Polyploids in der Umsetzungsprozesses Regelung auch von der Befruchtung der diploiden Oozyten durch diploide Spermien gebildet haben. Stabile tetraploide Sorten entstehen aus beiden Befruchtung zwischen diploiden Gameten oder kreuzende triploide Tiere mit Eizellen von Variablen Diploidie mit diploiden Tieren haploide Spermien produzieren.
Wichtige Überlegungen:
Selbst-im Vergleich zu gegenseitigen Befruchtung Regelungen:
Das Schema der Düngung selbst Rec-8 RNAi behandelt F1 Hermaphroditen und das Schema mit Überquerung des behandelten Hermaphroditen mit beiden unbehandelten Männern führte zu 4A, 4 X und 4A, 3 X tetraploiden Sorten. Obwohl mehrere Polyploids von selbst befruchtende Regelung zunächst isoliert waren, mehr dieser polyploider Tiere waren steril und somit beide Regelungen sind ebenso effizient bei der Herstellung von tetraploiden stabile Stämme. Der Grund für den erhöhten Erfolg und Sterilität in der selbst befruchtende Regelung bleibt unbekannt. Obwohl beide Systeme ebenso effizient sind, ist das selbst befruchtende Schema einfacher, da sie nicht die Isolierung der Männchen für die Paarung erfordert. Darüber hinaus wird die Belastung von Interesse ineffizient oder defekt bei Paarung, wäre selbst befruchtende Regelung vorzuziehen. Die Umsetzungsprozesses Schema kann verwendet werden, zur Erzeugung von komplexen tetraploiden mit mehr als zwei Versionen eines einzigen Chromosoms.
Änderungen und Einschränkungen:
Derzeit beinhaltet dieses Protokolls Rec-8 RNAi-Behandlung durch die Fütterung der Bakterien mit dem Ausdruck DsRNA für das Rec-8 gen. So, dieses Protokoll in Caenorhabditis Arten unempfänglich für RNAi durch die Fütterung oder in Mutanten defekt bei Umwelt- oder systemische Ausbreitung der RNAi zwischen Geweben41,42,43funktioniert nicht. Möglicherweise könnte dieses Problem gelöst werden, durch die Einführung von RNAi Behandlung durch direkte Injektion von DsRNA Sehenswürdigkeiten direkt in die Keimbahn.
Triploide Tiere müssen generiert werden, durch die Kreuzung einer tetraploiden zu einem diploiden Tier, von der es abgeleitet wurde, weil diese Regelung keine stabile triploid Stämme44,45erzeugt wird. Nur 15 % der Eizellen zeugte von triploide Hatch, und ihre Nachkommen sind meist sterile Nachkommen durch Aneuploidie. Darüber hinaus neigen die wenigen Überlebenden fruchtbare Nachkommen, vollständig oder in der Nähe von diploiden innerhalb von ein paar Generationen sein. Dies ist wahrscheinlich, zumindest teilweise, weil die Eizellen sind teilweise Korrektur Trisomie durch Trennung von dem dritten Chromosom in der Polkörper in die erste meiotische Teilung.
Eine unüberwindliche Einschränkung dieses Protokolls ist, dass es nicht, zur Herstellung von tetraploiden von Mutanten, die Komponenten der RNAi-Maschinerie zu beeinflussen funktioniert, weil sie resistent gegen RNAi Behandlung46sind.
Fehlerbehebung:
REC-8 RNAi:
Ein paar Überlegungen sind ausschlaggebend für dieses Protokoll um erfolgreich zu sein. Die erste ist mit frischen IPTG und frisch zubereiteten IPTG NMG Platten für die Induktion von Rec-8 DsRNA Produktion in den Bakterien HT115 Bakterien tragen die Rec-8 (W02A2.6)-Klon. IPTG ist lichtempfindlich und es ist wichtig, Belichtung, Platten zu reduzieren. IPTG Platten können bis zu 1 Monat bei 4 ° C im Dunkeln gelagert werden. Zweitens ergab die Rec-8 (W02A2.6) RNAi HT115 Bakterienstämme aus der Ahringer Bibliothek (Kamath und Ahringer 2003) eine stärkere Rec-8 Phänotyp als andere verfügbare Rec-8 HT115 Klone.
Tetraploide Sorte Wartung:
Tetraploide Sorten wachsen sehr langsam und höchstens 50 Stammarten pro Generation47zu produzieren. Alle identifizierten tetraploide Sorten sind relativ stabil, aber sie können brechen und diploid bei (Jonathan Hodgkin persönliche Kommunikation und unsere unveröffentlichten Beobachtungen) betont. Daher ist es wichtig zu beachten, dass bei tetraploide Sorten, bei 25 ° C Hitze schockiert angebaut werden, verhungert, oder eingefroren und aufgetaut, sie schnell auf Diploidie, zurücksetzen können so ist es wichtig, weiterhin die Lon-Tiere zu holen, wenn diese Stämme Auftauen oder wenn Freilegung dieser Stämme zu stressigen Bedingungen, die sie wiederherstellen verursachen kann.
Mögliche Anwendungen:
Untersuchung des Effekts oder die Rolle des gesamten Genoms Polyploidization in Evolution, Zellzyklus, Genexpression und Entwicklung in mehrzelligen Organismen hat sich auf Vergleiche zwischen gestützt: Zellen in einem Organismus, die verschiedenen Diploidie, dieselbe Zelle enthalten Typen in die eng Arten mit verschiedenen Diploidie oder Arten, die Polyploidization aus evolutionärer Ereignisse und physische Isolierung3,5,6,7,8 unterzogen haben ,11,18,19,20,48,49,50. Obwohl tetraploiden von Zebrafisch und Maus-Modellsystemen abgeleitet werden können, sind ihre Nachkommen steril oder anders tödliche16,17. Darüber hinaus diese Modellsystemen haben lange Lebensdauer im Vergleich zu C. Elegans und die verfügbaren Methoden zum generieren polyploider Tiere sind komplex und ineffiziente. C. Elegans Stämme durch diese Methode abgeleitet werden daher maßgeblich für die Förderung einer Untersuchung über die Auswirkungen und die Rollen des gesamten Genoms Polyploidie in mehrzelligen Organismen.
Da eine Triploidie aus einer tetraploiden abgeleitet werden kann, durch die Kreuzung der tetraploide, die ursprünglichen diploiden, bietet einen Vergleich zwischen diploiden, triploide und tetraploiden, die unterscheiden sich nur in der Anzahl der Kopien des Genoms, eine einzigartige und beispiellose Gelegenheit bewerten Sie gleichwertige Tiere/Organe/Zellen mit unterschiedlichen Genomgröße (oder gen-Dosis). Die Flexibilität und Benutzerfreundlichkeit des hier beschriebenen Systems hat uns erlaubt, Dutzende von tetraploiden Sorten aus verschiedene genetische Hintergründe diploiden oder Karyotyp zu generieren. Einige dieser Stämme wurden bereits auf Abfrage Mechanismen der Paarung der Homologen Chromosomen und Synapsis während der Meiose27verwendet.
Wildtyp und Mutanten tetraploide Sorten tragen fluoreszierenden Marker bieten neue Wege des Untersuchungsausschusses zu verstehen, Beziehungen zwischen Genom Verhältnis von Größe und nukleare/Zytosol auf intrazelluläre/Mobilfunk/Orgel und ganze Tier Skalierung, gesamte Genom Polyploidization auf Anpassung, Artbildung, gen-Dosis und Ausdruck und Gewebe und Organ-Entwicklung. Neben dem Studium der biologischen Skalierung wird die Generation der tetraploiden Sorten deutlich weitere Abfragen der grundlegende biologische Fragestellungen extrazelluläre Signal, Genom Instabilität, Endoreduplikation, gesamte Genom Vervielfältigung, gen Dosierung, Anpassung an stress, Entwicklung von Resistenzen gegen Medikamente und Mechanismus Artbildung.
Offenlegungen
Die Autoren haben nichts preisgeben.
Danksagungen
Wir danken den Caenorhabditis Genetik Center (finanziert vom National Institute of Health (NIH) Büro der Forschung Infrastruktur Programme P40 OD010440) Stämme. Die Autoren möchten Baptiste Roelens und Eli Lessman Danke für uns konstruktives Feedback und die Mano-Lab am CCNY, CUNY für die Nutzung seines Labors für einen Teil der Dreharbeiten und für ihre Unterstützung zur Verfügung zu stellen. Diese Arbeit wurde unterstützt durch einen PSC-CUNY Award TRADB-46-113 und NIH gewähren 1SC2GM118275-01. M.S wurde teilweise von einem kanadischen Institut der Gesundheit (CIHR) postdoctoral Fellowship unterstützt und e.k. wurde unterstützt von der NIH/NIGMS RISE GM062981 zu gewähren.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Präpariermikroskop | Motische Mikroskopie | SMZ171 | |
| Name | <>Unternehmen | Katalognummer | Kommentare |
| NGM Agarplatten | |||
| 60 mm x 15 mm Petrischale, steril | Tritech Research | T3305 | |
| 35 mm x 15 mm Petrischale, steril | Tritech Research | T3500 | |
| bakteriologischer Agar, 5 kg | VWR | 89140-850 | |
| Natriumchlorid, Biotechnologie | VWR | 97061-278 | |
| Pepton, BD Bacto | VWR | 90000-368 | |
| Ampicillin-Trihydrat | VWR | 97062-300 | |
| IPTG, | Thermo Scientific | R0391 | |
| Name | Company | Katalognummer< | strong>Comments |
| Growth Culture | |||
| LB Lennox Broth | IBI Scientific | 89126< | |
| strong>Name | Unternehmen | Katalognummer | <>Kommentare |
| LB Agarplatten | |||
| LB Agar Lennox | IBI Scientific | 89126-182< | |
| Name | Company | Katalognummer | Comments |
| Antibiotika | |||
| VWR | 97062-300 | ||
| Tetracyclin-Hydrochlorid | Fisher Scientific | BP912-100< | |
| strong>Name | <>Company | Katalognummer | Comments |
| Staining | |||
| Hoechst 33258, Pentahydrate | Biotium | 40045 | |
| DAPI | Biotium | 40011 | |
| Name | Company | Katalognummer | Comments |
| Ethanol Fixation | |||
| Ethanol, Pure, 190 Proof (95%), USP | Koptec, VWR | 89125-166 | |
| Name | <>Unternehmen | <>Katalognummer | >Kommentare |
| M9 Puffer | |||
| Natriumchlorid, Biotechnologie-Qualität | VWR | 97061-278 | |
| Kaliumphosphat, einbasische wasserfreie Qualität | VWR | 97062-346 | |
| Natriumphosphat, einbasisches Dihydrat | Fisher Scientific | AC271750025 | |
| Name | > | Katalognummer | >> |
| RNAi Klone | |||
| die rec-8 dsRNA exprimieren | Quelle Bioscience | W02A2.6 | |
| HT115 Bakterien, die rec-8 dsRNA exprimieren | Dharmacon | RCE1182-202299820 |
Referenzen
- Ricke, R. M., van Ree, J. H., van Deursen, J. M. Whole chromosome instability and cancer: a complex relationship. Trends Genet. 24, 457-466 (2008).
- Frawley, L. E., Orr-Weaver, T. L. Polyploidy. Curr Biol. 25, R353-R358 (2015).
- Orr-Weaver, T. L. When bigger is better: the role of polyploidy in organogenesis. Trends Genet. 31, 307-315 (2015).
- Otto, S. P. The evolutionary consequences of polyploidy. Cell. 131, 452-462 (2007).
- Davoli, T., de Lange, T. The Causes and Consequences of Polyploidy in Normal Development and Cancer. Annu Rev Cell Dev Biol. 27, 585-610 (2011).
- Adams, K., Wendel, J. Novel patterns of gene expression in polyploid plants. Trends Genet. 21, 539-543 (2005).
- Adams, K. L., Wendel, J. F. Polyploidy and genome evolution in plants. Curr Opin Plant Biol. 8, 135-141 (2005).
- Berman, J. Ploidy plasticity: a rapid and reversible strategy for adaptation to stress. FEMS Yeast Res. 16, (2016).
- Levy, D. L., Heald, R. Mechanisms of Intracellular Scaling. Annu Rev Cell Dev Biol. 28, 113-135 (2012).
- Breneman, A., Cande, J., Dunn, J., Burbank, K., O'toole, E. Genome-wide genetic analysis of polyploidy in yeast. Nature. 443, 541-547 (2006).
- Kuznetsova, A. Y., et al. Chromosomal instability, tolerance of mitotic errors and multidrug resistance are promoted by tetraploidization in human cells. Cell Cycle. 14, 2810-2820 (2015).
- Taylor, J. S., Van de Peer, Y., Meyer, A. Genome duplication, divergent resolution and speciation. Trends Genet. 17, 299-301 (2001).
- Younis, A., Hwang, Y. -J., Lim, K. -B. Exploitation of induced 2n-gametes for plant breeding. Plant Cell Rep. 33, 215-223 (2014).
- Ihssen, P. E., McKay, L. R., McMillan, I., Phillips, R. B. Ploidy Manipulation and Gynogenesis in Fishes: Cytogenetic and Fisheries Applications. Trans Am Fish Soc. 119, 698-717 (2011).
- Stanley, J. G., Allen, S. K., Hidu, H. Polyploidy induced in the American oyster, Crassostrea virginica, with cytochalasin B. Aquaculture. 23, 1-10 (1981).
- Eakin, G. S., Behringer, R. R. Tetraploid development in the mouse. Dev Dyn. 228, 751-766 (2003).
- Heier, J., Takle, K. A., Hasley, A. O., Pelegri, F. Ploidy manipulation and induction of alternate cleavage patterns through inhibition of centrosome duplication in the early zebrafish embryo. Dev Dyn. 244, 1300-1312 (2015).
- Arnold, B., Kim, S. -T., Bomblies, K. Single Geographic Origin of a Widespread Autotetraploid Arabidopsis arenosa Lineage Followed by Interploidy Admixture. Mol Biol Evol. 32, 1382-1395 (2015).
- Session, A. M., et al. Genome evolution in the allotetraploid frog Xenopus laevis. Nature. 538, 336-343 (2016).
- Gallardo, M. H., Bickham, J. W., Honeycutt, R. L., Ojeda, R. A., Köhler, N. Discovery of tetraploidy in a mammal. Nature. 401, 341(1999).
- Hodgkin, J. Primary sex determination in the nematode C. elegans. Development. 101, Suppl . 5-16 (1987).
- Madl, J. E., Herman, R. K. Polyploids and sex determination in Caenorhabditis elegans. Genetics. 93, 393-402 (1979).
- Nigon, V. Polyploidie experimentale chez un nematode libre, Rhabditis elegans maupas. Bull Biol Fr Belg. 95, 187-225 (1951).
- Woodruff, G. C., Eke, O., Baird, S. E., Félix, M. -A., Haag, E. S. Insights Into Species Divergence and the Evolution of Hermaphroditism From Fertile Interspecies Hybrids of Caenorhabditis Nematodes. Genetics. 186, 997-1012 (2010).
- Mlynarczyk-Evans, S., Roelens, B., Villeneuve, A. M. Evidence That Masking of Synapsis Imperfections Counterbalances Quality Control to Promote Efficient Meiosis. PLoS Genet. 9, e1003963(2013).
- Lozano, E., Sáez, A. G., Flemming, A. J., Cunha, A., Leroi, A. M. Regulation of Growth by Ploidy in Caenorhabditis elegans. Curr Biol. 16, 493-498 (2006).
- Roelens, B., Schvarzstein, M., Villeneuve, A. M. Manipulation of Karyotype in Caenorhabditis elegans Reveals Multiple Inputs Driving Pairwise Chromosome Synapsis During Meiosis. Genetics. 201, 1363-1379 (2015).
- Martinez-Perez, E., et al. Crossovers trigger a remodeling of meiotic chromosome axis composition that is linked to two-step loss of sister chromatid cohesion. Genes Dev. 22, 2886-2901 (2008).
- Severson, A. F., Ling, L., van Zuylen, V., Meyer, B. J. The axial element protein HTP-3 promotes cohesin loading and meiotic axis assembly in C. elegans to implement the meiotic program of chromosome segregation. Genes Dev. 23, 1763-1778 (2009).
- Kamath, R. S., Ahringer, J. Genome-wide RNAi screening in Caenorhabditis elegans. Methods. 30, 313-321 (2003).
- Wood, W. B. The Nematode Caenorhabditis Elegans. , Cold Spring Harbor Laboratory Press. New York. (1988).
- MacQueen, A. J., et al. Chromosome Sites Play Dual Roles to Establish Homologous Synapsis during Meiosis in C. elegans. Cell. 123, 1037-1050 (2005).
- Martinez-Perez, E., et al. Crossovers trigger a remodeling of meiotic chromosome axis composition that is linked to two-step loss of sister chromatid cohesion. Genes Dev. 22, 2886-2901 (2008).
- Schvarzstein, M., Wignall, S. M., Villeneuve, A. M. Coordinating cohesion, co-orientation, and congression during meiosis: lessons from holocentric chromosomes. Genes Dev. 24, 219-228 (2010).
- Kim, S., Spike, C., Greenstein, D. Germ Cell Development in C. elegans. , Springer. New York, NY. 277-320 (2013).
- Peters, N., et al. Control of mitotic and meiotic centriole duplication by the Plk4-related kinase ZYG-1. J Cell Sci. 123, 795-805 (2010).
- Pasierbek, P. A Caenorhabditis elegans cohesion protein with functions in meiotic chromosome pairing and disjunction. Genes Dev. 15, 1349-1360 (2001).
- Hodgkin, J. Primary sex determination in the nematode C. elegans. Development. 101, 5-16 (1987).
- Flemming, A. J., Shen, Z. -Z., Cunha, A., Emmons, S. W., Leroi, A. M. Somatic polyploidization and cellular proliferation drive body size evolution in nematodes. Proc Natl Acad Sci U S A. 97, 5285-5290 (2000).
- Meneely, P. M. Sex determination in polyploids of Caenorhabditis elegans. Genetics. 137, 467-481 (1994).
- Whangbo, J. S., Hunter, C. P. Environmental RNA interference. Trends Genet. 24, 297-305 (2008).
- Imae, R., Dejima, K., Kage-Nakadai, E., Arai, H., Mitani, S. Endomembrane-associated RSD-3 is important for RNAi induced by extracellular silencing RNA in both somatic and germ cells of Caenorhabditis elegans. Sci Rep. 6, 28198(2016).
- Tijsterman, M., May, R. C., Simmer, F., Okihara, K. L., Plasterk, R. H. A. Genes required for systemic RNA interference in Caenorhabditis elegans. Curr Biol. 14, 111-116 (2004).
- Cortes, D. B., McNally, K. L., Mains, P. E., McNally, F. J. The asymmetry of female meiosis reduces the frequency of inheritance of unpaired chromosomes. Elife. 4, e06056(2015).
- Vargas, E., et al. Autosomal Trisomy and Triploidy Are Corrected During Female Meiosis in Caenorhabditis elegans. Genetics. 207, 911-922 (2017).
- Tabara, H., et al. The rde-1 gene, RNA interference, and transposon silencing in C. elegans. Cell. 99, 123-132 (1999).
- Hodgkin, J. Karyotype, ploidy, and gene dosage. , University of Oxford. (2005).
- Schoenfelder, K. P., Fox, D. T. The expanding implications of polyploidy. J Cell Biol. 209, 485-491 (2015).
- Levy, D. L., Heald, R. Biological Scaling Problems and Solutions in Amphibians. Cold Spring Harb Perspect Biol. 8, a019166(2015).
- Taylor, J. S., Van de Peer, Y., Braasch, I., Meyer, A. Comparative genomics provides evidence for an ancient genome duplication event in fish. Philos Trans Royal Soc B. 356, 1661-1679 (2001).
Nachdrucke und Genehmigungen
