Dieses Protokoll beschreibt die Verwendung der einzelnen Kette MHC Klasse I komplexe molekulare Interaktionen in menschliche CD8 + T-Zell-Aktivierung zu untersuchen: Generation von veränderter antigenpräsentierende Zellen mit dem Ausdruck einzelne Kette konstruiert, Kultur der menschlichen CD8 + T Zelle Klon und T-Zell-Aktivierung-Experimenten.
Methodenartikel
Einzelne Kette MHC-Technologie zur Co-Agonismus in menschliche CD8 + T-Zell-Aktivierung zu untersuchen
In diesem Artikel
Zusammenfassung
Zusammenfassung
Selbst nicht-stimulierende Peptid-MHC (pMHC)-komplexe kein T-Zell-Aktivierung und Effektor-Funktionen auslösen, aber T-Zell-Antworten zu Agonist pMHC, durch einen Prozess bezeichnet co-Agonismus verbessern können. Dieses Protokoll beschreibt ein experimentelles System, co-Agonismus während menschliche CD8 + T-Zell-Aktivierung zu untersuchen, zum Ausdruck bringen menschliche MHC Klasse I Moleküle präsentieren vorab festgelegten Peptide als einziges Polypeptide (einzelne Kette MHC) in eine xenogene Zelllinie. Wir drückten einzelne Kette MHCs unter Bedingungen, wo niedrige Agonist einzelne Kette p-MHC-komplexe und hohes Maß an nicht-stimulierende einzelne Kette p-MHC-komplexe zum Ausdruck gebracht wurden. Dieses experimentelle System erlaubt uns CD8 + T-Zell-Antworten zu Agonist pMHC auf das Vorhandensein oder Fehlen von nicht-stimulierende pMHC vergleichen. Das Protokoll beschreibt Zelle Zeile Transfektion mit einzelnen Kette MHC-Konstrukten, Erzeugung von stabilen Zelle Linien, Kultur des Hepatitis B Virus-spezifische menschliche CD8 + T-Zellen und T-Zell-Aktivierung Experimente gleichzeitig quantifizieren Produktion von Zytokinen und Degranulation. Die vorgestellten Methoden können für die Forschung zu verschiedenen Aspekten der CD8 + T-Zell-Aktivierung in menschliche T-Zelle Systeme mit bekannten Peptid MHC Spezifität verwendet werden.
Einleitung
MHC Klasse I (MHC-ich) Moleküle präsentieren kurz (8 bis 10 Aminosäuren) Peptide Proteine synthetisiert durch jede Zelle abgeleitet. MHC-ich Moleküle auf gesunden Zellen präsentieren selbst Peptide von endogenen Proteinen abgeleitet. Virale Infektion führt zur Präsentation des nicht-ich Virus-abgeleitete Peptide auf MHC-ich, aber auch infizierte Zellen anwesend nicht-ich Peptide in Anwesenheit von großen Mengen an selbst-Peptid-MHC (pMHC). MHC-ich von der T-Zell-Rezeptor (TCR) und den CD8-Co-Rezeptor auf T-Zellen erkannt wird. TCR Bindungsaffinität zu Peptid pMHC ist stark abhängig von der Reihenfolge der präsentierten Peptide, während CD8 Bindung Peptid-unabhängig ist. TCR Bindung an nicht-ich Agonist pMHC Komplex führt zu T-Zell-Aktivierung und Effektor-Funktionen. Non-stimulierende selbst pMHC komplexe kein T-Zell-Aktivierung und Effektor-Funktionen auslösen, aber T-Zell-Antworten zu Agonist pMHC, durch einen Prozess bezeichnet co-Agonismus1,2,3verbessern können. Co-Agonismus ist beobachtet worden, in Maus CD4 + T Zellen4,5,6 sowie Maus und menschliche CD8 + T Zellen7,8,9,10, 11 , 12 , 13. unter physiologischen Bedingungen müssen T-Zellen erkennen, begrenzte Mengen von Agonist pMHC auf antigenpräsentierende Zellen (APCs) hohes Maß an nicht-stimulierende pMHC komplexe, was darauf hindeutet, dass co-Agonismus trägt zur optimalen T Co präsentieren in-vivo-Zell-Antworten. Gesamten Zelle Oberfläche MHC Klasse ich Ebenen sind häufig herunterreguliert bei Virusinfektionen14 und auf Tumoren15. Diese immun ausweichen Strategie verringert Agonist pMHC Präsentation, sondern verringert auch die Menge an Co-Agonist pMHC ich für T-Zell-Aktivierung-Erweiterung zur Verfügung. Darüber hinaus Klasse hohe Zelle Oberflächenexpression Ebenen des MHC I Molekül HLA-C haben gezeigt, dass korrelieren mit verbesserten HIV Control16, was eine kritische Rolle für total MHC Klasse ich Ausdruck in T-Zell-Aktivierung. Trotz die physiologische Bedeutung von co-Agonismus ist seine molekulare Mechanismus noch nicht vollständig verstanden. Dies ist vor allem auf technische Herausforderungen die Menge der dargestellten Co-Agonist pMHC experimentell zu kontrollieren, während Agonist pMHC konstant zu halten.
Wir entwickelten ein experimentelles System, co-Agonismus während menschliche CD8 + T-Zell-Aktivierung zu untersuchen, zum Ausdruck bringen menschliche MHC Klasse I Moleküle präsentieren vorab festgelegten Peptid als einzigen Polypeptid (einzelne Kette MHC-I, Abb. 1A) in einer xenogene Zelle Linie9,10. Einzelne Kette (sc) Agonist pMHC drückte sich unter Kontrolle von Tetracyclin-induzierbaren Promoter in die Hamster abgeleitet T-REx CHO Zellinie Tetracyclin Repressor zum Ausdruck zu bringen; Dies ermöglicht sehr geringe "undichte" Expression sc Agonist pMHC in Abwesenheit von Tetracyclin und hohe sc Agonist pMHC Ausdruck nach Zugabe von Tetracyclin (Abbildung 1 bC). Sc-Agonist pMHC exprimierenden T-REx CHO-Zellen wurden dann Supertransfected mit stimulierende, Co-Agonist-sc-pMHC-ich unter Kontrolle eines konstitutiv aktiven Promotors (Abbildung 1 bC). Dieses experimentelle System erlaubt uns CD8 + T-Zell-Antworten zu Agonist pMHC auf das Vorhandensein oder Fehlen der hohen nicht-stimulierende pMHC vergleichen. Kritisch, da Peptid und MHC-ich schwere Kette sind kovalent verknüpft, in der ScMHC-I-format, so dass Einführungen von Mutationen in MHC-Moleküle, die vorher festgelegten Peptide präsentieren. Verwendung von ScMHC-ich Technologie erlaubt uns, speziell TCR oder CD8-bindenden Eigenschaften der Agonist oder Co-Agonist pMHC modulieren so.
Co-Agonismus in CD8 + T-Zell-Aktivierung ist beobachtet worden, mit gereinigten MHC-ich komplexe Darstellung von Agonist und Co-Agonist Peptiden in Form von Heterodimere11,17 oder vorgestellt auf Quantum dots12,13. Frühwerk auf co-Agonismus in CD8 + T-Zell-Aktivierung im Rahmen der Agonist pMHC Anerkennung auf APC verwendet TAP2-defizienten Zelllinien als APCs. TAP ist erforderlich für Peptid-Transport von Zytoplasma nach dem endoplasmatischen Retikulum und TAP-Mangel stark reduziert den Pool der verfügbaren MHC-Klasse-Bindung Peptide. In Ermangelung von Peptiden, die im Entstehen begriffenen Anlage des MHC Klasse I schwere Kette und β2- Mikroglobulin ist instabil, was zu sehr geringen MHC-ich Zelle Oberflächenexpression. Zunächst, ergab Vergleich der T-Zellen stimuliert mit Antigen auf TAP-ausreichend und - mangelhaft Maus RMA und RMA-S Zelllinien, geladen bzw. als APCs, keine Beweise für das co-Agonismus während Maus T-Zell-Aktivierung-18. Dieses experimentelle System erlaubte jedoch nicht präzise Kontrolle über die Menge der Agonist pMHC unabhängig von nicht-stimulierende selbst pMHC vorgestellt. Darüber hinaus können diese beiden Zelllinien unterscheiden sich auch in andere Moleküle, die T-Zell-Aktivierung, wie Liganden an T-Zell-co-stimulatory oder hemmenden Rezeptoren modulieren oder Adhäsionsmoleküle Ausdruck.
Daraufhin entwickelten wir ein Protokoll für das Laden von RMA-S TAP2-defizienten Zellen mit exogenen Peptide, Präsentation eines Festbetrags Agonist pMHC in das Vorhandensein oder Fehlen von nicht-stimulierende pMHC zuzulassen. Wurde dies durch die folgenden: Inkubation von TAP2-defizienten RMA-S Zellen bei niedrigeren Temperaturen (28 ° C, statt der üblichen 37 ° C) zur Stabilisierung der leere MHC Klasse I schwere Kette/β2 Mikroglobulin komplexe19; Inkubation bei 28 ° C mit exogenen Agonisten Peptid; Inkubation bei 28 ° C in das Vorhandensein oder Fehlen von exogenen nicht-stimulierende Peptid; und Inkubation bei 37 ° C zu Zelle Oberflächenexpression von leere MHC Klasse I komplexe8,9. Verwendung von dieser Versuchsanordnung ergab, dass das Vorhandensein von nicht-stimulierende pMHC Aktivierung der Maus Thymozyten, naive peripheren CD8 + T-Zellen und CTLs8verbessert. Mechanistisch, das Vorhandensein von nicht-stimulierende pMHC CD8-Einstellung auf der T-Zelle: APC immun Synapse auch in Abwesenheit von Agonist pMHC auslösen kann, und nicht-stimulierende pMHC kann TCR Interaktion mit CD8 Coreceptor7,8erhöhen. Jedoch erlaubt dieses experimentelle System nicht die relativen Beiträge der TCR und CD8 Coreceptor Bindung an Agonist und Co-Agonist pMHC bei der Vermittlung der Aktivierung Erweiterung, als Änderungen verändern TCR oder CD8 Bindung an MHC-Klasse würde ich testen beeinflussen Sie alle MHC-Moleküle, unabhängig davon das präsentierte Peptid. Wir nutzten daher MHC Klasse ich einzelne Kette-Technologie, um dieses Problem zu überwinden.
Die einzige Kette (sc) MHC-Klasse, die ich formatieren wurde bevor zur Antigen pMHC Präsentation für therapeutische Strategien zu verbessern und beantworten grundlegende Fragen zu Mechanismen des TCR und NK-Zell-Rezeptor-Aktivierung und Funktion20,21 . ScMHC-I besteht aus Peptid, β2- Mikroglobulin und MHC-ich schweren Kette zusammen mit zwei flexiblen Serin, Glycin-reiche linker (Abbildung 1A), mehrere unterschiedliche Linker Sequenzen wurden entwickelt und getestet von22. ScMHC-ich kann unabhängig von den Hahn komplexe Falten und chaperone Proteine, die für konventionelle pMHC komplexen Baugruppe20erforderlich. ScMHC-ich habe, richtig, wie über Konformation-spezifischen Antikörper Färbung22 ermittelt und durch das lösen von sc-Struktur mit Röntgen-Kristallographie23Falten gezeigt wurde. Die grundlegende ScMHC-ich Design wurde geändert, um die Bindung geringe Affinität Peptide24,25zu verbessern.
Dieses Protokoll beschreibt die Verwendung von menschlichen ScMHC-I, co-Agonismus während menschliche CTL zu untersuchen-Klon Aktivierung. Das Protokoll ist für menschliche CTL-Klon, die spezifisch für ein Epitop des Hepatitis B-Virus (HBV) optimiert worden. HBV ist eine schwere medizinische Belastung weltweit, da gibt es 350 Millionen Menschen infiziert mit HBV und chronische HBV-Infektion zur Entwicklung eines hepatozellulären Karzinoms (HCC) führen können. HCC-Zellen infolge der HBV-Infektion können in der Regel HBV-abgeleitete Epitope präsentieren und durch bestimmte menschliche T-Zellen erkannt werden. HBV und HCC Clearance stützt sich auf die menschlichen T-Zell-Antworten26, aber HCC-Patienten leiden oft an T-Zell-Erschöpfung und reduzierte T-Zell-Antworten-27. Einführung von HBV-spezifische TCR in T-Zellen der HBV ist als mögliche Immuntherapie Strategie, chronische HBV-Infektion28zu beseitigen versucht worden. Es ist jedoch unbekannt, ob diese Methode in einer klinischen Einstellung, aufgrund der geringen Oberfläche MHC wirksam sein wird-ich in humanen Hepatozyten29. Daher kann Verständnis des Mechanismus der Coagonism alternative Perspektiven Immuntherapie des HBV, möglicherweise vorsehen, durch die Verbesserung der Präsentation des endogenen pMHC, co-Agonismus-vermittelten T-Zell-Antworten zu induzieren. Das Protokoll umfasst alle notwendigen Schritte für die Forschung an menschlichen co-Agonismus: Transfektion von T-REx CHO-Zellen mit Agonist und Co-Agonist sc pMHC, Erzeugung von stabilen T-REx CHO-Zell-Linien, Kultur der HBV-spezifische menschliche CTL CD8 + T-Zell-Linie und CTL-Aktivierung Experimente, die Produktion von Zytokinen und Degranulation in Reaktion auf T-REx CHO-Zellen zu quantifizieren. Obwohl wir konzentrieren uns auf mit der sc-MHC Klasse I Technologie, co-Agonismus bei HBV T-Zell-Aktivierung zu untersuchen, ist darauf hinzuweisen, dass die vorgestellten Methoden leicht in menschliche T-Zelle Systeme mit bekannten pMHC für Forschung zu anderen Aspekten der T-Zell-Aktivierung angepasst werden können-ich Spezifität.
Dieses Protokoll verwendet eine menschliche CD8 + CTL-Linie speziell für HBV-abgeleitete Peptide E183-91 (FLLTRILTI: "E183")30 auf HLA-A2 vorgestellt. SC HLA-Moleküle bestehend aus einer Signalsequenz von menschlichen β2-Mikroglobulin, synthetisiert eine HLA-A2-Bindung-Peptid, Glycin/Serin Linker, ein menschlicher β2-Mikroglobulin, Glycin/Serin Linker und eine schwere Kette kommerziell sein kann A2 (Abbildung 1A ). Plasmide, die Codierung scA2 Konstrukte mit Agonist E183 Peptid oder Coagonist HIV GAG (SLYNTVATL)31 Peptide sind von den Autoren auf Anfrage erhältlich. Der Peptidsequenz kann mit Website gerichtet-Mutagenese geändert werden. PcDNA5/TO diente ein Tetracyclin-induzierbaren Vektor Agonist einzelne Kette HLA-A2 mit E183 Peptid (sc E183-HLA-A2) zum Ausdruck bringen. In Anwesenheit von Tetracyclin Repressor, der pcDNA5/TO Plasmid ermöglicht nur eine sehr geringe, "undichte" Ausdruck des Proteins des Interesses; hohen Ausdruck kann durch die Zugabe von Tetracyclin (Abbildung 1 bC) induziert werden. Verwendung von Tetracyclin-induzierbaren Expressionssystems ermöglicht Kontrolle über die Höhe der Zelle Oberfläche Agonist pMHC Ausdruck. Eine konstitutive Expression Plasmid pcDNA3.1 wurde verwendet, um auszudrücken Coagonist scA2 mit Knebel Peptid (sc GAG-HLA-A2). Der Tetracyclin-regulierten Ausdruck (T-REx) CHO Zelllinie (Hamster Zelllinie, keine endogenen menschlichen MHC) wurde verwendet, um auszudrücken Agonist und Co-Agonist sc-HLA-A2-Konstrukte. Dieses experimentelle System ermöglicht präzise Kontrolle über pMHC Präsentation (Abbildung 1): keine pMHC-Präsentation (untransfected T-REx), ein hohes Maß an Co-Agonist pMHC Präsentation (konstitutive sc GAG-HLA-A2 Ausdruck), eine geringe Menge an Agonist pMHC Präsentation (sc E183-HLA-A2 in Ermangelung von Tetracyclin), ein hohes Maß an Agonist pMHC Präsentation (sc E183-HLA-A2 in Anwesenheit von Tetracyclin), eine geringe Menge an Agonist pMHC Darstellung und hohe Ausdruck der Co-Agonist pMHC (sc E183-HLA-A2 in die Abwesenheit von Tetracyclin und konstitutive sc GAG-HLA-A2 Ausdruck). Dieses experimentelle System ermöglicht präzise Kontrolle der Zelle Oberfläche Mengen von Agonist und Coagonist pMHC.
Protokoll
Hinweis: Alle Schritte mit Leben, nicht fixierten Zellen in eine biologische Sicherheit Haube durchgeführt werden sollte, und biogefährlichen Abfällen entsorgen gemäss den örtlichen Vorschriften für Sicherheit und Gesundheitsschutz.
(1) CHO Zelle Transfection und Erzeugung von stabilen CHO-Zell-Linien
-
CHO Zelle Transfektion
Hinweis: dieser Abschnitt beschreibt CHO Zelle Transfektion mit Polyethylenimine (PEI). Jedoch können alternative Methoden verwendet werden, da CHO-Zellen relativ leicht sind zu transfizieren, mit handelsüblichen Lipid Transfektion Reagenzien.- Kultur CHO-Zellen in komplette F12 (cF12, F12 ergänzt mit 5 % FBS, 100 U/mL Penicillin, 100 μg/mL Streptomycin und 10 µg/mL Blasticidin weiterhin Ausdruck der Tetracyclin-Repressor). Durchgang der Zellen alle 3-4 Tage um eine 01:10 Verhältnis.
- Bereiten Sie einen Tag vor Transfektion, die Zellsuspension CHO. Waschen Sie CHO-Zellen in den Kolben mit PBS (10 mL für PBS für eine T75-Flasche 5 mL PBS für T25 Kolben). Hinzufügen von 0,05 % Trypsin/0.02% EDTA in PBS (2 mL für ein T75 Fläschchen, 1 mL für ein T25-Fläschchen) in den Kolben und inkubieren Sie für 5 bis 10 min bei Raumtemperatur (RT). Mit einem Lichtmikroskop, überprüfen Sie, dass die Zellen gelöst haben, und Trypsinization zu stoppen, indem Sie den Kolben (8 mL für eine T75 Kolben, 4 mL für ein T25-Fläschchen) cF12 hinzufügen.
- Übertragen der Zellsuspension CHO eine 15 mL Tube und Zentrifuge bei 300-400 X g für 5 min bei 4 ° C oder RT. Entfernen Sie überstand, neu in cF12 (10 mL für eine T75-Flasche, 5 mL für ein T25-Fläschchen) und zählen mit einem Hemocytometer.
- Passen Sie die Zellkonzentration bis 60.000-100.000 CHO Zellen/mL. 5 mL Zellsuspension CHO (300.000-500.000 CHO-Zellen) pro Bohrloch in einer 6-well-Platte hinzugeben. Inkubation über Nacht bei 37 ° C, 5 % CO2.
- Am Tag der Transfektion fügen Sie 400 μl des serumfreien F12 oder niedrigen Serum Medien eine 1,5 mL-Tube hinzu. 400 μl Medien 3 μg Plasmids hinzufügen. Mischen von pipettieren. Fügen Sie 6 μg des PEI (6 μl Lösung 1 mg/mL PEI) zu den Medien/DNA mischen und Wirbel sofort für 10 s.
- Inkubieren Sie Medien/DNA/PEI-Mix bei RT für 10-15 min. Während diese Inkubation ersetzen Sie CHO Zelle Medien in die 6-well-Platte mit 5 mL frischem cF12 Medien.
- CHO-Zellen die Medien/DNA/PEI-Lösung hinzufügen. Fügen Sie der Lösung tropfenweise und gleichmäßig über dem Brunnen. Inkubation über Nacht bei 37 ° C, 5 % CO2.
-
Generation von stabilen Zelllinien CHO
- Einen Tag nach Transfektion, entfernen Sie Medien aus dem Brunnen und 5 mL cF12 mit der entsprechenden Auswahl Antibiotika in jede Vertiefung. Verwenden Sie 0,3 mg/mL Hygromycin für pcDNA5TO-basierte Plasmide und 1 mg/mL Geneticin für pcDNA3-basierte Plasmide.
- Wenn die Zellen erreichen mehr als 90 % Konfluenz bei 24 h Transfektion post, trypsinize der Zellen.
- Waschen Sie Brunnen mit 1 mL PBS pro Bohrloch zu, fügen Sie 1 mL 0,05 % trypsin/0.02% EDTA in PBS und inkubieren Sie 5-10 min bei RT mit einem Lichtmikroskop, überprüfen Sie, ob die Zellen gelöst haben, und Trypsinization durch Zugabe von 3-4 mL cF12 pro Bohrloch zu stoppen.
- Die Zellsuspension CHO eine 15 mL Tube und Zentrifuge bei 300-400 X g für 5 min bei 4 ° C oder RT entfernen des Überstands übertragen und neu in 10 mL cF12 auszusetzen. Fügen Sie 5 mL Zellsuspension pro Bohrloch in 6-well-Platte. Verwenden Sie zwei Brunnen, um Ertrag von transfizierten Zellen zu maximieren.
- Inkubieren Sie die 6-well-Platten bei 37 ° C, 5 % CO2. Zelltod und das Wachstum der resistenten Kolonien mit einem Lichtmikroskop zu überwachen. Entfernen Sie Medien zu und ersetzen Sie sie durch neue Medien mit den entsprechenden Antibiotika nach 4-5 Tagen, oder wenn wesentliche Zelltod beobachtet wird.
- Sobald die resistenten Zellen erreichen mehr als 70 % Zusammenströmen, trypsinize der Zellen, wie beschrieben im Schritt 1.2.2 und transfer zum T25 Kolben für Expansion. Die antibiotische Auswahl dauert 1-2 Wochen.
- Sobald der Antibiotika-resistente CHO-Zellen in den T25 Kolben Zusammenfluss von 70-80 % erreichen, führen Sie Antikörper Färbung überprüfen Zelle Oberflächenexpression der Konstrukte von Interesse. Einen Tag vor Antikörper Färbung, trypsinize der Zellen, wie in Schritt 1.2.2 beschrieben und passen Sie die Zellkonzentration bis 200.000 Zellen/mL und 12-well-Platte 1 mL Zellsuspension hinzufügen. Fügen Sie zum Testen der Tetracyclin-induzierbaren Konstrukte, 50-60 ng/mL Tetracyclin. Inkubation über Nacht bei 37 ° C, 5 % CO2.
- Verwenden Sie Zelle Schaber, um CHO-Zellen vom Grund des Brunnens zu lösen. Diese Methode empfiehlt sich, Trypsinization, wie es das Risiko von Epitop Schäden durch proteolytische Spaltung verringert.
- Übertragen Sie 1 mL der Medien, die die CHO-Zellen zu einem FACS-Schlauch. Spin-down bei 300-400 X g, 4 ° C für 5 min. wieder aussetzen in 100 μl Anti-HLA-Antikörper in FWB verdünnt. Inkubieren Sie 30 min bei 4 ° C auf dem Eis. Führen Sie diese Färbung mit Antikörper Anti-A2, insgesamt A2 Zelle Oberflächenexpression Stufen zu erkennen und TCR-ähnliche Antikörper spezifische für A2 im Komplex mit E183 Peptid Agonist pMHC erkennen-ich Zelle Oberflächenexpression Ebenen.
- Nach der Überprüfung MHC Ausdruck, FACS-Art der positiven Zellen und pflegen der sortierten Zellen in Medien mit Antibiotika, Transgen Verlust zu reduzieren. Für CHO-Zellen mit dem Ausdruck Agonist pMHC einzelne Zelle Sortierung empfiehlt sich vergleichbare Agonist pMHC Ausdruck mit und ohne Supertransfection mit Co-Agonist pMHC sicherzustellen. 2-3 Wochen sind für CHO Zellwachstum nach, die einzelne Zelle Sortierung erforderlich.
(2) HBV-spezifische CTL-Kultur
-
Vorbereitung der PBMCs als Zubringer für die HBV-spezifische menschliche CTL Re stimulation
Hinweis: für den A2-E183-spezifische CTL-Klon, erneute Stimulation mit frisch isolierte PBMCs, anstatt aufgetauten PBMCs, bietet die besten Ergebnisse.
Vorsicht: Erhalten Sie alle notwendigen ethischen Genehmigungen vor der Rekrutierung von Freiwilligen für Blutspenden. Für die Zwecke dieser Arbeit wurden von gesunden Probanden unter das Protokoll genehmigt durch NUS IRB PBMC gesammelt. Die Einwilligung wurde von allen Spendern. Befolgen Sie alle notwendigen Vorsichtsmaßnahmen beim Arbeiten mit menschlichem Blut, Gefahr der Übertragung von Blut übertragbaren Krankheiten zu reduzieren.- Stellen Sie bevor Sie beginnen die Temperatur der Zentrifuge bei 19-20 ° C und wärmen Sie der Dichtegradient (z. B. Ficoll), RT vor
- 50 mL-Tube 15 mL Raumtemperatur Dichtegradient hinzufügen. Zentrifuge bei 400 X g für 5 min bei 19-20 ° C. Dies soll sicherstellen, dass es gibt keine Dichtegradient auf der Seite der Röhre.
- Sammeln Sie 20 mL Blut eines gesunden freiwilligen Spenders durch Venenpunktion. 20 mL Blut in eine 50 mL-Tube 15 mL PBS hinzufügen. Mischen von Pipettieren rauf und runter.
- Hinzugeben Sie langsam, die 35 mL Blut verdünnt mit PBS-Puffer auf die 15 mL Dichtegradient aus Schritt 2.1.2. Stellen Sie sicher, dass das Blut und die Dichtegradienten nicht mischen. Zentrifugieren Sie die Rohre bei 19 ° C, 1.200 X g für 20 min. mit den Bremsen aus.
- Etwa 70 % des Plasma-Schicht zu entfernen. Aspirieren Sie sorgfältig die Schicht mit der PBMC (die trübe Schicht auf der Oberseite der Verlaufsebene klar Dichte) mit einer Pasteur pipette und legen Sie sie in eine neue 50 mL Tube.
- PBMCs zu einem Gesamtvolumen von 50 mL fügen Sie PBS hinzu. Zentrifugieren Sie Rohr bei 4 ° C, 300-400 X g für 10 min. Entfernen Sie vorsichtig den Überstand mit dem Vakuum-Sauger und sterile Glas Pasteurpipette oder durch dekantieren.
- Wieder aussetzen Sie, die Zellen in 50 mL PBS. Zentrifugieren Sie Rohr bei 4 ° C, 300 X g für 10 min. Entfernen Sie vorsichtig den Überstand mit dem Vakuum-Sauger und sterile Glas Pasteurpipette oder durch dekantieren.
- Wieder aussetzen Sie Zellen in 2 mL der komplette menschliche T-Zelle Medien (Serum freie Medien ergänzt mit humanem Serum 2 %). Zählen Sie die Zellen mit Hemocytometer. Dieses Protokoll bietet im Durchschnitt 1-2 x 10⁶ PBMCs pro 1 mL Blut verwendet.
-
CTL Re Stimulation mit PBMCs als Feeder-Zellen
- Bestrahlen PBMCs bei 30 Gy, Verbreitung in Reaktion auf die nachfolgende Stimulation zu hemmen.
Achtung: Gewährleisten Sie angemessene Ausbildung und Compliance mit dem Labor Sicherheitsanforderungen bei der Moorpackung. - Wieder aussetzen der bestrahlten PBMCs in vollständige menschliche T-Zelle Medien bei 2 x 10⁶ Zellen/mL. Zytokine und Lektin für die CTL Re Stimulation bei 2 X-Konzentration in der PBMC Suspension aus Phaseolus Vulgaris (PHA) hinzufügen. Die endgültige Cytokine und PHA-Konzentrationen sind: 20 U/mL rekombinanten menschlichen Il-2, 10 ng/mL rekombinantes IL-7, 10 ng/mL rekombinanten menschlichen IL-15 und 1,5 mg/mL-PHA.
- Tauen Sie das gefrorene CTL-Fläschchen in einem 37 ° C-Wasserbad. Übertragen Sie die aufgetauten Zellen in eine 15 mL-Tube mit 10 mL der komplette menschliche T-Zelle Medien. Spin-down bei 300-400 X g bei 4 ° C für 5 min. Entfernen Sie vorsichtig den Überstand mit dem Vakuum-Sauger und sterile Glas Pasteurpipette oder durch dekantieren.
- Wieder aussetzen CTLs in 2 mL des kompletten menschlichen T-Zell-Medien. Zählen Sie die Zellen mit Hemocytometer. Hinzufügen von Medien vollständige menschliche T-Zelle um Zellkonzentration von 106 Zellen/mL zu erhalten.
- In einer 24-well-Platte hinzufügen 0,5 mL der bestrahlten PBMCs (106 Zellen) mit 2 X cytokines und PHA (Schritt 2.2.2) und 0,5 mL der CTLs (0,5 x 10⁶ Zellen) pro Bohrloch. Anzahl der Bohrungen verwendet hängt von der Gesamtzahl der CTLs oder PBMCs zur Verfügung. Inkubation bei 37 ° C, 5 % CO2.
- Nach 4-5 Tagen, wann CTL Blasten sind sichtbar und die Medien werden gelb, die Kulturen in 6-well-Platten, und ergänzen Sie die ersten 1 mL Volumen mit 4 mL des kompletten menschlichen T-Zell-Medien mit 20 U/mL IL-2, 10 ng/mL IL-7 und 10 ng/mL IL-15 (keine PHA).
- Nach 2-3 Tagen die Kulturen in einem T75 Kolben übertragen, 40 mL der komplette menschliche T-Zelle Medien mit Zytokinen (Schritt 2.2.2, keine PHA) hinzufügen und Kultur in einer aufrechten Position.
- Halten Sie CTLs in einer Konzentration von 1-2 x 10⁶ Zellen/mL durch Zugabe von frischen Medien ergänzt durch Zytokine (Schritt 2.2.2, keine PHA) ein Volumen entspricht derjenigen der bestehenden Kulturvolumen an jedem anderen Tag. CTLs können 7-14 Tage nach der erneuten Stimulation für Experimente verwendet werden.
- Bestrahlen PBMCs bei 30 Gy, Verbreitung in Reaktion auf die nachfolgende Stimulation zu hemmen.
3. T-Zell-Aktivierung-Experimente
Hinweis: Ein typisches Experiment erfordert verschiedene T-RExCHO Linien: untransfected T-REx-CHO-Zellen (Negativkontrolle), T-REx CHO-Zellen mit dem Ausdruck ihrer nicht-stimulierende pMHC nur (scA2-GAG; Negativkontrolle), T-REx CHO-Zellen mit dem Ausdruck ihrer geringe Mengen an Agonist pMHC-ich () scA2-ENV ohne Tetracyclin, experimentelle Probe), T-REx CHO Zellen auszudrücken, geringe Mengen an Agonist pMHC und hohe Mengen an nicht-stimulierende Co-Agonist pMHC (scA2-ENV und scA2-GAG, ohne Tetracyclin, experimentelle Probe) und T-REx CHO-Zellen hohe Mengen an Agonist pMHC zum Ausdruck zu bringen-ich scA2-ENV mit Tetracyclin, Positivkontrolle), wie auf Abbildung 1Dgezeigt.
-
Plattieren CHO-Zellen als antigenpräsentierende Zellen
- Kultur-CHO-Zellen in T75 Kolben, wie in Schritt 1.1.1 beschrieben. Verwenden Sie Zellen am Zusammenfluss von 70-90 %, für beste Ergebnisse. Einen Tag vor der T-Zell-Aktivierung zu experimentieren, die Zellen trypsinize, wie im Abschnitt 1.1.2 beschrieben. Übertragen Sie nach Trypsinization die Zellsuspension in einem 15 mL-Tube, Zentrifuge bei 400 X g für 5 min bei 4 ° C oder RT, entfernen Sie überstand durch Pipettieren oder dekantieren.
- Wieder aussetzen der Zelle Pellet in 5 mL cF12. CHO-Zellen mit einem Hemocytometer zu zählen.
- Passen Sie die Zellkonzentration, 2 x 10⁵/mL mit cF12. Fügen Sie 50-60 ng/mL Tetracyclin, Agonisten nur Proben, um hohe Mengen an Agonist pMHC induzieren-ich Ausdruck als Positivkontrolle (Abbildung 1). CHO-Zellen werden in 15 mL-Tuben, niederlassen daher unbedingt durch Pipettieren oder aufschütteln vor Beschichtung vermischen.
- Für T-Zell-Aktivierung-Assay U-Boden-96-well-Platte 100 μL der CHO-Zellsuspension pro Bohrloch hinzu, und verwenden Sie Triplicates pro CHO-Zell-Linie. Für CHO Zelle Anti-MHC Färbung, 12-well-Platte 1 mL Zellsuspension hinzu, und verwenden Sie Triplicates pro Zell-Linie. Inkubation über Nacht bei 37 ° C, 5 % CO2.
-
T-Zell-Aktivierung-assay
Hinweis: dieser T-Zell-Aktivierung-Assay ermöglicht gleichzeitige Quantifizierung der T-Zelle Degranulation (CD107a Färbung, ein Maß für die T-Zell-Zytotoxizität) und Produktion von Zytokinen.- Am Tag vor dem Experiment Zentrifugieren Sie CTLs Zellen bei 400 X g bei 4 ° C für 5 min, zählen Sie mit Hemocytometer und wieder auszusetzen Sie, die Zellen 106 Zellen/ml in vollständige menschliche T-Zelle Medien ohne Zytokine oder PHA. Inkubation bei 37 ° C, 5 % CO2. Dieser Rest Schritt dient CTL Empfindlichkeit reduziert wie wir maximale Aktivierung als Reaktion auf geringe Mengen an Antigen ohne diesen Schritt beobachten konnten.
- Am Tag des Experiments, Zentrifuge T-Zellen bei 400 X g bei 4 ° C für 5 min, entfernen Sie den Überstand durch Dekantieren oder pipettieren und wieder auszusetzen Sie, die Zellen in 2 mL komplette serumfreie Medien (ohne Zytokine oder PHA). Live T-Zellen unter Verwendung einer Hemocytometer zählen, und T-Zell-Konzentration bis 106 live Zellen/mL mit kompletten menschlichen T-Zell-Medien (ohne Zytokine oder PHA) anpassen.
- Fügen Sie Anti-Human CD107a Antikörper bei einer Verdünnung von 1: 100 (Endkonzentration von 2,5 μg/mL hinzu), fügen Sie Brefeldin A bei einer Verdünnung von 1: 1000 (Endkonzentration von 1 μg/mL).
- Entfernen Sie Medien aus den CHO-Zellen in der 96-well-Platte, durch Absaugen mit Glas Pasteurpipette oder durch Streichen der Plattenrandes. Pro Well fügen Sie 200 μL der T-Zelle Aussetzung (0,2 x 10⁶ Zellen) mit Anti-CD107a und Brefeldin A. Kokultur T-Zellen mit CHO-Zellen für 3-4 h.
- Am Ende der Kokultur durchführen Sie T Zelle Oberflächenantigen Färbung. Spin-down 96 well-Platte bei 300-400 X g, 5 min bei 4 ° C, und den Überstand durch Absaugen oder streichen entfernen. Fügen Sie 2,5 μL der CD3 und 2,5 μL der CD8-Antikörper in 50 μL von 0,5 % BSA mit PBS-Puffer (Fluss Waschpuffer, FWB) pro Bohrloch für Zelle Oberflächenantigen Färbung. Inkubieren Sie Proben für 30 min in der Dunkelheit auf Eis.
- Waschen Sie Proben durch Zugabe von 150 μL der FWB pro Bohrloch. Spin-down 96 well-Platte bei 300-400 X g, 5 min bei 4 ° C, und den Überstand durch Absaugen oder streichen entfernen.
- Fixierung/Permeabilisierung Schritte mit einer Fixierung/Permeabilisierung Kit. Fügen Sie 100 µL Fixierung/Permeabilisierung Lösung (von der Fixierung/Permeabilisierung Kit) pro Bohrloch hinzu, mischen Sie, indem Sie pipettieren. Inkubieren Sie für 20 min auf Eis.
- Zentrifugieren bei 300-400 X g und 4 ° C für 5 min, und den Überstand durch Absaugen oder streichen zu entfernen. Fügen Sie 200 μl 1 x Perm/Waschpuffer (10 x Perm/Waschpuffer Lager aus dem Kit vor dem Gebrauch verdünnen) pro Bohrloch. Wiederholen Sie diesen Schritt.
- Wieder aussetzen der Zelle Pellet in 50 μl 1 X Perm/Waschpuffer mit Anti-IFN-γ-Antikörper bei 0,3 μg/mL. Inkubation für 30 min in Dunkelheit auf Eis.
- Fügen Sie 150 μl 1 X Perm/Waschpuffer. Bei 300-400 X g für bei 4 ° C für 5 min Zentrifugieren und Entfernen des Überstands durch Absaugen oder streichen. Fügen Sie 200 μl 1 x Perm/Waschpuffer, 300-400 X g bei 4 ° C für 5 min Zentrifugieren und entfernen den Überstand durch Absaugen oder streichen.
- Wieder aussetzen Sie, jede Probe in 200 μL der FWB. Mit durchflusszytometrischen Analyse fortfahren.
-
CHO Zelle MHC Klasse I Färbung
Hinweis: ist es wichtig, ScMHC zu überprüfen-ich Zelle Oberfläche Ebenen auf Zellen, die auf jedes Experiment verwendeten Zelllinien Transgene Ausdruck verlieren können. Bei der Vorbereitung von 96-well-Platte für T-Zell-Stimulation eingerichtet 12-well-Platte für CHO Zelle Färbung, wie in Abschnitt 3.1.4 beschrieben.- Verwenden Sie einen Zelle Schaber, um CHO-Zellen von der Unterseite des Brunnens zu lösen. Diese Methode empfiehlt sich, Trypsinization, wie es das Risiko von Epitop Schäden durch proteolytische Spaltung verringert.
- Übertragen Sie 1 mL der Medien, die die CHO-Zellen mit dem FACS-Rohr. Spin-down bei 300-400 X g bei 4 ° C für 5 min. wieder aussetzen in 100 μl Anti-HLA-Antikörper in FWB verdünnt. Inkubieren Sie für 30 min bei 4 ° C auf dem Eis.
- Führen Sie diese Färbung mit Antikörper Anti-A2, insgesamt A2 Zelle Oberflächenexpression Stufen zu erkennen und TCR-ähnliche Antikörper spezifische für A2 im Komplex mit E183 Peptid32 Agonist pMHC erkennen-ich Zelle Oberflächenexpression Ebenen.
- Jede CHO-Probe 1 mL der FWB hinzu, spin-down bei 300-400 X g, 4 ° C, 5 min, und dann wieder die Probe in 0,3 mL FWB auszusetzen. Mit Flow-Zytometrie Analyse fortfahren.
Ergebnisse
Der sc MHC Klasse I hier verwendete Technologie ermöglicht präzise Kontrolle der Zelle Oberflächenexpression von MHC Klasse I mit bekannten, kovalent verknüpfte Peptide induzieren T-Zell-Aktivierung. Wir haben eine veränderte xenogene APC-System (Abb. 1A, B, C) generiert, die Präsentation von geringen Mengen Agonist pMHC in das Vorhandensein oder Fehlen von Co-Agonist pMHC (Abbildung 1, E) ermöglicht. Entscheidend ist, haben wir ein TCR-ähnliche Antikörper spezifisch für HLA-A2 präsentiert E183 Peptid verwendet, die Präsentation des Agonisten sc zeigen die E183-HLA-A2 nicht von Co Ausdruck Co-Agonist sc GAG-HLA-A2 (Abbildung 1E) geändert wird. Beachten ist jedoch, dass die E183-HLA-A2 spezifische TCR-ähnliche Antikörper einige Bindung an HLA-A2 präsentiert GAG Peptid (Abbildung 1E) zeigt. Ähnliche veränderter antigenpräsentierende Zellsysteme kann mit verschiedenen Peptiden oder MHC-Moleküle, um molekularen Anforderungen für TCR und/oder Coreceptor Wechselwirkungen im menschlichen T-Zellen mit verschiedenen Besonderheiten zu untersuchen konstruiert werden.
Wir haben diese veränderter APCs um einen E183-HLA-A2-spezifische menschliche CD8 + T-Zell-Klon zu stimulieren. Drei negative Kontrollen dienten: T-Zellen nur, untransfected T-REx CHO-Zellen und T-REx CHO-Zellen, die mit dem Ausdruck hoher Mengen an Co-Agonist sc GAG-HLA-A2 für potenzielle T testen Zelle Aktivierung durch alle Moleküle ausgedrückt auf T-REx CHO-Zellen (untransfected T-REx-CHO Zellen im Vergleich zu T-Zellen), und für die T-Zell-Aktivierung von sc-GAG-HLA-A2 (T-REx CHO-Zellen mit dem Ausdruck hohes Maß an sc-GAG-HLA-A2 im Vergleich zu untransfected T-REx CHO-Zellen). Untransfected T-REx CHO-Zellen oder T-REx CHO-Zellen, die mit dem Ausdruck sc-GAG-HLA-A2 nicht Aktivierung des E183-HLA-A2-spezifische CD8 + CTL-Klon, induzieren wie durch Quantifizierung der IFN-γ Produktion und Ausdruck der Degranulation Marker CD107a als Maß für die T-Zelle Zytotoxizität (Abb. 2AB). Ausdruck der hohen Agonist sc E183-HLA-A2, als Positivkontrolle, induzierte sehr effizient IFN-γ Produktion und Degranulation (Abbildung 2AB), was zeigt, dass das sc HLA-A2 Konstrukt durch eine spezifische TCR erkannt werden kann, aktivieren T-Zell-Effektor-Funktionen. Ausdruck eines niedrigen Niveaus des sc E183-HLA-A2 untere Ebenen der IFN-γ Produktion und Degranulation induziert, und dieser wurde verstärkt durch Anwesenheit von Co-Agonist sc GAG-HLA-A2 (Abb. 2AB). Beachten ist, dass sehr hohe Anteile an CD107a + T-Zellen selbst als Reaktion auf ein niedriges Niveau der Antigene pMHC (Abbildung 2 b), konsistent mit früheren Berichten über relativ geringe Anforderungen für die Höhe der Agonist pMHC für die Induktion von T-Zellen beobachtet wurden Zytotoxizität33. Die CD107a MFI, Angabe der Degranulation auf eine einzelne Zelle-Basis bietet einen besseren Dynamikumfang (Abb. 2 b). Die T-Zell-Aktivierung-Assay verwendet ermöglicht gleichzeitige Quantifizierung von zwei großen Effektor-Funktionen: Cytokine Produktion und Zytotoxizität, und sehr sensible auslesen mit guten Dynamikumfang bietet.
Wir verwendet die einzige Kette-Technologie um zu testen, ob TCR zu Co-Agonist pMHC Binding für Co-Agonist pMHC-abhängige Aktivierung Erweiterung erforderlich ist. Wir mutierte Valin an der Position 152 am Rande der HLA-A2 Peptid verbindlichen Nut (Abb. 3 b) zu Glutaminsäure V152E Mutant, erstellen, wie diese Mutation berichtet wurde, TCR Bindung an HLA-A234abzuschaffen. Wir testeten dann, wenn die V152E-Mutation TCR Bindung für den E183-HLA-A2 CTL-Klon verwendet, durch die Einführung dieser Mutation in Agonist sc E183-HLA-A2 und mit dem Ausdruck der mutierten Agonist sc Konstrukt in T-REx CHO-Zellen abschaffen kann. Wild-Typ, aber nicht V152E, sc E183-HLA-A2 induzierte Aktivierung des E183-HLA-A2-spezifische CTL Klons verwendet (Abb. 3A). Beachten ist, dass jeder TCR-Bindung-Mutation auf MHC-Klasse muss ich separat getestet werden, für jeden einzelnen TCR/T-Zellklon verwendet, da die Wirkung der Mutation die genauen molekularen Wechselwirkungen zwischen TCR und pMHC Komplex hängt, und diese zwischen unterscheiden werden verschiedenen TCR. Zum Beispiel wir testeten acht Mutationen, entweder bereits berichtet TCR-Bindung Mutationen oder Mutationen vorhergesagt, um TCR Bindung zu stören, ohne Aufhebung Peptid-Bindung in HLA-A2. Von diesen war V152E die einzige Mutation, die Aktivierung des E183-spezifischen T-Zell-Klons abgeschafft10verwendet. Wir dann die V152E-Mutation in der Co-Agonist sc GAG-HLA-A2 eingeführt und Co ausgedrückt WT oder V152E sc GAG-HLA-A2 mit niedrigem Agonist sc E183-HLA-A2. WT und V152E sc verbesserte GAG-HLA-A2, IFN-γ Produktion und Degranulation (Abbildung 3D), darauf hindeutet, dass TCR zu Co-Agonist pMHC Binding nicht für Co-Agonist pMHC-abhängige CD8 + T Zelle Aktivierung Erweiterung erforderlich ist. Einzelne Kette MHC Klasse I-Technologie, wie hier dargestellt, kann zur TCR und/oder Coreceptor Bindung an MHC Klasse ich mit bekannten Peptid untersuchen die molekularen Voraussetzungen für T-Zell-Antigen-Erkennung und Aktivierung zu ändern.
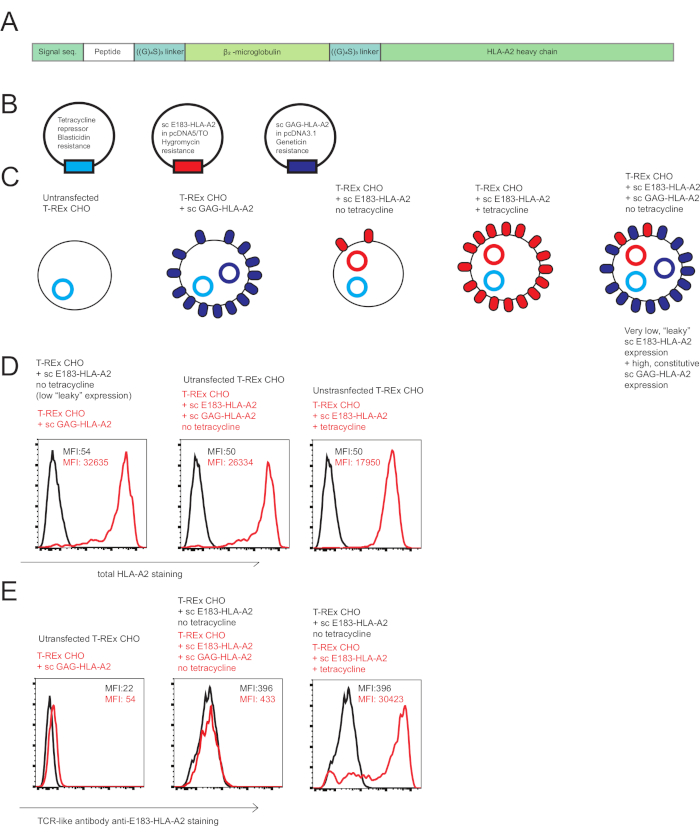
Abbildung 1: einzelne Kette HLA-A2 Konstrukte verwendet, um Co-Agonist in menschliche CD8 + T-Zell-Aktivierung zu untersuchen. (A) schematische Darstellung eines ScHLA-A2-Konstrukts, bestehend aus kovalent Signalsequenz aus verschmolzenen menschlichen β2 Mikroglobulin, Peptid der Wahl, flexible Glycin Serin Linker (GGGGSGGGGS GGGGS), menschliche β-2 -Mikroglobulin, flexibel Glycin Serin Linker und HLA-A2 schwere Kette. (B) schematische Darstellung der Plasmide, die zur Erzeugung von veränderter antigenpräsentierende Zellen untersuchen co-Agonismus in menschliche CD8 + T-Zell-Aktivierung: Tetracyclin Repressor, Agonist sc E183-HLA-A2 unter Kontrolle von Tetracyclin-induzierbaren Promoter nicht-stimulierende Co-Agonist sc GAG-HLA-A2 unter Kontrolle des konstitutiv aktiven Promotors. (C) schematische Darstellung der technischen antigenpräsentierende Zellen verwendet, um co-Agonismus untersuchen: T-REx CHO-Zellen (keine menschliche MHC-Ausdruck), T-REx CHO-Zellen, die mit dem Ausdruck konstitutiv hohe sc GAG-HLA-A2 (nicht-stimulierende Co-Agonist pMHC), Mit dem Ausdruck "undichte" niedrige sc E183-HLA-A2 in Ermangelung von Tetracyclin (low-Pegel von Agonist Peptid) T-REx CHO-Zellen, Zellen T-REx CHO-Zellen, die mit dem Ausdruck hoher sc E183-HLA-A2 in Anwesenheit von Tetracyclin (hohe Agonist Peptid), T-REx CHO niedrige Konzentrationen von sc E183-HLA-A2 und hohes Maß an sc GAG-HLA-A2 (low-Pegel von Agonist Peptid) und hohes Maß an Co-Agonist Peptid auszudrücken. (D) Zelle Oberfläche Färbung von veränderter antigenpräsentierende Zelllinien mit Anti-HLA-A2-Antikörper. Die Zahlen bezeichnen MFI Werte für MHC Fleck im Leben Zelle Tor. Von 5 unabhängigen Experimenten (E) Zelle Oberfläche Färbung von veränderter antigenpräsentierende Zelllinien TCR-ähnliche Antikörper spezifisch gegen HLA-A2 präsentiert E183 Peptid mit repräsentativen Daten. Die Zahlen bezeichnen MFI Werte für MHC Fleck im Leben Zelle Tor. 5 unabhängige Experimente repräsentativen Daten. Bitte klicken Sie hier für eine größere Version dieser Figur.
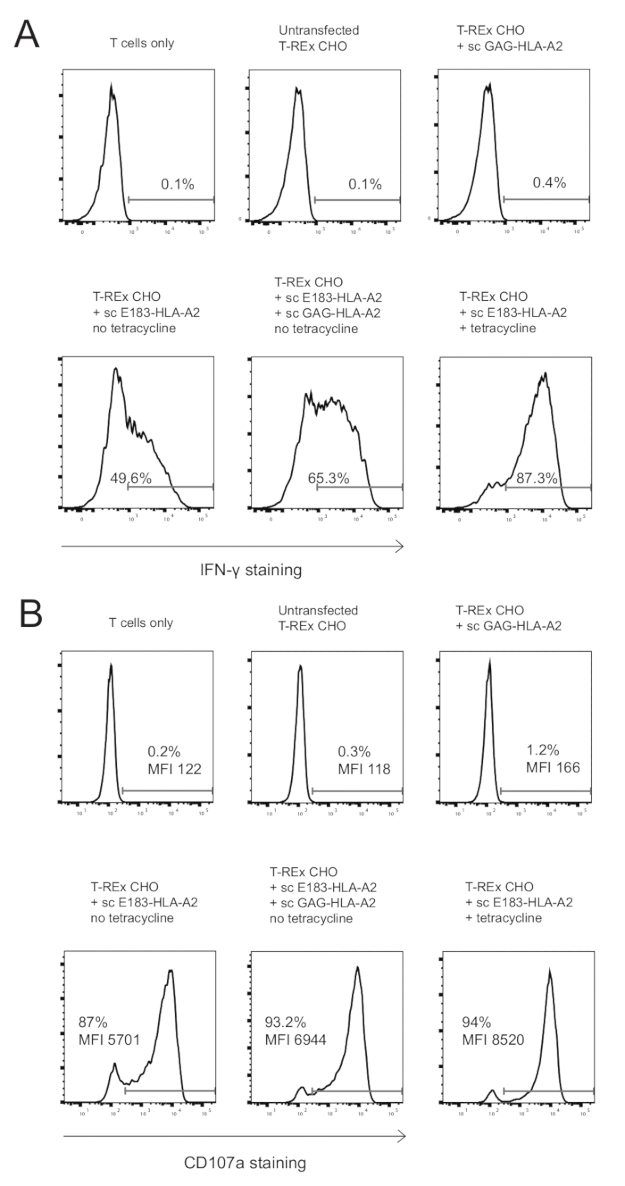
Abbildung 2: Anwesenheit von Co-Agonist pMHC verstärkte Produktion von Zytokinen und Degranulation der E183-HLA-A2-spezifische menschliche CD8 + CTL Klon. (A) intrazellulären IFN-γ antigenpräsentierende Zellen entwickelt Färbung der HLA-A2-spezifische menschliche CD8 + CTL-Klon nach 3 h Stimulation mit der angegebenen. Die Zahlen bezeichnen den Prozentsatz positiv für IFN-γ Färbung. 3 unabhängige Experimente repräsentativen Daten, jeweils mit technischen Triplicates durchgeführt. (B) Zelle Oberfläche CD107a Färbung der HLA-A2-spezifische menschliche CD8 + CTL-Klon nach 3 h Stimulation mit der angegebenen antigenpräsentierende Zellen entwickelt. Die Zahlen bezeichnen den Prozentsatz positiv auf die Färbung der CD107a oder der CD107a MFI für CD8 + T-Zell-Population. 3 unabhängige Experimente repräsentativen Daten, jeweils mit technischen Triplicates durchgeführt. Bitte klicken Sie hier für eine größere Version dieser Figur.
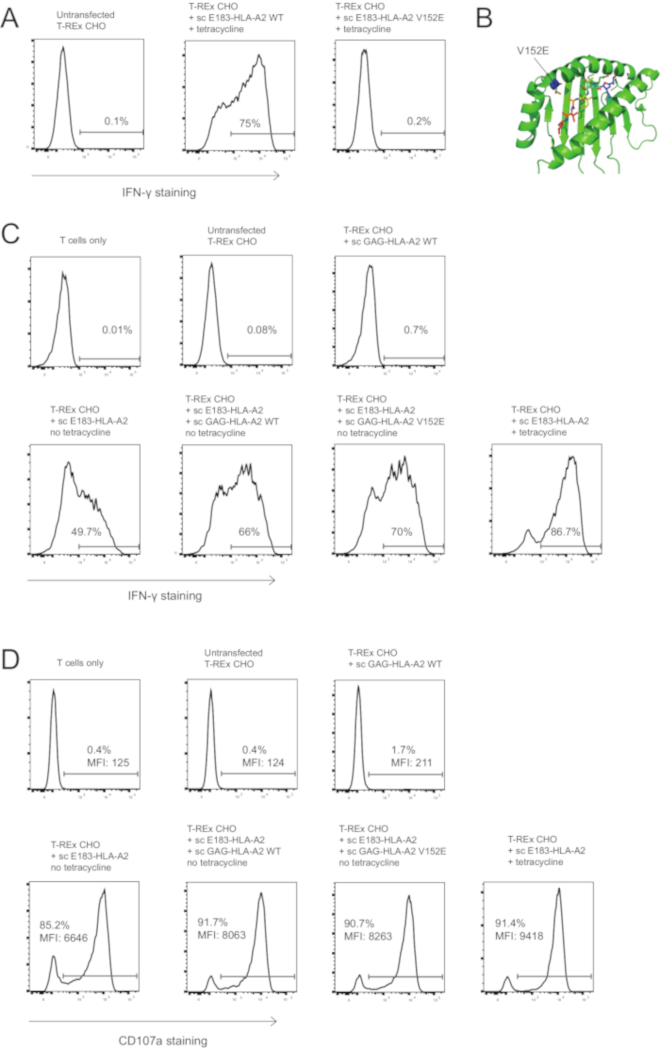
Abbildung 3: Co-Agonist – vermittelte T-Zell-Aktivierung-Erweiterung erfordert keine TCR Bindung an die Co-Agonist pMHC komplexe. (A) V152E Mutation im sc E183-HLA-A2 abschafft Aktivierung des E183-HLA-A2-spezifische menschliche CD8 + CTL Klons. T-REx CHO-Zellen, die mit dem Ausdruck hoher WT oder V152E mutierte sc E183-HLA-A2 (Tetracyclin Induktion) wurden verwendet, um E183-HLA-A2-spezifische menschliche CD8 + CTL-Klon für 3 h zu stimulieren. T-Zell-Aktivierung wurde quantifiziert mit intrazellulären IFN-γ Färbung. Die Zahlen bezeichnen den Prozentsatz positiv für IFN-γ Färbung. 3 unabhängige Experimente repräsentativen Daten, jeweils mit technischen Triplicates durchgeführt. (B) Lage der V152E-Mutation innerhalb der Peptid-Bindung-Nut der HLA-A2. (C) V152E Mutation auf sc GAG-HLA-A2 Co-Agonist pMHC Komplex ist agonist-abhängige Aktivierung Erweiterung nicht abschaffen. Intrazelluläre IFN-γ Färbung der HLA-A2-spezifische menschliche CD8 + CTL-Klon nach 4h Stimulation mit der angegebenen entwickelt antigenpräsentierende Zellen. Die Zahlen bezeichnen den Prozentsatz positiv für IFN-γ Färbung. 3 unabhängige Experimente repräsentativen Daten, jeweils mit technischen Triplicates durchgeführt. (D) V152E Mutation auf sc GAG-HLA-A2 Co-Agonist pMHC Komplex ist agonist-abhängige Aktivierung Erweiterung nicht abschaffen. Zelle Oberfläche CD107a Färbung der HLA-A2-spezifische menschliche CD8 + CTL-Klon, nach 3h Stimulation mit der angegebenen antigenpräsentierende Zellen entwickelt. Die Zahlen bezeichnen den Prozentsatz positiv auf die Färbung der CD107a oder der CD107a MFI für CD8 + T-Zell-Population. 3 unabhängige Experimente repräsentativen Daten, jeweils mit technischen Triplicates durchgeführt. Bitte klicken Sie hier für eine größere Version dieser Figur.
Diskussion
Die vorgestellte Protokoll sieht ein robustes Werkzeug für die Untersuchung der molekularen Wechselwirkungen während menschliche CD8 + T-Zell-Aktivierung. Ein entscheidender Schritt für die Untersuchung der co-Agonismus während menschliche T-Zell-Aktivierung ist die Kontrolle der Agonist pMHC Zelle Oberflächenexpression gleich Agonist pMHC Vortrag über die APCs mit oder ohne Co-Agonist pMHC Ausdruck sicherzustellen. In unserem experimentellen System ist dies erreicht, indem eine einzelne Zelle Klon mit dem Ausdruck geringer Mengen an Agonist pMHC, gefolgt von Supertransfection mit einem Co-Agonist pMHC Konstrukt und Agonist pMHC Quantifizierung mit TCR-ähnliche Antikörper10, 32. als Agonist sc pMHC Ausdruck im Laufe der Zeit ändern kann, ist es wichtig, Agonist pMHC Oberflächenexpression auf APCs verwendet in jedem Experiment mit TCR-ähnliche Antikörper zu quantifizieren. Wenn keine spezifischen TCR-ähnliche Antikörper verfügbar ist Agonist-ScMHC-ich als fluoreszierende Protein Fusion ausgedrückt werden kann, und seine Zelle Oberflächenexpression kann dann mit einer sensiblen Mikroskopie-Methode, wie Totalreflexion Fluoreszenzmikroskopie quantifiziert werden 35 , 36. Darüber hinaus Zelle Oberflächenexpression von Co-Agonist pMHC verringert sich im Laufe der Zeit durch Methylierung-abhängige und -unabhängig von CMV Promotor37, zum Schweigen zu bringen und sollte überwacht werden, Antikörper Färbung und Flow Cytometry-Analyse, mit wiederholte FACS-Sortierung bei Bedarf. Wir haben für bis zu 5 Wochen mit relativ begrenzten Verlust des sc pMHC Ausdrucks CHO-Zellen kultiviert. Wir empfehlen die CHO-Zellen bald nach der Auswahl/Sortierung zu gewährleisten einen zuverlässigen Bestand von Zellen mit bekannten sc MHC Ausdruck einfrieren.
Mehrere Schritte der vorgestellten Protokolle können geändert werden, abhängig von der Verfügbarkeit von Geräten, oder je nach der spezifischen Forschungsziele. Z. B. PBMC Verbreitung potenzieller kann gehemmt (Schritt 3.2.1) verwenden alternative Methoden, die keine Gamma (oder X) benötigen Brutapparat, wie Behandlung mit Mitomycin C38. Ein nicht-enzymatische Zelle Dissoziation Puffer mit Metall Chelatoren39 können statt Kratzen im Schritt 3.3.1 Zelle verwendet werden. Darüber hinaus kann die antigenpräsentierende System geändert werden, um machen es besser geeignet für menschliche CTL-Klone, die mit dem Ausdruck verschiedener TCR. CHO Zellen ausdrückliche Hamster MHC Klasse I Moleküle, und obwohl diese sind irrelevant für die CTL-Linie hier studiert (Abb. 2A und Abbildung 3A, wir beobachteten keine T-Zell-Antworten zu untransfected CHO-Zellen), besteht die Möglichkeit, dass andere menschlichen TCRs einige Xenoreactivity zeigen können. In, dass Fall Hamster MHC Klasse I Ausdruck durch Ausschlagen Hamster β2-Microglubulin reduziert werden kann, oder tippen Sie auf mit CRISPR/Cas9; oder eine menschliche APC-Linie eingesetzt werden, nachdem CRISPR/Cas9-vermittelten β2-Microglubulin oder TAP ausknocken.
Die hier vorgestellten Experimentiersystem ermöglicht präzise Kontrolle des TCR und CD8 Interaktionen mit MHC-Molekülen präsentiert vordefinierten Peptide. Zum Beispiel haben wir bereits gezeigt, dass Mutationen, die Abschaffung der CD8 Bindung40 bis Coagonist pMHC Coagonist-vermittelte Aktivierung Verbesserung in murinen und menschliche CD8 + T Zellen9,10, beseitigt während TCR Aufhebung Interaktion mit Co-Agonist pMHC hatte keinen Einfluss auf Coagonist-vermittelte Aktivierung Erweiterung10. Die Verwendung von einzelnen Kette MHC Konstrukte hat jedoch einige Einschränkungen. Zum Beispiel, es ist Zeit und Arbeit verzehrenden testen Sie mehrere Co-Agonist Peptid Sequenzen mit diesem experimentellen System, da dies mehrere Plasmide Codierung sc MHC mit verschiedenen Peptiden und anschließende Transfektionen und Zellsortierung-Generation beinhaltet. Früher wir murine TAP-defizienten Zelllinie RMA-S verwendet, um mehrere Co-Agonist Peptide in Maus T-Zell-Aktivierung8,9testen, aber dieser Ansatz war nicht erfolgreich mit dem TAP-defizienten menschlichen T2 Zelle Zeile10, am ehesten durch Darstellung der TAP-unabhängige Peptide41. Eine weitere Einschränkung unseres experimentellen Systems ist bietet eine schnelle Methode zum Ändern der Anzahl der Co-Agonist pMHC Moleküle zum Zwecke der Bestimmung der kritischen Höhe der Co-Agonist pMHC erforderlich, um T-Zell-Aktivierung auszulösen. Darüber hinaus erlaubt das Tetracyclin-induzierbaren System verwendet Titration der Agonist pMHC Menge der Ebene der einzelnen Zelle nicht durch Ändern der Tetracyclin-Konzentration, wie unterschiedliche Tetracyclin-Konzentration ändert sich den Anteil der positiven Zellen HLA-A2, eher als HLA-A2-Level pro Zelle. Ein alternativer Ansatz, den wir derzeit untersuchen soll mithilfe von unterstützten Lipid Bilayer42, früher co-Agonismus während der murinen CD4 + T Zelle Aktivierung4 untersuchen oder Perlen präsentiert Festbetrag von Agonist pMHC in der Vorhandensein von unterschiedliche Mengen an Co-Agonist pMHC. Bei Verwendung in Verbindung mit UV-spaltbaren Peptid-Technologie4,43sollte diese alternative experimentelle Systeme ermöglichen schnelle Prüfung von mehreren Co-Agonist Peptid Sequenzen sowie unterschiedliche Mengen an Co-Agonist pMHC .
Die sc-MHC-Technologie kann auch auf Untersuchung der co-Agonismus in menschlichen oder murine CD4-T-Zellen, anwendbar, wie einzelne Kette MHC Klasse II-Moleküle präsentieren vorbestimmt, dass Peptide erfolgreich auf Säugetier-Zelle Oberflächen44zum Ausdruck gebracht wurden. Darüber hinaus die Verwendung von sc MHC-Technologie zur Untersuchung der nicht-klassischen MHC-Moleküle wie HLA-E. erweiterbar SC HLA-E vor beschrieben worden, und seinen Ausdruck hat gezeigt, dass menschliche T-Zelle Aktivierung45hemmen. Ein weiterer nicht-klassischen MHC-Molekül des Interesses ist CD1, die Lipide statt Peptide46präsentiert. SC-Konstrukte bestehend aus CD1 schwere Kette und β2-Mikroglobulin wurde gezeigt, auf der Zelloberfläche ausgedrückt werden und relevante Lipid Liganden47zu binden. Einzelne Kette MHC-Technologie hat ein großes Potenzial als Recherche-Tool für die Untersuchung von molekularer Interaktionen während der T- und NK-Zell-Aktivierung.
Offenlegungen
Die Autoren erklären keinen Interessenkonflikt.
Danksagungen
Diese Forschung wurde Singapur Gesundheitsministeriums National Medical Research Council unter seiner CBRG/0064/2014 zu N.R.J.G., indem erstellen unter seiner R571-002-012-592, P.A.M., National Research Foundation Investigatorship R571-000-272-281, P.A.M unterstützt. ., und durch einen Singapur translationale Forschung (Stern) Investigator Award (NMRC/Sterne/013/2012), A.B. Wir sind dankbar, Dr. Paul Hutchinson und Herr Teo Guo Hui von NUS Immunologie Programm Flow Core Facility für die kompetente Zellsortierung. Wir sind dankbar für Elijah Chen für kritische Lektüre des Manuskripts.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Aim-V (serumfreie Medien) | Gibco | 12055091 | |
| Blasticidin | Gibco | R21001 | |
| Cytofix/Cytoperm (Fixierungs-/Permealibisierungskit) | BD | 554714 | |
| F12 | Gibco | 10565-018 | |
| Fötales Rinderserum (FBS) | HyClone | SH3007103 | |
| Geneticin | Gibco | ||
| GolgiPlug (Brefeldin A) | BD | 555029 | |
| Humanserum | Sigma-Aldrich | H4522 | |
| Hygromycin | Gibco | 10687010 | |
| Lektin aus Phaseolus vulgaris (PHA) | Sigma-Aldrich | L4144 | |
| Opti-MEM (Low Serum Media) | Bibco | 31985070 | |
| 10x PBS | Vivantis | PB0344 – 1L | |
| Penicillin/Streptomycin | HyClone | SV30010 | |
| Polyethylenimin (PEI) | Sigma-Aldrich | 408727 | |
| Rekombinantes humanes IL2 | R& D Systems | 202-IL | |
| Rekombinante humane IL7 | F& Technik D Systems | 207-IL | |
| Rekombinante humane IL15 | F& Technik D Systems | 247-ILB | |
| Tetracyclin | Sigma-Aldrich | T7660 | |
| T-REx CHO Zelllinie | Thermo Fisher Scientific | R71807 | |
| 10 x Trypsin/EDTA | Gibco | 15400054 | |
| Antikörper | |||
| CD3 | BD | 347347 | Klon SK7, RRID:AB_400287 |
| CD8α | BD | 563795 | Klon RPA-T8, RRID:AB_2722501 |
| CD107a | BD | 566261 | Klon H4A3, RRID:AB_2739639 |
| HLA-A2 | eBioscience | 17-9876-41 | Klon BB7.2, RRID:AB_11151522 |
| IFN-γ | eBioscience | 12-7319-41 | Klon 4S. B3, RRID:AB_1311250 |
Referenzen
- Gascoigne, N. R. Do T cells need endogenous peptides for activation? Nature Reviews. Immunology. 8 (11), 895-900 (2008).
- Gascoigne, N. R., Zal, T., Yachi, P. P., Hoerter, J. A. Co-receptors and recognition of self at the immunological synapse. Current Topics in Microbiology and Immunology. 340, 171-189 (2010).
- Krogsgaard, M., Juang, J., Davis, M. M. A role for "self" in T-cell activation. Seminars in Immunology. 19 (4), 236-244 (2007).
- Krogsgaard, M., et al. Agonist/endogenous peptide-MHC heterodimers drive T cell activation and sensitivity. Nature. 434 (7030), 238-243 (2005).
- Ebert, P. J., Jiang, S., Xie, J., Li, Q. J., Davis, M. M. An endogenous positively selecting peptide enhances mature T cell responses and becomes an autoantigen in the absence of microRNA miR-181a. Nature Immunology. 10 (11), 1162-1169 (2009).
- Lo, W. L., et al. An endogenous peptide positively selects and augments the activation and survival of peripheral CD4+ T cells. Nature Immunology. 10 (11), 1155-1161 (2009).
- Yachi, P. P., Ampudia, J., Gascoigne, N. R., Zal, T. Nonstimulatory peptides contribute to antigen-induced CD8-T cell receptor interaction at the immunological synapse. Nature Immunology. 6 (8), 785-792 (2005).
- Yachi, P. P., Lotz, C., Ampudia, J., Gascoigne, N. R. T cell activation enhancement by endogenous pMHC acts for both weak and strong agonists but varies with differentiation state. The Journal of Experimental Medicine. 204 (11), 2747-2757 (2007).
- Hoerter, J. A., et al. Coreceptor affinity for MHC defines peptide specificity requirements for TCR interaction with coagonist peptide-MHC. The Journal of Experimental Medicine. 210 (9), 1807-1821 (2013).
- Zhao, X., et al. Nonstimulatory peptide-MHC enhances human T-cell antigen-specific responses by amplifying proximal TCR signaling. Nature Communications. 9 (1), 2716(2018).
- Juang, J., et al. Peptide-MHC heterodimers show that thymic positive selection requires a more restricted set of self-peptides than negative selection. The Journal of Experimental Medicine. 207 (6), 1223-1234 (2010).
- Anikeeva, N., et al. Quantum dot/peptide-MHC biosensors reveal strong CD8-dependent cooperation between self and viral antigens that augment the T cell response. Proceedings of the National Academy of Sciences of the United States of America. 103 (45), 16846-16851 (2006).
- Anikeeva, N., Gakamsky, D., Scholler, J., Sykulev, Y. Evidence that the density of self peptide-MHC ligands regulates T-cell receptor signaling. PloS One. 7 (8), e41466(2012).
- Schuren, A. B., Costa, A. I., Wiertz, E. J. Recent advances in viral evasion of the MHC Class I processing pathway. Current Opinion in Immunology. 40, 43-50 (2016).
- Bubenik, J. MHC class I down regulation, tumour escape from immune surveillance and design of therapeutic strategies. Folia Biologica. 51 (1), 1-2 (2005).
- Apps, R., et al. Influence of HLA-C expression level on HIV control. Science. 340 (6128), New York, N.Y. 87-91 (2013).
- Cebecauer, M., et al. CD8+ cytotoxic T lymphocyte activation by soluble major histocompatibility complex-peptide dimers. The Journal of Biological Chemistry. 280 (25), 23820-23828 (2005).
- Sporri, R., Reis e Sousa, C. Self peptide/MHC class I complexes have a negligible effect on the response of some CD8+ T cells to foreign antigen. European Journal of Immunology. 32 (11), 3161-3170 (2002).
- Ljunggren, H. G., et al. Empty MHC class I molecules come out in the cold. Nature. 346 (6283), 476-480 (1990).
- Kotsiou, E., Brzostek, J., Gould, K. G. Properties and applications of single-chain major histocompatibility complex class I molecules. Antioxidants & Redox Signaling. 15 (3), 645-655 (2011).
- Hansen, T. H., Connolly, J. M., Gould, K. G., Fremont, D. H. Basic and translational applications of engineered MHC class I proteins. Trends in Immunology. 31 (10), 363-369 (2010).
- Yu, Y. Y., Netuschil, N., Lybarger, L., Connolly, J. M., Hansen, T. H. Cutting edge: single-chain trimers of MHC class I molecules form stable structures that potently stimulate antigen-specific T cells and B cells. Journal of Immunology. 168 (7), Baltimore, Md. 3145-3149 (2002).
- Mitaksov, V., et al. Structural engineering of pMHC reagents for T cell vaccines and diagnostics. Chemistry & Biology. 14 (8), 909-922 (2007).
- Truscott, S. M., et al. Disulfide bond engineering to trap peptides in the MHC class I binding groove. Journal of Immunology. 178 (10), Baltimore, Md. 6280-6289 (2007).
- Truscott, S. M., et al. Human major histocompatibility complex (MHC) class I molecules with disulfide traps secure disease-related antigenic peptides and exclude competitor peptides. The Journal of Biological Chemistry. 283 (12), 7480-7490 (2008).
- Bertoletti, A., Ferrari, C. Innate and adaptive immune responses in chronic hepatitis B virus infections: towards restoration of immune control of viral infection. Postgraduate Medical Journal. 89 (1051), 294-304 (2013).
- Boni, C., et al. Characterization of hepatitis B virus (HBV)-specific T-cell dysfunction in chronic HBV infection. Journal of Virology. 81 (8), 4215-4225 (2007).
- Gehring, A. J., et al. Engineering virus-specific T cells that target HBV infected hepatocytes and hepatocellular carcinoma cell lines. Journal of Hepatology. 55 (1), 103-110 (2011).
- Gehring, A. J., et al. The level of viral antigen presented by hepatocytes influences CD8 T-cell function. Journal of Virology. 81 (6), 2940-2949 (2007).
- Bertoni, R., et al. Human histocompatibility leukocyte antigen-binding supermotifs predict broadly cross-reactive cytotoxic T lymphocyte responses in patients with acute hepatitis. The Journal of Clinical Investigation. 100 (3), 503-513 (1997).
- Goulder, P. J., et al. Patterns of immunodominance in HIV-1-specific cytotoxic T lymphocyte responses in two human histocompatibility leukocyte antigens (HLA)-identical siblings with HLA-A*0201 are influenced by epitope mutation. The Journal of Experimental Medicine. 185 (8), 1423-1433 (1997).
- Sastry, K. S., et al. Targeting hepatitis B virus-infected cells with a T-cell receptor-like antibody. Journal of Virology. 85 (5), 1935-1942 (2011).
- vanden Berg, H. A., et al. Cellular-level versus receptor-level response threshold hierarchies in T-cell activation. Frontiers in Immunology. 4, 250(2013).
- Moots, R. J., Matsui, M., Pazmany, L., McMichael, A. J., Frelinger, J. A. A cluster of mutations in HLA-A2 alpha 2 helix abolishes peptide recognition by T cells. Immunogenetics. 34 (3), 141-148 (1991).
- Crites, T. J., Chen, L., Varma, R. A TIRF microscopy technique for real-time, simultaneous imaging of the TCR and its associated signaling proteins. Journal of Visualized Experiments. (61), (2012).
- Axmann, M., Schutz, G. J., Huppa, J. B. Single Molecule Fluorescence Microscopy on Planar Supported Bilayers. Journal of Visualized Experiments. (105), e53158(2015).
- Mariati,, Koh, E. Y., Yeo, J. H., Ho, S. C., Yang, Y. Toward stable gene expression in CHO cells. Bioengineered. 5 (5), 340-345 (2014).
- Matsushita, S., Tanaka, Y., Matsuoka, T., Nakashima, T. Clonal expansion of freshly isolated CD4T cells by randomized peptides and identification of peptide ligands using combinatorial peptide libraries. European Journal of Immunology. 31 (8), 2395-2402 (2001).
- Heng, B. C., Cowan, C. M., Basu, S. Comparison of enzymatic and non-enzymatic means of dissociating adherent monolayers of mesenchymal stem cells. Biological Procedures Online. 11, 161-169 (2009).
- Smith, K., et al. Sensory adaptation in naive peripheral CD4 T cells. The Journal of Experimental Medicine. 194 (9), 1253-1261 (2001).
- Wei, M. L., Cresswell, P. HLA-A2 molecules in an antigen-processing mutant cell contain signal sequence-derived peptides. Nature. 356 (6368), 443-446 (1992).
- Vardhana, S., Dustin, M. Supported Planar Bilayers for the Formation of Study of Immunological Synapses and Kinapse. Journal of Visualized Experiments. (19), (2008).
- Bakker, A. H., et al. Conditional MHC class I ligands and peptide exchange technology for the human MHC gene products HLA-A1, -A3, -A11, and -B7. Proceedings of the National Academy of Sciences of the United States of America. 105 (10), 3825-3830 (2008).
- Rhode, P. R., et al. Single-chain MHC class II molecules induce T cell activation and apoptosis. Journal of Immunology. 157 (11), Baltimore, Md. 4885-4891 (1996).
- Crew, M. D., Cannon, M. J., Phanavanh, B., Garcia-Borges, C. N. An HLA-E single chain trimer inhibits human NK cell reactivity towards porcine cells. Molecular Immunology. 42 (10), 1205-1214 (2005).
- Van Kaer, L., Wu, L., Joyce, S. Mechanisms and Consequences of Antigen Presentation by CD1. Trends in Immunology. 37 (11), 738-754 (2016).
- Im, J. S., et al. Direct measurement of antigen binding properties of CD1 proteins using fluorescent lipid probes. The Journal of Biological Chemistry. 279 (1), 299-310 (2004).
Nachdrucke und Genehmigungen
