Hier wird ein Protokoll zur Verwendung des CRISPR-Cas9-Systems zur Reduzierung der Produktion eines Proteins im erwachsenen Honigbienenhirn zur Erprobung der Antikörperspezifität vorgestellt.
Methodenartikel
Anti-RDL und Anti-mGlutR1-Rezeptoren Antikörpertests in Honeybee Brain Sections mit CRISPR-Cas9
* These authors contributed equally
In diesem Artikel
Zusammenfassung
Zusammenfassung
Cluster Regularly Interspaced Short Palindromic Repeats (CRISPR)/CRISPR-assoziiertes Protein 9 (Cas9) ist eine Gen-Editing-Technik, die in Studien zur Genfunktion weit verbreitet ist. Wir verwenden diese Methode in dieser Studie, um die Spezifität von Antikörpern zu überprüfen, die gegen das Insekt GABA A-Rezeptor-Subunit Resistenz gegen Dieldrin (RDL) und einen metabotropen Glutamatrezeptor mGlutR1 (mGluRA) entwickelt wurden. Die Antikörper wurden bei Kaninchen gegen die konjugierten Peptide speziell für Fruchtfliegen (Drosophila melanogaster) sowie gegen Honigbienen (Apis mellifera) erzeugt. Wir verwendeten diese Antikörper in Honigbienen-Gehirnabschnitten, um die Verteilung der Rezeptoren in Honigbienengehirnen zu untersuchen. Die Antikörper wurden gegen das Peptid gereinigt und mit Immunoblotting und der klassischen Methode der Preadsorption mit Peptidkonjugaten getestet, um zu zeigen, dass die Antikörper spezifisch für die entsprechenden Peptidkonjugate sind, gegen die sie angehoben wurden. Hier haben wir die CRISPR-Cas9-Technik entwickelt, um die Reduktion von Proteinzielen im Gehirn 48 h nach CRISPR-Cas9-Injektion mit Guide RNAs für den entsprechenden Rezeptor zu testen. Die CRISPR-Cas9-Methode kann auch bei Verhaltensanalysen bei erwachsenen Bienen eingesetzt werden, wenn ein oder mehrere Gene verändert werden müssen.
Einleitung
Das kürzlich entdeckte CRISPR/Cas9-System ist ein leistungsfähiges Werkzeug, das verwendet wurde, um genomische DNA in verschiedenen Modellsystemen und Organismen zu verändern. Es hat die biomedizinische Forschung und wichtige technologische Durchbrüche beschleunigt, indem es die Genommodifikation effizienter und robuster als frühere Methoden1gemacht hat. Das systemisch in S. pyogenes-Bakterien beheimatete System stützt sich auf eine Cas9-Endonuklease, deren Aktivität zu doppelsträngigen Brüchen (DSBs) in der DNA führt, und eine Guide-RNA (gRNA), die das Cas9-Protein an einen bestimmten, sequenzabhängigen Ort leitet2. Doppelsträngige Pausen, die von CRISPR/Cas9 erzeugt werden, können über nicht-homologe Endjoining (NHEJ) repariert werden, ein fehleranfälliger Prozess, der zu Frameshifts oder homologiedirekte Reparatur führen kann, wenn eine Spendervorlage vorhanden ist. Die gRNA selbst besteht aus einer zielspezifischen CRISPR RNA (crRNA) und einer universellen transaktivierenden crRNA (tracrRNA), die chemisch synthetisiert und mit gereinigtem Cas9-Nuklease als Ribonukleoproteinkomplex (RNP)2,3geliefert werden kann. Die fluoreszierende Kennzeichnung der gRNA- oder Cas9-Nuklease kann den Nachweis und die intrazelluläre Visualisierung molekularer Komponenten mittels fluoreszierender Mikroskopie4ermöglichen.
In unserer aktuellen Arbeit nutzen wir das CRISPR-Cas9-System, um den Proteingehalt in erwachsenen Honigbienengehirnen zu reduzieren. Wir untersuchten den metabotropen Glutamatrezeptor (mGluR) und Anti-MGlutR1-Rezeptor-Antikörper und die GABA-A-Rezeptor-Untereinheit RDL und Anti-RDL-Antikörper. Wir entwickelten eine einfache Methode, um die Menge an Protein im Gehirn der erwachsenen Honigbiene zu reduzieren und nutzten sie, um zusätzliche Tests der Antikörper zu fördern, die gegen die entsprechenden Proteine entwickelt wurden. Die Überwachung der Fluoreszenz von CRISPR-Cas9 ermöglichte es uns, die Bereiche und Zellen zu schätzen, die an der Reduktion des Proteins beteiligt sind.
Mit dieser Methode charakterisierten wir auch die Anti-MGlutR1-Antikörper, die bei Kaninchen gegen das konjugierte Peptid hergestellt wurden. Das Honigbienengenom kodiert einen hochkonservierten AmGluRA (nach NCBI-Nomenklatur mGlutR1 genannt) metabotropen Glutamatrezeptor5. Das Honigbienen-MGlutR1-Gen hat laut NCBI-Datenbank vier vorhergesagte Spleißvarianten. Es wurde berichtet, dass es im zentralen Nervensystem (ZNS) sowohl der Pupal- als auch der Erwachsenen-Bienenstadien ausgedrückt wird und an der Langzeitgedächtnisbildung beteiligt ist5. Antikörper, die gegen mGlutR1 entwickelt wurden, können ein wesentliches Werkzeug für das Studium des glutamatergen Systems im Lern- und Gedächtnisprozess bei Honigbienen sein.
In unseren Studien charakterisierten wir auch Anti-RDL-Antikörper, die bei Kaninchen entwickelt wurden, die mit konjugierten Peptiden aus der Untereinheit Apis mellifera RDL-Rezeptoren immunisiert wurden. Das Honigbienen-Rdl-Gen AmRdl (XM_006565102.3, NCBI-Datenbank) hat 14 vorhergesagte Spleißvarianten. Ein teilweise geklontes Fragment wurde in der NCBI-Datenbank AF094822.1 gemeldet. Die RDL-Rezeptorfunktion und ihre Physiologie ist gut bei Insekten6,7,8, einschließlich Honigbienen9,10,11untersucht. Antikörper gegen Anti-RDL entwickelt kann ein wesentliches Werkzeug für das Studium der GABAergen System in der Lern-und Gedächtnisprozess bei Honigbienen.
Eine frühere Studie über die Rolle von Oktopamin und Tyramin-Rezeptoren verwendet RNAi in das Gehirn mit einem anschließenden Test der Menge an Protein durch Western Blot12,13. RNAi hat jedoch einige erhebliche Einschränkungen. Es gibt nur ein kurzes Zeitfenster nach der RNAi-Injektion, in dem eine Reduktion des Proteins13auftritt. CRISPR-Cas9 wurde erst vor kurzem in Honigbienenembryonen verwendet, um Gene im gesamten Tier zu löschen oder zu modifizieren14,15,16. Wir berichteten über die Verwendung von CRISPR-Cas9, um die Menge des Proteins in der erwachsenen Honigbiene zu reduzieren. Wir entwickelten diesen Ansatz für Honigbienen wegen der Fähigkeit, es mit Verhaltensstudien des Lernens und Gedächtnisses unter kontrollierten Laborbedingungen 17 zu koppeln17.
In der vorliegenden Arbeit entwickelten wir Antikörper gegen zwei Rezeptoren und testeten sie an den erwachsenen Honigbienen-Gehirnabschnitten, nachdem das Protein durch CRISPR-Cas9-Injektion reduziert wurde. Gleichzeitig haben wir ein experimentelles Design etabliert, das die Anwendung der Methode für Verhaltensexperimente ermöglicht.
Protokoll
Das hier beschriebene Protokoll folgt den Tierpflegerichtlinien der Arizona State University.
1. Totale Proteinisolation aus den Gehirnen von Apis mellifera
HINWEIS: Verwenden Sie Apis mellifera New World Carniolan Foragers unbekannten Alters für dieses Experiment.
- Platzieren Sie einen Aluminium-Mesh-Bildschirm über dem Eingang zum Bienenstock, um Forager Bienen zu fangen17. Erfassen Sie jede Bee in einer Durchstechflasche mit einem kleinen Loch in jeder Kappe. Legen Sie die Fläschchen mit den Bienen in Eis, um ihre Körpertemperatur zu senken und sie immobilisieren. Lassen Sie die Bienen im Eis für nicht mehr als 3 min.
- Sichern Sie die immobilisierten Bienen in zuvor vorbereitete Metallhalter. Stellen Sie sicher, dass die Metallhalter so konstruiert sind, dass die Bee mit kleinen Stücken Klebeband gesichert werden kann, aber dennoch ihren Rückenbrust, Flügel und Kopf freigelegt haben.
VORSICHT: Stellen Sie sicher, dass die Bienen vollständig immobilisiert sind, bevor Sie versuchen, sie in den Haltern zu platzieren. - Füttern Sie die Bienen mit einer 1 M Saccharoselösung mit einer 5 ml Spritze, bis sie nicht mehr hungrig sind. Legen Sie die gesicherten Bienen in eine Schachtel mit einem nassen Papiertuch, um eine feuchte Umgebung zu gewährleisten.
- Sezieren Sie das Gehirn der Biene schnell, indem Sie den Kopf mit der Barraquer Iris Schere abschneiden (siehe Materialtabelle)und verwenden Sie die Schere, um den Kopf von vorne zu öffnen.
- Schneiden Sie das Gehirn von der Kopfkapsel ab, nehmen Sie das Gehirn mit #5 Zange, und legen Sie es in 100 L kalte (4-8 °C) Lysepuffer. Der Lysepuffer besteht aus 120 mM Tris-HCl, 2% Natriumdodecylsulfat (SDS), 5% Glycerin, 0,2 mM Dithiothreitol, 1% Triton X-100 und 1-5 g/ml der Proteaseinhibitoren PMSF (Phenylmethylsulfonylfluorid), Aprotinin, Benzamidin (pH 6,8) bei 4 °C. Homogenisieren Sie das Gehirn in der Lyselösung, indem Sie ca. 2 min in einem Stößel drehen.
- Zentrifugieren Sie die Probe bei 12.000 x g für 20 min. Aspirieren Sie 90 l des Überstandes und entsorgen Sie das Pellet.
- Nehmen Sie 1 L des Überstandes, um das Gesamtprotein mit einem Fluorimeter zu quantifizieren. Die ungefähre Konzentration des Gesamtproteins lag zwischen 2-3 mg/ml pro Bienen. Nehmen Sie 10 l des Überstandes und fügen Sie 10 l des Lysepuffers und 10 l eines 6x LaemmliPuffers 18hinzu. Drehen Sie kurz und kochen Sie für 3 min, dann abkühlen auf Eis. Drehen Sie für 1 min bei 10.000 x g, um alle Trümmer zu entfernen. Ein Zehntel eines Bienenhirns enthält etwa 25 ng des gesamten Proteins.
2. Westliche Blotting19
- 30 ml 10% Laufgel mit 12,15 ml reinstem destilliertem Wasser herstellen, 7,5 ml 1,5 M Tris-HCl (pH 8,8), 0,3 ml 10% SDS, 10 ml 30% Acrylamid-bis Acrylamidlösung, 0,15 ml 10% Ammoniumpersulfat (APS) und 20 l Tetramethylethylendiamin (TEMED ).
- Gießen Sie das Gel zwischen zwei Glasplatten, die durch Abstandshalter getrennt sind.
- Machen Sie ein 20 ml Stapelgel mit 12,1 ml reinst destilliertem Wasser, 5,0 ml 0,5 M Tris-HCl (pH 6,8), 0,2 ml 10 % SDS, 2,6 ml Acryl-Bisacrylamid, 0,1 ml 10 % APS und 20 ml TEMED.
- Wenn das laufende Gel erstarrt, gießen Sie ein Stapelgel. Fügen Sie vorsichtig den Kunststoffabscheider hinzu, um die Ladespur zu gießen, wodurch Blasen vermieden werden. Warten Sie 15-30 min, bis das Gel erstarrt ist.
- Beginnen Sie mit dem Laden des Gels mit 5 L Proteinstandards. Laden Sie 20 l des Lysatgemischs aus Schritt 1,8 pro Spur, was 1/15 eines Bienenhirns oder 16 ng des Gesamtenproteins pro Lane entspricht. Führen Sie die Proben für 3,5-4 h insgesamt bei 16 mA im Stapelgel und 32 mA im Laufgel aus. Stoppen Sie, wenn der Farbstoff das Gel verlässt.
- Übertragen Sie die Proteine auf Nitrocellulosemembranen im Transferpuffer (25 mM Tris-HCl, 192 mM Glycin, 15% Methanol) bei 0,45 mA für 1 h 30 min bei 4 °C.
- Um die Effizienz des Proteintransfers nach SDS-PAGE vor dem Immunoblotting zu bewerten, fügen Sie die Ponceau S Färbelösung hinzu (0,1 g Ponceau S und 5 ml Essigsäure zu Wasser zu einem Endvolumen von 100 ml hinzufügen). Bei 4 °C 1 min aufbewahren und schnell mit destilliertem Wasser abspülen.
- Beschriften Sie jede Spur mit einem Kugelschreiber, schneiden Sie die Membran mit zwei Bahnen mit Hirnhomogenat und eine Spur mit Proteinmarker und legen Sie sie jeweils in eine Western Blot Incubating Box. Waschen Sie 3x für je 5 min in Phosphatgepufferter Saline (PBS) mit 0,1% Tween 20 (PBS-Tw).
- Blockieren Sie die Membran mit 10% NGS (1 ml normales Ziegenserum bis 10 ml PBS-Tw) in einer Westlichen Blot-Inkubationsbox für 1 h. Machen Sie eine Anti-mGlutR1-Verdünnung (5 l Antikörper in 10 ml von 10% NGS). Anti-RDL1- und Anti-RDL2-Verdünnungen (5 l Antikörper in 10 ml zu je 10 % NGS). Ersetzen Sie die Sperrlösung in jeder Box durch die verdünnten Antikörper und lassen Sie sie über Nacht (16-24 h) bei 4 °C.
- Waschen Sie die Membran 3x für je 5 min in PBS-Tw. Inkubieren Sie die Membran mit Anti-Kaninchen IgG HRP-konjugierten Sekundärantikörpern bei 1:10.000 in 10% NGS PBS-Tw für 2 h bei Raumtemperatur (RT). Waschen Sie Membranen 3x in PBS-Tw, dann 1x in PBS.
- Erkennen Sie die Bänder mit westlichem chemilumineszierendem HRP-Substrat. Mischen Sie zwei Substrate 1:1 (v/v) bei RT, legen Sie alle Membranen in die gleiche Box und bedecken Sie sie mit der Substratmischung für 2 min (in einem dunklen Raum mit rotem Licht) bei RT. Fahren Sie mit der Proteindetektion mit einem Autoradiographiefilm mit mehreren Belichtungszeiten fort. Normalerweise wird ein Antikörper auf einer Membran getestet, die die gleiche Verdünnung des Gehirnhomogenats auf zwei oder drei Bahnen und eine Spur mit der Gewichtsmarkierung enthält.
3. Immunzytochemische Verfahren
- Um Honigbienengehirne für die Immunzytochemie zu sezieren, immobilisieren Sie die Honigbienen 30 s lang im Eis. Nachdem die Bienen immobilisiert sind, enthaupten Sie die Biene mit einer Schere und legen Sie den Kopf in eine Lösung von 4% Paraformaldehyd in PBS. Arbeiten Sie unter der Dunstabzugshaube.
VORSICHT: Der Körper muss sorgfältig entsorgt werden, da der Bauch nach der Enthauptung noch stechen kann. - Entfernen Sie vorsichtig, aber schnell die Antennen, zusammengesetzte Augen, und schneiden Sie um das obere Exoskelett mit Barraquer Iris Schere. Lassen Sie die Köpfe in der fixativen Lösung für 10 min sitzen. Entfernen Sie den Rest des Exoskeletts des Kopfes und schneiden Sie alle verbleibenden Luftröhre.
- Jedes Gehirn in ein 1,5 ml Mikrozentrifugenrohr geben, das mindestens 1 ml 4% Paraformaldehydlösung enthält, und über Nacht bei 4-8 °C lassen.
- Machen Sie eine 7,6%ige Agaroselösung, indem Sie 3,8 g Agarose und 50 ml destilliertes Wasser in einem Erlenmeyerkolben mischen. Mikrowelle die Lösung, bis die Agarose liquifies.
HINWEIS: Ein kleines Stück Tissuepapier kann in das Öffnen des Kolbens gelegt werden, um zu verhindern, dass die Agarose-Lösung während des Erhitzens überfließt. - Legen Sie die fixierten Honigbienengehirne (3-4 Gehirne) in eine 35 mm Petrischale und entfernen Sie die überschüssige Fixierung mit Tissuepapier. Gießen Sie die flüssige Agarose-Lösung über das Gehirn. Richten Sie die Gehirne in der Agarose so aus, dass die Antennenlappen nach oben gerichtet sind. Lassen Sie die Agarose abkühlen und erstarren.
- Nachdem sich die Agarose verfestigt hat, schneiden Sie Blöcke von Agarose aus, die jeweils ein Gehirn enthalten.
- Für Vibratome-Sektionen, bereiten Sie eine 24 Brunnenplatte mit jedem Brunnen enthält einen Korb mit einem hydrophoben Netz an der Unterseite. Füllen Sie jeden Brunnen mit 600 l PBS.
- Schneiden Sie jeden Block mit der Vibratome-Maschine in 70 m Querschnitte und legen Sie die Abschnitte in den Korb, der PBS enthält.
HINWEIS: Stellen Sie sicher, dass Abschnitte desselben Gehirns in demselben Korb platziert werden. - Waschen Sie die Hirnabschnitte 6x für je 10 min mit PBS-TX, um sicherzustellen, dass in den Abschnitten kein Fixativ übrig bleibt. Legen Sie die Multiwell-Platte auf einen Orbital-Shaker und waschen Sie das Gehirn bei 210 Rpm. Stellen Sie vor jeder Wäsche sicher, dass Sie die PBS-TX-Lösung durch eine frische PBS-TX-Lösung ersetzen. Block mit 1% normalem Eselserum während der letzten Wäsche.
- Um den Anti-mGlutR1-Primärantikörper zu testen, bereiten Sie eine 1:112 Verdünnung von Anti-mGlutR1-Antikörpern vor, indem Sie 9 ml PBS-TX zu 80 l Anti-mGlutR1-Antikörpern in einem 15 ml Zentrifugenrohr hinzufügen. Wirbeln Sie die Röhre kurz, um gründlich zu mischen. Die Arbeitsverdünnung von Antikörpern wurde in Vorversuchen bestimmt.
- Um den primären Anti-RDL-Antikörper zu testen, bereiten Sie eine 1:100 Verdünnung von Anti-RDL-Antikörpern vor, indem Sie 30 L Anti-RDL-Peptid 1, 30 l Anti-RDL-Peptid 2 und 6 ml PBS-TX in einem 15 ml Zentrifugenrohr hinzufügen. Wirbeln Sie die Röhre kurz, um gründlich zu mischen. Die Arbeitsverdünnung von Antikörpern wurde in Vorversuchen bestimmt.
- Fügen Sie jedem Brunnen in der Platte 800 l Antikörperlösung hinzu. Bedecken Sie die Multiwell-Platte und wickeln Sie sie in Aluminiumfolie, um einen Abbau durch Lichteinwirkung zu verhindern. Legen Sie die in Aluminiumfolie gewickelte Platte auf einen Orbital-Shaker und schütteln Sie sie bei 210 Umdrehungen für 2 Stunden. Dann verlassen Sie die Nacht bei RT, ohne zu zittern.
- Nachdem die Hirnabschnitte über Nacht verlassen wurden, waschen Sie mit PBS-TX für 10 min. Wiederholen Sie den Waschschritt 6x.
- Bereiten Sie die sekundären Antikörper (Anti-Kaninchen von Esel) durch eine 1:225 Verdünnung der sekundären Antikörper durch Zugabe von 40 l sekundäre Antikörper zu 9 ml PBS-TX.
- Fügen Sie jedem Brunnen 800 l der sekundären Antikörperverdünnung hinzu. Bedecken Sie die Platte und wickeln Sie sie in Aluminiumfolie. Legen Sie die in Aluminiumfolie eingewickelte Platte auf den Orbital-Shaker und schütteln Sie sie bei 210 Umdrehungen für 2 Stunden. Dann lassen Sie es über Nacht bei RT.
- Waschen Sie die Hirnabschnitte 3x für je 10 min mit PBS-TX und 3x mit regulärer PBS-Lösung.
- Für die Einbettung der Abschnitte in die Dias, bereiten Sie die Montagemedien/Glycerin-Einbettlösung modifiziert von Rodriguez et al.20. 5 g des Montagemediums in 20 ml PBS geben und 16 h mit einem Magnetrührer umrühren. 10 ml Glycerin hinzufügen und weitere 16 h mit einem Magnetrührer umrühren. Zentrifuge für 15 min bei 4.000 x g, nehmen Sie den flüssigen homogenen Überstand und aliquot in 1 ml Rohre. Bei -20 °C aufbewahren
- Betten Sie die Abschnitte auf die Dias mit einem Tropfen des Montagemediums ein, der in Schritt 3.17 vorbereitet wurde, um sicherzustellen, dass jede Folie Abschnitte aus einem Gehirn enthält.
- Preadsorptionskontrolle der Immunfärbung mit konjugierten Peptiden
- Für Anti-RDL und konjugierte Peptide die Arbeitsverdünnung von Anti-RDL-Antikörpern mit dem entsprechenden Peptidkonjugat über Nacht bei RT auf Shaker inkubieren: Zustand 1) 500 g Peptid konjugiert mit Keyhole Limpet Hemocyanin (KLH) über Glutaraldehyd; Zustand 2) ohne Konjugat.
- Zentrifugieren Sie jede Mischung für 10 min bei 10.000 x g und sammeln Sie den Überstand aus beiden Bedingungen (Schritt 3.19.1).
- Inkubieren Sie die seriellen Abschnitte des Honigbienenhirns mit jedem Überstand und verarbeiten Sie sie mit den oben beschriebenen sekundären Antikörpern. Serielle Abschnitte sind Abschnitte, die einander während der Vibratome-Sektionsverfahren folgen, so dass derselbe Teil des Gehirns positiven und negativen Kontrollen ausgesetzt wird.
- Für Anti-mGlutR1 und konjugiertes Peptid die Arbeitsverdünnung von Anti-MGlutR1-Antikörpern bei RT mit dem konjugierten KLH-Peptid, das das 10-4 M Peptid (Bedingung 1) und ohne Konjugat enthält (Bedingung 2), inkubieren.
- Zentrifugieren Sie jede Mischung für 10 min bei 10.000 x g und sammeln Sie den Überstand von beiden Kontrollen.
- Inkubieren Sie die seriellen Abschnitte des Honigbienenhirns mit Überstand aus beiden Bedingungen und Prozess mit den sekundären Antikörpern (Schritte 3.14-3.15).
- Einbetten von Abschnitten aus beiden Bedingungen mithilfe von Einbettmedien auf die Folie (Schritt 3.17).
4. Test der RDL- und mGlutR1-Proteinexpression durch Immunzytochemie (Abschnitt 3) im Honeybee Brain nach Injektion des entsprechenden CRISPR-Cas9-Systems
- Entwerfen Sie die Leitfäden mit einem Online-DESIGNtool VON CRISPR-Cas921 unter Verwendung der genomischen DNA-Sequenzen von AmRdl (XM_006565102.3) und Sequenzen von mGlutR1 (XM_006566244.3) (Tabelle 1). Bestellen Sie als Cas9 crRNA und Cas-9 tracrRNA mit dem Fluoreszenzfarbstoff ATTO550 am 5' Ende. Bestellen Sie die Cas9 Nuclease V3 (siehe Materialtabelle).
- Bereiten Sie die Komponenten für das CRISPR-Cas 9-System vor, indem Sie einen 100-M-Bestand an jeder Führungs-crRNA und tracrRNA mit nukleasefreiem Wasser herstellen. Aliquot und lagern bei -20 °C. Bereiten Sie die Arbeitskonzentration der Cas-9-Lösung vor, indem Sie 2,5 l Cas 9 Nuklease V3 (10 mg/ml) bis 47,5 l Nukleotid-freier Puffer hinzufügen, um eine Endkonzentration von 0,5 g/l zu erhalten. Machen Sie gRNA und RNP zur Injektion.
- Bereiten Sie die gRNA-Komplexe Bildung für jede Führungs-RNA separat vor (guideRNA:tracrRNAATTO550)
- Kennzeichnen Sie ein Reagenzglas mit dem Namen der gRNA, fügen Sie 92 L nukleotidfreien Puffer, 4 l von 100 'M CRISPR-Cas9 tracrRNA- 5'ATTO550 und 4 l der Guide crRNA-Lösung hinzu. Mischen Sie sanft und drehen.
HINWEIS: Beispiel für die Kennzeichnung von gRNA-Röhrchen für RDL: GRDL1, GRDL2, GRDL3 (entsprechend RDL-Führungen RNA in Tabelle 1). Beispiel für die Kennzeichnung von gRNA-Röhrchen für mGlutR1: GMGL1, GMGL2, GMGL3 (Tabelle 1). - Erhitzen Sie die Lösung auf 95 °C für 5 min, um gRNA zu erzeugen. Kühlen Sie die Mischung bei RT für 10 min.
- Kennzeichnen Sie ein Reagenzglas mit dem Namen der gRNA, fügen Sie 92 L nukleotidfreien Puffer, 4 l von 100 'M CRISPR-Cas9 tracrRNA- 5'ATTO550 und 4 l der Guide crRNA-Lösung hinzu. Mischen Sie sanft und drehen.
- Bereiten Sie DIE RNP-Komplexbildung (gRNA: S.p Cas9Nuclease), Liefermischungen und Kontrolle vor.
- Kennzeichnen Sie ein Reagenzglas mit dem Namen RNP, fügen Sie 6 l gRNA-Lösung und 6 l von 0,5 g/ L S.p Cas9 Nuklease V3 hinzu. Mischen Sie die Lösungen vorsichtig und inkubieren Sie die Lösungen bei 37 °C für 10 min vor der Injektion.
HINWEIS: Beispiel für RNP-Rohretiketten: RRDL1, RRDL2, RRDL3. - Machen Sie einen RNPRDLmix. Um die endgültige Mischung für Injektionen vorzubereiten, fügen Sie 4 l jedes RNP aus RDL zusammen. RNP/RDL-Mischung = 4 L RRDL1 + 4 L RRDL + 4 L RRDL3.
- Erstellen Sie einen RNPmGlutR1mix. Mischen Sie 4 l von jedem RNP aus mGlutR1 zusammen, um das endgültige Gemisch für Injektionen vorzubereiten (RNPmGlutR1mix) = 4 l RMG1 + 4 l RMG2 + 4 l RMG3.
HINWEIS: Beispiel für RNP-Rohretiketten: RMG1, RMG2, RMG3. - Machen Sie eine Kontroll-NoguideRNA-Lösung, indem Sie 4 l tracrRNA, 92 l Puffer und 4 l Wasser anstelle von guideRNA mischen (siehe Abschnitt 4.3). Mischen Sie 6 l dieser noguideRNA-Lösung und 6 l von 0,5 g/l Cas9 Nuklease V3 (Schritt 4.4.1), um die Steuerinjektionslösung herzustellen.
- Kennzeichnen Sie ein Reagenzglas mit dem Namen RNP, fügen Sie 6 l gRNA-Lösung und 6 l von 0,5 g/ L S.p Cas9 Nuklease V3 hinzu. Mischen Sie die Lösungen vorsichtig und inkubieren Sie die Lösungen bei 37 °C für 10 min vor der Injektion.
5. Injektionsverfahren
- Immobilisieren Sie jede Inde wie in Schritt 1.3 beschrieben und füttern Sie sie wie in Schritt 1.4. Als nächstes bereiten Sie zwei Sätze von zwei Holzkisten vor, um die Bienen nach der Injektion freizulassen: eine weiße Box (experimenteller Zustand) und eine Black box (Steuerung). Jede Schachtel sollte einen kleinen Kamm und eine Füttern Petrischale enthalten. Eine Seite jeder Box ist aus Glas, um eine Beobachtung zu ermöglichen.
- Machen Sie die Fütterung Petri-Gerichte. Nehmen Sie die Abdeckung einer 35 mm Petrischale, legen Sie Wachs in die Oberfläche und legen Sie den unteren Teil der Petrischale auf das Wachs. Befesten Sie die Platte in der Box.
- Mit einer 5 ml Spritze 1M Saccharoselösung zwischen der Abdeckung und dem unteren Teil der Schale injizieren. Bienen können ihre Proboscises schnell zwischen die beiden Platten legen und bleiben für eine 48-Stunden-Inkubationszeit trocken. Legen Sie eine Schale in jede Schachtel.
- Um das Mikroinjektionssystem vorzubereiten, füllen Sie die Kapillaren mit Mineralöl ohne Luftblasen. Legen Sie die Kapillaren in den Injektorhalter des Mikroinjektionssystems. Um die Kapillare mit der gewünschten Injektionslösung zu beladen, legen Sie einen hydrophoben Film auf eine flache Oberfläche und pipette die Lösung darauf. Das Öl aus den Kapillaren injizieren und die Mischung durch die entsprechende RNP-Mischung ersetzen.
- Mit dem Mikroinjektionssystem 345 nL RNP-Mischlösung direkt in den Median-Ocelli jeder Bee injizieren.
- Für die RDL-CRISPR-Cas9-Injektion acht Bienen mit dem in Schritt 4.4.2 beschriebenen RNPRDLmix injizieren. Füttern Sie sie 1M Saccharose nach der Injektion. Lassen Sie sie in der weißen (experimentellen) Box mit dem kleinen Kamm und Fütterung Petrischale für 48 h. Verwenden Sie weitere acht Bienen als Kontrollen ohne Injektionen, füttern Sie sie, und lassen Sie sie in der schwarzen (Steuer) Box.
- Für mGlutR1 CRISPR-Cas9 neun Bienen mit dem RNPmGlutR1mix, wie in Schritt 4.4.3 beschrieben, injizieren. Zur Kontrollinjektion acht Bienen mit RNA-Gemisch ohne Führung (RNAmix_noguide) hergestellt, wie in Schritt 4.4.4 beschrieben. Füttern Sie sie 1M Saccharose nach der Injektion. Lassen Sie die Bienen von ihren Haltern in die weiße Box (experimenteller Zustand) oder die Black box (Steuerung), wie in Abschnitt 5.1 beschrieben, frei.
- Legen Sie die Boxen in einen Polystyrolbehälter mit nassem Papier innen für Feuchtigkeit. Lassen Sie die Bienen für 48 h und beobachten Sie 2x pro Tag, um sicherzustellen, dass sie genug Nahrung und gute Feuchtigkeit haben.
- Sezieren Sie das Gehirn jeder Eisart nach 48 h (Schritt 3.1) und Prozess für die Immunzytochemie, wie in Abschnitt 3 beschrieben. Für Anti-mGlutR1-Immunfärbungen verwenden Sie Schritt 3.11 und für Anti-RDL-Immunfärbungen Schritt 3.12.
- Führen Sie konfokale Bildgebung durch, um den Fluoreszenzspiegel in den immungefärbten Gehirnabschnitten zu bewerten.
- Um die Reduktion von Protein in immunmarkierten Gehirnen zu bewerten, verwenden Sie konfokale Bildsammlung auf dem gleichen Niveau der Verstärkung für die Kontrolle und injizierte Gehirne.
6. qPCR-basierter Drop-off-Test zur Bewertung der modifizierten genomischen RDL DNA 48 H nach CRISPR Cas9 RNPRDLmix Injektion
- Entwerfen Sie die Primer, die Kontrollsonde und die Drop-off-Sonde, um die durch die CRISPR-Cas9-Injektion modifizierte DNA-Menge zu bewerten. Jede Grundierung ist so konzipiert, dass sie mindestens eine CRISPR-Cas 9-Führung flankiert und die Amplicongröße 132 bp beträgt. Die verwendeten Primer und Sonden sind unten angegeben:
RDL1_For: CTCGGAGTGACCACCGT
RDL1_Rev: CAACGAGGCGAACACCAT
RDL1_control_probe: /5HEX/CGA+C+G+TTT+A+C+CT/3IABkFQ/
RDL1_Drop-off_probe: /56-FAM/CCTA+C+G+T+CA+A+GT/3IABkFQ/- Stellen Sie sicher, dass die Primer eindeutigen Sequenzen entsprechen, die für den Bereich spezifisch sind. Stellen Sie sicher, dass die Drop-off-Sonde für den Bereich ausgelegt ist, der sich mit der RDL-CRISPR-Cas9-Anleitung überlappt.
- Um zu testen, ob es eine Modifikation der gDNA im Führungsbereich gibt, injizieren Sie 12 Bienen in das Ocelli mit der in Schritt 5.3.1 beschriebenen RNP_RDL Mischung und verwenden Sie acht nicht injizierte Bienen als Steuerungen.
- Sezieren Sie die Bienengehirne ohne die optischen Lappen 48 h nach den Injektionen und extrahieren Sie die gDNA jedes injizierten und Steuern von Bienenhirnen (ohne optische Lappen) mit dem Kit nach dem Herstellerprotokoll (siehe Tabelle der Materialien).
- Bewerten Sie die Menge, Qualität und Reinheit der extrahierten gDNA mit einem Spektralphotometer.
- Quantifizieren Sie die relative Expression modifizierter gDNA von AmRDL mit dem qPCR-basierten Drop-off-Protokoll und dem Echtzeit-PCR-Cycler.
- Setzen Sie die Oligos auf 100 m aus, verdünnen Sie die Primer auf 10 M und die Sonden auf 5 m.
- Richten Sie die PCR-Reaktion in der 96-Well-Platte ein, wie hier gezeigt, für eine Probe gDNA (3 Wiederholungen): 10 l Master-Mix (siehe Tabelle der Materialien),1 l Vorwärtsprimer, 1 l Rückwärtsprimer, 1 l Kontrollsonde, 1 l Drop-off-Sonde, 2 l gDNA (50 ng), 4 l nukleasefreies Wasser, um das Endreaktionsvolumen auf 20 l zu bringen.
HINWEIS: Kontrollen sind die Lösung anstelle der Proben und Wasser anstelle der Sonden. - Richten Sie das Zyklusprogramm wie folgt für einen Echtzeit-PCR-Zyklus ein: 95 °C für 3 min, gefolgt von 40 Zyklen von 95 °C für 15 s, 60 °C für 1 min.
- Bewerten Sie die relative Genmodifikation mit der2-Ct-Methode, bei der
 Und

7. Relative Quantifizierung von RDL RNA 48 H nach RNPRDLmix Injektion
- Um zu testen, ob eine Reduktion der RDL mRNA vorliegt, injizieren Sie 20 Bienen in den Ocelli mit RNP_RDL Mischung, wie in Schritt 5.3.1 beschrieben, und verwenden Sie 12 nicht injizierte Bienen als Steuerungen. Sezieren Sie die Bienengehirne (ohne optische Lappen) 48 h nach den Injektionen, extrahieren Sie die gesamte mRNA von jeder injizierten Eisart und trennen Sie mit dem Herstellerprotokoll (siehe Tabelle der Materialien).
- Entfernen Sie alle DNA-Rückstände, die in der Probe verbleiben, mit einem DNA-freien Kit (siehe Tabelle der Materialien).
- Bewerten Sie die Qualität und Reinheit der extrahierten RNA mit einem Spektralphotometer.
- Quantifizieren Sie den Ausdruck von AmRDL mit einem handelsüblichen fluoreszierenden grünen RT-PCR-Kit(Table of Materials) auf einem Echtzeit-PCR-Cycler unter Verwendung des Herstellerprotokolls für eine 384-Well-Platte.
HINWEIS: In diesem Experiment wurden zuvor veröffentlichte Primer verwendet. Für AmRDL (AmRDL_F GGTCGATGGGCTACTACCTG; AmRDL_R TCGATCGACTTGACGTAGGA)22 und Actin-Primer als Referenzgen [AmActin_F TGCCAACACTGTCCTTTCTG; AmActin_R GAATTGACCCACCAATCCA]23. Die relative Genexpression wurde mit der Methode 2-Ct (Schritt 6.6) berechnet.
8. qPCR-basierter Drop-off-Assay zur Bewertung der modifizierten Genom-DNA 48 H nach RNPmGlutR1mix-Injektion
- Entwerfen Sie die Primer,-, Kontroll- und Drop-off-Sonden, um die durch DIE CRISPR-Cas9-Injektion modifizierte DNA-Menge zu bewerten. Entwerfen Sie die Primer so, dass sie mindestens eine CRISPR-Cas 9-Führung flankieren und die Amplicongröße 96 bp beträgt.
mGlutR1_For: GGTGAAACGAACGACGGA
AmGlurR1_Rev: GGAGAGAGGGAGCGAGAA
AmGlurR1_control_probe: /5HEX/CGAGG+G+AAA+CGA+GT/3IABkFQ/
AmGlurR1_Drop-off_probe: /56-FAM/CGA+C+A+C+CG+TC/3IABkFQ/
HINWEIS: Stellen Sie sicher, dass Primer eindeutigen Sequenzen entsprechen, die für den Bereich spezifisch sind, der geändert werden sollte. Die Drop-off-Sonde ist für den Bereich konzipiert, der sich mit der CRISPR-Cas9-Führung überlappt hat. - Um zu testen, ob es eine Modifikation der gDNA im Führungsbereich gibt, injizieren Sie 12 Bienen im Ocelli mit RNP_ GlutR1-Mischung, wie in Schritt 5.3.1 beschrieben, und verwenden Sie acht nicht injizierte Bienen als Steuerungen.
- Sezieren Sie die Bienenhirne (ohne optische Lappen) 48 h nach den Injektionen und extrahieren Sie die gDNA aus jedem injizierten und Steuern des Bienenhirns (ohne optische Lappen) mit dem Herstellerprotokoll (siehe Tabelle der Materialien).
- Bewerten Sie die Menge, Qualität und Reinheit der extrahierten gDNA mit einem Spektralphotometer.
- Quantifizieren Sie die relative Modifikation von gDNA AmGlutR1 mit qPCR Drop-off-Protokoll und für Echtzeit-PCR-Cycler, wie in Schritt 6.5 beschrieben.
- Bewerten Sie die relative Genmodifikation mit der2-Ct-Methode, bei der
 Und

9. Quantifizierung von mGlutR1 RNA 48 h nach RNPmGlutR1mix Injektion
- Um zu testen, ob es eine Reduktion der mGlutR1 RNA mRNA gibt, injizieren Sie sechs Bienen in das Ocelli mit der RNP_RDL Mischung, wie in Schritt 5.3.2 beschrieben, und verwenden Sie sechs nicht injizierte Bienen als Steuerungen. Sezieren Sie die Bienenhirne (ohne optische Lappen) 48 h nach den Injektionen, extrahieren Sie die gesamte mRNA aus jeder injizierten Eisform und trennen Sie mit dem Herstellerprotokoll zur RNA-Isolierung (siehe Tabelle der Materialien).
- Entfernen Sie alle DNA-Rückstände, die in der Probe verbleiben, mit einem DNA-freien Kit (siehe Tabelle der Materialien).
- Bewerten Sie die Qualität und Reinheit der extrahierten RNA mit einem Spektralphotometer.
- Quantifizieren Sie den Ausdruck von mGlutR1 mit einem SYBR Green RT-PCR Kit (siehe Materialtabelle) auf einem Echtzeit-PCR-Cycler mit dem für das 384-Well-Kit bereitgestellten Protokoll. Verwenden Sie die folgenden Primer für mGlutR1 (mGlut_F CCTCCTCAACCTCTCTCTCTCTCTCTCTCTATA; mGlut_R TGCCGTGTGTTCCGATTT) und Actin Primer als Referenzgen [AmActin_F TGCCAACACTGTCCTTTCTG; AmActin_R GAATTGACCCACCAATCCA]. Berechnen Sie die relative Genexpression mit der Methode 2-Ct (Schritt 8.6).
Ergebnisse
Anti-RDL-Antikörpertests
Die Antikörper wurden gegen die RDL-Peptidkonjugate hergestellt, wie in Abbildung 1Adargestellt. Der erste Schritt bei der Charakterisierung der Anti-RDL-Antikörper besteht darin, das Homogenat des aus dem Bienenhirn extrahierten Proteins mit einem Western-Blot mit Anti-RDL-Antikörpern und einem HRP-markierten Ziegen-Anti-Kaninchen-IgG-Sekundärantikörper zu überprüfen (Abbildung 1A, Einfügen). Beide Anti-RDL-Antikörper erkannten das Band bei 50-60 kD (Pfeil), was dem geschätzten Gewicht der Isoformproteine der RDL-Untereinheit entspricht. Um zu zeigen, dass Anti-RDL-Antikörper das Peptid in den Gehirnscheiben erkannten, verwendeten wir eine Preadsorptionskontrolle (Abbildung 1B,C). Wenn Antikörper mit konjugierten Peptiden vorinkubiert wurden, fehlte die Färbung auf dem Abschnitt. Dies zeigte, dass die Anti-RDL-Antikörper das konjugierte Peptid erkannten, gegen das sie erhoben wurden. Um zu zeigen, dass die Anti-RDL-Antikörper das Protein im festen Hirngewebe erkennen, haben wir CRISPR-Cas9 verwendet, um das RDL-Gen auszuschalten, das das RDL-Protein in den Zellen produziert. Abbildung 1D1-3zeigt kontrollfrontale Bienenhirnabschnitte, die mit Anti-RDL-Antikörpern beschriftet wurden. Diese Bee wurde nicht mit RDL-CRISPR-Cas9 RNP injiziert. In Abbildung 1D1bezeichnet Anti-RDL Neuropils im frontalen Bereich des Bienenhirns. Derselbe frontale Abschnitt in Abbildung 1D2 zeigt das Fehlen von Fluoreszenz von ATTO550, da der RDL-CRISPR-Cas9-Komplex nicht injiziert wurde.
Abbildung 1E1-E3 zeigt einen Hirnschnitt aus einer Mitspritze mit RDL-CRISPR-Cas 9, die dann mit der gleichen Menge an Antikörpern wie das Kontrollhirn in Abbildung 1D1-D3verarbeitet wurde. Die Anti-RDL-Färbung wurde im gesamten Gehirn 48 h nach der Injektion signifikant reduziert, und die Verteilung der ATTO550 Färbung im Gehirn (Abbildung 1E2) zeigt den Erfolg der RDL-CRISPR-Cas 9-Injektionen im Bienenmedian-Ocelli. Die mehrfach verstreuten Zellen des Gehirns zeigen ATTO550. Die erfolgreiche Injektion von RDL-CRISPR-Cas 9 reduzierte die Proteinexpression im Vergleich zur Kontrolle (Abbildung 1E1-3). Von acht immunbefleckten Bienenhirnen hatte nur ein Gehirn eine hohe Verteilung des RDL-CRISPR-Cas9 in den Zellen von Pilzkörper, Protocerebrum und Antennenlappen, während andere Gehirne Zellfärbung mit ATTO550 im Pilzkörper-Calyx hatten, zentraler Komplex, aber nicht Antennenlappen. Es ist wichtig zu beachten, dass bei diesen Bienen die Reduktion der Anti-RDL-Immunfärbung nicht so dramatisch war wie im Gehirn, die in Abbildung 1E1gezeigt wurde.
Als nächstes haben wir einen qPCR-Drop-off-Test durchgeführt, bei dem die Drop-off-Sonde so konzipiert wurde, dass sie dem Bereich eines der RDL gRNAs entspricht. In diesen Experimenten entsprach die relative Reduktion der Fluoreszenz in den mit RDL-CRISPR-Cas 9 injizierten Bienenhirnen der Anzahl der modifizierten gDNA in den Proben. In unseren Tests betrug der Bereich, der diesem Leitfaden in gDNA bei 12 mit RDL-CRISPR-Cas9 injizierten Bienen entsprach, 64 % (mittelwert 30 % SD) im Vergleich zu gDNA bei nicht injizierten Bienen(Abbildung 3A).
Um den Gehalt der RDL-RNA in den Bienen 48 h nach der Injektion zu schätzen, führten wir qRT-PCR in einer separaten Bienengruppe durch (Abbildung 3B). Wir verglichen den Gehalt an RDL-RNA von RDL-CRISPR-Cas 9 injizierten Bienen (n = 19) mit dem RNA-Niveau bei Bienen, die nicht injiziert wurden (n = 12). In diesen Experimenten betrug die relative Reduktion der mRNA RDL 59 % (mittelwert 15 % SE) im Vergleich zum RNA-Niveau bei nicht injizierten Bienen. Bei der Untersuchung des Niveaus der RDL-RNA in jeder Bienen einzeln zeigten nur 13 von 19 Bienen eine signifikante Reduktion der RNA. Diese Daten deuten darauf hin, dass die Injektion von RDL-CRISPR-Cas9 durch das Ocelli möglicherweise nicht immer eine große Anzahl von Gehirnzellen erreicht, was die Daten mit RDL immunbefleckten RDL-CRISPR-Cas9 injizierten Bienen bestätigt. Bei diesen Präparaten hatte nur eine von 8 Bienen RDL CRISP-Cas9 in vielen Gehirnzellen (Pilzkörper, Protocerebrum und Antennenlappen) im Vergleich zu anderen Bienenhirnen, wo die Verteilung des RDL-CRISPR-Cas9 in Zellen im Protocerebrum (Pilzkörper-Calyx und Zentralkomplex) konzentriert war, nicht aber der Antennenlappen (Abbildung 4A-D).
Anti-mGlutR1 Antikörpertests
Wir verwendeten die Anti-mGlutR1-Antikörper, die bei Kaninchen gegen konjugierte Peptide spezifisch für Drosophila melanogaster hergestellt wurden (Abbildung 2A). Die Sequenz dieses Peptids zeigt eine 94%-Identität mit dem Bienenpeptid (CLSDKTRFDYFARTVPPD) Abbildung 2A. Zuerst überprüften wir die Antikörper gegen das Bienenhirnprotein mittels Immunoblotting. Das Bienenhirnhomogenat wurde durch 10% SDS-PAGE getrennt und elektrophoretisch von einer Nitrocellulosemembran übertragen und mit Anti-MGlutR1 gefärbt. Der Einsatz in Abbildung 2A zeigt zwei Bänder mit geschätzten Gewichtungen (103 und 83 kD), die zwei Isoformen entsprechen. Als wir diesen Antikörper an Honigbienengehirnen getestet haben, fanden wir heraus, dass sie Neuropilar-Profile und -Zellen in den Bienenhirnabschnitten kennzeichnen, wie in Abbildung 2B,Ddargestellt. Nach der Preadsorption des Anti-mGlutR1-Antikörpers mit konjugiertem-mGlutR1-Peptid verschwand die spezifische Färbung in der Bienenhirnscheibe (Abbildung 2C). Dies bestätigt, dass Anti-mGlutR1-Antikörper das Peptid erkennen (Abbildung 2C). Als nächstes injizierten wir eine Mischung aus mGlutR1-CRISPR-Cas9 in den Median ocelli und verwendeten die Steuerung noguideRNA. Bei Kontrollbienen (n = 7) war die Fluoreszenz von ATTO550 nicht in den Zellen konzentriert. Einige Gehirne hatten eine verstreute Fluoreszenz ATTO550-Kennzeichnung. So zeigt das Kontrollpräparat in Abbildung 2D1-3 Anti-MGlutR1-Färbung im Gehirn, nicht aber die ATTO550-Fluoreszenz. Als mGlutR1-CRISPR-Cas9 in das Ocelli injiziert und von vielen Zellen aufgenommen wurde, wurde der Fluoreszenzspiegel der sekundären Antikörper in dem Bereich, der die funktionelle mGlutR1RNP aufnimmt, signifikant reduziert (Abbildung 2E1-3). Die Bienen wurden 48 h lang überwacht, und eine Bee aus jedem Versuchszustand wurde tot aufgefunden. So haben wir in diesem Experiment sieben Kontrollbienen und acht CRISPR-Cas9 Bienen überprüft. Alle mit CRISPR-Cas9 injizierten Bienen hatten Zellen, die mGlutR1-CRISPR-Cas9 aufnahm. Die meisten dieser Zellen waren in den Pilz Körper Calyx, zentralen Komplex, und hintere protocerebrum. Nur zwei von sieben Bienen zeigten ATTO550-Kennzeichnung in vielen Zellen im Pilzkörper, Zentralkomplex und Antennenlappen. Ein Beispiel für eine dieser Bienen ist in Abbildung 2E dargestellt. Die Verringerung des MGlutR1-Färbungsspiegels in diesen Präparaten war signifikant. Die anderen fünf Bienen haben eine ATTO550-Kennzeichnung entsprechend der erfolgreichen Lieferung des mGlutR1 CRISPR-Cas9 im Pilzkörper und hinteren Protocerebrum, aber nicht in den Antennenroben.
Um den Gehalt der modifizierten mGlutR1 gDNA in den Bienen 48 h nach der Injektion zu schätzen, führten wir einen qPCR-basierten Drop-off-Test durch, bei dem die Drop-off-Sonde im Bereich in der Nähe der mGlutR1-Führung liegen sollte. In diesen Experimenten betrug die relative Veränderung der gDNA bei 12 Bienen in den mit mGlutR1-CRISPR-Cas 9 injizierten Bienenhirnen 59 % (Mittelwert 33 %SD) im Vergleich zu gDNA bei nicht injizierten Bienen(Abbildung 3A).
Diese Ergebnisse wurden auch durch qRT-PCR-Tests in einer anderen Gruppe von Bienen bestätigt, wo wir die mGlutR1-RNA-Spiegel mit qRT-PCR bei den Bienen 48 h nach Injektionen mit RNPmGlutR1mix schätzten (Abbildung 3B). Wir verglichen den Gehalt an mGlutR1-RNA der mGlutR1-CRISPR-Cas9 injizierten Bienen (n = 6) mit den RNA-Spiegeln bei Bienen, die nicht injiziert wurden (n = 6). In diesen Experimenten betrug die relative Reduktion der mRNA mGlutR1 bei injizierten Bienen 53 % (Mittelwert 18 % SE) im Vergleich zu nicht injizierten Bienen(Abbildung 3B).
Der Abschnitt von vier verschiedenen Bienen, die den RNP RDL-CRISPR-Cas9 in der Kenyon-Zelle des Pilzkörpers ausdrückten, ist in Abbildung 4A-Ddargestellt. Die Beispiel-Bienen mit ATTO550-Fluoreszenz im Pilzkörper und dem Antennenlappen sind in Abbildung 4E,Fdargestellt.
| Führer | Sequenzen | gRNA | Rnp |
| [guideRNA:tracrRNA] | [gRNA:Cas9 Nuklease] | ||
| RDL_Guide1 | ACCGTAACGCGACCCCCGCT | GRDL1 | RRDL1 |
| RDL_Guide2 | AACGTCGATCGACTTGACGT | GRDL2 | RRDL2 |
| RDL_Guide3 | CCATGACGAAACACGTGCCC | GRDL3 | RRDL3 |
| mGlu_Guide 1 | CGAAAGTTATCTGACGGTGT | GMGL1 | RMGL1 |
| mGlu_Guide 2 | TTCAACGAGAGCAAGTTCAT | GMGL2 | RMGL2 |
| mGlu_Guide 3 | GCAAACGTCGGTAGGAGTGA | GMGL3 | RMGL3 |
Tabelle 1: Nukleotidsequenzen von Hilfslinien für RDL und mGlutR1.
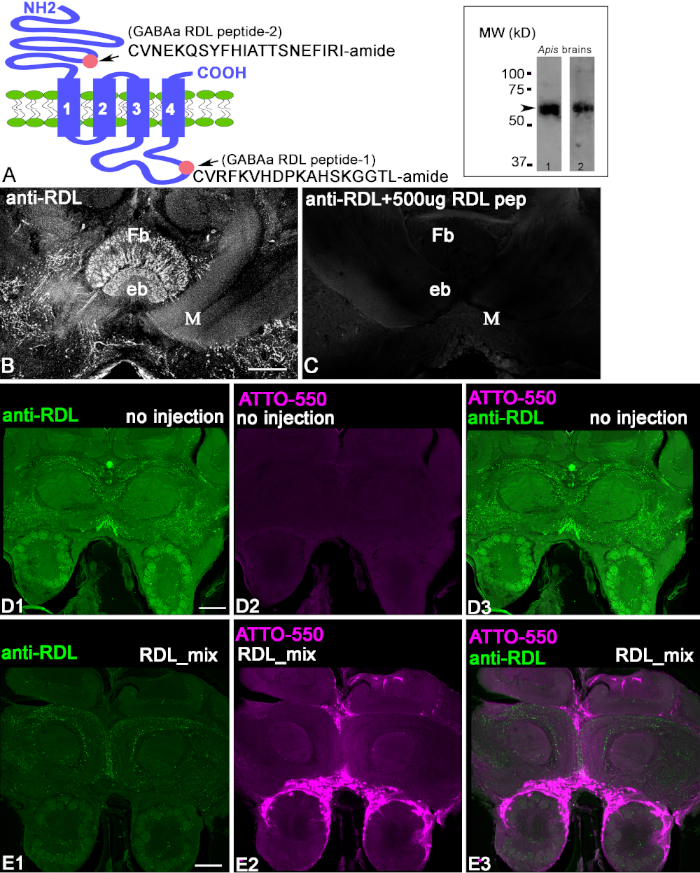
Abbildung 1: Charakterisierung von Anti-RDL-Antikörpern. (A) Schematic der RDL-Untereinheit, wo die rosa Kreise die Lokalisation von Peptid 2 (extrazellulärer CVNEKQSYFHIATTSNEFIRI-amid) im N-Terminus und Peptid 1 (intrazellulärCVRFKVHDPKAHSKGGTL-amid) im C-terminus anzeigen. Die Einfügung in A zeigt die Bänder im Western-Blot von Honigbienen-Gehirnextrakten, die mit entsprechenden Anti-RDL-Antikörpern (eines mit Anti-RDL-Pep1 und Anti-RDL-Pep2) verarbeitet werden. Jeder Immunoblot zeigt die scheinbare Größe des Proteins 50-60 kD, entsprechend den geschätzten Gewichten der verschiedenen Isoformen der RDL-Untereinheiten. (B,C) Preadsorption der Anti-RDL-Antikörper mit konjugiertem Peptid 1. Das Bild in C zeigt eine Verringerung der Färbung im Abschnitt, wenn die Antikörper mit konjugiertem Peptid 1 vorinkubiert wurden. Der fächerförmige Körper (Fb) und der Ellipsoidkörper (eb) sind zentrale komplexe Strukturen im Gehirn. M = medialer Lappen des Pilzkörpers. (D1-3) Anti-RDL Färbung einer Kontrolle, nicht injizierte Bienenhirn Abschnitt nach 48 h. Grün zeigt das Anti-RDL positives Profil im Gehirn. (D2) Diese Eisbe wurde nicht injiziert und enthält keine ATTO550-Fluoreszenz. (D3) Zusammengeführte Bilder von D1 und D3. (E1-3) Die Injektion von RDL-CRISPR-Cas9 reduzierte die Anti-RDL-Färbung nach 48 h. (E2) ATTO550 Fluoreszenz in den Zellkernen deutete auf eine erfolgreiche RDL-CRISPR-Cas9-Entbindung hin. (E3) Das zusammengeführte Bild von Anti-RDL (grün) und ATTO550 (rot). Skala bar = 100 'm (B-E). Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
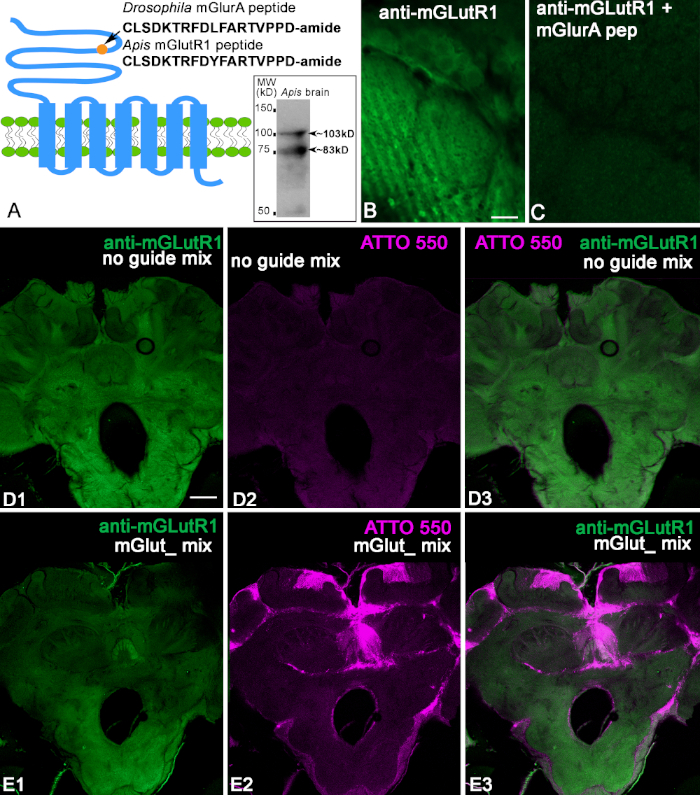
Abbildung 2: Charakterisierung von Anti-MGlutR1-Antikörpern. (A) Schematisches von GCPR mGluR, das das Drosophila melanogaster Peptid zur Immunisierung zeigt. Zum Vergleich: Das Apis-Mellifera-Peptid wird unten gezeigt. Der Kreis zeigt die Lokalisation des Peptids im N-Terminus der extrazellulären Domäne des mGlutR1-Rezeptors an. Die Einfügung in A zeigt, dass die Anti-mGlutR1-Antikörper zwei Bänder im westlichen Fleck des Bienengehirns mit 103 kD und 83 kD erkannten, die den geschätzten Gewichten bekannter Isoformen entsprechen. (B,C) Preadsorption-Kontrolle des Anti-mGlutR1-Antikörpers in zwei aufeinanderfolgenden Abschnitten des Antennenlappenglomeruli. Das Bild von Anti-mGlutR1 im Antennen-Glomeruli-Abschnitt in C zeigt die Reduktion der Färbung infolge der Vorinkubation des Anti-MGlutR1-Peptids mit dem Anti-mGlutR1-Antikörper. Dieses Verfahren bewirkt, dass der Antikörper aus der Lösung herausfällt, was die Färbung im Vergleich zu B abschafft (Kontrolle, Fehlen des Peptids in der Vorinkubation). (D1) zeigt die Färbung von Anti-MGlutR1 in einer Bienenhirnscheibe nach einer Kontrollinjektion im Median ocellus. Dieser Injektion fehlte die mGlutR1 gRNA, die den Abstoß von mGlutR1-Rezeptoren durch CRISPR-Cas9 ermöglicht, und so wurde die Färbung des Anti-mGlutR1-Antikörpers nicht reduziert (grün). (D2) Das Fehlen von ATTO550 Fluoreszenz zeigt das Fehlen von funktionellem CRISPR-Cas9 im Gehirn. (D3) Zusammengeführte Bilder von Anti-mGlutR1 und ATTO550. (E1-E3) zeigen die Färbung von Anti-mGlutR1 in einem Hirnbereich, in dem mGlutR1 nach der Injektion mit mGlutR1-CRISPR-Cas 9 im Median ocellus dauerhaft 48 h niedergeschlagen wurde. So wird die Färbung in diesem Gehirn durch den erfolgreichen Knockout des mGlutR1 in vielen Zellen stark reduziert. (E2) ATTO550 Färbung in vielen Zellkernen im Bienenhirn deutet darauf hin, dass die Injektion von mGlut1-CRISPR-Cas 9 erfolgreich war. (E3) Zusammengeführtes Bild von ATTO550 (rot) und Anti-MGlutR1 (grün). Skala bar = 10 m (B,C); 100 m (D,E). Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
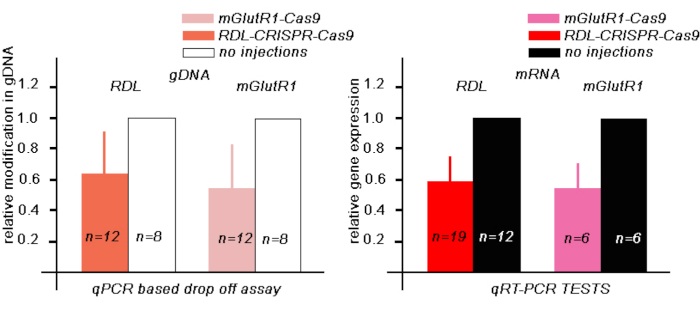
Abbildung 3: Auswertung der modifizierten gDNA und Expression von mRNA von RDL und mGlutR1 mRNA im Bienenhirn 48 h nach Injektion mit 345 nL des entsprechenden RPN CRISPR-Cas9. (A) Der qPCR-basierte Drop-off-Assay-Test zur Bewertung der menge an gDNA mit einem Modmodumumwird wurde mit der2-Ct-Methode berechnet und gegen Kontrolle normalisiert, nicht injizierte Gehirne. Die Daten werden als Mittelwert + SD ausgedrückt. (B) Der qRT-PCR-Test wurde verwendet, um die Menge an mRNA in CRISPR-Cas9 injizierten und nicht injizierten Bienen zu bewerten. AmActin wurde als Referenzgen verwendet. Die relative Genexpression wurde mit 2--Ct-Methoden berechnet und gegen Kontrolle normalisiert, nicht injizierte Gehirne. Die Daten werden als Mittelwert + SE ausgedrückt. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
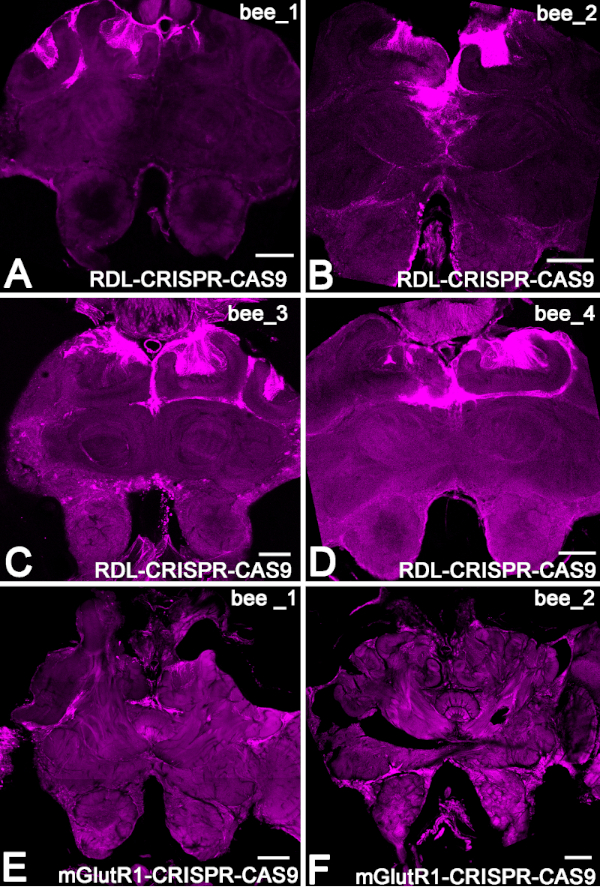
Abbildung 4: Beispiel für die Verteilung von RNP CRISPR-Cas9 in Bienengehirnen über ATTO550-Fluoreszenz. (A-D) Die Hirnabschnitte von vier verschiedenen Bienen, die das RNP RDL-CRISPR-Cas9 in der Kenyon-Zelle des Pilzkörpers ausdrückten. (E,F) Beispiel für zwei Gehirne 48 h nach Injektion mit RNPmGlutR1 CRISPR-Cas9. Skalenbalken = 150 m (A-F). Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
Diskussion
Charakterisierung des Anti-RDL und Anti-MGlutR1
Zuerst charakterisierten wir die Anti-RDL- und Anti-MGlutR1-Antikörper durch Immunoblot und Voradsorption auf den Scheiben fester Honigbienengehirne. Jeder Antikörper wurde gemacht, um alle seine bekannten Isoformen zu erkennen, und westliche Analysen zeigen, dass sie Bänder erkennen, die ihren vorhergesagten Molekulargewichten entsprechen. Als nächstes wurden beide Antikörper durch das konjugierte Peptid blockiert, gegen das sie auf Honigbienen-Gehirnabschnitten produziert wurden.
Eines der ersten Ziele unserer Studie war es festzustellen, dass die Antikörper, die gegen das spezifische konjugierte Peptid produziert werden, spezifisch für sein Protein im festen Gehirngewebe sind. Dazu haben wir das CRISPR-Cas9-System genutzt. Wir haben spezielle Leitfäden für Honigbienen RDL und mGlutR1 entworfen und jeweils für die Kennzeichnung von CRISPR-Cas9 mit der Leuchtstoffsonde ATTO550 verwendet. Für jeden Rezeptor injizierten wir eine Mischung aus drei verschiedenen CRISPR-Cas9 Ribonucleoproteinen in die Ocelli, um die Menge des zielgerichteten Proteins im erwachsenen Honigbienenhirn zu reduzieren, indem wir das entsprechende Gen in Zellen eliminieren, die unser entworfenes Cas9-System aufgriffen. In unserer Studie haben wir diesen Schritt erreicht.
Einer der ersten entscheidenden Schritte für den Erfolg dieser Experimente ist die Entwicklung der entsprechenden Guide RNAs. Wir empfehlen, bis zu fünf Führungs-RNAs zu entwerfen, die sich am Anfang, in der Mitte und am Ende der Gensequenz befinden. In unserer Vorarbeit haben wir sie in verschiedenen Kombinationen an drei bis fünf Bienen getestet. Wir haben auch verschiedene Konzentrationen von Injektionen versucht, sowie Zeiten nach der Injektion, und verschiedene Mischungen von RNP in den Injektionen. Wir sezierten Gehirne und verarbeiteten sie mit Anti-RDL- und Anti-MGlutR1-Antikörpern. In diesen ersten Tests haben wir die geeignete Kombination, die Zeit nach der Injektion, sowie die Konzentration und Menge von CRISPR-Cas9 für die Injektion ermittelt. Diese ersten Tests waren die Grundlage für die Einrichtung der Experimente, die wir hier ausführlich beschrieben haben.
Das Ziel war zweifach: 1) in einer Bienen zu zeigen, dass unsere Antikörperfärbung nach der Behandlung mit CRISPR-Cas9 reduziert wurde und 2) um die besten experimentellen Bedingungen für Verhaltensstudien zu durcharbeiten. So zeigen wir, dass, wenn viele Zellkerne CRISPR-Cas9 48 h nach der Injektion enthalten, die Reduktion der Anti-RDL- und Anti-MGlutR1-Färbung signifikant ist. Darüber hinaus zeigt dies, dass die getesteten Antikörper das mGlut1- und RDL-Protein in der Honigbienen-Gehirnpräparation gezielt erkennen und für Lokalisierungsstudien im Honigbienenhirn verwendet werden können.
Experimentelle Einstellung CRISPR-Cas9 für Verhaltensstudien
Als nächstes haben wir die Experimente so eingerichtet, dass CRISPR-Cas9 in Verhaltensstudien eingesetzt werden kann. Acht oder neun Honigbienen wurden für Kontroll- und Versuchsbehandlungen gesammelt. Sie wurden vor und nach der Injektion verhaltensauffällig getestet, und dann wurden ihre Gehirne für ATTO550 und/oder Immunzytochemie verarbeitet, um die Hirnregionen zu bestimmen, die eine Reduktion des Zielproteins zeigten. Hier ist zu beachten, daß die Anzahl der Bienen, die für eine Reihe von Experimenten genommen wurden, für die Kontroll- und Versuchsbedingungen auf nicht mehr als 8-9 Bienen begrenzt war. Auf diese Weise konnten beide Bedingungen am selben Tag getestet werden. Auch, sobald wir die CRISPR-Cas9 Mischungen für die Injektion vorbereitet haben, froren wir sie nie ein. Die CRISPR-Cas9 Mischung änderte sich nicht in der Potenz, wenn sie 3 Tage hintereinander verwendet und bei 4-8 °C gehalten wird. Wir haben es jedoch nicht nach 3 Tagen getestet.
Wie wir im Abschnitt Ergebnisse für beide Sätze experimenteller Injektionen und für beide Antikörper beschrieben haben, zeigten nur drei bienen von 16 getesteten Bienen eine große Verteilung ATTO550 im Pilzkörper, Protocerebrum und Antennenlappen. Bei allen anderen Bienen beschränkte sich die Verteilung von CRISPR-Cas9 auf den Pilzkörper, den zentralen Komplex und/oder das hintere Protocerebrum. Es ist wichtig, für alle Verhaltensstudien zu verstehen, dass mit dieser Injektionsmethode die Reduktion des Zielproteins nur auf den Pilzkörper in den meisten Bienen beschränkt wird. Es erstreckt sich nicht auf den Antennenlappen oder subösophagealen Ganglion. So ist die Injektionstechnik, die wir verwenden, geeignet, die Wirkung der Reduktion von Rezeptoren im Pilzkörper und zentralen Komplex in Verhaltensexperimenten zu studieren, während eine andere Methode der Einführung von CRISPR-Cas9 besser geeignet für die Untersuchung anderer Hirnregionen sein wird.
Abschließend zeigte unsere Studie die erfolgreiche Anwendung von CRISPR-Cas9 als Kontrolle für die Antikörperfärbung im Gehirn. Bei beiden Antikörpern (Anti-RDL und Anti-MGlutR1) wurde bei erfolgreicher Aufnahme von mGlutR1-CRISPR-Cas9 oder RDL-CRISPR-Cas9 auch die entsprechende Antikörperfärbung deutlich reduziert. Es ist auch wichtig zu beachten, dass die Injektion in die Ocelli zu einer Verteilung von CRISPR-Cas9 im Gehirn führte, die nicht homogen war. Die Verteilung reichte von einer minimalen Fläche, die den Ocelli- und Pilzkörper umgab, bis hin zu vielen Zellen im gesamten Gehirn. Die Variabilität der mGlutR1-oder RDL-CRISPR-Cas9-Aufnahme durch die Zellen war wahrscheinlich auf Variationen in den Injektionen zurückzuführen. Unsere Daten zeigen, dass das CRISPR-Cas9-System bei Honigbienen funktioniert, aber die Injektionsmethode muss verbessert werden, um die Variabilität der CRISPR-Cas9-Aufnahme in den einzelnen Bienengehirnen zu reduzieren. Innerhalb dieser Beschränkungen ist es nun möglich, diese Technik zu verwenden, um Gene bei erwachsenen Bienen für Verhaltensexperimente zu manipulieren.
Offenlegungen
Die Autoren haben nichts zu verraten.
Danksagungen
Diese Arbeit wurde durch die folgenden Auszeichnungen an BHS: Human Frontiers Science Program unterstützt; NIH NIGMS (R01 GM113967); NSF Ideas Lab (1556337). Die Peptid- und Antikörper für DmGluRA wurden im Labor Dr. Serge Birman (Marseille, Luminy, Frankreich) entwickelt, als IS vom Programm d'Urgence FRM/Postdocs UFP20060306548 von der Fondation pour la Recherche Medicale unterstützt wurde. Wir danken Daniela Junqueira Marosi und Alex Hanter von Integrated DNA Technology (IDT) für die Hilfe bei der Entwicklung von RDL-Guides und qPCR-Drop-off-Assays.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Essigsäure | Sigma-Aldrich | A6283_100 mL | Western Blotting |
| Acrylamid-bis Acrylamide | Bio-Rad | 500 mL 1610156 | Western Blotting |
| Agarose | Sigma-Aldrich | A0169-250g | wird mit destilliertem Wasser verwendet, um das Gehirn von Honigbienen in Blöcken zu fixieren |
| Alexa Fluor 488 AffiniPure F(ab')2 Fragment Donkey Anti-Rabbit IgG (H+L) | Jackson Research Laboratories | 711-546-152 | Sekundärantikörper zur Aufdeckung der Primärantikörper aus Kaninchen |
| Alt-R CRISPR-cas9 tracrRNA-5'ATTO | IDT | 1075934 | mit designierter Guide-RNA, bildet es gRNA |
| Alt-R S.p. Cas9 Nuklease V3 | IDT | 1081058 | zur Herstellung von Ribonukleoprotein für das CRISPR-System verwendet wird |
| Ammoniumpersulfat | Bio-RAD | 10 g 1610700 | Western Blotting |
| Anti-mGlutR1-Antikörper | Covalab (FRANKREICH)/Biochemikalie des 21. Jahrhunderts | charakterisiert von den Autoren in der vorliegenden Arbeit | Verwendung für die primäre Inkubation von mGlut 1 in Honigbienen |
| Anti-RDL-Antikörper | 21. Jahrhunderts Biochemikalie | , charakterisiert von den Autoren in der vorliegenden Arbeit | Verwendet für die primäre Inkubation von RDL in Honigbienen |
| Aprotinin | Sigma-Aldrich | Y0001154 | Proteaseinhibitor |
| Barraquer Iris Schere 7mm Klinge Scharfe Spitze | World Precision Instruments | 14128-G | zum Sezieren von Honigbienengehirn |
| Benzamidine | Sigma-Aldrich | 12072 | Proteaseinhibitor |
| Klinge (zerbrechlich) für Klingenhalter | Fine Science Tool | 10050-00 | Dissektion für Western Blotting |
| Klingenhalter und -brecher | Fine Science Tool | 15309 | Dissektion für Western Blotting |
| Kapillaren aus Borosilikatglas | World Precision Instruments | 1B100 F | für Injektionsverfahren |
| Chemilumineszierendes Western Blot Detektionssubstrat | Bio-Rad | 1705062 | Western Blotting |
| Chloroform | Sigma-Aldrich | 472476-50mL | RNA-Isolierung |
| Dithiothreitol | Bio-Rad | 1610611 | Western Blotting |
| DNA easy kit | QIAGEN | 69504 | DNA-Extraktion |
| DNA-freies Kit | INVITROGEN | AM1907 | Zur Entnahme von DNA |
| Eppendorf Research plus Pipette, 3er-Pack | Sigma-Aldrich | Z683884 | |
| Falcon 24 Well Polystyrol Multiwell | Falcon | 351147 | Multiwell |
| Einbettkapseln mit flachem Boden, | Science | 70021 | Korb für Hirnschnitte |
| Pinzette Dumont #5 (Paar) | Fine Science Tool | 11254-20 | für die Dissektion des Gehirns von Honigbienen vom Kopf |
| Pinzette Dumont #5S (Paar) | Fine Science Tool | 11252-00 | zur Reinigung des Gehirns von der Luftröhre vor der Dissektion |
| Genexpression Master Mix | Integrated DNA Technologies | 1055770 | qPCR Drop-off-Assay |
| Glutaraldehyd | EMS | 16220 | zur Herstellung von Peptidkonjugaten zur Kontrollpeabsorption |
| Glycerin | Sigma-Aldrich | G5516-500 mL | Western Blotting, Embedding |
| Medium Glycine | Bio-Rad | 1610718 | Western Blotting |
| Hydrophobes gefiltertes Nylonmesh | Spectrum Labs | 145910 | für den Boden des Korbs für Gehirnschnitte |
| Isopropyl Alkohol | Sigma-Aldrich | I9030-50 ml RNA-Isolierung | |
| Schlüsselloch-Napfschnecke Hämocyanin | Sigma-Aldrich | H7017 | zur Herstellung von Konjugaten für die Kontrolle |
| LSM800 kofokales Mikroskop Zeiss | |||
| mGlu_Guide 1 | IDT | entworfene Guide-RNA für CRISPR-Cas 9. Target-mGlutR1-Genomsequenzen | |
| mGlu_Guide 2 | IDT-designte | Guide-RNA für CRISPR-Cas 9. Target-mGlutR1-Genomsequenzen | |
| mGlu_Guide 3 | IDT-designte | Guide-RNA für CRISPR. Ziel-mGlutR1-Genomsequenzen: | |
| Methanol | Sigma-Aldrich | 34860 | Western Blotting |
| 96-Well-PCR-Mikroplatte | Angewandtes Biosystem, | 4346907 | qPCR-Drop-off-Assay und qRT-PCR |
| 384-Well-PCR-Mikrotiterplatte | Sigma-Aldrich | Z374911 | qRT-PCR |
| Mineralöl | Sigma-Aldrich | M5904_500mL | für das Injektionsverfahren |
| Modell p87 Flammender brauner Mikropipettenabzieher | Sutter Instrument Co. | Kapillarpräparat | |
| Mowiol 4-88 | Sigma-Aldrich | 81381 | zur Einbettungslösung |
| Nanoliter 2000 | World Precision Instruments Nanoliter | Injektionsapparat | |
| Normales Eselserum | Jackson Research Laboratories | AB_2337258 | Blockierungsmittel für die Immunzytochemie |
| Nicht-immunes Ziegenserum | Invitrogen | 50-062Z 100 mL | Blockierungsmittel für das Immunblotting |
| Nukleasefreier Puffer | IDT | 1072570 | Nukleasefreier Puffer, der bei der Vorbereitung der CRISPR-Cas9-Injektion verwendet wird |
| Nukleasefreies Wasser | IDT | AM9337 | Nukleasefreies Wasser, das bei der Vorbereitung des CRISPR-Cas 9-Systems verwendet wird |
| OrbitalShaker Mp4 | Genemat, Paraformaldehyd | ||
| Sigma-Aldrich | 158127-500 g | zur Herstellung von Fixiermitteln für Bienengehirne | |
| Phenylmethylsulfonylfluorid (PMSF) | Sigma-Aldrich | P7626-250 mg | Proteaseinhibitor |
| Phosphatpuffer Kochsalzlösung | Sigma-Aldrich | P4417-100TAB | Verwendung mit Paraformaldehyd als Fixiermittel; Puffer für Antikörper |
Referenzen
- Harms, D. W., et al. Mouse Genome Editing Using the CRISPR/Cas System. Current Protocols in Human Genetics. 83 (15), 7-27 (2014).
- Jinek, M., et al. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Kouranova, E., et al. CRISPRs for Optimal Targeting: Delivery of CRISPR Components as DNA, RNA, and Protein into Cultured Cells and Single-Cell Embryos. Human Gene Therapy. 27 (6), 464-475 (2016).
- Schubert, M., et al. Fluorescently labeled tracrRNA provides efficient genome editing while allowing cellular microscopy and FACS analysis. Genome Editing. , www.idtdna.com 1-3 (2017).
- Kucharski, R., Mitri, C., Grau, Y., Maleszka, R. Characterization of a metabotropic glutamate receptor in the honeybee (Apis mellifera): implications for memory formation. Invertebrate Neuroscience. 7 (2), 99-108 (2007).
- Aronstein, K., Auld, V., Ffrench-Constant, R. Distribution of two GABA receptor-like subunits in the Drosophila CNS. Invertebrate Neuroscience. 2 (2), 115-120 (1996).
- Thompson, M., Steichen, J. C., ffrench-Constant, R. H. Conservation of cyclodiene insecticide resistance-associated mutations in insects. Insect Molecular Biology. 2 (3), 149-154 (1993).
- Chung, B. Y., Kilman, V. L., Keath, J. R., Pitman, J. L., Allada, R. The GABA(A) receptor RDL acts in peptidergic PDF neurons to promote sleep in Drosophila. Current Biology. 19 (5), 386-390 (2009).
- Taylor-Wells, J., Hawkins, J., Colombo, C., Bermudez, I., Jones, A. K. Cloning and functional expression of intracellular loop variants of the honeybee (Apis mellifera) RDL GABA receptor. Neurotoxicology. 60, 207-213 (2017).
- Jones, A. K., Sattelle, D. B. The cys-loop ligand-gated ion channel superfamily of the honeybee, Apis mellifera. Invertebrate Neuroscience. 6 (3), 123-132 (2006).
- Dupuis, J. P., et al. Homomeric RDL and heteromeric RDL/LCCH3 GABA receptors in the honeybee antennal lobes: two candidates for inhibitory transmission in olfactory processing. Journal of Neurophysiology. 103 (1), 458-468 (2010).
- Farooqui, T., Robinson, K., Vaessin, H., Smith, B. H. Modulation of early olfactory processing by an octopaminergic reinforcement pathway in the honeybee. Journal of Neuroscience. 23 (12), 5370-5380 (2003).
- Guo, X., Wang, Y., Sinakevitch, I., Lei, H., Smith, B. H. Comparison of RNAi knockdown effect of tyramine receptor 1 induced by dsRNA and siRNA in brains of the honeybee, Apis mellifera. Journal of Insect Physiology. 111, 47-52 (2018).
- Roth, A., et al. A genetic switch for worker nutrition-mediated traits in honeybees. PLOS Biology. 17 (3), e3000171(2019).
- Kohno, H., Suenami, S., Takeuchi, H., Sasaki, T., Kubo, T. Production of Knockout Mutants by CRISPR/Cas9 in the European Honeybee, Apis mellifera L. Zoological Science (BIOONE). 33 (5), 505-512 (2016).
- Hu, X. F., Zhang, B., Liao, C. H., Zeng, Z. J. High-Efficiency CRISPR/Cas9-Mediated Gene Editing in Honeybee Apis mellifera Embryos. G3: Genes, Genomes, Genetics. 9 (5), 1759-1766 (2019).
- Smith, B. H., Burden, C. M. A Proboscis Extension Response Protocol for Investigating Behavioral Plasticity in Insects: Application to Basic, Biomedical, and Agricultural Research. Journal of Visualized Experiments. (91), e51057(2014).
- Laemmli, U. K. Cleavage of structural proteins during the assembly of the head of bacteriophage T4. Nature. 227 (5259), 680-685 (1970).
- Protein Blotting Guide. , BIO-RAD. http://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_2895.pdf (2019).
- Rodriguez, J., Deinhardt, F. Preparation of a semipermanent mounting medium for fluorescent antibody studies. Virology. 12, 316-317 (1960).
- Custom Alt-R® CRISPR-Cas9 guide RNA. , Integrated DNA Technologies. https://www.idtdna.com/site/order/designtool/index/CRISPR_CUSTOM (2019).
- Bonnafe, E., et al. Effect of a thymol application on olfactory memory and gene expression levels in the brain of the honeybee Apis mellifera. Environmental Science and Pollutant Research (International). 22 (11), 8022-8030 (2015).
- Wang, Y., et al. Regulation of behaviorally associated gene networks in worker honeybee ovaries. Journal of Experimental Biology. 215 (Pt 1), 124-134 (2012).
Nachdrucke und Genehmigungen
