Hier beschreiben wir die Immunpräzipitation von Ribosomen und zugehöriger RNA aus ausgewählten Populationen erwachsener männlicher Mauskeimzellen mit dem RiboTag-System. Strategische Züchtung und sorgfältige Immunpräzipitation führen zu sauberen, reproduzierbaren Ergebnissen, die über das Keimzelltranslatom informieren und Einblicke in die Mechanismen mutierter Phänotypen geben.
Methodenartikel
RiboTag Immunpräzipitation in den Keimzellen der männlichen Maus
In diesem Artikel
Zusammenfassung
Zusammenfassung
Die Quantifizierung von Unterschieden in der mRNA-Fülle ist ein klassischer Ansatz, um die Auswirkungen einer gegebenen Genmutation auf die Zellphysiologie zu verstehen. Die Charakterisierung von Unterschieden im Translatom (der Gesamtheit der übersetzten mRNAs) bietet jedoch eine zusätzliche Informationsschicht, die besonders nützlich ist, wenn versucht wird, die Funktion von RNA-regulierenden oder bindenden Proteinen zu verstehen. Eine Reihe von Methoden, um dies zu erreichen, wurden entwickelt, einschließlich Ribosom-Profiling und Polysomen-Analyse. Beide Methoden stellen jedoch erhebliche technische Herausforderungen dar und können nur in Kombination mit zusätzlichen Sortiermethoden auf bestimmte Zellpopulationen innerhalb eines Gewebes angewendet werden. Im Gegensatz dazu ist die RiboTag-Methode eine genetisch basierte, effiziente und technisch unkomplizierte Alternative, die die Identifizierung von ribosomassoziierten RNAs aus bestimmten Zellpopulationen ohne zusätzliche Sortierschritte ermöglicht, sofern ein anwendbarer zellspezifischer Cre-Treiber verfügbar ist. Diese Methode besteht aus der Züchtung, um die genetischen Modelle, die Probenentnahme, die Immunpräzipitation und nachgeschaltete RNA-Analysen zu generieren. Hier skizzieren wir diesen Prozess in erwachsenen männlichen Mauskeimzellen, die für ein RNA-bindendes Protein mutiert sind, das für die männliche Fertilität benötigt wird. Besonderes Augenmerk wird auf Überlegungen zur Zucht mit einem Fokus auf effizientes Koloniemanagement und die Erzeugung von richtigen genetischen Hintergründen und Immunpräzipitation, um Hintergrund zu reduzieren und die Produktion zu optimieren. Die Diskussion über Fehlerbehebungsoptionen, zusätzliche Bestätigungsexperimente und potenzielle nachgelagerte Anwendungen ist ebenfalls enthalten. Die vorgestellten genetischen Werkzeuge und molekularen Protokolle stellen eine leistungsstarke Möglichkeit dar, die ribosomenassoziierten RNAs bestimmter Zellpopulationen in komplexen Geweben oder in Systemen mit abnormer mRNA-Speicherung und -Translation zu beschreiben, mit dem Ziel, über die molekularen Treiber mutierter Phänotypen zu informieren.
Einleitung
Die Analyse der RNA-Fülle einer Zelle oder eines Gewebes, wie sie durch Mikroarray oder RNA-Sequenzierung untersucht wird, hat sich als ein leistungsfähiges Werkzeug erwiesen, um die molekularen Treiber mutierter Phänotypen zu verstehen. Diese relativ unvollständigen Analysewerkzeuge können jedoch nicht über die Physiologie oder das Proteom der Zelle informieren, insbesondere in Systemen, in denen viele mRNAs vor der Übersetzung gespeichert werden, wie z. B. Neuronal- und Keimzellen. In diesen Systemen kann die Definition der Population von mRNAs, die aktiv in Protein oder das Translatome der Zelle übersetzt werden, ein besserer Indikator für den tatsächlichen physiologischen Zustand der Zellesein 1,2. Zum Beispiel transkribieren Keimzellen in verschiedenen Entwicklungsstadien RNAs, die für eine spätere Übersetzung gespeichert werden, entweder durchEntwicklungs-3 oder Signalsignale4. Dieser Prozess wird durch die mRNAs veranschaulicht, die Protamine kodieren, wobei das mRNA-Transkript Tage vor der Herstellung des Proteins1,2,5,6nachweisbar ist. Ebenso transkribieren Neurozellen RNA im Zellkern und transportieren sie das Axon hinunter, wie dies bei '-actin7der Fall ist. Zusätzlich zu diesen spezialisierten Zellsystemen sind stationäre Transkriptome in Modellen, in denen RNA-Speicherung, Ribosomenbiogenese oder mRNA-Translation betroffen sind, unwahrscheinlich. Mehrere andere Faktoren können sich auch auf den stabilen RNA-Pool einer Zelle auswirken, darunter der mRNA-Zerfall und die Aktivität von RNA-bindenden Proteinen. In diesen Fällen führen robuste Werkzeuge zur Analyse von ribosomassoziierten RNAs oder mRNAs unter aktiver Übersetzung eher zu biologisch relevanten Ergebnissen.
Zu diesem Zweck wurden mehrere Methoden entwickelt, um ribosomassoziierte oder aktiv übersetzte Nachrichten zu identifizieren. Polysome Profiling, das eine Momentaufnahme von ribosomassoziierten Transkripten liefert, wird seit vielen Jahrzehnten verwendet, um intakte RNAs zu isolieren, die entweder ribosomalen Untereinheiten oder Mono-, Di- und Polyribosomkomplexen zugeordnet sind3. Kurz gesagt, gesammelte Zelllysate werden auf einen linearen Saccharosegradienten aufgebracht und als hohe Geschwindigkeit zentrifugiert, was zu einer Trennung der ribosomen Untereinheiten, intakten Ribosomen und Polysomen nach Größe führt. Traditionell wurde diese Technik angewendet, um ein oder ein paar mRNAs zu untersuchen, aber in letzter Zeit wurde diese Methode mit RNA-seq-Studien kombiniert, um die Funktion potenzieller translationaler Regulatoren zu klären8,9 Während eine leistungsstarke Möglichkeit, zwischen aktiv übersetzender und nicht-übersetzender mRNAs10zu unterscheiden, erfordert Polysomenprofilierung zeitaufwändige Methoden (Gradientenfraktionierung und Ultrazentrifuge) und kann eine gute Analyse der Analyse von seltener Zellfolge erfordern. Bevölkerungen herausfordernd.
Ein alternativer Ansatz zur Untersuchung des Translatomes ist die Ribosom-Profilierung, die die Teile von Transkripten identifiziert, die direkt mit dem Ribosom in Verbindung stehen. Kurz gesagt, ribosomassoziierte RNA-Fragmente werden über RNase-Schutztest erzeugt, einzelne Ribosomenkomplexe, die über Denucrose-Gradienten getrennt sind, und assoziierten RNA-Fragmenten isoliert und in RNA-Seq-Tags umgewandelt, die zur tiefen Sequenzierung zugänglich sind11. Einer der wichtigsten Vorteile der Ribosom-Profilierung ist die Fähigkeit, die spezifischen Positionen der Ribosomen zum Zeitpunkt der Isolierung zu bestimmen, die die Identifizierung von Übersetzungsstartstellen, die Berechnung der ribosomalen Belegung und Verteilung und die Identifizierung von Ribosom-Ständen12ermöglicht. Diese Methode weist jedoch mehrere inhärente Nachteile auf, darunter Denzerstand (Gradient-Fraktionator und Ultrazentrifuge), ein relativ komplexes Protokoll, das umfangreiche Fehlerbehebungen erfordert, und Rechenprobleme, die vom unerfahrenen Benutzer nicht einfach behandelt werdenkönnen 11. Wichtig ist, dass Ribosom-Profiling in erster Linie auf isolierte Zellen in der Kultur angewendet wird und erhebliches Material erfordert, wodurch seine Anwendung auf gemischte Zellgewebe oder sortierte Zellen aus in vivo begrenzt ist.
Die von Sanz et al. im Jahr 200913entwickelte RiboTag-Methode beseitigt eine Reihe von Problemen, die sowohl der Polysomen- als auch der Ribosom-Profilierung innewohnen. Bei dieser Methode können ribosomassoziierte RNAs aus bestimmten Zelltypen isoliert werden, was die Untersuchung zellspezifischer Translatome in komplexen Geweben ohne zusätzliche Isolationstechniken und spezielle Ausrüstung ermöglicht, wie dies bei anderen Methoden erforderlich ist13,14. Grundlage der RiboTag-Methode ist ein transgenes Mausmodell (RiboTag), das einen modifizierten Lokus für das 60S ribosomale Subunit-Proteingen Rpl22enthält. Dieser Ort (Rpl22-HA) enthält ein floxed terminal exon gefolgt von einer zusätzlichen Kopie des Terminal exon geändert, um ein C-Terminal Hemagglutinin (HA) Tag innerhalb der Codierungsregion enthalten. Wenn mit einer Maus gekreuzt wird, die eine zellspezifische Cre Recombinase ausdrückt, wird das floxierte Exon entfernt, das die Expression von RPL22 mit HA-Tags auf zellspezifische Weise ermöglicht (Abbildung 1). Das HA-Tag kann dann verwendet werden, um Ip-Ribosomen (IP) und die zugehörigen RNAs aus dem ausgewählten Zelltyp zu immunprezipieren.
Neben der ersten Veröffentlichung, die die Technik entwickelte, haben mehrere andere Laboratorien das RiboTag-Modell verwendet. Verschiedene Gewebe wie Maus Sertoli und Leydig Zellen15, Mikroglia16, Neuronen17,18, Eizellen19, und kultivierte Zellen20 wurden profiliert und untersucht. Obwohl dieses Protokoll eindeutig in der Lage ist, Ribosomen und die zugehörigen RNAs über verschiedene Gewebetypen hinweg erfolgreich zu isolieren, gibt es immer noch Bereiche, die verbessert werden müssen, insbesondere wenn sie auf mutierte Systeme angewendet werden. Insbesondere die gemeinsame Abhängigkeit von frischem Gewebe führt zu einer erhöhten technischen Variation, die die Leistungsfähigkeit der Analyse erheblich verringern kann. Zweitens wird die sichere Identifizierung von differenziell übersetzten Targets schwieriger, wenn ein hintergrund mit hoher Immunpräzipitation vonnicht-crerekombinierten Zelltypen auftritt, wie zuvor berichtet13. Während Sanz et al. die Grundvoraussetzung der Technik konstruierten, präsentiert das Snyder-Labor in diesem Manuskript die Optimierung des Protokolls, um diese Bedenken zu reduzieren, wodurch die Methode praktischer und effizienter wird.
Die Absicht dieses Artikels ist es, die Schritte für Zuchtmäuse zu erklären, die zellspezifische HA-markierte Ribosomen exezieren, diese Ribosomen aus flashgefrorenen Proben immunisieren und die zugehörigen RNAs für weitere nachgelagerte Analysen reinigen. Da die männliche Keimzelle des Säugetiers und die untersuchte Unfruchtbarkeitsmutation einzigartige Herausforderungen darstellen, wurden Anstrengungen unternommen, um zu beleuchten, wie diese Technik an andere Zellsysteme angepasst werden kann.
Protokoll
Alle Praktiken zur Verwendung und Handhabung von Tieren wurden vom Internal Animal Care and Use Committee (IACUC) der Rutgers University genehmigt.
1. Mauszucht
- Zucht weiblicher Mäuse homozygot für eine RNA-bindende Proteinmutation, die zu männlicher Unfruchtbarkeit führt (Manuskript in Vorbereitung, hierin als das Gen von Interesse bezeichnet) in Triopaarungen mit Männchen hemizygot für das Stra8-iCre-Allel (B6. FVB-Tg(Stra8-iCre)1Reb/LguJ) (Cre+), als Paarung zwei Weibchen zu jedem Männchen erhöht Zuchteffizienz.
HINWEIS: Das mutierte Gen von Interesse (M) wurde mütterlicherseits weitergegeben, da Frauen homozygot für M eine normale Fruchtbarkeit haben. Dies hat den zusätzlichen Vorteil, dass die väterliche Übertragung der männlichen Keimzelle Cre (hemizygot) wie empfohlen21 erlaubt wird und der Anteil der Nachkommen mit der gewünschten Allelkombination optimiert wird. Da homozygote Cres Keimzelltoxizität22aufweisen, wird empfohlen, das Allel zu erhalten und in einem heterozygoten oder hemizygoten Zustand zu übergeben. Wichtig ist, dass der Cre-Ausdruck nicht mit dem Rpl22-HA-Allel ko-auftritt, bis die experimentelle Population. Wenn das Rpl22-HA-Alll von Cre bei Zuchttieren nicht isoliert wird, entstehen Nachkommen, die Rpl22-HA aufgrund der Keimzell-Cre-Aktivität weltweit ausdrücken. Dieses Problem ist spezifisch für Keimzellen. Darüber hinaus ist die Stra8-iCre spezifisch für die Zellpopulation der Autoren von Interesse22, Ziel Zellen Übergang in und sehr früh in meiose, einschließlich Preleptotenunde und Leptotenes. Stattdessen kann ein anderer Cre-Treiber verwendet werden, der für einen anderen Zelltyp von Interesse spezifisch ist. Die gängige Praxis schreibt vor, dass männliche Keimzellen exprimierte Cres auf der väterlichen Seite übertragen werden. Es ist jedoch möglich, dass eine mütterliche Übertragung des Stra8-iCre zu einer ähnlichen transgenen Expression bei männlichen Nachkommen führt. Unabhängig vom gewählten Zuchtschema sollten alle Versuchsproben über Cre-Übertragung von derselben Elternseite (entweder immer mütterlich oder immer väterlich) erzeugt werden, um Nachkommen mit gleichwertigem Cre-Expression zu erzeugen. - Genotyp resultierende männliche Welpen wie in Abschnitt 2.4 beschrieben. Wählen Sie diejenigen, die das M-Allel tragen und positiv für Cre (+/M:Cre+) für die nachgelagerte Zucht.
- Zucht weibliche Mäuse homozygot für das M-Allel in Trio-Paarungen zu Männchen homozygot für Rpl22-HA (B6J.129(Cg)-Rpl22tm1.1Psam/SjJ).
HINWEIS: Der Rpl22-HA-Hintergrund ist stark gemischt, daher sollte bei der Beurteilung dehnungsspezifischer Phänotypen Vorsicht walten. - Genotyp resultierende weibliche Welpen, um diejenigen zu identifizieren, die das M-Allel tragen und positiv für Rpl22-HA (+/M:Rpl22-HA+) (siehe Abschnitt 2.3). Wählen Sie diese Weibchen für die nachgelagerte Zucht aus.
- Kreuz +/M:Cre+ Männchen mit +/M:Rpl22+ Hündinnen in Triopaaren. Genotypieren Sie die resultierenden Welpen (siehe Abschnitte 2.3 und 2.4), um Männchen zu identifizieren, die sowohl Cre+ als auch Rpl22+ und entweder Wildtyp oder M/M sind.
HINWEIS: Da sich diese Arbeit auf eine Mutation konzentriert, die zu vollständiger männlicher Unfruchtbarkeit führt, wurden im Zuchtschema besondere Überlegungen angestellt, um am effizientesten gewünschte experimentelle Genotypen zu erhalten. Solche Überlegungen können in anderen versuchsweiseModellen unnötig sein. Siehe Abbildung 2 für eine vollständige Zuchtschemata und begleitende Legende für zusätzliche Diskussionen über Zuchtüberlegungen.
2. Probensammlung
- Sammeln Sie Hoden von männlichen Mäusen an 21 Tagen nach der Partumum (dpp).
- Opfern Sie Mäuse durch CO2-Inhalation, gefolgt von zervikalen Dislokationen. Machen Sie einen ventralen Schnitt (3 cm) an jedem Tier, flankiert von zwei kürzeren (je 2 cm), verbundenen seitlichen Schnitten. Ziehen Sie die Haut und Peritoneum zurück, um die Hoden zu offenbaren.
- Ziehen Sie mit Zangen das epidymale Fettpolster von einer Seite der Körperhöhle, um die Epididymis und Hoden zu enthüllen. Mit Tenotomie-Schere, Verbrauch endiebe die Hoden, mit Sorgfalt zu trimmen Epididymis, umgebendes Fett, und jede äußere Vaskulatur. Stellen Sie intakte Hoden in ein sauberes 1,7 ml-Rohr.
- Wiederholen Sie dies mit der anderen Seite, indem Sie die zweiten Hoden zum ersten Rohr hinzufügen. Kappen Sie dieses Rohr und tauchen Sie es sofort in flüssigen Stickstoff, um zu blitzen.
HINWEIS: Proben können bis zur Verwendung bei -80 °C aufbewahrt werden.
- Sammeln Sie zusätzliche Schwanzspitzenproben für jedes Tier (2 mm) für die Genotypisierungsbestätigung.
- Um DNA zu extrahieren, fügen Sie 100 l von 50 mM NaOH zu einer 2 mm Schwanzspitze in einem 1,7 ml-Rohr hinzu und kochen bei 95 °C für 30 min. Fügen Sie 100 l von 50 mM HCl und 20 l von 1 M Tris-HCl pH 8.0 und Zentrifugenproben für 3 min bei 10.000 x ghinzu. Halten Sie Überstand (mit genomischer DNA) und speichern Sie extrahierte DNA bei 4 °C, bis sie als Vorlage für die folgenden Genotypisierungsreaktionen verwendet wird.
- Führen Sie die Rpl22-HA-Genotypisierung nach einer von Sanz et al.13 angepassten Methode mit folgenden Primern durch: vorwärts: 5' GGGAGGCGCGCTGGATATG 3'; Rückseite: 5' TTTCCAGAGAAGGCTAAGTACAC 3'.
- Bereiten Sie ein Reaktionsgemisch bestehend aus 2 l DNA, wie in Schritt 2.2.1 extrahiert, 0,08 l von 25 mM dNTPs, 0,1 l von 10 mM Vorwärtsprimer, 0,1 l von 10 mM Reverseprimer, 2 l eines Polymerase-Kettenreaktionspuffers (PCR) (650 mM Tris pH = 8,8, 165 mM (NH4)2SO4, 30 mM MgCl2und 0,1% Tween), 0,2 l Taqpolymerase und nukleasefrei H2O bis zu einem Gesamtvolumen von 20 l.
- Verwenden Sie die folgenden Thermocycler-Bedingungen: einen 30 s Grundschmelzschritt bei 95 °C, 30 s Neal bei 64 °C und eine 30 s Dehnung bei 72 °C, 37-mal mit einer abschließenden 5 min Dehnung bei 72 °C wiederholt.
HINWEIS: Dies ergab eine Produktgröße von 260 bp für Wildtypproben und 292 bp für Proben, die Rpl22-HA+ waren.
- Cre genotyping mit den folgenden Primern durchführen: vorwärts: 5' GTGCCAGCTGAACACaCAGGA 3'; Rückseite: 5' AGGGACACAGCATTGGAGTC 3'. Bereiten Sie die PCR-Reaktion wie in Schritt 2.3.2 beschrieben unter Verwendung der Cre Primer statt. Verwenden Sie die folgenden Thermocycler-Bedingungen: einen 30 s Grundschmelzschritt bei 95 °C, 30 s Neal bei 60 °C und eine 15 s Dehnung bei 72 °C, 35-mal mit einer abschließenden 5 min Dehnung bei 72 °C wiederholt.
- Führen Sie Gen von Interesse Genotypisierung, wie es Standard für das betreffende Gen ist.
HINWEIS: Das Genotypisierungsprotokoll des Autors verwendet einen konzentrierten benutzerdefinierten Taq, und als solche müssen andere Benutzer möglicherweise die Bedingungen an ihre enzymatischen Anforderungen anpassen. Um die Auswirkungen dieses Gens des Verlusts auf die Übersetzung besser zu verstehen, wurden Männchen, die entweder Wildtyp oder homozygot für das mutierte Allel von Interesse waren und die auch Cre+ und Rpl22+ waren, als experimentelle Proben ausgewählt. Die Genotyp-Auswahl wird weiter oben in Abschnitt 1 erläutert.
3. Vorbereitung von Lösungen
HINWEIS: Die Vorbereitung von Lösungen und alle nachfolgenden Schritte müssen unter strengen Bedingungen erfolgen.
- Zur Herstellung des Homogenisierungspuffers (HB) 2,5 ml von 1 M Tris pH 7,4, 5 ml von 1 M KCl, 600 l von 1 M MgCl2und 500 l NP-40 zu einem 50 ml Rohr hinzufügen. Auf Volumen (50 ml) in Diethylpyrocarbonat (DEPC)H2O bringen und mischen, bis alle Komponenten eingebaut sind.
HINWEIS: Die Endkonzentrationen werden wie folgt sein: 50 mM Tris pH 7,4, 100 mM KCl, 12 mM MgCl2und 1% NP-40. - Zur Herstellung des Hochsalzwaschpuffers (HSWB) 2,5 ml von 1 M Tris pH 7,4, 15 ml 1 M KCl, 600 l von 1 M MgCl2und 500 l NP-40 zu einem 50 ml Schlauch hinzufügen. Auf Volumen (50 ml) in DEPC H2O bringen und mischen, bis alle Komponenten eingebaut sind.
HINWEIS: Die Endkonzentrationen werden wie folgt sein: 50 mM Tris pH 7,4, 300 mM KCl, 12 mM MgCl2und 1% NP-40Das Protokoll kann hier angehalten werden, und Lösungen können bei Raumtemperatur bis zur Verwendung gelagert werden.
4. Vorbereitung von Gewebe
- Alle Probenröhrchen vorwiegen, Gewicht aufzeichnen und in flüssigem Stickstoff vorkühlen.
- Sterilmörtel, Stößel und Wiegen von Spachtel auf Trockeneis vorkühlen.
- Mit einem vorgekühlten, sterilen Mörtel und Stößel auf Trockeneis zu einem feinen Pulver schleifen.
- Flash-gefrorenes Gewebe in vorgekühlten Mörtel auf Trockeneis legen. Brechen Sie Gewebe vorsichtig in große Stücke mit Stößel und mahlen langsam, bis Gewebe ein feines Pulver ist.
HINWEIS: Obwohl frisches Gewebe auch verwendet werden kann, wie im ursprünglichen Protokoll13, wird kein signifikanter Unterschied im Ergebnis bei der Verwendung von flashgefrorenem Gewebe beobachtet. Weitere Informationen finden Sie unter Repräsentative Ergebnisse und Diskussion. - Bodenprobe vorsichtig auf vorgekühltes Sammelrohr übertragen, indem Pulver aus Mörtel mit vorgekühltem Spachtel gekratzt wird. Stellen Sie sicher, dass nur Gewebe gesammelt wird und keine Feuchtigkeit auf den kalten Mörtel abgelagert wird.
- Wiegen Sie das Rohr mit Gewebe, wobei Sie darauf achten, nach Möglichkeit auf Trockeneis zu bleiben. Berechnen Sie die Masse des Gewebes, indem Sie das Anfangsgewicht des Rohres vom Gewicht des Rohres mit der darin folgenden Probe subtrahieren. Zeichnen Sie diesen Wert für die spätere Berechnung von Lysepuffervolumes auf.
HINWEIS: Das Protokoll kann hier angehalten werden, und Proben können bei -80 °C gespeichert werden, bis es verwendet wird.
- Flash-gefrorenes Gewebe in vorgekühlten Mörtel auf Trockeneis legen. Brechen Sie Gewebe vorsichtig in große Stücke mit Stößel und mahlen langsam, bis Gewebe ein feines Pulver ist.
5. Homogenisierung der Probe
- Vorbereiten von Lysepuffer (10 ml HB + Ergänzungen) durch Zugabe von 10 l 1 M Dithiothreitol (DTT), 1 Protease-Hemmer-Tablette, 50 l RNase-Inhibitor (40.000 Einheiten/ml), 200 l von 5 mg/ml Cycloheximid und 100 l mit 100 mg/ml Heparin bis 10 ml HB. Mischen, bis alle Komponenten eingebaut sind und bis zum Gebrauch auf Eis bleiben.
HINWEIS: Die Endkonzentrationen der Ergänzungen in 10 ml HB werden wie folgt sein: 1 mM DTT, 200 U/mL RNase-Inhibitor, 100 g/ml Cycloheximid und 1 mg/ml Heparin. Diese Lösung muss innerhalb von 24 h nach Zugabe der Ergänzungen verwendet werden und kann bis zur Anwendung bei 4 °C oder auf Eis aufbewahrt werden. - Geben Sie für jede 100 mg Probe 1 ml Lysepuffer hinzu. Mit der gleichen Pipette verwendet, um die Lyse Puffer hinzufügen, sorgfältig Pipette die resultierende Lysat nach oben und unten zu Fragmentzellen und mischen. Fahren Sie mit der Pipettenz fort, bis die Probe nicht mehr zähflüssig ist, in der Regel 25 bis 30 Striche.
HINWEIS: Da die Lösung zunächst sehr zähflüssig ist, sollte eine Pipette mit großem Durchmesser verwendet werden, um die Lösung zu mischen. Für 100 mg Gewebe reicht normalerweise ein Standardwert von 1000 mg. - Legen Sie Proben auf Eis für 10 min zu Lyse. Dann Spinnen Sie Proben in einer vorgekühlten Zentrifuge (4 °C) für 10 min bei 10.000 x g. Ein großes, loses, trübes Pellet sollte sich im Boden des Rohres bilden.
- Achten Sie darauf, das Pellet nicht zu stören, sammeln Sie das Lysat in ein neues Rohr und zeichnen Sie das Volumen für jede Probe auf. Um eine Abgrenzung der Proben zu verhindern, stellen Sie sicher, dass die Proben während des gesamten verbleibenden Protokolls kühl bleiben und nach Möglichkeit auf Eis oder bei 4 °C gelagert werden.
6. Gleichgewicht der Perlen
- Berechnen Sie anhand des Lysatvolumens ab Schritt 5.2 das erforderliche Volumen der magnetischen Perlen, die mit dem entsprechenden Antikörperbindungsprotein (in diesem Fall Protein G) gekoppelt sind. Für 1 ml Lysat verwenden Sie 375 l Protein-G-Perlen (30 mg/ml).
ANMERKUNG: Die Wahl der konjugierten Perlen variiert mit anti-HA-Antikörpern; Wenn beispielsweise ein von Kaninchen erzeugter Anti-HA-Antikörper ausgewählt ist, sind Protein-A-Perlen vorzuziehen. - Entfernen Sie mit einem magnetischen Rohrträger das Perlenlösungsmittel und fügen Sie den Perlen ein gleiches Volumen an frischem Lysepuffer hinzu. Drehen Sie 5 min bei 4 °C zum Waschen. Führen Sie alle Rotationsschritte mit einem Tischrohrrotater aus, der auf 20 U/min eingestellt ist.
- Legen Sie das Rohr auf das magnetische Rohrgestell und entfernen Sie den Waschpuffer.
- Wiederholen Sie die Schritte 6.1-6.3 zwei weitere Male.
- Fügen Sie dem ursprünglichen Volumen einen Lysepuffer hinzu, um gleichgewichte Perlen zu erhalten. Bei 4 °C oder auf Eis bis zum Gebrauch aufbewahren.
7. Preclearing-Probe
- Fügen Sie 50 l äquilibrierte Perlen für jede 1 ml Lysat zu Überstand der Lysatprobe (Lysat) hinzu und drehen Sie bei 4 °C für 1 h.
- Legen Sie das Rohr auf das Magnetgestell und sammeln Sie Lysat in ein frisches Rohr. Entsorgen Sie gebrauchte Perlen.
- Zum Lysat 25 L Gleichdrüsen pro 1 ml hinzufügen und bei 4 °C für 1 h drehen. Reste des Gleichgewichts Protein G Perlen bei 4 °C über Nacht lagern.
- Rohr auf das Magnetgestell legen und Lysat in ein frisches Rohr sammeln. Entsorgen Sie gebrauchte Perlen. Bewahren Sie aus dem geclearten Lysat 50 l auf, um als Probeneingangssteuerung zu fungieren. Bei -80 °C lagern.
HINWEIS: Die Eingangsprobe fungiert als Kontrolle, die die gesamte RNA-Population der Probe darstellt, einschließlich RNAs, die mit anderen Zelltypen im Gewebe assoziiert sind, um bei nachgeschalteten Analysen verwendet zu werden, um Genexpressionsänderungen als Funktion der Mutation zu korrigieren.
8. Inkubation von Antikörpern
- Fügen Sie für jede 1 ml geclearten Lysats 5 g Anti-HA-Antikörper hinzu. Um Probenverlust zu vermeiden, versiegeln Sie die Rohrkappe mit Laborfolie. Drehen Sie die Proben 16 bis 18 h bei 4 °C.
HINWEIS: Die Inkubationszeit und -konzentration des Antikörpers wurde nicht optimiert. Die Autoren fanden eine nächtliche Inkubation mit 5 g ausreichend; Es ist jedoch möglich, dass eine kürzere Inkubation oder weniger Antikörper ausreichend ist, oder dass eine längere Inkubation oder mehr Antikörper die Bindung verbessern.
9. Inkubation von Perlen
- Geben Sie für jede 1 ml geclearten Lysat 300 l Protein-G-Perlen hinzu. Die Rohrkappe mit Laborfolie wieder versiegeln und bei 4 °C um 2 h drehen.
10. Waschen von Perlen
- Legen Sie das Probenrohr auf das Magnetgestell, damit sich Perlen von IPed-Lysat trennen können. Pipette aus fließenden Lysat und entsorgen, die Perlen zu halten.
- Tragen Sie 800 l HSWB auf Perlen auf und lassen Sie 10 min bei 4 °C drehen. Legen Sie das Probenrohr auf das Magnetgestell und lassen Sie Perlen vom Waschen trennen. Waschen entfernen und entsorgen.
- Tragen Sie weitere 800 L HSWB auf Perlen auf. Probe schließen und 5 min bei 4 °C drehen lassen. Legen Sie das Probenrohr auf das Magnetgestell und lassen Sie Perlen vom Waschen trennen. Waschen entfernen und entsorgen.
- Wiederholen Sie Schritt 10.3 noch einmal.
11. RNA-Extraktion
- Legen Sie das Probenrohr auf das Magnetgestell und lassen Sie Perlen vom Waschen trennen. Pipette aus und entsorgen Waschen, Halten Perlen für die RNA-Extraktion. Fügen Sie 3,5 l von 14,2 M Beta-Mercaptoethanol (bME) zu Perlen hinzu und mischen Sie durch Wirbeln für 15 s.
- Extrahieren Sie RNA mit einem kommerziellen RNA-Reinigungskit, wie vom Hersteller gemäß den Anweisungen des Herstellers. Elute-Probe in 30 l RNase freiH2 O.
HINWEIS: Obwohl die 10 L/Probe-DNase-Behandlung für die meisten Kits optional ist, wird sie dringend empfohlen. Dieser optionale Bereinigungsschritt reduziert den Hintergrund erheblich und ermöglicht eine genauere Endkonzentration. Es ist dringend erforderlich, ein Kit zu verwenden, das Beta-Mercaptoethanol (bME) im Lysepuffer enthält. bME wirkt als zusätzlicher RNase-Inhibitor, um den Probenabbau während der RNA-Isolation zu verhindern. - Probe bei -80 °C lagern oder sofort analysieren.
12. Quantifizierung und Stichprobenanalyse
- Mit Hilfe eines UV-Vis Spektralphotometers die RNA-Konzentration und die vorläufige Qualität zu quantifizieren.
- Analysieren Sie die Qualität der aus Proben extrahierten RNA über einen Bioanalyzer.
HINWEIS: Die resultierende RNA kann dann für die RNA-Sequenzierung oder andere nachgeschaltete Analysen wie Nord-Blotting oder quantitative Reverse-Transkription PCR (qRT-PCR) verwendet werden.
Ergebnisse
Frühere Berichte haben vorgeschlagen, unspezifische Immunpräzipitation von Zellen ohne Cre14. Um festzustellen, ob dies in unserem modifizierten Protokoll der Fall war, wurde die IP-Effizienz in Proben von Tieren ermittelt, die sowohl Cre als auch Rpl22-HA trugen, und Tieren, die nur eine, aber nicht die andere mit sich führten, mit der Erwartung, dass ohne Cre-Driverund Rpl22-HAimmunvorspaltte RNA minimal sein sollte. Wie in Abbildung 3dargestellt, wird sehr wenig RNA aus Proben isoliert, denen entweder Cre oder Rpl22-HA fehlt, was die Wirksamkeit dieses Protokolls demonstriert, um den IP-Hintergrund zu reduzieren und echte HA-markierte Ribossome-RNAs zu isolieren. Darüber hinaus stellen sowohl Cre-only- als auch Rpl22-HA-only-Samplesgeeignete Negativkontrollen dar.
Angesichts des Potenzials, dass die Reagenzquelle die Effizienz von IP signifikant beeinflussen könnte, wurden eine Reihe von Antikörpern und RNA-Isolationsprotokollen getestet (Abbildung 4) in Cre- und Rpl22-HA-positiven Proben. Diese Ergebnisse zeigen, dass die Reagenzienauswahl einen erheblichen Einfluss auf die IP-Effizienz haben kann, daher sollten Änderungen an der Reagenzienauswahl mit Vorsicht durchgeführt werden.
Um dieses Protokoll im Rahmen eines RNA-bindenden Proteins mutiert zu testen, wurden Wildtyp-Cre+Rpl22-HA+ (Wildtyp) und Gen von Interesse-/--Cre+Rpl22-HA+ (Gen von Interesse-/-) Tests auf die Wirksamkeit des RiboTag-Systems untersucht, um ribosomassoziierte RNA zu isolieren ( Abbildung5). Wenn die RNA-Konzentration von Wildtyp-Input und IP mit Gen von Interesse verglichen wurde -/- Input und IP, wurde kein signifikanter Unterschied zwischen Genotypen beobachtet. Bei beiden Genotypen war die Eingangskonzentration jedoch signifikant höher als die IP-Konzentration, was darauf hindeutet, dass sich mehr RNA in der Eingangsstichprobe befand (Abbildung 5B). Dieses Ergebnis wird erwartet, da nicht alle in der Zelle vorhandenen mRNAs zu einem bestimmten Zeitpunkt mit dem Ribosom in Verbindung gebracht werden, insbesondere im Fall von Keimzellen, bei denen RNAs lange vor ihrer Übersetzung transkribiert werden können.
Um die Qualität der zur Sequenzierung gesendeten RNA-Proben zu bestätigen, wurden probenweise auf einem Bioanalyzer ausgeführt. RNA-Integritätsnummern (RINs), die normalerweise als Verhältnis von 28S- und 18S-rRNA-Peaks berechnet werden, wurden über Proben hinweg verglichen. Insgesamt werden die RIN-Werte bei fast 10 erwartet, wobei eine höhere RIN mit einer höheren abgeleiteten Probenintegrität und -qualität korreliert. Während die IP-Proben niedrigere RIN-Proben als die Eingänge aufwiesen, befanden sich die RINs noch in einem akzeptablen Bereich und waren nicht vom Probengenotyp abhängig (Abbildung 5C). Die reduzierten RIN-Werte für IPed-Proben sind wahrscheinlich ein Ergebnis des RNA-Abbaus, wenn auch sehr gering angesichts der relativ geringen Abnahme der durchschnittlichen Nukleotidlänge der analysierten RNAs. Angesichts der Länge des Protokolls und der für die Immunpräzipitierung erforderlichen Temperaturen wird ein gewisser Abbau erwartet. Es ist auch möglich, dass die reduzierte RIN- und RNA-Länge eine Funktion der Anreicherung für Nicht-rRNA-Arten wie mRNAs ist.

Abbildung 1: Die RiboTag-Methode. Die Prämisse der Methode ist biologisch einfach. Für den Rpl22-Lokus unterhalb des ursprünglichen Exon 4 wird ein neuer Exon 4 eingefügt. In Anwesenheit eines Cre-Treibers werden loxP-Standorte auf beiden Seiten des ursprünglichen Exon 4 geschnitten, die den floxierten Exon ausblenden. Der HA-markierte Exon 4 ist jetzt in Rpl22 mRNA integriert und erzeugt eine HA mit RPL22 in Zellen, die CRE exzieren. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
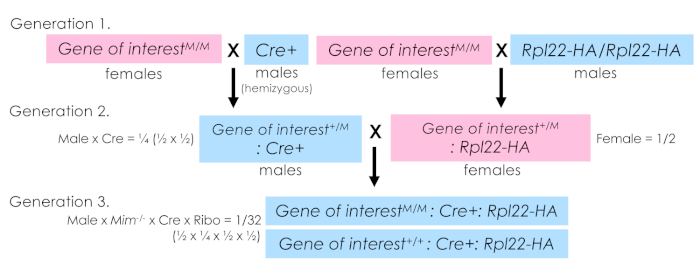
Abbildung 2: Probenzuchtschema für RiboTag-Mäuse. Gezeigt wird das Zuchtschema, mit dem Versuchstiere erzeugt werden. Es wurde ein zweigleisiges Schema verwendet. In der Generation 1 wurden zwei parallele Züchtertrios etabliert. Eine Seite kombinierte das Allel des Interesses (mütterlich getragen, da diese spezifische Mutation zu männlicher Unfruchtbarkeit führt) mit dem hemizygoten Cre und auf der anderen Kombination des Wiedersätzens von Interesse, das wiederum mütterlich getragen wird, mit Rpl22-HA. Dann, in Generation 2, Männchen aus der ersten Paarung, die das Allel des Interesses tragen und die Cre werden zu weiblichen Nachkommen der zweiten Paarung gekreuzt, die das Allel von Interesse und Rpl22-HA tragen. Die Genotypen der resultierenden Nachkommen werden bestimmt und experimentell relevante Tiere ausgewählt (in diesem Fall entweder Wildtyp oder homozygotes Mutant, das sowohl die Cre- als auch die Rpl22-HA-Allele trägt). Es ist wichtig zu beachten, dass für Keimzellen, die Cre-Treiberexzessizieren, die Cre- und Rpl22-HA-Allele bis zur experimentellen Erzeugung nicht zusammen gezüchtet werden sollten. Die Exposition des Rpl22-HA-Allels gegenüber Keimzell-exprimiertem Cre in Zuchtgenerationen wird die Keimzell-Rpl22-HA-Exzision antreiben. Alle daraus resultierenden Nachkommen werden Rpl22-HA global ausdrücken und so eine zellspezifische Ribosomisolation verhindern. In dem hier beschriebenen System lieferte ein n = 4 pro Genotyp ausreichende statistische Leistung für nachgeschaltete Analysen. Die biologische Replikationsnummer sollte für jedes Versuchssystem ermittelt werden. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
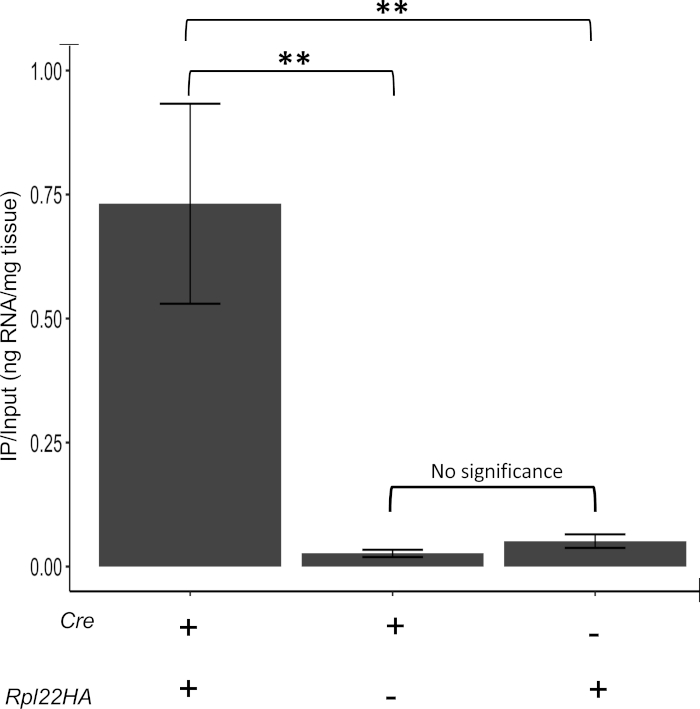
Abbildung 3: Bestätigung von Negativkontrollen. Proben, die Cre+ und Rpl22-HA+ sind, zeigen einen höheren RNA-Pulldown als Samples, die nur Cre+ oder Rpl22-HA+ sind. Es gibt keinen signifikanten Unterschied zwischen der Wirksamkeit von Cre+ und Rpl22-HA+-Proben-RNA-Pulldown, was darauf hindeutet, dass Proben, denen entweder die Cre oder die Rpl22-HA fehlen, geeignete Negativkontrollen sind. Ein "+" gibt an, dass das entsprechende Allel oder Transgen in diesen Proben vorhanden war, und ein "-" bezeichnet seine Abwesenheit. IP/Input stellt das Verhältnis von RNA immunprezipitiert (IP) zu Gesamt-RNA (Input) dar. Aus der Konzentration in Nanogramm berechneter Wert. ** gibt p < 0025 an. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
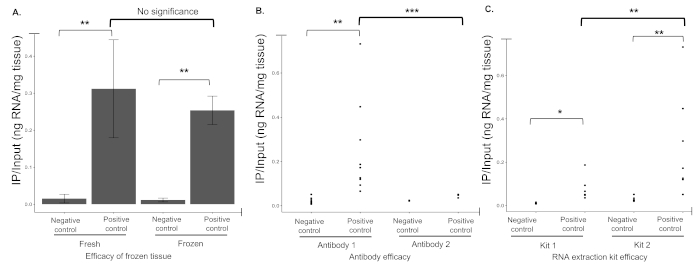
Abbildung 4: Reagenzien beeinflussen den Erfolg des Protokolls. (A) Flash-gefrorenes Gewebe führt zu einer Immunpräzipitationseffizienz ähnlich der von frischem Gewebe. (B) Es wurden die IP-Effizienz für zwei kommerzielle Antikörper ermittelt, die als Antikörper 1 und Antikörper 2 (Materialtabelle)bezeichnet wurden. Im Test war Antikörper 1 effizienter beim Abziehen von RNA als Antikörper 2, der nicht in der Lage zu sein schien, zwischen negativen (weder Cre noch Rpl22-HA+) und positiven Kontrollen (ausdrückend sowohl Cre als auch Rpl22-HA+) zu unterscheiden. Punkte, die auf das Verhältnis von IPed-ZU-Eingangs-RNA für einzelne biologische Replikationen hinweisen. (C) Wenn RNA-Extraktionskits (Tabelle der Materialien) verglichen wurden, übertraf Kit 2 Kit 1 signifikant. Obwohl beide Kits eine ähnliche Menge an RNA aus Negativkontrollen ausleiteten, führte Kit 2 zu einer deutlich höheren RNA-Ausbeute aus positiven Proben. * gibt p < 0,05, ** p < 0,025, *** p < 0,01 an. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.

Abbildung 5: Anwendung der Methode auf ein mutiertes Modell. (A) Das Probengen des Interesses genotyp bestätigt durch Western Blotting mit einem benutzerdefinierten hauseigenen Antikörper gegen das Gen von Interesse Protein zeigt Gen von Interesse -/- (M/M) Männchen nicht das zugehörige Protein zu produzieren. GAPDH als Ladesteuerung dargestellt. (B) Grafischer Bioanalyzer-Ausgang aus gepaarten Eingangs- und IPed-Samples für Wildtyp- und Mutantenproben. (C) Vergleich der RNA-Integritätsnummern (RIN) nach Probentyp und Genotyp. (D) Durchschnittliche Nukleotidlänge von RNA-Arten, die von Bioanalyzer nach Probentyp und Genotyp analysiert werden. * zeigt p < 0,05, ** p < 0,025, *** p < 0,01, N.S. nicht signifikant an. N = 4 pro Genotyp. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
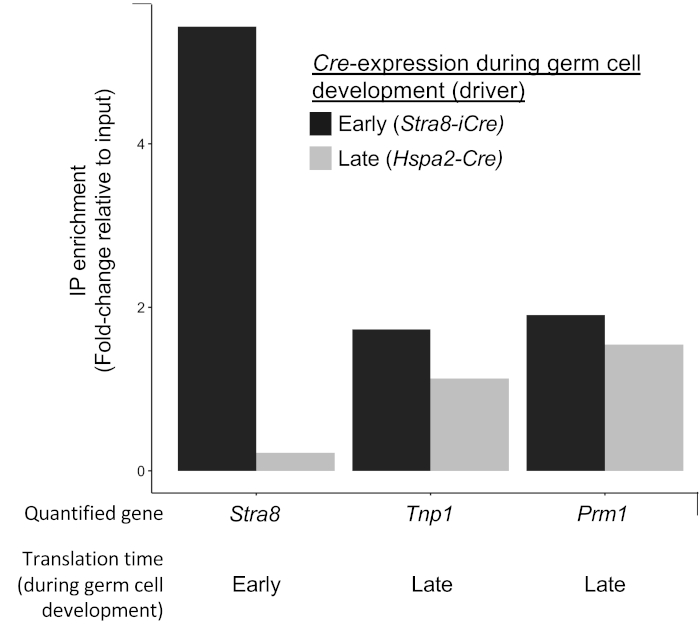
Abbildung 6: Beispiel für die Bestätigung des Cre-Treibers. Quantifizierung eines Gens, das früh in der Keimzellentwicklung (Stra8) übersetzt wurde, und zwei Genen, die spät in der Keimzellentwicklung übersetzt wurden (Tnp1 und Prm1), analysiert durch qRT-PCR von RNA immunpräzipiert aus RPL22-HA, angetrieben von zwei verschiedenen Keimzellen Cres, Stra8-iCre (früh in der Keimzellentwicklung exprimiert) und Hspa2-Cre (ausgedrückt später in der Keimzellentwicklung, speziell nach Stra8-Übersetzung). Hierbei wird HA-IP von Stra8 mit dem frühen Keimzelltreiber Cre erreicht, aber nicht mit dem späteren Keimzell-Cre-Treiber, der die Zellspezifität der Immunpräzipitation demonstriert. Im Gegensatz dazu wird HA-IP von Transkripten, die in späte Keimzellen übersetzt werden, sowohl von Stra8-iCre als auch von Hspa2-Creerreicht. Dies wird erwartet, da Zellen, die Stra8-iCre ausdrücken, während der gesamten Entwicklung HA-markierte RPL22 erzeugen werden, während diejenigen, die Hspa2-Cre exprimieren, dies nur in den späteren Teilen ihrer Entwicklung tun werden. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
Diskussion
Das Verständnis des Translatoms eines bestimmten Zelltyps ist von unschätzbarem Wert, um die Physiologie einer Zelle im normalen oder mutierten Zustand genauer zu verstehen. Besonderer Nutzen liegt in Systemen, bei denen die Übersetzung von der Transkription abgekoppelt ist, z. B. im neuronalen Gewebe, wo die Übersetzung sehr weit von der Transkription entfernt erfolgt, oder in Keimzellen, in denen die Transkription lange vor der Translation erfolgt. Im Vergleich zu anderen Methoden der Translatome-Analyse kommt der größte Vorteil des RiboTag-Systems aus dem Einsatz des Cre-Rekombinatoase-Systems. Dies ermöglicht die Freiheit, jede Zellpopulation anzusprechen, die einen relevanten Cre-Treiber hat. Zweitens ist die RiboTag IP, wie hier beschrieben, effektiv und viel weniger technisch anspruchsvoll und zeitaufwändig als polysome oder ribosom Profiling. Schließlich kann RiboTag IP einfach an der Tischplatte durchgeführt werden.
Es gibt eine Reihe wichtiger Schritte in diesem Protokoll. Dazu gehört vor allem die Etablierung der RiboTag-Mauslinie und die Erzeugung von Versuchstieren zum Studium. Wie bei allen genetischen Modellen sollte eine sorgfältige Verfolgung von Individuen innerhalb der Mauskolonie sowie sorgfältige Genotypisierungsprotokolle angewendet werden. DIE PCR-Genotypisierung nach Sanz et al. sollte Primer enthalten, die auf die loxP-Stelle 5' des Wildtyps exon 4 abzielen, um zwischen Wildtyp-Allele (260 bp) und Mutant (290 bp)13zu unterscheiden. Für die RiboTag-Analyse in Keimzellmodellen sollten sehr spezifische Zuchtanforderungen eingehalten werden. Erstens sollten bei Mutanten, die zu Unfruchtbarkeit führen, durchdachte Zuchtstrategien Methoden zur Optimierung der Anzahl der Nachkommen mit dem gewünschten Genotyp in mittleren und experimentellen Generationen enthalten. Zweitens sollte bei keimzellspezifischen Cresangesichts der Empfindlichkeit der Keimzellen gegenüber der Cre-Toxizität Vorsicht walten. In der Keimzelle können hohe Konzentrationen von Cre-Protein schädliche Wirkungen haben22, die die Verwendung von Cre/Cre-Tieren in der Zucht verbieten. Schließlich ist es bei der Verwendung der Keimzelle Cres wichtig, das RiboTag-Allel aus der Cre zu isolieren, bis die endgültige Generation als Cre-Expression in der Keimzelle einer Zwischengeneration dazu führt, dass Nachkommen Rpl22-HA global exemiten.
Unabhängig vom Zellsystem sind eine Reihe von empfohlenen Steuerelementen möglich, um die Robustheit sowohl des Cre-Ausdrucks als auch der Spezifität zu überprüfen. Die richtige Expression Ihrer Cre und die erwartete Exzision von Rpl22-HA können mit mehreren Methoden bestimmt werden. Im ersten kann Gewebe, das von Versuchstieren isoliert wurde, entweder mit Immunhistochemie oder Immunfluoreszenz15für HA gebeizt werden. Diese Methode ist insofern optimal, als sie keine a priori Kenntnisse der übersetzten mRNAs in den Zielzellentypen erfordert. Die zweite Methode, ein Beispiel dafür in Abbildung 6, erfordert einige Kenntnisse der translational regulierten Nachrichten in den Zielzellentypen. Bei dieser Methode kann die Anreicherung für eine bekannte translational regulierte mRNA vom ausgewählten Cre-Treibermit quantitativer PCR von IPed versus Input RNA bestätigt werden. Ebenso kann die robuste Rpl22-HA-Expression durch den Vergleich von Cre+/Rpl22+ Proben (positive Kontrollen) mit Cre-/Rpl22+ oder Cre+/Rpl22-Proben bestätigt werden, die als effektive Negativkontrollen fungieren (siehe Abbildung 3). Diese Vergleiche können entweder auf der gesamten IPed-RNA oder anreichern für eine bekannte translational regulierte mRNA durchgeführt werden, die mit qRT-PCR oder einer anderen quantitativen Methode bewertet wird.
Häufige Probleme bei der Ausführung des Protokolls treten in der Regel erst dann auf, wenn die RNA-Ausbeute unerwartet niedrig oder hoch ist. Die häufigste Ursache für diese Ausfälle sind falsche Genotypisierung von Individuen. Wir empfehlen, zusätzliches Gewebe aus der gesammelten Probe zu behalten, um Genotypen aller Proben bei unerwarteten RNA-Ausbeuten zu bestätigen. Nach der Bestätigung sollten andere Möglichkeiten in Betracht gezogen werden, einschließlich der Möglichkeit einer RNase-Kontamination oder eines Probenabbaus. Eine sorgfältige Probenlagerung und Handhabung und Wartung von RNase-Freizonen im Labor kann diese Probleme erheblich reduzieren oder beseitigen. Obwohl PROBLEME bei der RNA-Isolation ein weiteres potenzielles Problem in diesem Protokoll sind, reduziert die Verwendung kommerzieller Kits dieses Problem erheblich, obwohl darauf geachtet werden sollte, dass sie als RNase-frei erhalten bleiben und keine abgelaufenen Lösungen enthalten. Schließlich haben, wie bei allen Antikörper-basierten Verfahren, Schwankungen der Partie, Lagerbedingungen, Konzentration oder sogar Versand das Potenzial, die Qualität des Antikörpers und den anschließenden Erfolg des Pulldowns negativ zu beeinflussen. Daher haben wir uns nach sorgfältigen und wiederholten Tests für den konsistentesten und effizientesten Antikörper entschieden.
Dieses Protokoll enthält zwei wichtige Änderungen im Vergleich zu anderen veröffentlichten RiboTag-Protokollen, die die Erfolgswahrscheinlichkeit erheblich erhöhen. Eine davon ist die Fähigkeit, eingefrorenes Flash-Gewebe zu verwenden, wodurch Probleme mit Los-, Techniker- oder technischen Laufvariationen gemildert werden. Proben können gesammelt und gelagert werden, um die Isolierung von HA-Ribosomen von allen Proben auf einmal zu ermöglichen, wodurch die wichtigsten Variationsquellen gesenkt werden. Zweitens reduziert das Hinzufügen des Preclear-Schritts die Art des Hintergrunds, der von anderen Benutzern des RiboTag-Systems gemeldet wird, erheblich. Kürzlich weist ein Protokollbericht von Sanz et al. auf das Vorhandensein eines hohen Hintergrunds aufgrund der Fülle von Ribosomen-assoziierten Transkripten ausnicht-cre-getriebenen Zellen14hin. Unser Protokoll behebt dieses Problem, indem es einen Preclearing-Schritt einschließt, wodurch das Vorhandensein von RNA in Cre-negativen IP-Proben effektiv beseitigt wird.
Wie alle Systeme sollten auch die inhärenten Einschränkungen des RiboTag-Systems im Auge behalten werden. Bei Verwendung von nicht charakterisierten Cre-Treibern sollte die Analyse des Ausdrucks vor der experimentellen Probenproduktion durchgeführt werden. Aus der Perspektive der Übersetzung sind mehrere Nuancen dieser Methode zu beachten. Erstens erlaubt RiboTag keine Differenzierung zwischen mRNAs, die übersetzt werden sollen, und solchen, die aktiv übersetzen. Daher erlauben die aktuellen RiboTag-basierten Methoden die Quantifizierung der Übersetzungseffizienz in Abhängigkeit von einzelnen mRNAs nicht. Wenn die Übersetzungseffizienz von Interesse ist, kann sie zellspezifisch gemessen werden, wenn die RiboTag-Methode mit anderen translatome Analysewerkzeugen wie Polysomenprofilierung kombiniert wird. Zweitens ist es von grundlegender Bedeutung, die gesamten RNA-Überflussveränderungen zu berücksichtigen, die sich aus individueller oder genotypabhängiger Varianz ergeben. Aus diesem Grund begleitet eine sorgfältige Isolierung der Eingangs-RNA die Immunpräzipitation und die von ihnen gewonnenen Proben bleiben in allen nachgelagerten Analysen gepaart. Was schließlich die RiboTag-basierte Analyse betrifft, so ist daran zu erinnern, dass die Assoziation mit einem Ribosom nicht unbedingt beweist, dass eine Übersetzung stattfindet. Sekundäre Analysemethoden sollten durchgeführt werden, um die translationale Regulierung in den Zielen von Interesse zu bestätigen.
Dieses Protokoll beschreibt die Isolierung von ribosomassoziierten RNAs aus den Keimzellen männlicher Mäuse unter Verwendung des RiboTag-Modells. Nicht berücksichtigt für Die MausZucht und Probenentnahme, dauert das Protokoll zwei Tage, mit drei Stunden am ersten Tag, am besten am Nachmittag, eine Nacht inkubation, gefolgt von fünf Stunden Arbeit am folgenden Morgen. Es wird dringend empfohlen, die Vorbereitung von Stofflösungen (HB und HSWB) sowie Gewebeschleifen im Voraus zu machen. Der Gesamterfolg des Protokolls ist auf korrekte Genotypisierung und streng RNase-freie Bedingungen angewiesen. Die Möglichkeit, das Translatome bestimmter Zelltypen zu untersuchen, wird es zukünftigen Studien ermöglichen, die Beziehung zwischen Transkription, Übersetzung und dem Proteom in unzähligen Zelltypen und mutierten Hintergründen besser zu verstehen.
Offenlegungen
Die Autoren haben nichts zu verraten.
Danksagungen
Diese Arbeit wurde durch das NIH-Stipendium NICHD R00HD083521 an EMS und interne Unterstützung von der Rutgers University an EMS finanziert.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 1 mL mechanische Pipette | Präferenz des Forschers | ||
| 1,4-Dithio-DL-threitol (8% | Alfa Aesar | A15797 | |
| 1,7 mL oder 2 mL Röhrchen | Präferenz des Forschers | ||
| 10 mL konische Röhrchen | Präferenz des Forschers | ||
| 10 mL serologische Pippetten | Präferenz des Forschers | ||
| 10 μl mechanische Pipette | Präferenz des Forschers | ||
| 20 μl mechanische Pipette | Präferenz des Forschers | ||
| 200 μl mechanische Pipette | Präferenz des Forschers | ||
| 5 ml serologische Pipetten | Präferenz des Forschers | ||
| 50 ml konische Röhrchen | Präferenz des Forschers | ||
| Anti-HA-Tag Antikörper | Abcam | ab18181 | Antikörper 1 |
| Anti-HA-Tag-Antikörper | Antibodies.com | A85278 | Antikörper 2 |
| B6. FVB-Tg(Stra8-icre)1Reb/LguJ Mäuse | The Jackson Laboratory | 17490 | Oder Mäuse mit Cre Treiber der Wahl |
| B6N.129-Rpl22tm1.1Psam/J | Mäuse The Jackson Laboratory | 11029 | |
| Tischzentrifuge | Präferenz des Forschers | ||
| C1000 Touch Thermocycler | BioRad | 184-1100 | Oder gleichwertiger Thermocycler |
| Centrifuge 5424 R | Eppendorf | 5404000537 | Oder gleichwertige gekühlte Zentrifuge |
| Cyclohexamid | Sigma Aldrich | C7698-1g | |
| Sezierschere | Präferenz des Forschers | ||
| Dynabeads Protein G für die Immunpräzipitation | Invitrogen von ThermoFisher Scientific | 10009D | |
| DynaMag-2 Magnetgestell | Invitrogen von ThermoFisher Scientific | 12321D | |
| E.Z.N.A. Total RNA Kit 1 | OMEGA | 6834-01 | Kit 1 |
| Wärmeblock | Präferenz des Forschers | ||
| Heparin | Sigma Aldrich | 84020 | |
| Magnesiumchlorid (MgCl2) | Sigma Aldrich | M9272-500g | |
| Mikrodissektionszange | Präferenz des Forschers | ||
| Mikrodissektionsschere | Präferenz des Forschers | ||
| MiRNeasy-Kit | Qiagen | 217004 | Kit 2 |
| NanoDrop One Mikrovolumen-UV-Vis-Spektralphotometer mit Wi-Fi | ThermoFisher Scientific | ND-ONE-W | Oder gleichwertiges Spektralphotometer |
| NP-40 Alternative - CAS 9016-45-9 - Calbiochem | Millipore Sigma | 492016 | |
| Pierce Protease-Inhibitor Tabletten, EDTA-frei | ThermoFisher Scientific | A32965 | |
| Kalium (KCl) | Sigma Aldrich | P3911-2,5 kg | |
| RNase-Hemmer, Maus | New England BioLabs Inc. | M0314 | |
| SI vortex-genie 2 | Scientific Industries | SI-0236 | Oder gleichwertiger Tischwirbel |
| Spitzen für 1 mL mechanische Pipette | Präferenz des Forschers | ||
| Tipps für 10 μl mechanische Pipette | Präferenz des Forschers | ||
| Tipps für 20 μl mechanische Pipette | des Forschers | ||
| Tipps für 200 μl Mechanische Pipette | Präferenz des Forschers | ||
| Tris Base (weiße Kristalle oder kristallines Pulver/Molekularbiologie) | ThermoFisher Scientific | BP152-500 | |
| Tube Revolver / Rotator | ThermoFisher Scientific | 88881001 | Oder gleichwertiger Rotator |
| VWR Powerpette Plus Pipettierhilfe | VWR | 75856-450 | Oder gleichwertige Pipettierhilfe |
Referenzen
- Snyder, E. M., et al. Gene expression in the efferent ducts, epididymis, and vas deferens during embryonic development of the mouse. Developmental Dynamics. 239 (9), 2479-2491 (2010).
- Snyder, E. M., Small, C. L., Li, Y., Griswold, M. D. Regulation of gene expression by estrogen and testosterone in the proximal mouse reproductive tract. Biology of Reproduction. 81 (4), 707-716 (2009).
- Iguchi, N., Tobias, J. W., Hecht, N. B. Expression profiling reveals meiotic male germ cell mRNAs that are translationally up- and down-regulated. Proceedings of the National Academy of Sciences of United States of America. 103 (20), 7712-7717 (2006).
- Busada, J. T., et al. Retinoic acid regulates Kit translation during spermatogonial differentiation in the mouse. Developmental Biology. 397 (1), 140-149 (2015).
- Kleene, K. Patterns of translational regulation in the mammalian testis. Molecular Reproduction and Development. 43 (2), 268-281 (1996).
- Mali, P., et al. Stage-specific expression of nucleoprotein mRNAs during rat and mouse spermiogenesis. Reproduction Fertilility and Development. 1 (4), 369-382 (1989).
- Steward, O., Schuman, E. M. Protein synthesis at synaptic sites on dendrites. Annual Review of Neuroscience. 24, 299-325 (2001).
- Michel, A. M., Baranov, P. V. Ribosome profiling: a Hi-Def monitor for protein synthesis at the genome-wide scale. Wiley Interdisciplinary Reviews: RNA. 4 (5), 473-490 (2013).
- Snyder, E., et al. Compound Heterozygosity for Y Box Proteins Causes Sterility Due to Loss of Translational Repression. PLoS Genetics. 11 (12), 1005690(2015).
- Pringle, E. S., McCormick, C., Cheng, Z. Polysome Profiling Analysis of mRNA and Associated Proteins Engaged in Translation. Current Protocols in Molecular Biology. 125 (1), 79(2019).
- McGlincy, N. J., Ingolia, N. T. Transcriptome-wide measurement of translation by ribosome profiling. Methods. 126, 112-129 (2017).
- Aeschimann, F., Xiong, J., Arnold, A., Dieterich, C., Grosshans, H. Transcriptome-wide measurement of ribosomal occupancy by ribosome profiling. Methods. 85, 75-89 (2015).
- Sanz, E., et al. Cell-type-specific isolation of ribosome-associated mRNA from complex tissues. Proceedings of the National Academy of Sciences of United States of America. 106 (33), 13939-13944 (2009).
- Sanz, E., Bean, J. C., Carey, D. P., Quintana, A., McKnight, G. S. RiboTag: Ribosomal Tagging Strategy to Analyze Cell-Type-Specific mRNA Expression In Vivo. Current Protocols in Neuroscience. 88 (1), 77(2019).
- Sanz, E., et al. RiboTag analysis of actively translated mRNAs in Sertoli and Leydig cells in vivo. PLoS One. 8 (6), 66179(2013).
- Haimon, Z., et al. Re-evaluating microglia expression profiles using RiboTag and cell isolation strategies. Nature Immunology. 19 (6), 636-644 (2018).
- Ceolin, L., et al. Cell Type-Specific mRNA Dysregulation in Hippocampal CA1 Pyramidal Neurons of the Fragile X Syndrome Mouse Model. Frontiers in Molecular Neuroscience. 10, 340(2017).
- Puighermanal, E., et al. drd2-cre:ribotag mouse line unravels the possible diversity of dopamine d2 receptor-expressing cells of the dorsal mouse hippocampus. Hippocampus. 25 (7), 858-875 (2015).
- Chen, J., et al. Genome-wide analysis of translation reveals a critical role for deleted in azoospermia-like (Dazl) at the oocyte-to-zygote transition. Genes and Development. 25 (7), 755-766 (2011).
- Lesiak, A. J., Brodsky, M., Neumaier, J. F. RiboTag is a flexible tool for measuring the translational state of targeted cells in heterogeneous cell cultures. Biotechniques. 58 (6), 308-317 (2015).
- The Jackson Laboratory. B6.FVB-Tg(Stra8-icre)1Reb/LguJ. , The Jackson Laboratory. (2019).
- Bao, J., Ma, H. Y., Schuster, A., Lin, Y. M., Yan, W. Incomplete cre-mediated excision leads to phenotypic differences between Stra8-iCre; Mov10l1(lox/lox) and Stra8-iCre; Mov10l1(lox/Delta) mice. Genesis. 51 (7), 481-490 (2013).
Nachdrucke und Genehmigungen
