In diesem Protokoll beschreiben wir eine Methode zur gleichzeitigen Entnahme von fötalem Hirngewebe sowie hochwertigem, nicht hämolysiertem Serum aus demselben Mausembryo. Wir haben diese Technik verwendet, um zu untersuchen, wie sich die mütterliche Exposition gegenüber der Ernährung auf Makronährstoffprofile und die fetale Neuroentwicklung bei Mäusen auswirkt, die heterozygot für Nf1 (Neurofibromatose Typ 1) sind.
Methodenartikel
Gleichzeitige Entnahme von fötalem murinem Gehirn und Serum zur Beurteilung der Auswirkungen der mütterlichen Ernährung auf die Ernährung und Neuroentwicklung bei Neurofibromatose Typ 1
In diesem Artikel
Zusammenfassung
Zusammenfassung
Es wurde gezeigt, dass ernährungsbedingte Fettleibigkeit der Mutter die neurologische Entwicklung der Nachkommen verändert, was zu einer verminderten kognitiven Kapazität, Hyperaktivität und Beeinträchtigungen des Sozialverhaltens führen kann. Patientinnen mit der klinisch heterogenen genetischen Störung Neurofibromatose Typ 1 (NF1) können ähnliche Defizite aufweisen, aber es ist derzeit unklar, ob Umweltfaktoren wie die Ernährung der Mutter die Entwicklung dieser Phänotypen beeinflussen und wenn ja, durch welchen Mechanismus ein solcher Effekt auftreten würde. Um beurteilen zu können, wie sich die Exposition der Mutter gegenüber einer fett- und saccharosereichen Ernährung auf systemische Faktoren auswirkt, die für die Neuroentwicklung bei NF1 relevant sind, haben wir eine Methode entwickelt, um gleichzeitig nicht-hämolysiertes Serum und ganze oder regional mikropräparierte Gehirne von fötalen Nachkommen von murinen Muttertieren zu sammeln, die mit einer Kontrolldiät im Vergleich zu einer fett- und saccharosereichen Diät gefüttert wurden. Die Gehirne wurden für die Kryosektion aufbereitet oder schockgefroren, um sie für die anschließende RNA- oder Proteinisolierung zu verwenden. Die Qualität des entnommenen Gewebes wurde durch Immunfärbung verifiziert. Die Qualität des Serums wurde durch die Analyse von Makronährstoffprofilen verifiziert. Mit dieser Technik haben wir festgestellt, dass die mütterliche fettleibige Ernährung das fetale Serumcholesterin bei WT- und Nf1-heterozygoten Welpen in ähnlicher Weise erhöht.
Einleitung
Die Neurofibromatose Typ 1 (NF1) gilt als RASopathie, eine Gruppe von Erkrankungen, die durch genetische Mutationen in der Keimbahn gekennzeichnet sind, die zu einer Aktivierung des RAS/MAPK-Signalwegs (RAt-Sarkomvirus/Mitogen-aktivierte Proteinkinase) führen. Bei Patienten mit der NF1-RASopathie besteht das Risiko für die Entwicklung vieler verschiedener Manifestationen, darunter sowohl gutartige als auch bösartige Tumoren des zentralen (Gliom 1,2 der Sehbahn, hochgradiges Gliom 3,4) und peripheren (plexiformes Neurofibrom 5,6, bösartiger peripherer Nervenscheidentumor 7,8) des Nervensystems sowie knöcherne Dysplasien9 und Pigmentstörungen der Haut10 (Sommersprossen der Achsel, Café-au-lait-Makula). Die Auswirkungen dieser Störung auf die Kognition und die neurologische Entwicklung werden zunehmend erkannt, wobei NF1-Patienten eine erhöhte Inzidenz von Lerndefiziten, Hyperaktivität und Autismus-Spektrum-Störung aufweisen 11,12,13. Es gibt jedoch eine signifikante Heterogenität in der Entwicklung dieser Phänotypen zwischen den Patienten 13,14,15,16,17, und es ist unklar, warum einige Patienten signifikante kognitive Beeinträchtigungen aufweisen, während andere nicht betroffen sind. Es hat sich gezeigt, dass ernährungsbedingte Fettleibigkeit der Mutter das Lernen und Verhalten in der Allgemeinbevölkerung in ähnlicher Weise beeinflusst 18,19,20,21,22,23,24,25,26,27,28, was darauf hindeutet, dass die unterschiedliche ernährungsbedingte Exposition der Mütter bei NF1 eine Ursache für diese klinische Heterogenität sein könnte. Insbesondere Kinder von adipösen Müttern weisen ein erhöhtes Risiko auf, Hyperaktivität zu entwickeln 18,19,20,23,25,26, Autismus 19,24,27, Defizite der exekutiven Funktionen 21,23 und niedrigere IQ-Werte22,28. Patienten mit NF1 haben jedoch im Vergleich zur Allgemeinbevölkerung veränderte metabolische Phänotypen, einschließlich einer verringerten Inzidenz von Fettleibigkeit und Diabetes 29,30,31, was es unklar macht, ob sie ähnlich auf diätetische Reize reagieren würden.
Um diese Fragen zu beantworten, wollten wir herausfinden, ob durch eine amöogene Ernährung induzierte Veränderungen des Makronährstoffprofils bei fetalen Nachkommen mit Nf1 zu Veränderungen der neurologischen Entwicklung beitragen. Wir haben zuvor hochwertiges ganzes und regional mikropräpariertes Gewebe aus dem Gehirn des Fötus gesammelt, das für Anwendungen in der neurologischen Entwicklung geeignet ist32. Die Blutentnahme am Fötus ist jedoch aufgrund der geringen Körpergröße und des geringen Blutvolumens eine Herausforderung33. Die Entnahme von Blut über eine schwerkraftgestützte Drainage nach der Enthauptung führte zu geringen Entnahmevolumina und einer signifikanten Hämolyse in unseren Proben, was sich auf die Interpretation der nachgelagerten Anwendung auswirken kann. Die Entnahme durch Aspiration aus dem fetalen Herzen oder den thorakalen Gefäßen, wie bereits berichtet wurde33, war technisch anspruchsvoll und führte auch zu einer häufigen Hämolyse. Aus diesem Grund haben wir eine Methode zur fetalen Serumentnahme entwickelt, bei der spezielle Kapillarröhrchen verwendet werden, um eine Entnahme mit höherem Volumen ohne signifikante Scherbelastung zu ermöglichen.
Hier stellen wir diese Methode vor, um gleichzeitig embryonale Gehirne und fetales Serum von Nf1-heterozygoten Welpen zu sammeln, die einer fett- und zuckerreichen Diät im Vergleich zu einer Kontrolldiät in utero ausgesetzt waren (Abbildung 1 und ergänzende Tabelle S1). Die Gehirne wurden für die anschließende Analyse durch Immunfluoreszenz kryoeingebettet oder regional mikropräpariert und schockgefroren für die anschließende Verwendung in molekularbiologischen Anwendungen. Es wurde hochwertiges Serum gewonnen, das sich für nachgelagerte Anwendungen wie die Erstellung von Makronährstoffprofilen eignet. Mit dieser Methode haben wir festgestellt, dass eine mütterliche Exposition mit hohem Fett- und Saccharosegehalt zu einem Anstieg des Serumcholesterinspiegels sowohl bei WT- als auch bei Nf1-heterozygoten Welpen führt.
Protokoll
Alle tierexperimentellen Verfahren in dieser Studie folgten den NIH-Richtlinien und wurden vom Institutional Animal Care and Use Committee der Washington University in St. Louis genehmigt. Die Tiere wurden mit standardmäßigem 12-stündigem Hell-Dunkel-Radfahren und freiem Zugang zu Futter und Wasser untergebracht.
1. Ernährung der Mutter
- Setzen Sie weibliche Mäuse im Alter von 4 Wochen auf Kontrollfutter (CD) oder fettleibige Diät (Ob).
- Richten Sie im Alter von 8-12 Wochen eine zeitgesteuerte Paarung ein, indem Sie den Schleimpfropfen des Muttertiers am frühen Morgen überwachen, um das richtige Entnahmealter zu bestimmen. Um ernährungsbedingte Fettleibigkeit zu überprüfen, wiegen Sie Weibchen bei der Paarung.
HINWEIS: Für die anfängliche Paarung wurde ein Zeitraum von 8-12 Wochen verwendet, um sicherzustellen, dass die mit fettleibigem Futter gefütterten Weibchen im Vergleich zu ihren Artgenossen übergewichtig waren, was nicht immer im Alter von 8 Wochen der Fall war. Der Tag des Plugs gilt als embryonaler Tag 1 (E1), und alle in dieser Studie verwendeten Tiere wurden bei E19 gesammelt. Der späte fetale Zeitpunkt wurde aufgrund von neurologischen Entwicklungsveränderungen gewählt, die zuvor zu diesem Zeitpunkt bei fettleibigen, der Ernährung exponierten Tieren beobachtet worden waren (Daten nicht gezeigt).
2. Entnahme des Fötus aus dem Damm
- Stellen Sie zunächst sicher, dass das Muttertier trächtig erscheint (Bauchform und -fülle, abdominale Palpation oder Bewegung des Fötus). Im Zweifelsfall wiegen Sie die Hündin erneut, um die Gewichtszunahme zu messen.
HINWEIS: Spät schwangere Mäuse sollten eine Gewichtszunahme von mindestens 3-4 g aufweisen. Um die Wahrscheinlichkeit einer Empfängnis im gewünschten Zeitrahmen zu erhöhen, kann schmutziges (urin- und pheromonhaltiges) Sägemehl aus dem Käfig eines Männchens 3 Tage lang täglich vor der Paarung in den Käfig des Weibchens gegeben werden, um Brunst34 auszulösen. - Euthanasiere den Damm, indem du ihn mit einem Papiertuch mit 3 ml Isofluran in eine Kammer legst, wobei darauf zu achten ist, dass kein direkter Kontakt zwischen dem Muttertier und dem anästhesiegetränkten Papiertuch entsteht. Nachdem das Tier sediert ist, legen Sie es auf ein Papiertuch, halten Sie es am Schwanz fest, platzieren Sie eine Präparierschere am Hals und drücken Sie dann die Schere nach oben in Richtung Kopf, um eine Gebärmutterhalsluxation durchzuführen. Alternativ können Sie nach einer Isofluran-Sedierung eine Enthauptung durchführen.
HINWEIS: In diesem Schritt kann das Serum aus dem Mutterkorn entnommen werden, wobei eine ähnliche Methode wie unten beschrieben angewendet wird, jedoch mit größeren Kapillarröhrchen. Wenn dies gewünscht ist, sollte eine Enthauptung anstelle einer Gebärmutterhalsluxation durchgeführt werden. Es sollte darauf geachtet werden, dass der interessierende Phänotyp durch die Verabreichung von Isofluran unmittelbar vor der Euthanasie nicht verändert wird. - Legen Sie den Damm mit der Bauchseite nach oben in eine 100 mm Schale. Kneifen Sie die Haut zusammen, die den Bauch bedeckt, und machen Sie mit einer Präparierschere einen Schnitt in der Mittellinie. Machen Sie zusätzliche Schnitte senkrecht zum Mittellinienschnitt, um Hautlappen zu schaffen, die die Gebärmutter mit den Embryonen freilegen.
- Ziehe die Gebärmutter aus der Bauchhöhle. Trennen Sie die Gebärmutter mit einer Schere vom Muttertier. Legen Sie den intakten Embryonalsack ("Perlen an einer Schnur") mit den Embryonen in eine Schale mit kaltsteriler 1x phosphatgepufferter Kochsalzlösung (PBS). Stellen Sie die Schale mit den Föten auf Eis.
HINWEIS: Da jeder Wurf in der Regel 6-10 Jungtiere enthält, die sowohl für das Gehirn als auch für das Serum entnommen werden, werden die Föten auf Eis gehalten, um einen Gewebeabbau zu vermeiden. Das Setzen von Welpen auf Eis gewährleistet zusätzlich eine angemessene Euthanasie der Welpen, da die mütterliche Euthanasie allein nicht immer ausreicht. Wenn nur eine Serumentnahme gewünscht wird, kann eine Entnahme bei Raumtemperatur bevorzugt werden.
3. Sammlung von fötalem Serum
- Entferne den Fötus aus dem Embryonalsack, indem du ihn vorsichtig mit einer Pinzette #5 präparierst. Übertragen Sie den Embryo mit einer gebogenen Pinzette in eine Schale mit frischem, kaltem, sterilem 1x PBS.
- Tupfen Sie das Tier vorsichtig auf ein Papiertuch, um Fruchtwasserreste und PBS von der Probe zu entfernen.
- Halten Sie das Tier am Bauch fest. Enthaupten Sie das Tier teilweise mit einer Mikroschere, indem Sie einen Schnitt am Bauchhals machen. Stellen Sie sicher, dass die Blutgefäße durchtrennt sind, aber die Haut, die den Kopf hält, noch befestigt ist.
HINWEIS: Der Kopf muss befestigt bleiben, damit gleichzeitig Blut aus dem Körper und dem Kopf entnommen werden kann. - Halten Sie den Körper in einem Winkel von 45° mit dem Schnitt nach unten. Halten Sie die 50 μL Minivette (Kapillarröhrchen) parallel zur Inzisionsstelle des Mutters, wo das Blut einen Tropfen bildet. Lassen Sie das 50 μL Kapillarröhrchen vorsichtig mit Blut füllen.
HINWEIS: Das Kapillarröhrchen x2 oder das 100 μl Kapillarröhrchen kann verwendet werden, um bis zu ~75 μl Blut zu sammeln. - Legen Sie den Kopf in eine frische 60-mm-Schale mit kaltem, sterilem 1x PBS für die weitere Gewebeentnahme (Abschnitt 4).
- Nachdem sich das Blut im Kapillarröhrchen befindet, drücken Sie den Kolben schnell in ein 1,5-ml-Röhrchen. Schnippe an der Tube oder drehe sie schnell, um sicherzustellen, dass sich das Blut am Boden der Tube befindet.
- Wiederholen Sie dies für den Rest der Einstreu.
HINWEIS: Es ist wichtig, die Welpen auf Eis zu halten und schnell zwischen ihnen zu wechseln, um das Risiko einer postmortalen Gerinnung zu verringern, die das Entnahmevolumen begrenzt. - Das Blut bei Raumtemperatur 30 min gulinieren lassen.
- Zentrifugieren Sie die Blutproben bei 4 °C, 16.000 × g für 20 min.
- Füllen Sie das Serum mit einer 200-μl-Pipette in frische 500-μl-Röhrchen um, ohne das Blutzellenpellet am Boden des Röhrchens zu stören.
HINWEIS: Das Serum sollte strohfarben sein und keine roten Ablagerungen enthalten. Jeder Fötus sollte 15-30 μl Serum abgeben. - Lagern Sie das gesammelte Serum bei -80 °C.
4. Entnahme des fetalen Gehirns
- Schauen Sie durch das Präpariermikroskop, halten Sie die Schnauze mit einer gebogenen Pinzette fest und ziehen Sie mit der Pinzette #5 vorsichtig die Haut von der Schädelkappe ab, wobei Sie sie an der Schnauze befestigt halten, damit sie leichter gehalten werden kann. Winkeln Sie die Pinzette #5 um 45° relativ zum Schädel, durchstechen Sie vorsichtig die klare Membran, die der sich entwickelnde Schädel ist, verschieben Sie die Pinzette parallel zum Schädel, führen Sie sie unter die Schädelkappe ein und kneifen und schälen Sie sie dann zur Seite. Nachdem eine Seite entfernt wurde, fassen Sie die verbleibende Seite mit der Pinzette #5 und schälen Sie sie zur anderen Seite.
- Schöpfen Sie das Gehirn vorsichtig mit einem Mikrolöffel aus dem Schädel und geben Sie das Gehirn in eine frische 60-mm-Schale mit kaltem 1x PBS.
HINWEIS: Zu diesem Zeitpunkt können ganze Gehirne fixiert und für die Immunfärbung eingebettet werden. Siehe die zuvor veröffentlichte Methodik32. - Wenn Gewebe für andere molekulare Anwendungen schockgefroren werden muss, zerlegen Sie den interessierenden Bereich. Die Isolierung des periventrikulären Gewebes um den lateralen, dritten und vierten Ventrikel wird im Folgenden beschrieben.
- Halten Sie das Gehirn mit der gebogenen Pinzette an der Verbindung von Hinterhirn und Vorderhirn mit der nicht dominanten Hand. Halten Sie mit der dominanten Hand das Skalpell mit der Klinge parallel zur Oberfläche des Gehirns. Drücken Sie in der mittleren kortikalen Region fest nach unten (Abbildung 1).
- Halten Sie das Hinterhirn fest und machen Sie einen zweiten Schnitt vor dem Hinterhirn, um es vom Vorderhirn zu trennen (Abbildung 1). Suchen Sie im vordersten Abschnitt nach zwei kleinen halbkreisförmigen Räumen in der horizontalen Ebene, die die lateralen Ventrikel sind. Verwenden Sie die gebogene Pinzette, die in der Mitte jedes Ventrikels platziert ist, um das Gehirn an Ort und Stelle zu halten, präparieren Sie die Auskleidung vorsichtig mit der Pinzette #5 und nehmen Sie sie in ein frisches, sauberes 1,5-ml-Mikrozentrifugenröhrchen.
- Suchen Sie im mittleren Abschnitt nach einem kleinen linearen Raum auf der ventralen Fläche, dem dritten Ventrikel. Mit der Pinzette #5 das Futter auf beiden Seiten der Ventrikeloberfläche vorsichtig abkneifen und dann in ein frisches, sauberes 1,5-ml-Mikrozentrifugenröhrchen geben.
- Suchen Sie im hintersten Abschnitt nach einem kleinen linearen Raum in der Mitte des Hinterhirns, dem vierten Ventrikel. Präparieren Sie die Auskleidung auf beiden Seiten mit einer Pinzette #5 und nehmen Sie sie dann in ein frisches, sauberes 1,5-ml-Mikrozentrifugenröhrchen.
HINWEIS: Wenn das Schneiden des Hinterhirns kein sauberer Schnitt ist, kann das Gewebe des vierten Ventrikels verdeckt und/oder zerstört werden. - Für die Schritte 4.3.2 bis 4.3.4 werden die Röhrchen unmittelbar nach dem Einlegen des Gewebes in Mikrozentrifugenröhrchen schnell in einen kryosicheren Behälter mit flüssigem Stickstoff gegeben.
HINWEIS: Die Röhrchen können in flüssigem Stickstoff aufbewahrt werden, bis die restlichen Proben präpariert wurden. ACHTUNG: Flüssiger Stickstoff kann schwere Erfrierungen verursachen. Halten Sie die Hände nicht direkt in flüssigen Stickstoff und vermeiden Sie Spritzer. - Legen Sie die gefrorenen Röhrchen auf Trockeneis und geben Sie das gefrorene Gewebe bis zur Verwendung in einen Gefrierschrank bei -80 °C.
Ergebnisse
Um die Qualität des mit dieser Technik gewonnenen Hirngewebes zu veranschaulichen, zeigen wir Probengehirne von Nestin-CFPnuc-Mäusen35, die gemäß einer zuvor berichteten Technik32 auf GFAP immungefärbt wurden. Nestin+-Zellen sind zu sehen, die den lateralen Ventrikel auskleiden (Abbildung 2A), wobei GFAP+-Filamente von der Oberfläche ausgehen. Wir beobachteten keine Unterschiede zwischen der Nestin- oder GFAP-Expression im lateralen Ventrikel von CD und Ob-exponierten Mäusen in WT- oder Nf1-heterozygoten Stämmen (Abbildung 2A,B). Als nächstes untersuchten wir die Qualität des mikropräparierten Gewebes. Wir führten zunächst Western Blotting36 für das Housekeeping-Protein β-Aktin an dem mikrodisezierten Gewebe durch, das aus den lateralen Ventrikeln von Zöliakie- und Ob-exponierten Mäusen isoliert wurde. Alle Proben zeigten wie erwartet eine starke Expression von β-Aktin (Abbildung 2C). Anschließend isolierten wir RNA aus dem mikropräparierten Gewebe gemäß der zuvor beschriebenen Methodik32. Isolierte RNA wies sowohl eine hohe Reinheit (260/280 ≥ 2) als auch eine hohe Integrität (RIN-Werte ≥ 9) auf, was auf eine hochreine, nicht abgebaute RNA hinweist (Abbildung 2D).
Anschließend verglichen wir die verschiedenen Methoden der Serumisolierung. Mit unserer Minivette-Methode sammelten wir routinemäßig größere Volumina an nicht hämolysiertem Serum, während die Schwerkraftdrainage und die Thoraxpunktion in vielen Proben zu einer sehr variablen Volumenentnahme und Hämolyse führten (Abbildung 3A,B). Um die Qualität des mit dieser Technik erhaltenen Serums zu veranschaulichen, haben wir den Gesamtcholesterinspiegel im Serum mit dem Gesamtcholesterinreagenz gemäß den Anweisungen des Herstellers gemessen. Die fetalen Cholesterinspiegel lagen innerhalb des erwarteten Bereichs für spätschwangere Jungtiere, basierend auf früheren Studien an menschlichen Föten37. Die Spiegel waren bei Ob-exponierten Mäusen im Vergleich zu CD-exponierten sowohl bei Wildtyp- (Abbildung 3C, links) als auch bei Nf1-heterozygoten Welpen (Abbildung 3C, rechts) erhöht. Beachten Sie, dass das rechte Feld kombinierte Daten von zwei verschiedenen Nf1-heterozygoten Stämmen mit patientenidentifizierten Keimbahnmutationen (R681X, C383X)32,38,39 zeigt, da bei beiden Stämmen ähnliche Profile zu sehen waren.
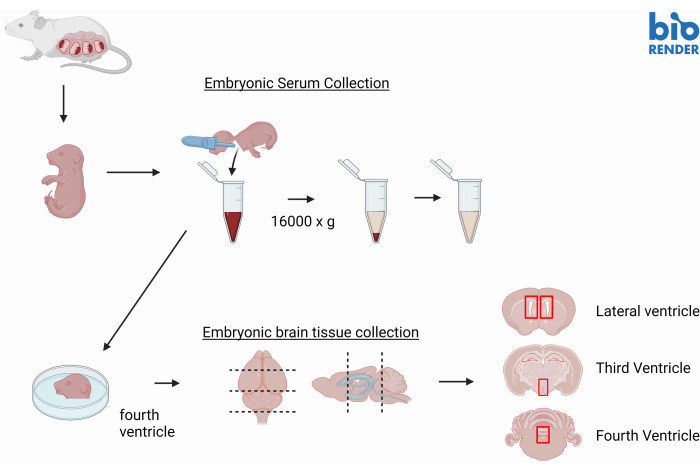
Abbildung 1: Grafische Zusammenfassung des Arbeitsablaufs. Die Jungtiere werden zunächst von trächtigen Muttertieren isoliert. Das Serum wird dann von den Welpen geerntet. Schließlich werden ganze Gehirne von Jungtieren isoliert und, falls gewünscht, für interessante Regionen mikropräpariert. Grafik erstellt mit BioRender.com. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
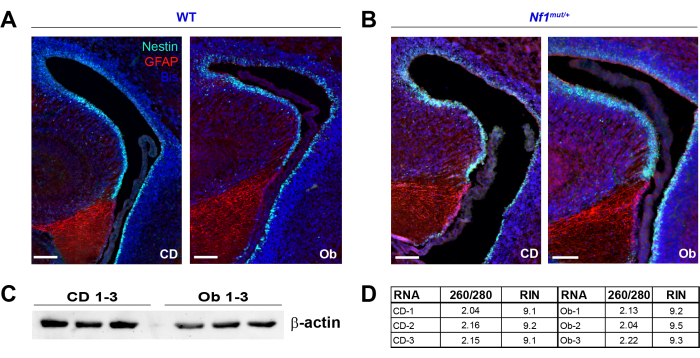
Abbildung 2: Illustrative Ergebnisse, Hirngewebe. (A) Kryosektionierte Gehirne von Nestin-CFPnuc-Mäusen , die unter der Kontrolle des Nestin-Promotors ein nukleär lokalisiertes cyanfluoreszierendes Protein exprimieren, wurden mit dieser Methode entnommen und gemäß der zuvor beschriebenen Methodik für GFAP (rot) immungefärbt32. Nestin-positive Zellen werden über die endogene Nestin-CFPnuc-Expression sichtbar gemacht (grün). Die Zellkerne wurden mit Bis-Benzimid (blau) gegengefärbt. Es gab keine signifikanten Unterschiede zwischen Zöliakie- und Ob-exponierten WT-Gehirnen. Maßstabsleiste = 100 μm. (B) Nestin-CFPnuc; Nf1mut/+ Jungtiere wurden in ähnlicher Weise bewertet. Die Verteilung von GFAP und Nestin-CFP schien ähnlich wie bei WT zu sein und variierte nicht mit den Ernährungsbedingungen. Maßstabsbalken = 100 μm. (C) Das Protein wurde aus mikropräpariertem Gewebe aus dem LV isoliert. Western Blotting wurde gemäß der zuvor beschriebenen Methodik36 durchgeführt, wobei 20 μg Protein pro Spur geladen wurden. Eine starke β-Aktin-Expression war in allen Proben nachweisbar. (D) RNA wurde aus mikropräpariertem Gewebe gemäß der zuvor berichteten Methode32 isoliert. Die RNA-Qualität wurde über 260/280-Verhältnisse und RIN-Werte bewertet. Alle Proben wiesen hervorragende 260/280-Verhältnisse (≥2) und RIN-Werte (≥9) auf, was auf eine gute Isolierung der nicht degradierten RNA hinweist. Abkürzungen: CFP = cyan fluoreszierendes Protein; GFAP = saures Protein der Gliafaser; WT = Wildtyp; LV = lateraler Ventrikel; RIN = RNA-Integritätszahl. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
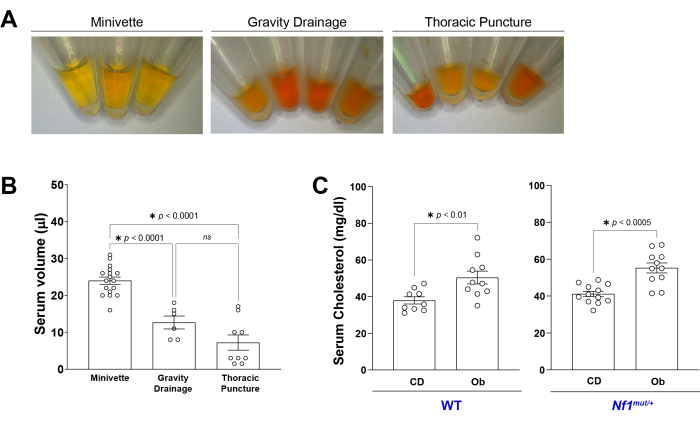
Abbildung 3: Illustrative Ergebnisse und Serum. (A) Das Serum wurde von jeder der beschriebenen Methoden entnommen. Die Entnahme mit der Minivette ermöglichte die routinemäßige Entnahme von unhämolysiertem Serum im Vergleich zur schwerkraftgestützten Drainage und Thoraxpunktion. (B) Typische Entnahmevolumina von Serum sind dargestellt. Die Minivette-Entnahme ermöglichte eine reproduzierbarere Entnahme größerer Serummengen. Statistische Signifikanz, bestimmt durch unidirektionale ANOVA mit mehreren Vergleichen. Fehlerbalken: SEM. (C) Das Gesamtserumcholesterin wurde aus Zöliakie vs. Ob-exponiertem WT (links) und Nf1-heterozygotem (rechts) gepooltem fetalem Serum gemessen; Ob-exponierte Tiere zeigten bei beiden Genotypen einen höheren Serumcholesterinspiegel. Statistische Signifikanz, bestimmt durch den t-Test. Fehlerbalken: SEM. Abkürzungen: WT = Wildtyp; CD = Kontrolldiät; Ob = fettleibige Ernährung. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
Ergänzende Tabelle S1: Zusammensetzungen der Nahrung. Die Zusammensetzung der in diesem Manuskript verwendeten Kontroll- und Fettleibigkeitsdiäten wird gezeigt. HINWEIS: Für eine fettarme Diät ohne Saccharose, die die einzelnen Nahrungsbestandteile in D12331 besser kontrolliert, kann die D12328-Diät (researchdiets.com) bevorzugt werden. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
Zu den traditionellen Methoden zur Blutentnahme von Mäusen gehören retrobulbäre Blutungen, Schwanzvenen, Stammvenen, Gesichtsvenen und Halsvenenblutungen 40,41,42. Leider sind diese Methoden aufgrund der Größe des Tieres und der kleinen, empfindlichen Gefäße nicht ideal für die embryonale Blutentnahme. Die Entnahme von Blut durch schwerkraftgestützte Drainage nach der Enthauptung führte in unseren Proben sowohl zu geringen Entnahmevolumina als auch zu einer signifikanten Hämolyse. Frühere Protokolle berichteten über verbesserte Volumina durch die Verwendung einer modifizierten 20-G-Nadel zur Entnahme von Blut aus den thorakalen Blutgefäßen33; Wir fanden diese Technik jedoch technisch herausfordernd und beobachteten hohe Hämolyseraten, was sie für viele nachgelagerte Anwendungen ungeeignet machte. Unsere Methode hat den Vorteil, dass die Entnahme über passiven Blutfluss erfolgt, wodurch das Risiko einer Hämolyse durch aspirationsinduzierten Stress verringert wird. Der Kolben am Kapillarrohr bietet auch eine schnelle und effiziente Möglichkeit, Blut in das Entnahmeröhrchen zu befördern, wodurch die Exposition gegenüber Luft minimiert und die Fragmentierung von Blutgerinnseln begrenzt wird. Wichtig ist, dass ganzes oder regional mikropräpariertes Hirngewebe anschließend vom selben Tier entnommen werden kann, wodurch der Gesamtbedarf an Versuchstieren reduziert wird.
Dieses Protokoll ist nicht ohne Anpassungen, um die Sammelqualität und -effizienz zu optimieren. Bei der Serumentnahme ist es wichtig, die Embryonalflüssigkeit und zusätzliches PBS vor der Blutentnahme vorsichtig aus dem Tier zu entfernen, da überschüssige Flüssigkeit das Tier rutschig machen und die Wahrscheinlichkeit einer schlechten oder instabilen Positionierung erhöhen kann, die sich negativ auf die Qualität der Blutentnahme auswirkt. Darüber hinaus ist die Positionierung der Finger beim Halten des Embryos von entscheidender Bedeutung, da das Blut während der Entnahme an einem behandschuhten Finger kleben bleibt, wenn der Finger an den Kapillarschlauch angrenzt. Es ist auch wichtig, die Öffnung des Kapillarrohrs neben dem fließenden Blut zu halten, anstatt in es einzutauchen. Die Kapillarsammlung wird gestört, wenn das Rohr untergetaucht wird. Schließlich muss man sich die Downstream-Anwendung genau überlegen, um die Serumgewinnung zu optimieren. Zum Beispiel wird Glukose im Laufe der Zeit in unbehandelten Röhrchen bei Raumtemperatur abgebaut, so dass eine Sammlung in Natriumfluorid- oder EDTA-haltige Röhrchen erforderlich sein kann, um den Glukosespiegel genau zu quantifizieren43,44.
Für die Entnahme von Hirngewebe ist die sorgfältige Entfernung der Haut und des transparenten Schädels auf beiden Seiten des Kopfes entscheidend für eine saubere Extraktion. Wird nur eine Seite wegpräpariert, kann es sein, dass das Gehirn mit dem Versuch der Entfernung am Schädel kleben bleibt, was zu einem Reißen und einer Verzerrung des Gewebes führt. Für die Sektion des Gehirns ist es wichtig, einfache, saubere Scheiben zu machen, um die vordere von der mittleren Rinde und die mittlere Rinde vom Hinterhirn zu trennen. Mehrere Schnitte können die strukturelle Integrität des Gewebes stören oder Ihren Referenzpunkt für die anschließende Mikrodissektion verdecken. Schließlich ist es entscheidend, die Proben bis zur Fixierung oder zum Gefrieren auf Eis zu halten, um eine Verschlechterung der Probe zu verhindern.
Obwohl wir diese Methode aufgrund der routinemäßigen Entnahme von nicht hämolysiertem Serum mit höherem Volumen bevorzugen, ist sie nicht ohne Nachteile. Obwohl die Hämolyse im Vergleich zu anderen Techniken reduziert ist, beseitigt diese Methode das Risiko nicht. Der Kapillarschlauch kann auch durch ein Blutgerinnsel verstopft werden, sobald das Blut nicht mehr fließt, daher ist es wichtig, nach der Enthauptung schnell zu arbeiten, um das Risiko einer fehlgeschlagenen Entnahme aufgrund von Gerinnung zu verringern. Die Aufbewahrung von Proben auf Eis, die zur Wahrung der Probenintegrität in diesem Protokoll erfolgt, kann sich ebenfalls negativ auf einige Phänotypen auswirken und ist möglicherweise nicht für alle Anwendungen geeignet.
Zusammenfassend lässt sich sagen, dass diese Methode verwendet werden kann, um sowohl Serum als auch ganze oder regional mikrodissektionierte Gehirne desselben Fötus gleichzeitig zu isolieren. Diese Technik kann verwendet werden, um zu untersuchen, wie systemische Faktoren, wie z. B. eine durch die Ernährung der Mutter induzierte Veränderung des Makronährstoffprofils, die neurologische Entwicklung bei NF1 oder anderen Störungen beeinflussen könnten.
Offenlegungen
Die Autoren haben keine Interessenkonflikte.
Danksagungen
N Brossier wird vom Francis S. Collins Scholars Program in Neurofibromatosis Clinical and Translational Research unterstützt, das vom Neurofibromatosis Therapeutic Acceleration Program (NTAP, Grant # 210112) finanziert wird. Diese Veröffentlichung wurde zum Teil durch eine Finanzierung des NTAP an der Johns Hopkins University School of Medicine unterstützt. Der Inhalt liegt ausschließlich in der Verantwortung der Autoren und gibt nicht unbedingt die offizielle Meinung der Johns Hopkins University School of Medicine wieder. Zusätzliche Unterstützung durch das St. Louis Children's Hospital (FDN-2022-1082 an NMB) und die Washington University in St. Louis Diabetes Research Core (NIH P30 DK020579). Die Mikroskopie wurde mit Hilfe des Washington University Center for Cellular Imaging (WUCCI) durchgeführt, das von der Washington University School of Medicine, dem Children's Discovery Institute der Washington University und dem St. Louis Children's Hospital (CDI-CORE-2015-505 und CDI-CORE-2019-813) sowie der Foundation for Barnes-Jewish Hospital (3770 und 4642) unterstützt wurde. Nestin-CFPnuc35 Mäuse wurden großzügig von Grigori Enikolopov (Renaissance School of Medicine, Stony Brook University, NY) zur Verfügung gestellt, und Nf1-Mäuse, die heterozygot für eine R681X- oder C383X-Keimbahnmutation 32,38,39 waren, wurden großzügig von David Gutmann (Washington University School of Medicine, St. Louis, MO) zur Verfügung gestellt. Abbildung 1 wurde mit BioRender.com erstellt.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| #5/45 Pinzette | Dumont | 11251-35 | Spitzenform: abgewinkelt 45°; |
| 4200 Tapestation | Agilent | G2991BA | Überprüfung der RNA-Integrität und -Qualität, Messung von RIN-Werten |
| Tischgerät Flüssigstickstoffbehälter | Thermo Fisher | 2122 | Oder ein anderer kryosicherer Behälter |
| Control Chow | PicoLab | 5053 | Forschungsdiäten D12328 (fettarm, zuckerarm) können ebenfalls verwendet werden. |
| Gebogene Pinzette | Cole Parmer | UX-10818-25 | Spitzenform: gebogen 90°; |
| Griff für Präparierklingen | Cole-Parmer Essentials | 10822-20 | SS Siegel-Type, #10 bis #15 Klingen |
| EMS SuperCut Dissektionsschere | Elektronenmikroskop wissenschaften | 72996-01 | 5½ " (139,7 mm), Gerader |
| GFAP-Antikörper | Abcam | ab7260 | Verdünnt 1:350. Mit 10% Serum mit 0,3 M Glycin blockieren. |
| Glassvan Chirurgische Klingen aus Kohlenstoffstahl, Größe 11 | MYCO medical | 2001T-11 | #11 Klingen ermöglichen einen geraden, flachen Schnitt |
| Mikro-Laborlöffel | Az Scilab | A2Z-VL001 | Edelstahl, autoklavierbar |
| Mikroschere | Rubis | 78180-1C3 | Modell 1C300 |
| Minivette POCT neutral | Sarstedt | 17.2111.050 | nominales Volumen: 50 µ L, ohne Präparat |
| Nanorop | Thermo Fisher | 13-400-519 | Messung der RNA-Konzentration, Verhältnis 260/280 |
| Fetthaltige Diät | Researchdiets.com | D12331 | Fettreiches, hochsaccharosereiches |
| Gesamtcholesterin-Reagenz | Thermo Fisher | TR13421 | kolorimetrischer Nachweis |
| β-Aktin-Antikörper | Zellsignalisierung | 8457 | Verdünnung 1:1.000. |
Referenzen
- Listernick, R., Darling, C., Greenwald, M., Strauss, L., Charrow, J. Optic pathway tumors in children: the effect of neurofibromatosis type 1 on clinical manifestations and natural history. J Pediatr. 127 (5), 718-722 (1995).
- Fisher, M. J., et al. Integrated molecular and clinical analysis of low-grade gliomas in children with neurofibromatosis type 1 (NF1). Acta Neuropathol. 141 (4), 605-617 (2021).
- Cimino, P. J., et al. Expanded analysis of high-grade astrocytoma with piloid features identifies an epigenetically and clinically distinct subtype associated with neurofibromatosis type 1. Acta Neuropathol. 145 (1), 71-82 (2023).
- Lucas, C. -H. G., et al. Multiplatform molecular analyses refine classification of gliomas arising in patients with neurofibromatosis type 1. Acta Neuropathol. 144 (4), 747-765 (2022).
- Fisher, M. J., et al. Management of neurofibromatosis type 1-associated plexiform neurofibromas. Neuro-Oncol. 24 (11), 1827-1844 (2022).
- Packer, R. J., et al. Plexiform neurofibromas in NF1. Neurology. 58 (10), 1461-1470 (2002).
- Evans, D. G. R., et al. Malignant peripheral nerve sheath tumours in neurofibromatosis 1. J Med Genet. 39 (5), 311(2002).
- Prudner, B. C., Ball, T., Rathore, R., Hirbe, A. C. Diagnosis and management of malignant peripheral nerve sheath tumors: Current practice and future perspectives. Neurooncol Adv. 2, Suppl 1 i40-i49 (2020).
- Ma, Y., et al. A molecular basis for neurofibroma-associated skeletal manifestations in NF1. Genet Med. 22 (11), 1786-1793 (2020).
- Ozarslan, B., Russo, T., Argenziano, G., Santoro, C., Piccolo, V. Cutaneous findings in neurofibromatosis Type 1. Cancers. 13 (3), 463(2021).
- Hyman, S. L., Shores, A., North, K. N. The nature and frequency of cognitive deficits in children with neurofibromatosis type 1. Neurology. 65 (7), 1037-1044 (2005).
- Morris, S. M., et al. Disease burden and symptom structure of autism in neurofibromatosis type 1: a study of the International NF1-ASD Consortium Team (INFACT). JAMA Psychiatry. 73 (12), 1276-1284 (2016).
- Geoffray, M. -M., et al. Predictors of cognitive, behavioural and academic difficulties in NF1. J Psychiatr Res. 140, 545-550 (2021).
- Monroe, C. L., Dahiya, S., Gutmann, D. H. Dissecting clinical heterogeneity in neurofibromatosis type 1. Ann Rev Pathol. 12 (1), 53-74 (2017).
- Kehrer-Sawatzki, H., Mautner, V. -F., Cooper, D. N. Emerging genotype-phenotype relationships in patients with large NF1 deletions. Hum Genet. 136 (4), 349-376 (2017).
- Hou, Y., et al. Predictors of cognitive development in children with neurofibromatosis type 1 and plexiform neurofibromas. Dev Med Child Neurol. 62 (8), 977-984 (2020).
- Biotteau, M., et al. Sporadic and familial variants in NF1: an explanation of the wide variability in neurocognitive phenotype. Front Neurol. 11, 368(2020).
- Rodriguez, A., et al. Maternal adiposity prior to pregnancy is associated with ADHD symptoms in offspring: evidence from three prospective pregnancy cohorts. Int J Obes (Lond). 32 (3), 550-557 (2008).
- Andersen, C. H., Thomsen, P. H., Nohr, E. A., Lemcke, S. Maternal body mass index before pregnancy as a risk factor for ADHD and autism in children). Eur Child Adolesc Psychiatry. 27 (2), 139-148 (2018).
- Pugh, S. J., et al. Gestational weight gain, prepregnancy body mass index and offspring attention-deficit hyperactivity disorder symptoms and behaviour at age 10. Bjog. 123 (13), 2094-2103 (2016).
- Mina, T. H., et al. Prenatal exposure to maternal very severe obesity is associated with impaired neurodevelopment and executive functioning in children. Pediatr Res. 82 (1), 47-54 (2017).
- Oken, E., et al. Analysis of maternal prenatal weight and offspring cognition and behavior: Results from the Promotion of Breastfeeding Intervention Trial (PROBIT) Cohort. JAMA Netw Open. 4 (8), e2121429-e2121429 (2021).
- Buss, C., et al. Impaired executive function mediates the association between maternal pre-pregnancy body mass index and child ADHD symptoms. PLOS ONE. 7 (6), e37758(2012).
- Li, Y. -M., et al. Association between maternal obesity and autism spectrum disorder in offspring: a meta-analysis. J Autism Dev Disord. 46 (1), 95-102 (2016).
- Dow, C., Galera, C., Charles, M. -A., Heude, B. Maternal pre-pregnancy BMI and offspring hyperactivity-inattention trajectories from 3 to 8 years in the EDEN birth cohort study. Eur Child Adolesc Psychiatry. 32 (10), 2057-2065 (2023).
- Fast, K., et al. Prevalence of attention-deficit/hyperactivity disorder and autism in 12-year-old children: A population-based cohort. Devl Med Child Neurol. 66 (4), 493-500 (2023).
- Carter, S. A., et al. Maternal obesity and diabetes during pregnancy and early autism screening score at well-child visits in standard clinical practice. Autism. 28 (4), 975-984 (2023).
- West, Z., et al. Relationships between maternal body mass index and child cognitive outcomes at 3 years of age are buffered by specific early environments in a prospective Canadian birth cohort. J Dev Orig Health Dis. 14 (1), 42-52 (2023).
- Gutmann, D. H., et al. Neurofibromatosis type 1. Nat Rev Dis Primers. 3, 17004(2017).
- Martins, A. S., et al. Lower fasting blood glucose in neurofibromatosis type 1. Endocr Connect. 5 (1), 28-33 (2016).
- Martins, A. S., et al. Increased insulin sensitivity in individuals with neurofibromatosis type 1. Arch Endocrinol Metab. 62 (1), 41-46 (2018).
- Brossier, N. M., Thondapu, S., Cobb, O. M., Dahiya, S., Gutmann, D. H. Temporal, spatial, and genetic constraints contribute to the patterning and penetrance of murine Neurofibromatosis-1 optic glioma. Neuro Oncol. 23 (4), 625-637 (2020).
- de Lurdes Pinto, M., et al. Technical Report: Mouse fetal blood collection taking the best out of the old needle-syringe method. Scandinavian Journal of Laboratory Animal Science. 35 (1), 5(2008).
- Musillo, C., et al. Bdnf-Nrf-2 crosstalk and emotional behavior are disrupted in a sex-dependent fashion in adolescent mice exposed to maternal stress or maternal obesity. Transl Psychiatry. 13 (1), 399(2023).
- Encinas, J. M., Vaahtokari, A., Enikolopov, G. Fluoxetine targets early progenitor cells in the adult brain. Proc Natl Acad Sci U S A. 103 (21), 8233-8238 (2006).
- Anastasaki, C., et al. Human induced pluripotent stem cell engineering establishes a humanized mouse platform for pediatric low-grade glioma modeling. Acta Neuropathol Commun. 10 (1), 120(2022).
- Cai, H. -J., Xie, C. -L., Chen, Q., Chen, X. -Y., Chen, Y. -H. The relationship between hepatic low-density lipoprotein receptor activity and serum cholesterol level in the human fetus. Hepatology. 13 (5), 852-857 (1991).
- Toonen, J. A., et al. NF1 germline mutation differentially dictates optic glioma formation and growth in neurofibromatosis-1. Hum Mol Genet. 25 (9), 1703-1713 (2016).
- Guo, X., Pan, Y., Gutmann, D. H. Genetic and genomic alterations differentially dictate low-grade glioma growth through cancer stem cell-specific chemokine recruitment of T cells and microglia. Neuro Oncol. 21 (10), 1250-1262 (2019).
- Parasuraman, S., Raveendran, R., Kesavan, R. Blood sample collection in small laboratory animals. J Pharmacol Pharmacother. 1 (2), 87-93 (2010).
- Meyer, N., et al. Impact of three commonly used blood sampling techniques on the welfare of laboratory mice: Taking the animal's perspective. PLOS ONE. 15 (9), e0238895(2020).
- Diehl, K. H., et al. A good practice guide to the administration of substances and removal of blood, including routes and volumes. J Appl Toxicol. 21 (1), 15-23 (2001).
- Jung, J., Garnett, E., Rector, K., Jariwala, P., Devaraj, S. Effect of collection tube type on glucose stability in whole blood. Ann Clin Lab Sci. 50 (4), 557-559 (2020).
- Bonetti, G., et al. Which sample tube should be used for routine glucose determination. Prim Care Diabetes. 10 (3), 227-232 (2016).
Nachdrucke und Genehmigungen
