Frühgeburten (Entbindung < 37. Woche) sind ein dringendes globales Gesundheitsproblem mit suboptimalen Präventions- und Behandlungsmöglichkeiten. Wir stellen ein Mausmodell der aufsteigenden vaginalen bakteriellen Infektion induzierten Frühgeburt vor und skizzieren, wie die daraus resultierende neonatale Morbidität und Mortalität analysiert werden kann.
Methodenartikel
Modellierung von aufsteigenden vaginalen Infektionen, Frühgeburten und neonataler Morbidität bei Mäusen
In diesem Artikel
Zusammenfassung
Zusammenfassung
Frühgeburten sind nach wie vor weltweit eine der Hauptursachen für die Mortalität und Morbidität von Neugeborenen, wobei es nur begrenzte präventive Therapien gibt. Es besteht ein zwingender Bedarf an klinisch
relevante und reproduzierbare Tiermodelle für die Umsetzung innovativer Interventionen
um Wirklichkeit zu werden. Es gibt verschiedene Mausmodelle für Frühgeburten. Sie rekapitulieren jedoch nicht die Morbiditäten des menschlichen Neugeborenen, einschließlich neuropathologischer Veränderungen und
Lungenverletzungen, die charakteristische Folgen einer aufsteigenden Infektion und Frühgeburt sind. Wir haben ein Modell charakterisiert, das unseres Wissens das einzige ist, das das menschliche Szenario nachahmt, in dem diese neonatalen Morbiditäten nach der Einleitung einer Frühgeburt durch ein lebendes Bakterium, das aus der Vagina aufsteigt, vorliegen. Diese Arbeit demonstriert die intravaginale Verabreichung eines biolumineszierenden Stammes von Escherichia coli und beschreibt die Beurteilung neuropathologischer Ergebnisse und Lungenschäden mittels immunhistochemischer und histologischer Techniken.
Einleitung
Frühgeburten (PTB; Entbindung < 37 Wochen) sind weltweit die Hauptursache für die Neugeborenensterblichkeit 1,2. Mit einem Anteil von 11 % aller Geburten ist sie ein großes globales Gesundheitsproblem mit einer komplexen Ätiologie, die nur unzureichend verstanden wird und es schwierig macht, sie vorherzusagen und zu verhindern 3,4,5. Bei Neugeborenen, die eine PTB überlebt haben, können nachteilige Ergebnisse bei der neurologischen Entwicklung auftreten, einschließlich Zerebralparese, Atemwegserkrankungen wie bronchopulmonale Dysplasie (BPD) und gastrointestinale Störungen wie nekrotisierende Enterokolitis (NEC)6,7,8. Daher besteht ein dringender Bedarf an klinisch relevanten, reproduzierbaren Tiermodellen, um die biologischen Signalwege, die zur PTB beitragen, zu adressieren und innovative Interventionen zu entwickeln.
Es gibt eine Reihe möglicher Mechanismen, die der spontanen PTB zugrunde liegen, wie z. B. deziduale Seneszenz, ein Zusammenbruch der mütterlich-fetalen Toleranz, Stress, kurze zervikale Länge oder zervikale Schädigung9. Es wird jedoch berichtet, dass mindestens 40 % der spontanen PTBs mit einer mikrobiellen Infektion assoziiert sind10,11. Mikroben, die vom Vaginalkanal durch den Gebärmutterhals in die Gebärmutter aufsteigen, werden aufgrund der Korrelation zwischen den aus dem Fruchtwasser isolierten Mikroben und den in der vaginalen Mikrobiota ansässigen Mikroben als häufiger Infektionsweg vermutet und weithin akzeptiert 12,13,14. Zu den Mikroorganismen, die häufig mit einer Frühgeburt in Verbindung gebracht werden, gehören Mykoplasmen-, Ureaplasmen-, Fusobacterium- und Streptokokken-Arten, und die meisten Fälle sind polymikrobiell15,16.
Mäuse werden häufig zur Modellierung von PTB verwendet, wobei der gebräuchlichste Ansatz die Verabreichung des bakteriellen Toxins Lipopolysaccharid (LPS) ist, das intrauterine, intraperitoneale oder intraamniotische Wege verabreicht werden kann, um das für die Einleitung der Geburt erforderliche Entzündungsniveau zu induzieren17. LPS modelliert jedoch keine mikrobielle Lebendinfektion, und wichtig ist, dass neonatale Ergebnisse in diesen Modellen nicht gemessen werden können, da LPS den Tod des Fötus induziert18. In den letzten Jahren wurden Tiermodelle für aufsteigende vaginale bakterielle Infektionen entwickelt, aber die Rekapitulation sowohl der Frühgeburt als auch der damit verbundenen neonatalen Ergebnisse war eine Herausforderung 19,20,21,22,23,24.
Unsere Gruppe hat ein neues Modell der aufsteigenden vaginalen bakteriellen Infektion, Frühgeburt und neonatalen Morbidität etabliert, das die Pathophysiologie der humanen PTB25 rekapituliert. Hier zeigen wir, wie die neonatale Neuropathologie und Lungenschädigung bei Welpen beurteilt werden können, die einer mütterlichen aufsteigenden vaginalen Infektion mit einem pathogenen Escherichia coli (E. coli)-Stamm ausgesetzt sind, der mit der Meningitis bei humanen Neugeborenen in Verbindung gebracht wurde. Dieses Modell bietet eine einzigartige Gelegenheit, die Pathophysiologie aufsteigender Infektionen zu erforschen und die Wirksamkeit von Frühgeburtsinterventionen bei der Verbesserung der neonatalen Ergebnisse zu bewerten.
Protokoll
Die Verfahren wurden im Rahmen einer Lizenz des britischen Innenministeriums (PAD4E6357) in Übereinstimmung mit dem Animal Scientific Procedures Act (1986) und den ANARRIVE-Richtlinien durchgeführt. Temperatur (19-23 °C), Luftfeuchtigkeit (~55%) und 12 h Hell-Dunkel-Zyklen wurden streng kontrolliert. Jungfräuliche weibliche C57BL/6 Tyrc-2J Mäuse (im Alter von 6-12 Wochen) wurden über Nacht für 16-18 Stunden verpaart. Der Nachweis des Kopulationspfropfens wurde mit dem Embryonaltag (E) 0,5 angegeben.
Pathogene E. coli O18:K1 (A192PP)26, ein von der Ratte transtituierter Stamm von A192 (DSM. Nr. 10719)27 wurde modifiziert, um das Lux-Operon (luxCDABE) zu enthalten, das von dem Nematodensymbionten Photorhabdus Luminescens ATCC29999 (Hb-Stamm) stammt und eine Kanamycin-Resistenzkassette (Km2)28 enthält. Dieser Stamm wird vom Advisory Committee on Dangerous Pathogens (ACDP) der britischen Regierung als Gefahrengruppe 2 eingestuft. Tragen Sie geeignete persönliche Schutzausrüstung (PSA) und befolgen Sie die örtlichen Richtlinien beim Umgang mit und bei der Entsorgung von biologischen Arbeitsstoffen.
1. Mausmodell der aufsteigenden vaginalen bakteriellen Infektion
- Vorbereitung von E. coli-Kulturen
- Bereiten Sie die Brühe Luria-Bertani (LB) zu, indem Sie das Pulver in destilliertem Wasser (dH2O) auflösen, um eine 20%ige Lösung herzustellen, und autoklavieren. Sobald das LB auf Raumtemperatur abgekühlt ist, fügen Sie 50 μg/ml Kanamycin hinzu. Bei 4 °C bis zu 1 Woche lagern.
- Bereiten Sie eine 20%ige Pluronic Gel F127-Lösung vor, indem Sie den Feststoff in steriler phosphatgepufferter Kochsalzlösung (PBS) auflösen. Vortex zum Mischen und Rühren bei 4 °C über Nacht.
- Geben Sie 10 ml mit Antibiotika behandelte LB-Bouillon in einen sterilen 30-ml-Universalbehälter. Eine gefrorene Glycerinbrühe von E. coli aus der -80 °C Lagerung nehmen. Kratzen Sie mit einer sterilen Pipettenspitze den gefrorenen Glycerinvorrat von E. coli ab, um das Ende der Spitze leicht zu beschichten, und werfen Sie die Spitze direkt in die LB-Brühe aus. Sichern Sie den Universalbehälter mit Parafilm, kennzeichnen Sie ihn als Biohazard und stellen Sie ihn über Nacht (200 U/min) bei 37 °C in einen Orbitalschüttler.
- Am nächsten Morgen verdünnen Sie die Bakterienkultur 1:100 (0,1 mL Kultur + 9,9 mL frische LB-Brühe) und geben Sie sie für 1,5-3 h (200 U/min bei 37 °C) in den Orbitalschüttler zurück, wobei Sie das Wachstum der Kultur regelmäßig überprüfen, indem Sie die Extinktion bei 600 nm messen. Pipettieren Sie 100 μl der Kultur in doppelter Ausführung in eine durchsichtige 96-Well-Platte mit flachem Boden. Messen Sie die Extinktion an einem Spektralphotometer mit aktivierter Weglängenkorrektur. Ein OD600 zwischen 0,5 und 0,7 bedeutet die midlogarithmische Wachstumsphase.
- Wenn OD600 0,5-0,7 erreicht ist (~108-9 koloniebildende Einheiten [KBE]), 100 μl aus der Bakterienkultur nehmen und 900 μl steriles PBS eindünnen. Zentrifugieren Sie 1 Minute lang bei 14.000 × g , um das Bakterienpellet zu waschen und die LB-Brühe zu entfernen. Entfernen Sie den Überstand, resuspendieren Sie das Bakterienpellet in sterilem PBS und verdünnen Sie es 1:10.000 in sterilem PBS (auf 102-3 KBE).
- Desinfizieren Sie alle Deponien und Behälter, die Bakterien ausgesetzt sind, vor der Entsorgung.
- Anästhesie
- Unter E16.5 werden trächtige Mäuse durch Inhalation von Isofluran anästhesiert (5 % für die Induktion, 1,5 % für die Aufrechterhaltung des Sauerstoffgehalts). Übertragen Sie den Anästhesiefluss und dann das Tier auf den Nasenkegel und bringen Sie das Weibchen in die Bauchlage. Bestätigen Sie die Anästhesie durch das Fehlen eines Zehenkneifreflexes und halten Sie Isofluran auf dem für den Eingriff erforderlichen Mindestprozentsatz.
ACHTUNG: Isofluran ist ein Reizmittel für Augen und Haut sowie ein Giftstoff für das Zentralnervensystem. Tragen Sie geeignete PSA. Verwenden Sie immer ein Spülsystem. - Verabreichen Sie 20 μl E. coli aus der midlogarithmischen Phase (1 × 10,2-3 KBE, resuspendiert in sterilem PBS) oder steriles PBS (Vehikelkontrolle) in die Vagina mit einer sterilen 200-μl-Pipettenspitze (Abbildung 1). Geben Sie mit einer frischen, sterilen 200-μl-Pipettenspitze 20 μl 20 % Pluronic Gel F127 Gel in die Vagina, um ein Austreten von Bakterien zu verhindern. Tupfen Sie mit steriler Gaze Chininpulver auf den Introitus, um die Mäuse davon abzuhalten, die Bakteriensuspension zu reinigen. Notieren Sie das Datum und die Uhrzeit der Behandlung.
HINWEIS: Die verwendeten KBE basierten auf Titrationsexperimenten, um den gewünschten Phänotyp (Frühgeburt mit lebenden Jungtieren) zu erreichen. Die KBE kann durch serielle Verdünnung und Beschichtung auf LB-Agarplatten bestimmt werden29. - Tiere einzeln in einzeln belüfteten Käfigen (IVC) einsperren und ihnen erlauben, sich von der Narkose zu erholen, bevor sie den Käfig in den Haltungsraum zurückbringen; Kennzeichnen Sie den Käfig deutlich als biologische Gefahr. Überwachen Sie die Tiere, bis sie wieder ihr normales Verhalten aufgenommen haben.
HINWEIS: Dieser Vorgang sollte nicht länger als 5 Minuten dauern und die Tiere sollten sich schnell erholen (innerhalb von 2-5 Minuten).
- Unter E16.5 werden trächtige Mäuse durch Inhalation von Isofluran anästhesiert (5 % für die Induktion, 1,5 % für die Aufrechterhaltung des Sauerstoffgehalts). Übertragen Sie den Anästhesiefluss und dann das Tier auf den Nasenkegel und bringen Sie das Weibchen in die Bauchlage. Bestätigen Sie die Anästhesie durch das Fehlen eines Zehenkneifreflexes und halten Sie Isofluran auf dem für den Eingriff erforderlichen Mindestprozentsatz.
- Messung der Schwangerschaftsergebnisse
- Richten Sie CCTV ein, indem Sie eine Kamera an der Außenseite jedes Käfigs anbringen, um die Mäuse auf Anzeichen von Geburt und Geburt zu überwachen. Notieren Sie die Zeit bis zur Entbindung als die Anzahl der Stunden vom Zeitpunkt der intravaginalen Verabreichung von E. coli oder PBS (Schritt 1.2.2) bis zur Entbindung des ersten Welpen.
- Notieren Sie die Anzahl der lebenden/toten Welpen bei der Entbindung und berechnen Sie einen Prozentsatz der Überlebensrate pro Wurf. Beobachten Sie das Muttertier und die Jungtiere täglich, erfassen Sie das Überleben der Jungtiere bis zu 7 Tage nach der Geburt und stellen Sie sicher, dass sich die Muttertiere erholen. Nehmen Sie in diesem Zeitraum andere Messungen wie Gewicht und Länge des Welpen vor.
HINWEIS: Zu den Anzeichen einer Geburt gehören vermehrte Fellpflege, Drehen im Kreis sowie Strecken und Ausstrecken der Hinterbeine. Da es sich um eine bakterielle Lebendinfektion handelt, entwickeln die Muttertiere im Laufe der Zeit (in der Regel 24 Stunden nach der Behandlung) Symptome. Das Weibchen sollte sich von der Infektion erholen, aber wenn es nach der Geburt immer noch Symptome einer Infektion zeigt, kein Nest gebaut oder seine Jungen nicht innerhalb des ersten Tages gefüttert hat, dann töten Sie die Tiere auf humane Weise mit Methoden der Liste 1 (z. B. Exposition gegenüber CO2 in steigender Konzentration und Bestätigung des Todes durch Gebärmutterhalsluxation).
- Biolumineszenz-Bildgebung
- Nach der bakteriellen Inokulation werden die Weibchen nach 24 und 48 Uhr abgebildet, um die Ausbreitung der Infektion zu verfolgen, wie unten beschrieben. Stellen Sie sich die Welpen am postnatalen Tag (P)0 bis P14 vor, ohne dass eine Anästhesie erforderlich ist.
- Klicken Sie nach dem Öffnen der Imaging-Software auf Initialisieren und warten Sie, bis die Kamera die Betriebstemperatur erreicht hat (der Temperaturbalken wird grün und "gesperrt"). Aktivieren Sie das Kontrollkästchen für Lumineszenzbildgebung, und vergewissern Sie sich, dass der Anregungsfilter auf Block und der Emissionsfilter auf Öffnen eingestellt ist.
- Betäubung erwachsener Frauen durch Inhalation von Isofluran (5% für die Induktion, 1,5% für die Aufrechterhaltung des Sauerstoffgehalts). Bringen Sie die Tiere in Rückenlage in das Biolumineszenz-Bildgebungsgerät (mit einem beheizten Tisch), während Sie die Anästhesie für die Mäuse aufrechterhalten. Wählen Sie Automatische Belichtungszeit oder stellen Sie die Belichtungszeit manuell ein (Belichtungsbereich: 1 min - 5 min). Nach der Bildgebung bringen Sie die Tiere in ihre Käfige zurück, um sich von der Narkose zu erholen, bevor Sie sie in den Haltungsraum zurückbringen.
- Um die Photonenstrahlung quantitativ zu messen, wählen Sie Regions of Interest (ROIs) auf den Mausbildern aus und zeichnen Sie die Photonen pro Sekunde pro Quadratzentimeter pro Steradiant (Photonen∙(second-cm2)-1∙sr-1) auf.
2. Gewebeanalysen von Föten und Neugeborenen
- Perinatale Gewebeentnahme
- Bei E18.5 wird das Muttertier geopfert, indem es einer steigenden CO2 - Konzentration ausgesetzt wird und der Tod durch Gebärmutterhalsluxation bestätigt wird, und es wird eine Mini-Laparotomie durchgeführt, um die Gebärmutter zu entfernen. Machen Sie dann mit einer Schere einen Schnitt in der Gebärmutter.
- Wenn Sie Fruchtwasser sammeln, machen Sie einen kleinen Schnitt in den Membranen und sammeln Sie die Flüssigkeit mit einer Pasteur-Pipette oder einer nadellosen Spritze.
- Halten Sie mit einer Pinzette mit einer Hand die Außenseite der Gebärmutter an der Stelle, an der die Plazenta befestigt ist, und lösen Sie mit einer gebogenen Pinzette in der anderen Hand die Plazenta vorsichtig von der inneren Gebärmutterwand, indem Sie das Gewebe auseinanderziehen und den Fötus mit den daran befestigten Membranen und der Plazenta vorsichtig aus der Gebärmutter führen. Halten Sie auch hier mit einer Pinzette in jeder Hand die Plazenta vorsichtig nach unten und greifen und zupfen Sie die Membranen an der Stelle, an der sie auf die Plazenta treffen (stellen Sie sicher, dass sie sich sauber lösen).
- Nachdem die Gewebe nun getrennt sind, entnehmen Sie das erforderliche Schwangerschaftsgewebe (z. B. Gebärmutter, Plazenta, fetale Membranen, Gebärmutterhals und Vagina) und präparieren Sie fötales Gewebe (z. B. Gehirn, Lunge und Darm).
- Gefrieren Sie das Gewebe sofort auf Trockeneis oder in flüssigem Stickstoff und/oder fixieren Sie das Gewebe in Paraformaldehyd (PFA; 4 % in PBS).
- Lagern Sie schockgefrorenes Gewebe bei -80 °C und fixieren Sie das Gewebe für 24-48 h; Anschließend in 30 % Saccharose bei 4 °C lagern.
ACHTUNG: PFA ist brennbar und kann Augen-, Haut- und Atemwegsreizungen verursachen. Bereiten Sie die 4%ige Lösung in einer Biosicherheitswerkbank vor und tragen Sie bei der Handhabung geeignete PSA.
- Postnatale Gewebeentnahme
- Betäuben Sie die Welpen auf P7 mit Isofluran (5 % für die Induktion, 1,5 % für die Aufrechterhaltung des Sauerstoffgehalts).
- Führen Sie eine Exsanguination und Gewebeperfusion durch, indem Sie den rechten Vorhof einschneiden und 10 ml PBS in den linken Ventrikel injizieren. Enthaupte den Kadaver und entferne das Gehirn und die Lunge mit einer sterilen Schere und Pinzette. Verarbeiten und lagern Sie Gewebe wie oben beschrieben.
HINWEIS: Schockgefrorenes Gewebe von Mutter und Fötus kann mittels qPCR, ELISA und Western Blot auf Entzündungs- und andere Mediatoren analysiert werden. Protokolle für diese Techniken sind bei den Reagenzienherstellern oder in anderen Veröffentlichungen erhältlich 25,30,31.
- Kryosektionen von fetalen und neonatalen Gehirnen
- Entfernen Sie mit einer Klinge das Kleinhirn, um eine ebene Oberfläche zu erhalten, und frieren Sie das Gewebe auf Trockeneis ein. Montieren Sie das gefrorene Gewebe mit einer Verbindung mit optimaler Schnitttemperatur (OCT) auf den Probenhalter und bedecken Sie das Gewebe mit einer dünnen Schicht OCT. Einfrieren lassen (1-2 min).
- Stellen Sie mit einem Kryostaten, der auf -20 °C eingestellt ist, sicher, dass der Hebel verriegelt ist, und laden Sie den Probenhalter. Stellen Sie die Position des Gewebes fein ein ein ein und arretieren Sie sie. Schneiden Sie das Gewebe ab und beginnen Sie mit der Entnahme von Gewebeschnitten auf Mikroobjektträgern aus der Fusion des Corpus Callosum, wobei Sie die Schnitte sofort auf Trockeneis einfrieren. Schneiden Sie 50 serielle 40-μm-Schnitte von jedem Gewebe.
ACHTUNG: Seien Sie vorsichtig mit der scharfen Klinge. - Lagern Sie die Schnellschnitte auf Objektträgern bei -80 °C.
- Immunhistochemie
HINWEIS: Das folgende Protokoll kann zur Identifizierung von Astrozyten (Gliafibrilläres saures Protein; GFAP), Mikroglia (Allotransplantat-Entzündungsfaktor 1; IBA-1) und Neutrophile (Lymphozyten-Antigen 6 Familienmitglied G; Ly6G). Informationen zu Antikörpern finden Sie in Tabelle 1.- Wählen Sie fünf Abschnitte pro Gehirn im Abstand von 400 μm aus, die die Beurteilung verschiedener Hirnregionen in unterschiedlichen Tiefen des Gehirns ermöglichen. Hochkühlschnitte mit einem Tropfen dH2O rehydrieren und das Gewebe mit zwei feinen Bürsten verteilen und entfalten. Trocknen Sie das Tuch 20-30 Minuten lang unter einem Ventilator. Zeichnen Sie mit einem hydrophoben (PAP) Stift vorsichtig um das Gewebe herum, ohne es zu berühren.
- Bereiten Sie an Tag 1 4 % Formaldehyd (FA) vor, indem Sie 5,4 ml Formaldehyd in 50 ml 0,1 M Phosphatpuffer (PB) für eine 50-ml-Küvette (Kapazität von 15 Objektträgern) hinzufügen. Tauchen Sie die Objektträger 5 Minuten lang in FA ein, um die Kryosektionen zu fixieren, eine Adhäsion an den Objektträgern zu ermöglichen und Antigene zu immobilisieren.
ACHTUNG: FA ist brennbar und kann Augen-, Haut- und Atemwegsreizungen verursachen. Bereiten Sie eine 4%ige Lösung in einer Biosicherheitswerkbank vor und tragen Sie bei der Handhabung geeignete PSA. - Bereiten Sie 0,1 % Rinderalbuminserum (BSA) vor, indem Sie 0,4 g BSA zu 400 ml 0,1 M PB hinzufügen. Waschen Sie die Abschnitte 2x, indem Sie sie in 0,1 M PB eintauchen, gefolgt von einer Wäsche in BSA (~3 s pro Waschgang). Speichern von Folien in
Küvetten, die BSA enthalten, bis sie benötigt werden. - Bereiten Sie die Feuchtigkeitskammern vor, indem Sie Seidenpapier mit dH2O befeuchten und diese in die Kammer legen, wobei Sie überschüssiges Wasser ablassen lassen.
- Bereiten Sie 5% Ziegenserum vor (50 μl Ziegenserum in 1 ml 0,1 M PB). Trocknen Sie den Objektträger vorsichtig mit Seidenpapier um den Gewebeschnitt herum, stellen Sie sicher, dass der Rand des PAP-Stifts intakt ist, und tragen Sie dann 50 μl der Lösung pro Gewebeschnitt auf. 30 min in der Feuchtigkeitskammer inkubieren.
- Entfernen Sie das Serum, indem Sie mit dem Objektträger auf sauberes Seidenpapier klopfen und den in BSA verdünnten Primärantikörper hinzufügen (Antikörper und Verdünnungen sind in Tabelle 1 aufgeführt). Über Nacht bei 4 °C inkubieren.
- An Tag 2 inkubieren Sie den Sekundärantikörper 30 Minuten lang bei 37 °C in Mausserum (siehe Tabelle 1) und geben Sie ihn zu BSA (1:100 Verdünnung) (z. B. 5 ml BSA + 100 μl Mausserum + 50 μl Sekundärantikörper).
- Waschen Sie die Objektträger 2x, indem Sie sie (~3 s) in BSA und dann einmal in 0,1 M PB tauchen. Halten Sie die Objektträger in BSA-haltigen Küvetten und tupfen Sie den Rand um jeden Gewebeabschnitt herum trocken. 50 μl der Sekundärantikörperlösung pro Gewebeschnitt auftragen und 1 h in der Feuchtigkeitskammer inkubieren.
- Bereiten Sie den Avidin-Biotin-Komplex (ABC) (0,1 % Verdünnung) vor, indem Sie 10 μl A und 10 μl B in 1 ml 0,1 M PB hinzufügen. Tauchen Sie die Objektträger 2x in BSA und einmal in 0,1 M PB ein (~3 s), dann legen Sie die Objektträger in eine Küvette mit 0,1 M PB. Tupfen Sie die Objektträger trocken, tragen Sie 50 μl ABC-Lösung pro Objektträger auf und inkubieren Sie sie 1 h lang in der Feuchtigkeitskammer.
- Bereiten Sie die Diaminobenzidin (DAB)-Lösung vor. 25 mg DAB pro Küvette abwiegen, in 50 mL 10 mM PB auflösen und mit Filterpapier Nr. 4 filtrieren.
ACHTUNG: DAB ist eine Gesundheitsgefahr mit möglicher Keimzellmutagenität und Karzinogenität. Tragen Sie geeignete PSA und entsorgen Sie sie sicher. - Waschen Sie die Objektträger 3 x 3 s mit 10 mM PB und legen Sie sie in Küvetten mit 10 mM PB. Wasserstoffperoxid (H2O2) zur DAB-Lösung geben, bevor die Lösung sofort in frische Küvetten gegossen wird (16,7 μl H2O2 pro Küvette). Schieben Sie die Objektträger in die DAB-Küvetten und lassen Sie sie ~3 min (maximal 5 min) einwirken, während Sie die Färbeintensität unter dem Mikroskop ständig überprüfen.
ACHTUNG: H2O2 kann Augen, Haut und Rachen reizen. Tragen Sie geeignete PSA. - Waschen Sie die Objektträger (3 s) einmal in 10 mM PB und 2x in dH2O und lassen Sie die Objektträger trocknen. Tauchen Sie die trockenen Objektträger 3x in Xylol. Tragen Sie einen Tropfen DPX-Eindeckmittel auf ein Deckglas auf und legen Sie es über den Gewebeschnitt, wobei darauf zu achten ist, dass keine Luftblasen entstehen.
ACHTUNG: Xylol und DPX sind brennbar und können Augen-, Haut- und Atemwegsreizungen verursachen. Handhaben Sie in einer Biosicherheitswerkbank und tragen Sie bei der Handhabung immer Handschuhe.
- Nissl-Färbung
- An Tag 1 rehydrieren und verteilen Sie das Gewebe in dH2O. Bereiten Sie 4% FA vor, indem Sie 5,4 mL FA in 50 mL mit 0,1 M PB geben und sofort verwenden. Inkubieren Sie die Objektträger über Nacht in 4 % FA.
- Bewegen Sie die Objektträger an Tag 2 von 4 % FA auf 70 % Ethanol (EtOH) und inkubieren Sie sie über Nacht.
- Bereiten Sie den Nissl-Farbstoff vor, indem Sie 4 g Cresylviolett in 40 ml 100 % EtOH in einem geschlossenen konischen 50-ml-Röhrchen auflösen. 15 min invertieren, die Lösung in 360 mL warmes dH2O geben und auf einer Rührplatte 20 min lang mischen. Filtern Sie die Lösung vor Gebrauch.
- Befolgen Sie an Tag 3 das in Tabelle 2 beschriebene Färbeverfahren und decken Sie die Gewebeschnitte mit DPX ab.
- Endständige Desoxynukleotidyltransferase dUTP-Nick-End-Markierung (TUNEL)
- Rehydrieren und verteilen Sie das Gewebe in dH2O, dann inkubieren Sie die Objektträger 5 Minuten lang in 4 % FA. Die Objektträger in eine Lösung aus H2O2 und Methanol (CH3OH) (1:10) geben und 15 min inkubieren. Waschen Sie die Objektträger 2 x 3 s in 0,1 M PB und legen Sie sie in Küvetten mit 0,1 M PB.
- Bereiten Sie TUNEL-Lösung auf Eis gemäß den Anweisungen des Herstellers vor. Geben Sie die Lösung zu den Objektträgern (50 μl pro Gewebeschnitt) und inkubieren Sie sie 2 Stunden lang in einer Feuchtigkeitskammer bei 37 °C.
- Nach 1 Stunde Inkubation die ABC-Lösung wie in Schritt 2.4.9 beschrieben zubereiten und bei Raumtemperatur inkubieren.
- Bewegen Sie die Objektträger nach 2 Stunden für 10 Minuten in die TUNEL STOP-Lösung (300 mM NaCl, 30 mM Natriumcitrat) und tauchen Sie die Objektträger zum Waschen 3 x 3 s in 10 mM PBS-Lösung. Inkubieren Sie die Objektträger 1 h lang in ABC-Lösung.
- Bereiten Sie Kobaltsulfat (1,55 g wasserfreies CoSO4 in 100 mL dH2O) und Nickelchloridhexahydrat (2,38 g NiCl 2,6H2O in 100 mL dH2O) vor. Bereiten Sie DAB-Co-Ni-Lösung vor (10 mM PB + 25 mg DAB + 1 mL/100 mL Co + 1 mL/100 mL Ni). Filtern Sie die Lösung unter Vakuum und bewahren Sie sie im Dunkeln auf. Unmittelbar vor dem Einfüllen der DAB-Lösung in die Küvetten werden 16,7 μl H2O2 pro 50 ml-Küvette zugegeben.
- Nach 1 h die Objektträger in die DAB-Küvetten geben und ~3 min bei Raumtemperatur inkubieren, dabei ständig auf Färbeintensität prüfen. Stoppen Sie die Reaktion, indem Sie die Objektträger in Küvetten mit 10 mM PB bewegen. Waschen Sie, indem Sie 2 x 3 s in dH2O eintauchen und die Gewebeschnitte trocknen lassen, bevor Sie sie mit DPX abdecken.
- Hämatoxylin- und Eosin-Färbung (H&E)
- Rehydrieren und verteilen Sie das Gewebe in dH2O und lassen Sie die Schnitte an der Luft trocknen.
- Tauchen Sie die Objektträger 2 Minuten lang in Hämatoxylin ein.
ACHTUNG: Hämatoxylin kann Augen- und Hautreizungen verursachen. Tragen Sie geeignete PSA. - Spülen Sie die Objektträger 5 Minuten lang unter fließendem Leitungswasser, entfärben Sie sie 1 s lang in saurem Alkohol und spülen Sie sie in Leitungswasser.
- Gegenfärbung in 0,5 % Eosin (1,5 g gelöst in 300 ml 95 % EtOH) für 30 s.
ACHTUNG: Eosin ist brennbar und kann Augen- und Hautreizungen verursachen. Bereiten Sie die Lösungen in einer Biosicherheitswerkbank vor und tragen Sie geeignete PSA. - Dehydrieren Sie die Gewebeschnitte in einem Gradienten von EtOH: 50%, 70%, 95% und schließlich 100% EtOH, jeweils für 3 min. Schieben Sie die Objektträger für 2 x 5 min in Xylol. Deckglas mit DPX.
3. Histologische und immunhistochemische Untersuchungen für Neuropathologie und Lungenschädigung
HINWEIS: Die Untersuchungen können in den folgenden Regionen durchgeführt werden: Kortex, pyriformer Kortex, externe Kapsel, Striatum, Hippocampus und Thalamus (Abbildung 2). Für E18.5-Gehirne kann auch das Corpus callosum einbezogen werden, da die Differenzierung der Zellen noch nicht abgeschlossen ist und die Gliazellen noch nicht in alle Hirnregionen migriert sind. Der Beurteiler sollte für die Behandlungsgruppen verblindet werden.
- TUNEL+ Zelltod
- Zählen Sie mit einem herkömmlichen Mikroskop die Zellen, die positiv für die TUNEL-Färbung sind, beidseitig bei 20-facher Vergrößerung in allen Hirnregionen (Abbildung 2).
- Bewerten Sie drei zufällig ausgewählte optische Felder pro Hirnregion und berechnen Sie die durchschnittliche Anzahl von Zellen pro Hirnregion.
- Beurteilung der Nissl-Morphologie
- Nehmen Sie Bilder des gesamten Gewebes mit einer Farbkamera mit 1-facher Vergrößerung auf und speichern Sie sie als TIFF-Datei oder in einem anderen gewünschten Format. Importieren Sie die Bilder zur weiteren Analyse in ImageJ.
- Skizzieren Sie die interessierenden Hirnregionen (z. B. Kortex und Hippocampus) und messen Sie mit dem Freihandwerkzeug (Abbildung 2).
- Um die Gewebemessung zu erhalten, wenden Sie die Formel an: (mm 2 × 400 μm) = Volumen × 100 (überarbeitet32).
- Index der mikroglialen Verzweigung
- Unter Verwendung eines Mikroskops mit einem quadratischen Raster von 0,049 mm x 0,049 mm wird bei 40-facher Vergrößerung die Anzahl der IBA-1+ -Zellkörper innerhalb des Gitters (C) und die durchschnittliche Anzahl der Verzweigungen, die die Gitterlinien (B) kreuzen, gezählt. Führen Sie dies in drei zufällig ausgewählten Feldern (siehe Abbildung 3) für jede in Abbildung 2 gezeigte Gehirnregion durch.
- Verwenden Sie die Formel (B2/ C), um den Mikroglia-Verzweigungsindex zu berechnen.
- Optische Leuchtkraft für die Intensität der GFAP-Färbung
- Erfassen Sie mit der referenzierten Software (Table of Materials) und einer Farbkamera mit 40-facher Vergrößerung drei zufällig ausgewählte Felder pro Hirnregion (Abbildung 2). Drücken Sie Strg+H , um ein Histogramm mit dem Mittelwert und der Standardabweichung (SD) zu erhalten. Notieren Sie den Mittelwert und die SD-Werte in einer Tabelle. Erfassen Sie ein Kontrollbild nur des umgebenden Glases (d. h. kein Gewebe) und zeichnen Sie den Mittelwert und die SD-Werte wie zuvor auf
- Verwenden Sie die folgende Formel, um die optischen Luminanzwerte (OLV) in einer Tabelle zu berechnen:
OLV = (Mittelwert des Glases − Standardabweichung des Glases) − (Mittelwert von [Mittelwert pro Bild − Standardabweichung pro Bild])
HINWEIS: Zum Beispiel:
Umlaufendes Glas
Mittlere ± SD = 143,5 ± 8,56
Hirnregion (z. B. Kortex)
1. 136,7 ± 10,6
2. 140,6 ± 10,4
3. 137,4 ± 11,3
OLV = (143,5 - 8,56) - (Mittelwert von [136,7 - 10,6], [140,6 - 10,4], [137,4 - 11,3])
OLV = 134,94 - 127,47
OLV = 7,47 - Mittelwerten Sie jeden Wert pro Region, pro Tier und dann pro Versuchsgruppe.
- Beurteilung der Lungenmorphologie
- Erfassen Sie H&E-Schnitte mit 40-facher Vergrößerung (drei optische Felder pro Objektträger, Lufträume pro Feld messen), speichern Sie sie als TIFF (oder gleichwertig) und importieren Sie Bilder in ImageJ. Wählen Sie nach dem Zufallsprinzip Felder aus, die für den gesamten Lungenabschnitt repräsentativ sind.
- Umreißen Sie mit dem Freihandwerkzeug die Lufträume und zeichnen Sie die Messung auf (Abbildung 4A). Ermitteln Sie den Durchschnitt von drei Lufträumen pro Feld, dann zwischen den drei Feldern pro Abschnitt und schließlich zwischen den drei Abschnitten pro Stichprobe.
- Neutrophileneinstrom in die Lunge
- Nehmen Sie Beispielbilder mit einer Farbkamera mit 40-facher Vergrößerung auf, dreimal pro Lungengewebeschnitt, und speichern Sie die Originaldatei als TIFF-Datei oder in einem anderen gewünschten Format. Importieren Sie die Bilder in ImageJ und zählen Sie manuell einzelne Neutrophile in drei Feldern derselben Lunge. Berechnen Sie den Durchschnitt der Neutrophilen pro Lunge.
Ergebnisse
Dieses Protokoll stellt ein Mausmodell der aufsteigenden vaginalen Infektion vor und beschreibt Methoden zur Beurteilung der neonatalen Neuropathologie und der respiratorischen Ergebnisse. Das Verfahren zur Induktion einer aufsteigenden vaginalen Infektion sollte schnell (innerhalb von 5 Minuten) sein und die Mäuse sollten sich innerhalb weniger Minuten erholen. Die Muttertiere entwickelten nach ca. 24 h25 Infektionssymptome. Dazu gehören langsame Bewegungen, Piloerektion und eine gebeugte Haltung. Die ungefähre durchschnittliche Verabreichungszeit bei den infizierten Mäusen betrug 40,3 h nach Verabreichung von E. coli (PBS-Kontrollgruppendurchschnitt 52,7 h) unter E18,5 im Vergleich zur termingerechten Entbindung der PBS-Kontrollgruppe unter E19,531. Der Prozentsatz der lebend geborenen Jungtiere pro Wurf verringerte sich durch die Infektion (von 100 % auf 71,4 %), ebenso wie ihr Überleben über 7 Tage nach der Geburt (Abbildung 5)25. Wenn biolumineszierende Bakterien verwendet werden, kann die Bildgebung die Ausbreitung der Infektion bei Muttertieren und Jungtieren verfolgen. Bakterien wurden in der Gebärmutter, den fetalen Membranen, der Plazenta und bei einigen Föten innerhalb von 18 Stunden nach der Verabreichung beobachtet (Abbildung 6), und Entzündungsmediatoren, gemessen durch qPCR und ELISA, waren in diesen Geweben sowie in den perinatalen Welpengeweben wie Gehirn, Lunge und Darm hochreguliert 25,29,31.
Eine Reihe von neuropathologischen Untersuchungen, wie z. B. die Beurteilung der Morphologie, des Zelltods, der Mikrogliaaktivierung und der Astrozytenaktivierung, wurde an den Föten und Neugeborenen unter Verwendung von Histologie und Immunhistochemie durchgeführt 25,31,33. Auch Lungengewebe kann beurteilt werden (Abbildung 4 und Abbildung 7). Eine positive Färbung für TUNEL deutet auf einen DNA-Abbau hin, ein späteres Stadium des Zelltods34. Wir sehen eine signifikante Zunahme der TUNEL-Färbung im Kortex, im pyriformen Kortex, in der externen Kapsel, im Hippocampus und im Thalamus in den Gehirnen von Jungtieren, die während der Schwangerschaft einer E. coli-Infektion ausgesetzt waren (Abbildung 8A,B)31. IBA-1-markierte Mikroglia, die residenten Immunzellen des Gehirns, können nach ihrem morphologischen Zustand kategorisiert werden, wobei die Verzweigung auf einen ruhenden Phänotyp hindeutet, während aktivierte und phagozytäre Zellen amöboid oder abgerundet werden35. Anstatt Mikrogliazellen zu quantifizieren, stellen wir daher eine Strategie zur Bewertung ihres Phänotyps als Hinweis auf ihren Zustand vor. Wir sehen eine Zunahme der IBA1+-Verzweigung im externen Kortex und Striatum von E. coli-Welpen im Vergleich zur PBS-Gruppe (Abbildung 8C,D)31. GFAP-markierte reaktive Astrozyten, die mit Entzündungen und neurologischen Schädigungen in Verbindung gebracht werden können, waren im pyriformen Kortex und in der äußeren Kapsel bei E. coli-Welpen erhöht (Abbildung 8E,F)31,36,37. Die Nissl-Färbung ermöglicht die Beurteilung grober morphologischer Veränderungen der Struktur des Gehirns; Cresylviolett ist eine histologische Standardfärbung für Neuronen und markiert sowohl zusätzliche nukleäre RNA-Granula als auch Zellkerne. In der Gruppe der E. coli sehen wir eine verringerte Dicke der Hirnrinde (Abbildung 9)31. In ähnlicher Weise ermöglicht H&E, die den Zellkern bzw. das Zytoplasma von Zellen färben, die Beurteilung der Lungenmorphologie (Abbildung 4)31. Wir sehen vergrößerte Lufträume bei Mäusen, die E. coli ausgesetzt waren, sowie eine Zunahme der Anzahl von Ly6G+-Neutrophilen, ein Hinweis auf eine Entzündung (Abbildung 7)31.
Bei der Datenanalyse wurde die Zeit bis zur Lieferung durch einen ungepaarten t-Test analysiert, wenn die Daten normalverteilt waren. Für die prozentualen Daten für lebend geborene Jungtiere war zunächst eine Arkussinus-Quadratwurzeltransformation erforderlich, um eine Anteilsverteilung (begrenzt durch den Bereich von 0 bis 1) in eine Normalverteilung umzuwandeln, was eine der Voraussetzungen ist, um einen t-Test durchführen zu können. Das Überleben der Jungtiere wurde durch einen Log-Rank (Mantel-Cox) Test analysiert. Für die Histologie und Immunhistochemie wurden entweder der Mann-Whitney-U-Test oder mehrere t-Tests mit Welsh-Korrektur verwendet, abhängig von der Art der Daten und davon, ob sie normal verteilt waren. Für eine ausreichende statistische Aussagekraft empfehlen wir, mindestens fünf Muttertiere pro Behandlungsgruppe zu verwenden.
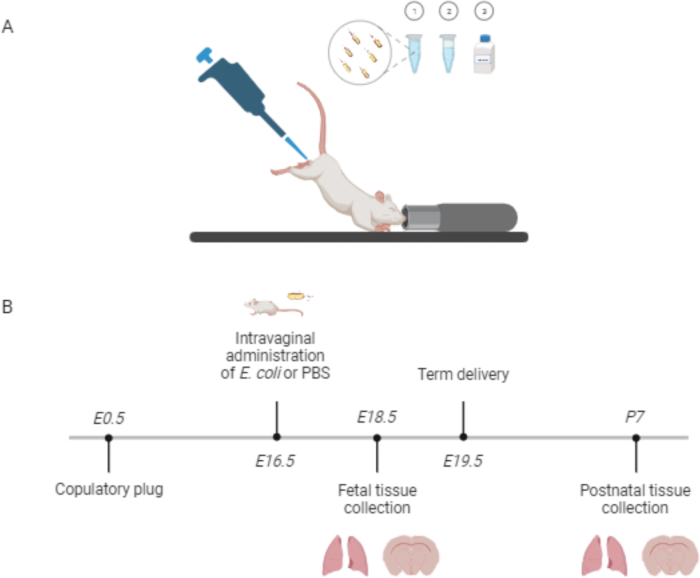
Abbildung 1: Intravaginale Verabreichung von Escherichia coli und der Behandlungszeitplan zur Induktion von Frühgeburten und neonataler Morbidität bei Mäusen. (A) E. coli [1], gefolgt von 20 % Pluron-Gel F127 [2], wird mit einer sterilen 200-μl-Pipettenspitze in die Vagina der Maus verabreicht. Chininpulver wird dem Introitus zugesetzt [3]. (B) E. coli wird am embryonalen Tag 16.5 in die Vagina abgegeben. Gewebe wie die Lunge und das Gehirn können während der fetalen oder neonatalen Periode entnommen werden. Abkürzung: EN = embryonaler Tag N; PN = postnataler Tag N; PBS = phosphatgepufferte Kochsalzlösung. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
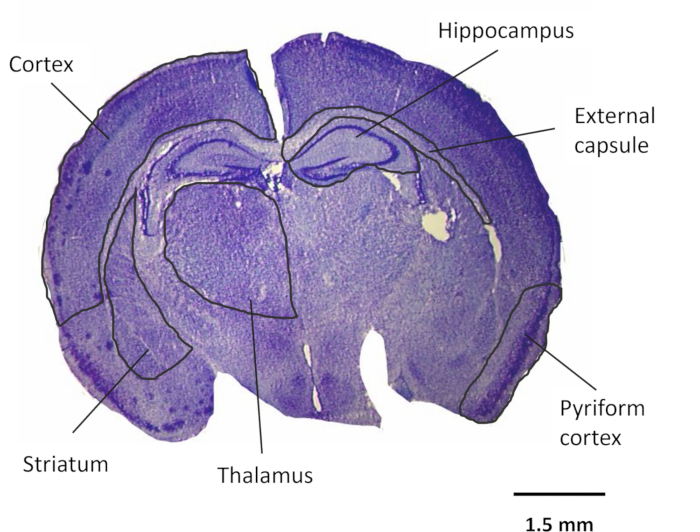
Abbildung 2: Hirnregionen, die für die Neuropathologie untersucht wurden. Ein Beispiel für die Nissl-Färbung des Gehirns eines Neugeborenen und der Regionen, die für die Neuropathologie beurteilt werden könnten. Alle Hirnregionen können auf TUNEL, IBA-1 und GFAP untersucht werden. Wir haben uns entschieden, die Morphologie des Kortex und des Hippocampus mit Nisll zu beurteilen. Vergrößerung: 1x. Maßstabsleiste = 1,5 mm. Abkürzungen: TUNEL = terminale Desoxynukleotidyltransferase dUTP Nick End Markierung; IBA-1 = Allotransplantat-Entzündungsfaktor 1; GFAP = saures gliales fibrilläres Protein. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
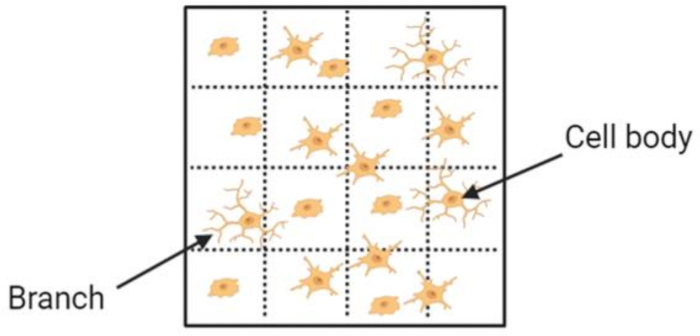
Abbildung 3: Positive Bewertung des IBA-1-Färbe- und Verzweigungsindex. Um den Verzweigungsindex von IBA-1+ -Zellen zu quantifizieren, zählen Sie die Anzahl der Zellkörper innerhalb des Gitters und die durchschnittliche Anzahl der Verzweigungen, die die horizontalen und vertikalen Gitterlinien kreuzen. Abkürzung: IBA-1 = Allotransplantat-Entzündungsfaktor 1. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
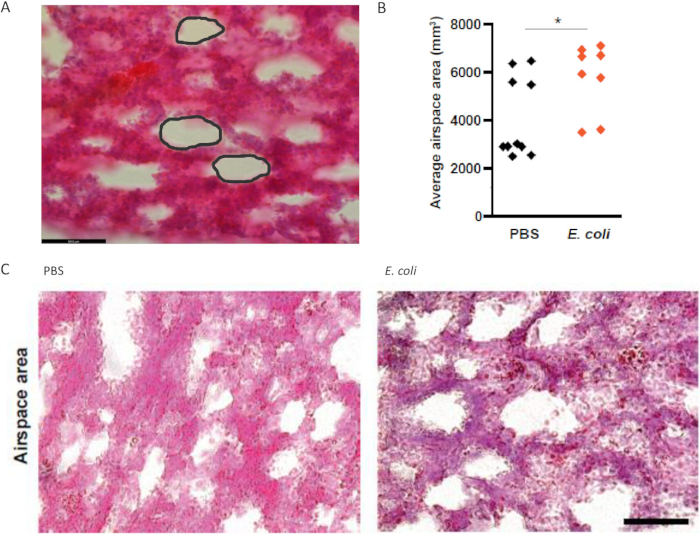
Abbildung 4: Luftraummessungen in Lungen von Jungtieren (H&E-Färbung). (A) Umreißen Sie die Lufträume und messen Sie mit dem Freihandwerkzeug in ImageJ. (B) Die durchschnittliche Luftraumfläche ist bei Jungtieren, die E. coli ausgesetzt sind, im Vergleich zu PBS vergrößert. (C) Repräsentative H&E-Bilder von Lungen von Welpen, die PBS und E. coli in utero ausgesetzt waren. Vergrößerung: 40x. Maßstabsbalken = 59,5 μm. Abkürzungen: H = Hämatoxylin; E = Eosin. n = 2 von 4 Würfen. *p < 0,05. Diese Abbildung wurde von Boyle et al.31 übernommen. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
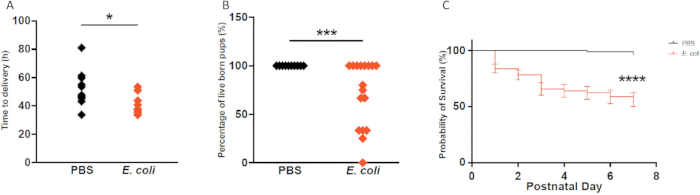
Abbildung 5: Auswirkungen von intravaginalen E. coli auf die Zeit bis zur Entbindung und das Überleben der Jungen. (A) Die Zeit bis zur Entbindung ist in Gegenwart von E. coli verkürzt. (B) Der Prozentsatz der lebend geborenen Jungtiere ist signifikant reduziert und (C) das Überleben der Jungtiere ist bei E. coli-exponierten Jungtieren reduziert. Zeit bis zur Geburt: n = 8-10 Würfe pro Gruppe; Lebend geborene Jungtiere: n = 10-17 Würfe pro Gruppe; Überleben der Jungen: n = 10-12 Würfe pro Gruppe. *p < 0,05, ***p < 0,001. Diese Abbildung wurde von Boyle et al.31 übernommen. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
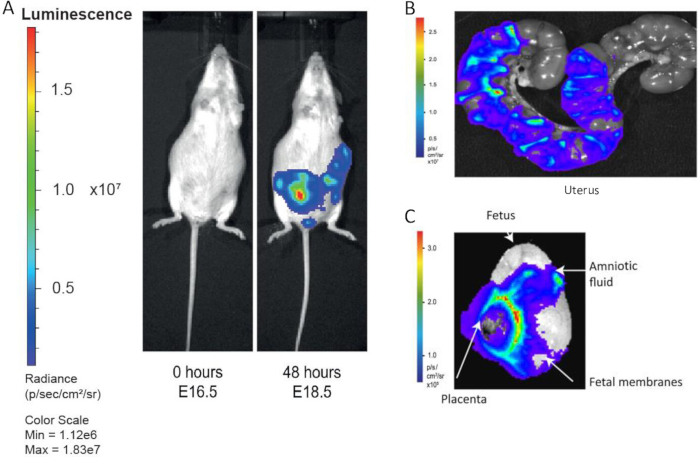
Abbildung 6: Biolumineszenz-Bildgebung zur Überwachung der Ausbreitung von E. coli . (A) Biolumineszierende E. coli steigt innerhalb von 48 Stunden aus der Vagina in die Gebärmutterhörner auf. (B) Präparierte Gebärmutterhörner zeigen innerhalb von 18 Stunden eine Infektion mit E. coli , (C) ebenso wie die Plazenta und die fetalen Membranen. Diese Abbildung wurde von Suff et al.25 und Boyle et al.31 übernommen. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
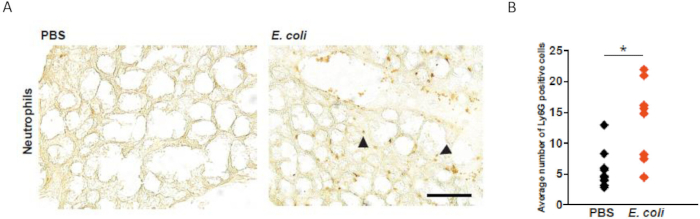
Abbildung 7: Ly6G-Färbung für Neutrophile in der fetalen Lunge. (A) Färbung für Ly6G (positiv: Pfeilspitzen) zur Beurteilung des Neutrophileneinstroms bei PBS- und E. coli-exponierten Föten. (B) Die durchschnittliche Anzahl von Ly6G+- Zellen ist bei E. coli-Föten signifikant erhöht. Vergrößerung: 40x. Maßstabsbalken = 59,5 μm. n = 10 aus 5 Würfen pro Gruppe. *p < 0,05. Abkürzungen: Ly6G = Lymphozyten-Antigen-6-Komplex-Locus G6D. Diese Abbildung wurde von Boyle et al.31 übernommen. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
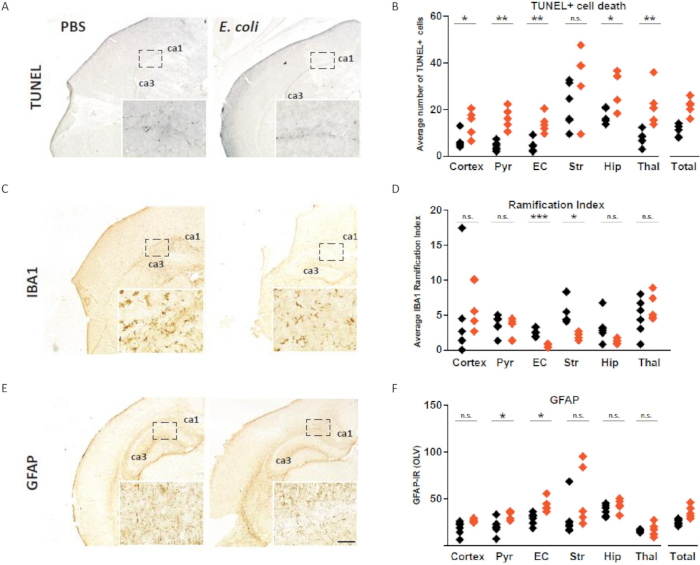
Abbildung 8: Beispiele für TUNEL-, IBA1- und GFAP-Färbungen. (A) TUNEL-Färbung für den Zelltod im postnatalen Gehirn von Welpen, die PBS oder E. coli ausgesetzt waren. (B) Die durchschnittliche Anzahl von TUNEL+ -Zellen ist im Kortex, im pyriformen Kortex, in der externen Kapsel, im Hippocampus und im Thalamus erhöht. (C) IBA1-Immunhistochemie für Mikroglia in PBS - und E. coli-Gruppen . (D) Der Verzweigungsindex als Maß für die Aktivierung von Mikroglia ist in der äußeren Kapsel und im Striatum bei E. coli-Welpen erhöht. (E) GFAP-Färbung für Astrozyten, (F), die im pyriformen Kortex und in der äußeren Kapsel bei E. coli-Welpen erhöht ist. Maßstabsleiste = 59,5 μm. Abkürzungen: GFAP = saures gliales fibrilläres Protein; TUNEL = terminale Desoxynukleotidyltransferase dUTP Nick Endmarkierung; Pyr = Pyriformer Kortex; EC = externe Kapsel; Str = Striatum; Hüfte = Hippocampus; thal = Thalamus; gesamt = alle Regionen; CA = cornu ammonis; OLV = optische Leuchtkraftwerte. Immunhistochemische Analysen: n = 5-7 aus 5 Würfen pro Gruppe. *p < 0,05, **p < 0,01, ***p < 0,001, n.s. - nicht signifikant. Diese Abbildung wurde von Boyle et al.31 übernommen. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
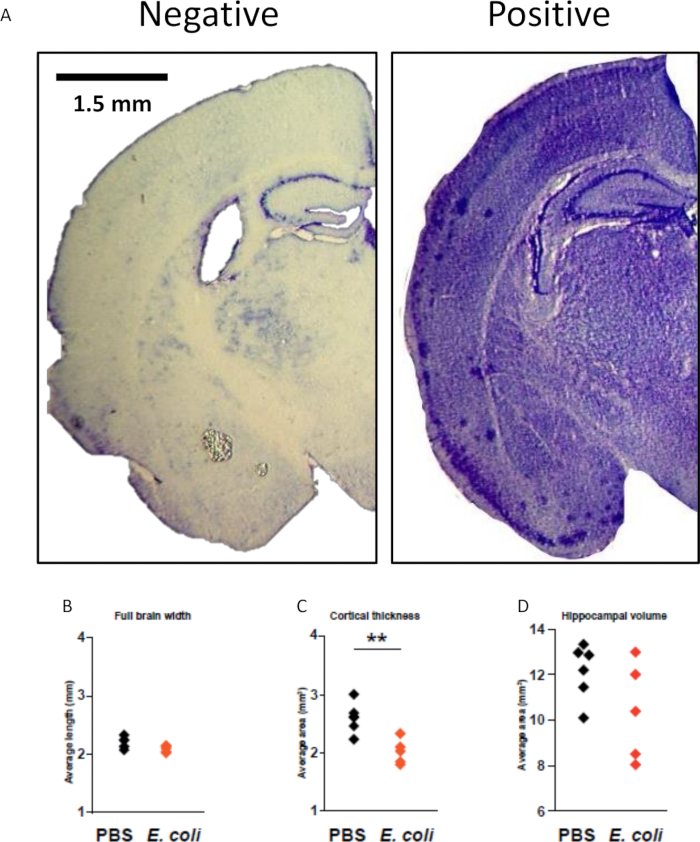
Abbildung 9: Beispiel für positive und negative Nissl-Färbung und morphologische Beurteilungen. (A) Nissl-Färbung des postnatalen Welpengehirns zur Beurteilung der Gewebestruktur und -morphologie. (B) Es gibt keinen Einfluss auf die Gehirnbreite, aber (C) die kortikale Dicke ist bei Jungtieren, die E. coli ausgesetzt sind, reduziert. (D) Es gibt keinen Unterschied im Hippocampusvolumen. Vergrößerung: 1x. Maßstabsstange = 1,5 mm. n = 5-7 aus 5 Würfen pro Gruppe. **p < 0,01. Diese Abbildung wurde von Boyle et al.31 übernommen. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
| Primärer Antikörper | Verdünnung | Sekundärer Antikörper/Verdünnung | Verdünnung |
| Kaninchen Anti-GFAP | 1:6000 | Ziege Anti-Kaninchen | 1:100 |
| Kaninchen Anti-IBA1 | 1:1000 | Anti-Ratte für Ziegen | 1:100 |
| Maus Anti-Ly6G | 1:1000 | Ziege Anti-Kaninchen | 1:100 |
Tabelle 1: Antikörper für die Immunhistochemie.
| Schritt | Reagenz | Zeit (min) |
| 1 | NISSL-Beize | 10 |
| 2 | Frisches destilliertes Wasser | 2 |
| 3 | Frisches destilliertes Wasser | 2 |
| 4 | 70% EtOH | 2 |
| 5 | 90% EtOH | 2 |
| 6 | 96% EtOH | 2 |
| 7 | 96% EtOH mit 3-5 Tropfen Eisessig | 2-5 (STÄNDIG PRÜFEN) |
| 8 | 100% EtOH | 2 |
| 9 | Isopropanol | 2 |
| 10 | Xylol | 2 |
| 11 | Xylol | 2 |
| 12 | Xylol | 2 |
Tabelle 2: Nissl-Verfahren.
Diskussion
Hier beschreiben wir die Induktion eines neuartigen Mausmodells für Frühgeburt und neonatale Morbidität mittels bakterieller vaginaler Ascension. Wir haben uns für E. coli K1 entschieden, da es eine häufige Ursache für neonatale Sepsis und Meningitis ist und vertikal von der Mutter auf den Fötus übertragen wird 38,39,40. Der Schlüssel zum Erfolg dieses Modells ist die Verwendung von Pluronic thermosensitivem Gel, das das Austreten der Bakteriensuspension aus der Vagina verhindert und es der Infektion ermöglicht, sich zu etablieren und in die Gebärmutter aufzusteigen. Da dieses Modell lebende Bakterien verwendet, die aus einem Septikämie-Isolat gewonnen wurden, ist es wichtig, die Muttertiere genau zu überwachen27. Wenn die Tiere sich weigern, sich zu bewegen oder zu fressen, oder sich nicht um ihre Jungen kümmern (z. B. das Nisten und Füttern vernachlässigen), müssen sie sofort auf humane Weise getötet werden.
Meistens klingen die mit einer Infektion verbundenen Symptome innerhalb von 24 Stunden nach der Entbindung ab. Es ist auch wichtig zu wissen, dass verschiedene Serotypen von E. coli und anderen Bakterienstämmen unterschiedliche Auswirkungen auf die Schwangerschaftsdauer, das Ausmaß der Infektion/Entzündung und das neonatale Ergebnis haben. Wir empfehlen, bei der Verwendung neuer bakterieller Serotypen/Stämme vorläufige Dosisexperimente mit verschiedenen KBE durchzuführen, um die für den gewünschten Phänotyp erforderliche Mindestkonzentration zu bestimmen und strenge humane Endpunkte festzulegen, um Leiden zu vermeiden. Bei der Verabreichung eines lebenden Krankheitserregers ist äußerste Vorsicht geboten. Lassen Sie sich von der Literatur als Leitfaden für die angemessene Verwendung dieser Organismen bei der Modellierung aufsteigender Infektionen leiten.
Auch der Mausstamm ist wichtig, da sich ihr Immunsystem unterscheidet. Zum Beispiel haben das Timing und die KBEs, die in diesem Modell verwendet werden, nicht die gleichen Ergebnisse, wenn sie an C57BL/6-Mäusen durchgeführt werden. Wir entschieden uns für die C57BL/6 Tyrc-2J-Mäuse , da Zeitverlaufsexperimente signifikant mehr Infektionen in diesem Stamm im Vergleich zu CD-1, BALB/c und C57BL/6 zeigten. Darüber hinaus gibt es Hinweise darauf, dass das schwarze Fell biolumineszierende Signale löscht, was in diesem Modell ein nützliches messbares Ergebnis darstellt29. Der optimale Schwangerschaftstag für die bakterielle Verabreichung kann auch je nach Erreger und Mausstamm unterschiedlich sein. In den präklinischen PTB-Modellen besteht eine große Heterogenität; Daher ist es wichtig, diese Variablen zu berücksichtigen, um reproduzierbare Ergebnisse zu erzielen17.
Eine weitere Überlegung ist die Zeitspanne, in der die Tiere der Narkose ausgesetzt sind. Da eine übermäßige Exposition während der Schwangerschaft mit Neurotoxizität bei Welpen verbunden ist, ist es wichtig, die unter Narkose verbrachte Zeit auf ein Minimum zu beschränken (z. B. maximal 5 Minuten) und immer Kontrollen einzuschließen, die der gleichen Umgebung ausgesetzt und mit einer Vehikelsubstanz behandelt wurden 41,42,43. Zusätzliche Kontrollgruppen, die für dieses Modell nützlich sind, umfassen die unbehandelte, intravaginale Verabreichung von Pluronic Gel nur und nur Anästhesie.
Die Immunhistochemie wird häufig als experimentelles Werkzeug zur Identifizierung verschiedener Proteine und Zellen verwendet und kann zur Charakterisierung von Struktur und Konnektivität im Gehirn verwendet werden. Hier beschreiben wir, wie Schlüsselzellen des zentralen Nervensystems analysiert werden können, die mit Neuroinflammation und neurologischen Verletzungen in Verbindung gebracht werden. Wir stellen auch Methoden zur Beurteilung der zellulären Apoptose und histologischer Färbungen vor, die für die Messung der Gehirn- und Lungenmorphologie nützlich sind. Wichtige Überlegungen, um den Erfolg dieser Protokolle sicherzustellen, beginnen mit der sorgfältigen Verwendung des PAP-Stifts. Wenn der PAP-Pen das Gewebe berührt, schlägt die Färbung fehl, aber wenn der Parameter zu breit ist, könnten die Schnitte über Nacht austrocknen. Ebenso muss die Feuchtigkeitskammer feucht gehalten werden, um ein Austrocknen der Abschnitte zu vermeiden.
Bei der Durchführung der Nissl-Färbung ist der Schritt der Eisessigsäure der kritischste; Die Abschnitte müssen ständig überprüft werden. Wenn die Hauptstrukturen des Gehirns sichtbar werden, müssen die Abschnitte sofort in EtOH verschoben werden, um die Reaktion zu stoppen. Wir haben uns für die Beurteilung des Kortex und des Hippocampus entschieden, da bei menschlichen Frühgeborenen und anderen Tiermodellen über eine verringerte kortikale Dicke und ein reduziertes Hippocampusvolumen berichtet wurde, aber auch andere Regionen auf morphologische Veränderungen untersucht werden konnten 44,45,46,47. Besonderes Augenmerk muss auch auf die Entwicklung der DAB-Färbung gelegt werden. Dies sollte zeitlich abgestimmt und zwischen den Experimenten konsistent gehalten werden.
Die Datenanalyse ist die häufigste Einschränkung der Immunhistochemie, da es schwierig ist, die Ergebnisse zu quantifizieren, die oft als subjektiv angesehen werden. Während die GFAP-Analyse mit computergestützten optischen Leuchtkraftmessungen durchgeführt wird, kann eine inkonsistente Färbung diese Messungen beeinträchtigen. Darüber hinaus beinhalten die Bewertungen der Gehirn- und Lungenmorphologie manuelle, freihändige Messungen, die sich auf das Urteil des Beobachters stützen. Um Inkonsistenzen zu vermeiden, wiederholen wir diese Bewertungen zweimal und in kurzer Zeit. Um Verzerrungen weiter zu reduzieren, ist es wichtig, dass der Bewerter für die Behandlungsgruppen verblindet ist. Eine geringe Immunreaktivität kann ebenfalls ein limitierender Faktor sein. Das Fehlen eines Signals könnte darauf hindeuten, dass das interessierende Antigen nicht vorhanden ist, oder es könnte auf ein Protokollversagen zurückzuführen sein. Um dies zu beheben, fügen wir eine Gewebeprobe hinzu, die nach Möglichkeit als Positivkontrolle dienen kann, und wiederholen den Färbevorgang, wenn wir ein geringes oder fehlendes Signal beobachten, um sicherzustellen, dass dies nicht das Ergebnis eines experimentellen Fehlers ist.
Zusätzlich zu den beschriebenen Protokollen können immunologische Analysen des mütterlichen, fötalen und neonatalen Gewebes mittels qPCR und ELISA durchgeführt werden. Wir haben erhöhte entzündliche mRNA- und Proteinspiegel bei Tieren beobachtet, die einer Infektion ausgesetzt waren 25,31,48. Wir stellen die Hypothese auf, dass die neonatale Neuropathologie, die wir histologisch nachweisen, das Ergebnis einer fetalen Gehirn-, Lungen- und Darmentzündung sein könnte25,31. Weitere neuropathologische Untersuchungen, die wir durchgeführt haben, umfassen das Myelin-Basisprotein (MBP) zur Untersuchung der Myelinisierung und NeuN zur Färbung der neuronalen Kerne25,31. Darüber hinaus können andere Marker für Neutrophile und Mikroglia untersucht werden, um den Phänotyp und das Verhalten dieser Zellen nach Exposition gegenüber einer Infektion in utero besser zu verstehen49,50. Zusätzlich könnten Verhaltenstests durchgeführt werden, um die langfristigen Auswirkungen auf die Nachkommen zu ermitteln.
Dieses Modell ist nicht ohne Einschränkungen. Zum Beispiel sehen wir Unterschiede in der Pathologie sowohl zwischen als auch innerhalb der Würfe. Dies könnte das Ergebnis der Verwendung eines lebenden Bakteriums sein, bei dem die Ausbreitung der Infektion nicht kontrolliert werden kann. Folglich variieren das Muster und die Reichweite der aufsteigenden Infektion in die Gebärmutterhörner und sind oft asymmetrisch. Eine weitere Einschränkung ist die Pathogenität der E. coli, die manchmal dazu führen kann, dass die Muttertiere zu krank werden, um sich um ihre Jungen zu kümmern. Mäuse sind auch nicht das beste Modell für Lungenverletzungen, da die Alveologenese postnatal und nicht wie beim Menschen pränatal stattfindet51. Wir haben es versäumt, unser Lungengewebe aufzublasen, als die Proben entnommen wurden, was sich auf unsere Ergebnisse hätte auswirken können. Unsere Ergebnisse stimmen jedoch mit den Veränderungen überein, die in neonatalen BPD-Tiermodellen beobachtet wurden52,53.
Dieses Modell rekapituliert den postulierten menschlichen Zustand, bei dem eine bakterielle Infektion von der Vagina in die Gebärmutter aufsteigt und eine frühe Entbindung stimuliert. Nach der ersten Veröffentlichung dieses Modells haben andere ähnliche Modelle repliziert oder erstellt, was die Reproduzierbarkeit und Relevanz dieser Methodik weiter unterstreicht19,54. Entscheidend ist, dass dieses Modell die häufigen Morbiditäten aufweist, die bei Frühgeborenen auftreten, während andere Modelle versagt haben. Dies könnte auf die Verwendung eines Bakterienstamms zurückzuführen sein, der speziell mit der Sepsis bei Neugeborenen in Verbindung gebracht wird. LPS, das in Tiermodellen am häufigsten zur Einleitung vorzeitiger Wehen verwendet wird, ist für Jungtiere tödlich, so dass neonatale Ergebnisse nicht gemessen werden können18. Andere Modelle der aufsteigenden Infektion hatten ebenfalls Schwierigkeiten, überlebende Jungtiere zu produzieren oder die Morbidität von Neugeborenennachzuweisen 19,20,21,22,23,24,55,56. Klinisch relevante Tiermodelle, wie das von uns beschriebene, sind von grundlegender Bedeutung für das Verständnis der Pathophysiologie der Frühgeburt und für die Entwicklung innovativer Interventionen, die die Ergebnisse von Neugeborenen verbessern.
Offenlegungen
Den Autoren liegen keine relevanten Angaben vor.
Danksagungen
Escherichia Coli K1 A192PP-luxABCDE wurde uns freundlicherweise von Professor Peter Taylor, University College London, zur Verfügung gestellt. Abbildung 1 und Abbildung 3 wurden in BioRender.com erstellt. Diese Forschung wurde unterstützt durch das Wellcome Clinical Research Career Development Fellowship 222970/Z/21/Z (N.S.), Action Medical Research and Borne Grant GN2647 (N.S., S.N.W. und D.P.); und Wellbeing of Women Grant RG2365 (A.K.B., N.S., M.H., S.N.W. und DP).
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Anti-GFAP, Kaninchen | Agilent Technologien | Z033429-2 | |
| Anti-IBA1, rabbit | Wako | 019-19741 | |
| Anti-Ly6G, Maus | BioLegend | 127601 | |
| AVT-Horn 184 3CCD-Kamera | Sony | ||
| Biotin-16-DUTP | Merck | 11093070910 | |
| Borosilikatglas-Rechteckige Überdeckfolien | FisherScientific | 12363128 | |
| Cresyl-Veilchenacetat | ThermoFisher Scientific | 405760100 | |
| Cryostat CM1900 | Leica | ||
| Glascuvette | Merck | BR472700 | |
| Diaminobensidin (DAB) | Generon | 40480004-3 | |
| Sezierende Zange, Edelstahl, 10 cm, gezackt, gebogen. | World Precision Instruments Ltd | 15915 | |
| Zerschneidende Zange, Edelstahl, 10 cm, gezackt, gerade | World Precision Instruments Ltd | 15914 | |
| Sezierende Schere, 10 cm lang, gerade | World Precision Instruments Ltd | 14393 | |
| DPX | Merck | 100579 | |
| Eosin | Sigma-Aldrich | HT110116 | |
| Formaldehydlösung 4% gepuffert | Merck | 100496 | |
| Ziegen-Anti-Kaninchen-IgG-Antikörper (H+L), biotinyliert | Vektorlabore | BP-9100-50 | |
| Ziegen-Antiratten-IgG-Antikörper (H+L), biotinyliert | Vektorlabore | BA-9400-1.5 | |
| GraphPad Prism v.8 | GraphPad-Software | ||
| H2O2 | Sigma-Aldrich | 7722-84-1 | |
| Hämatoxylin | Sigma-Aldrich | MHS16 | |
| ImageJ | Nationale Gesundheitsinstitute | ||
| Isofluran (IsoFlo) | Zoetis | 50019100 | |
| IVIS Lumina II In Vivo Bildgebungssystem/Living Image Software | Perkin Elmer/Revvity | ||
| Mikroslides | VWR | ISO8037/I | |
| Optimas 6.51 | Media Cybernetics Inc. | ||
| Paraformaldehyd | Sigma-Aldrich | 158127 | |
| Phosphatgepufferte Kochsalzlösung (PBS) | Thermo Fisher Scientific (Life Technologies) | 14190094 | |
| Pluronic F-127 | Sigma-Aldrich | P2443 | |
| Chinin | Wissenschaftliche Labormaterialien | Q0132 | |
| ReadyProbes hydrophober Barriere-Pap-Pen | Thermo Fisher Scientific | R3777 | |
| Natriumhydroxid | Honeywell | S8045 | |
| Natriumphosphat monobasisk wasserfrei | FisherScientific | BP329-1 | |
| Sucrose | Merck | S9378 | |
| Terminal transferase | Merck | 3333574001 | |
| VECTASTAIN ABC-HRP Kit, Peroxidase | Vektorlabore | PK-4000 | |
| Xylene (histologischer Grad) | Sigma-Aldrich | 534056 |
Referenzen
- WHO. WHO: recommended definitions, terminology and format for statistical tables related to the perinatal period and use of a new certificate for cause of perinatal deaths. Modifications recommended by FIGO as amended October 14, 1976. Acta Obstet Gynecol Scand. 56 (3), 247-253 (1977).
- Liu, L., et al. Global, regional, and national causes of under-5 mortality in 2000–15: an updated systematic analysis with implications for the sustainable development goals. Lancet. 388 (10063), 3027-3035 (2016).
- Chawanpaiboon, S., et al. regional, and national estimates of levels of preterm birth in 2014: a systematic review and modelling analysis. Lancet Glob Health. 7 (1), e37-e46 (2019).
- Unicef. Levels and trends in child mortality report 2017. , Unicef. (2017).
- Blencowe, H., et al. National, regional, and worldwide estimates of preterm birth rates in the year 2010 with time trends since 1990 for selected countries: a systematic analysis and implications. Lancet. 379 (9832), 2162-2172 (2012).
- Jung, E., et al. The fetal inflammatory response syndrome: the origins of a concept, pathophysiology, diagnosis, and obstetrical implications. Semin Fetal Neonatal Med. 25 (4), 101146(2020).
- Humberg, A., et al. Preterm birth and sustained inflammation: consequences for the neonate. Semin Immunopathol. 42 (4), 451-468 (2020).
- Boyle, A. K., Rinaldi, S. F., Norman, J. E., Stock, S. J. Preterm birth: inflammation, fetal injury and treatment strategies. J Reprod Immunol. 119, 62-66 (2017).
- Romero, R., Dey, S. K., Fisher, S. J. Preterm labor: one syndrome, many causes. Science. 345 (6198), 760-765 (2014).
- Goldenberg, R. L., Culhane, J. F., Iams, J. D., Romero, R. Epidemiology and causes of preterm birth. Lancet. 371 (9606), 75-84 (2008).
- Jones, H. E., et al. Differing prevalence and diversity of bacterial species in fetal membranes from very preterm and term labor. PLoS One. 4 (12), e8205(2009).
- Cobo, T., et al. Characterization of vaginal microbiota in women with preterm labor with intra-amniotic inflammation. Sci Rep. 9 (1), 18963(2019).
- Romero, R., et al. Microbial invasion of the amniotic cavity in patients with suspected cervical incompetence: prevalence and clinical significance. Am J Obstet Gynecol. 167 (4 Pt 1), 1086-1091 (1992).
- Mendz, G. L., Kaakoush, N. O., Quinlivan, J. A. Bacterial aetiological agents of intra-amniotic infections and preterm birth in pregnant women. Front Cell Infect Microbiol. 3, 58(2013).
- DiGiulio, D. B., et al. Prevalence and diversity of microbes in the amniotic fluid, the fetal inflammatory response, and pregnancy outcome in women with preterm pre-labor rupture of membranes. Am J Reprod Immunol. 64 (1), 38-57 (2010).
- DiGiulio, D. B. Diversity of microbes in amniotic fluid. Semin Fetal Neonatal Med. 17 (1), 2-11 (2012).
- Miller, F. A., Sacco, A., David, A. L., Boyle, A. K. Interventions for infection and inflammation-induced preterm birth: a preclinical systematic review. Reprod Sci. , (2022).
- Migale, R., et al. Specific lipopolysaccharide serotypes induce differential maternal and neonatal inflammatory responses in a murine model of preterm labor. Am J Pathol. 185 (9), 2390-2401 (2015).
- Spencer, N. R., et al. Development of a mouse model of ascending infection and preterm birth. PLoS One. 16 (12), e0260370(2021).
- Pavlidis, I., et al. Cervical epithelial damage promotes Ureaplasma parvum ascending infection, intrauterine inflammation and preterm birth induction in mice. Nat Commun. 11 (1), 199(2020).
- Vornhagen, J., et al. Group B streptococcus exploits vaginal epithelial exfoliation for ascending infection. J Clin Invest. 128 (5), 1985-1999 (2018).
- Bernardini, R., et al. Neonatal protection and preterm birth reduction following maternal group B streptococcus vaccination in a mouse model. J Matern Fetal Neonatal Med. 30 (23), 2844-2850 (2017).
- Tantengco, O. A. G., et al. Modeling ascending Ureaplasma parvum infection through the female reproductive tract using vagina-cervix-decidua-organ-on-a-chip and feto-maternal interface-organ-on-a-chip. Faseb J. 36 (10), e22551(2022).
- Randis, T. M., et al. Group B streptococcus β-hemolysin/cytolysin breaches maternal-fetal barriers to cause preterm birth and intrauterine fetal demise in vivo. J Infect Dis. 210 (2), 265-273 (2014).
- Suff, N., et al. Ascending vaginal infection using bioluminescent bacteria evokes intrauterine inflammation, preterm birth, and neonatal brain injury in pregnant mice. Am J Pathol. 188 (10), 2164-2176 (2018).
- Mushtaq, N., Redpath, M. B., Luzio, J. P., Taylor, P. W. Treatment of experimental Escherichia coli infection with recombinant bacteriophage-derived capsule depolymerase. J Antimicrob Chemother. 56 (1), 160-165 (2005).
- Achtman, M., et al. Six widespread bacterial clones among Escherichia coli K1 isolates. Infect Immun. 39 (1), 315-335 (1983).
- Winson, M. K., et al. Engineering the luxCDABE genes from Photorhabdus luminescens to provide a bioluminescent reporter for constitutive and promoter probe plasmids and mini-Tn5 constructs. FEMS Microbiol Lett. 163 (2), 193-202 (1998).
- Suff, N. The use of cervical gene therapy for the prevention of infection-related preterm birth [Ph. D. Thesis]. , University College London. (2017).
- Boyle, A. K., Rinaldi, S. F., Rossi, A. G., Saunders, P. T. K., Norman, J. E. Repurposing simvastatin as a therapy for preterm labor: evidence from preclinical models. Faseb J. 33 (2), 2743-2758 (2019).
- Boyle, A. K., et al. Ascending vaginal infection in mice induces preterm birth and neonatal morbidity. Am J Pathol. 195 (5), 891-906 (2025).
- Kendall, G. S., Robertson, N. J., Iwata, O., Peebles, D., Raivich, G. N-methyl-isobutyl-amiloride ameliorates brain injury when commenced before hypoxia ischemia in neonatal mice. Pediatr Res. 59 (2), 227-231 (2006).
- Rocha-Ferreira, E., et al. Curcumin: novel treatment in neonatal hypoxic-ischemic brain injury. Front Physiol. 10, 1351(2019).
- Kyrylkova, K., Kyryachenko, S., Leid, M., Kioussi, C. Detection of apoptosis by TUNEL assay. Methods Mol Biol. 887, 41-47 (2012).
- Lier, J., Streit, W. J., Bechmann, I. Beyond activation: characterizing microglial functional phenotypes. Cells. 10 (9), (2021).
- Schmidt-Kastner, R., Wietasch, K., Weigel, H., Eysel, U. T. Immunohistochemical staining for glial fibrillary acidic protein (GFAP) after deafferentation or ischemic infarction in rat visual system: features of reactive and damaged astrocytes. Int J Dev Neurosci. 11 (2), 157-174 (1993).
- Pekny, M., Pekna, M. Astrocyte reactivity and reactive astrogliosis: costs and benefits. Physiol Rev. 94 (4), 1077-1098 (2014).
- Witcomb, L. A., Collins, J. W., McCarthy, A. J., Frankel, G., Taylor, P. W. Bioluminescent imaging reveals novel patterns of colonization and invasion in systemic Escherichia coli K1 experimental infection in the neonatal rat. Infect Immun. 83 (12), 4528-4540 (2015).
- Obata-Yasuoka, M., Ba-Thein, W., Tsukamoto, T., Yoshikawa, H., Hayashi, H. Vaginal Escherichia coli share common virulence factor profiles, serotypes and phylogeny with other extraintestinal E. coli. Microbiology (Reading). 148 (Pt 9), 2745-2752 (2002).
- Bonacorsi, S., Bingen, E. Molecular epidemiology of Escherichia coli causing neonatal meningitis. Int J Med Microbiol. 295 (6-7), 373-381 (2005).
- Hartling, L., Liang, Y., Lacaze-Masmonteil, T. Chorioamnionitis as a risk factor for bronchopulmonary dysplasia: a systematic review and meta-analysis. Arch Dis Child Fetal Neonatal Ed. 97 (1), F8-F17 (2012).
- Liang, G., et al. Isoflurane causes greater neurodegeneration than an equivalent exposure of sevoflurane in the developing brain of neonatal mice. Anesthesiology. 112 (6), 1325-1334 (2010).
- Yang, B., et al. Comparison of neurodegeneration and cognitive impairment in neonatal mice exposed to propofol or isoflurane. PLoS One. 9 (6), e99171(2014).
- Schmitz-Koep, B., et al. Decreased cortical thickness mediates the relationship between premature birth and cognitive performance in adulthood. Hum Brain Mapp. 41 (17), 4952-4963 (2020).
- Nagy, Z., Lagercrantz, H., Hutton, C. Effects of preterm birth on cortical thickness measured in adolescence. Cereb Cortex. 21 (2), 300-306 (2011).
- Dimitrova, R., et al. Preterm birth alters the development of cortical microstructure and morphology at term-equivalent age. Neuroimage. 243, 118488(2021).
- Dada, T., et al. Mouse model of intrauterine inflammation: sex-specific differences in long-term neurologic and immune sequelae. Brain Behav Immun. 38, 142-150 (2014).
- Suff, N., et al. Cervical gene delivery of the antimicrobial peptide, human beta-defensin (HBD)-3, in a mouse model of ascending infection-related preterm birth. Front Immunol. 11, 106(2020).
- McKenna, E., et al. Neutrophils: need for standardized nomenclature. Front Immunol. 12, 602963(2021).
- Jurga, A. M., Paleczna, M., Kuter, K. Z. Overview of general and discriminating markers of differential microglia phenotypes. Front Cell Neurosci. 14, 198(2020).
- Jackson, C. M., et al. Pulmonary consequences of prenatal inflammatory exposures: clinical perspective and review of basic immunological mechanisms. Front Immunol. 11, 1285(2020).
- Durrani-Kolarik, S., et al. miR-29b supplementation decreases expression of matrix proteins and improves alveolarization in mice exposed to maternal inflammation and neonatal hyperoxia. Am J Physiol Lung Cell Mol Physiol. 313 (2), L339-L349 (2017).
- Nguyen, L., et al. Sex-differences in LPS-induced neonatal lung injury. Sci Rep. 9 (1), 8514(2019).
- Zhang, Y., Edwards, S. A., House, M. Cerclage prevents ascending intrauterine infection in pregnant mice. Am J Obstet Gynecol. , (2023).
- Kammala, A. K., et al. Extracellular vesicles-mediated recombinant IL-10 protects against ascending infection-associated preterm birth by reducing fetal inflammatory response. Front Immunol. 14, 1196453(2023).
- Tantengco, O. A. G., et al. Inflammatory response elicited by Ureaplasma parvum colonization in human cervical epithelial, stromal, and immune cells. Reproduction. 163 (1), 1-10 (2021).
Nachdrucke und Genehmigungen
