Wir stellen ein Protokoll zur Herstellung synthetischer biomolekularer Kondensate vor, die aus amphiphilen DNA-Nanosternen bestehen, ausgehend von ihren DNA-Oligonukleotiden. Kondensate werden entweder aus einer einzelnen Nanosternkomponente oder aus zwei Komponenten hergestellt und so modifiziert, dass sie die In-vitro-Transkription von RNA aus einem eingebetteten DNA-Template aufrechterhalten.
Methodenartikel
Synthetische Kondensate und zellähnliche Architekturen aus amphiphilen DNA-Nanostrukturen
In diesem Artikel
Zusammenfassung
Zusammenfassung
Synthetische Tröpfchen und Kondensate werden immer häufiger Bestandteile fortschrittlicher biomimetischer Systeme und synthetischer Zellen, wo sie zur Etablierung von Kompartimenten und zur Aufrechterhaltung lebensechter Reaktionen verwendet werden können. Synthetische DNA-Nanostrukturen haben aufgrund ihrer programmierbaren Form, ihrer chemischen Funktionalisierung und ihres Selbstorganisationsverhaltens ein erhebliches Potenzial als kondensatbildende Bausteine gezeigt. Wir haben kürzlich gezeigt, dass amphiphile DNA-"Nanosterne", die durch Markierung von DNA-Verbindungen mit hydrophoben Anteilen gewonnen werden, eine besonders robuste und vielseitige Lösung darstellen. Die resultierenden amphiphilen DNA-Kondensate können so programmiert werden, dass sie komplexe, mehrteilige interne Architekturen aufweisen, strukturell auf verschiedene externe Reize reagieren, Makromoleküle synthetisieren, Nutzlasten einfangen und freisetzen, morphologische Transformationen durchlaufen und mit lebenden Zellen interagieren. Hier demonstrieren wir Protokolle zur Herstellung amphiphiler DNA-Kondensate ausgehend von den DNA-Oligonukleotiden. Wir werden uns mit (i) Einkomponenten-Systemen befassen, die einheitliche Kondensate bilden, (ii) Zweikomponenten-Systemen, die Kern-Schale-Kondensate bilden, und (iii) Systemen, in denen die Kondensate modifiziert werden, um die In-vitro-Transkription von RNA-Nanostrukturen zu unterstützen.
Einleitung
Synthetische Zellen sind Geräte im Mikrometermaßstab (10-50 μm), die von unten nach oben konstruiert sind, um Funktionen und Strukturen bestehender biologischer Zellen nachzubilden 1,2. Synthetische Zellen sind häufig durch Membranen gebunden, die aus Lipid-Doppelschichtvesikeln 3,4,5,6,7, Polymersomen 8,9 oder Proteinosomen10,11 aufgebaut sind, die auch zur Etablierung einer internen Kompartimentalisierung verwendet werden können12,13. Inspiriert von den membranlosen Organellen, von denen bekannt ist, dass sie verschiedene Funktionalitäten in lebenden Zellen aufrechterhalten14, gewinnen Strukturen wie polymere Koazervate, biomolekulare Kondensate und Hydrogele als vielseitige und robuste Alternativen an Bedeutung, um sowohl die äußere als auch die innere Kompartimentierung in synthetischen Zellen zu etablieren 15,16,17,18.
Unter Nutzung des vielseitigen Toolkits der DNA-Nanotechnologie19 wurden mehrere Lösungen entwickelt, um synthetische Tröpfchen und Kondensate aus der Selbstorganisation künstlicher DNA-Nanostrukturen zu entwickeln, deren Größe, Form, Funktionalität, Wertigkeit und gegenseitige Wechselwirkungen genau programmiert werden können20. DNA-Tröpfchen oder -Kondensate sind biokompatibel und können als Gerüste sowohl für synthetische Zellen als auch für Organellen fungieren, chemische und biomolekulare Reaktionenbeherbergen 21, Informationen verarbeiten22,23, Ladungen einfangen und freisetzen24,25 und strukturelle Reaktionen aufrechterhalten26.
Unter den vielfältigen Designs kondensatbildender DNA-Nanostrukturen haben sich amphiphile DNA-Nanosterne - sogenannte C-Sterne - als robust und vielseitig erwiesen27. C-Sterne sind einfache verzweigte Motive, die aus einer festen DNA-Verbindung (typischerweise vierpolig) bestehen, aus der doppelsträngige (ds)DNA-Arme hervorgehen28. Die Arme werden dann mit hydrophoben Anteilen, typischerweise Cholesterin, bestückt, wodurch die Nanostrukturen amphiphil werden und ihre Kondensation nach einem einfachen Eintopfglühen angetrieben wird. C-Stern-Kondensate ermöglichen eine präzise strukturelle und funktionelle Programmierbarkeit, einschließlich der Möglichkeit, Mehrkammerarchitekturen29,30 zu etablieren, strukturell auf DNA- und Kationenauslöser31 zu reagieren, Makromoleküle29 zu synthetisieren, Nutzlasten einzufangen und freizusetzen32 und mit lebenden Zellenzu interagieren 33. Im Folgenden werden wir Protokolle zur Herstellung von C-Stern-Kondensaten ausgehend von ihren Oligonukleotiden beschreiben und diskutieren.
Das Protokoll fasst die Aufbereitung von unären (einkomponentigen) und binären (zweikomponentigen) Kondensaten zusammen, wobei drei verschiedene C-Star-Designs (Abbildung 1) verwendet werden: "Non-responsive", "TMSD-responsive" und "RNA-templating". Der "nicht reagierende" C-Stern (Feld A) besteht aus vier "Kernsträngen" mit unterschiedlichen Sequenzen, die den Vier-Wege-Übergang bilden. Vier identische cholesterinmodifizierte Oligonukleotide sind mit der Verbindung verbunden, wodurch sichergestellt wird, dass am Ende jedes Arms ein Cholesterinmolekül vorhanden ist. Die nicht reagierenden C-Sterne stellen einfache, inerte Gerüste für unäre und binäre Kondensate dar. Im "TMSD-responsiven" C-star (Panel B) wird die Verbindung zwischen den cholesterinisierten Strängen und der Verbindung durch einen "Toeholding Bridge"-Strang gewährleistet, der eine baumelnde einzelsträngige (ss)DNA "Toehold"-Domäne aufweist. In Gegenwart eines eingedrungenen DNA-Strangs mit einer komplementären Zehengriffdomäne kann eine Zehengriff-vermittelte Strangverdrängungsreaktion34 ausgelöst werden, wobei der Eindringling die Zehenhaltebrücke verdrängt, die Verbindung zwischen der Verbindung zwischen der Verbindung und den hydrophoben Einheiten unterbricht und die Demontage des DNA-Netzwerks32 auslöst. Schließlich enthält das "RNA Templating"-C-Profil (Panel C) eine "Base"-Modifikation, die zu einem "Bridge"-Strang komplementär ist, wobei letzterer das transkriptierbare ssDNA-Template für das Brokkoli-Aptamer29 verknüpft. Sequenzdetails der konstituierenden Oligonukleotide für die drei hier erwähnten Arten von C-Stern-Designs finden sich in der ergänzenden Tabelle 1 und in früheren Arbeiten29, 30, 32.

Abbildung 1. Schematische Darstellung von drei verschiedenen Designs von amphiphilen DNA-Nanosternen (C-Sternen). Oligonukleotidsequenzen für verschiedene Beispiele der hier beschriebenen C-Sterne finden Sie in der Ergänzenden Tabelle 1. (A) Schematische Darstellung eines C-Sterns, der zur Bildung von nicht responsiven Kondensaten ausgelegt ist, mit den Komponenten-Oligonukleotidsträngen "Core 1", "Core 2", "Core 3", "Core 4" (in Rosatönen) und "Endcholesterin" (in Blautönen). Jede einzigartige Farbe stellt einen Oligonukleotidstrang mit einzigartiger Sequenz dar. "Core 1" und "Core 3" sind jeweils teilweise komplementär zu "Core 2" und "Core 4", aber nicht komplementär zueinander. (B) Schematische Darstellung eines C-Sterns, der so konstruiert ist, dass er sich bei Zugabe eines eindringenden Strangs durch Zehengriff-vermittelte Strangverschiebung zerlegt, wie in der vorangegangenen Arbeit32 beschrieben. Dieser C-Stern besteht aus den Strängen "Core" und "Terminal Cholesterin" (grau gefärbt) sowie einem "Terminal complement" (in orange dargestellt) und einem "Toeholding bridge"-Strang (in dunklem Blaugrün dargestellt). Letzteres enthält einen Sechs-Nukleotid-Überhang, an den ein entsprechend gestalteter Eindringlingsstrang binden und anschließend den "Zehenhaltebrücken"-Strang vollständig verschieben kann, was die Dissoziation des zentralen Nanosternübergangs (bestehend aus "Kern 1", "2", "3" und "4") von den Duplexen bewirkt, die aus den Strängen des "terminalen Komplements" und des "terminalen Cholesterins" bestehen. (C) Schematische Darstellung eines C-Sterns, der mit einem DNA-Template für ein RNA-Aptamer funktionalisiert wurde. Auch dieser setzt sich aus dem Strang "Terminales Cholesterin" und "Core 2, 3 und 4" (alle grau dargestellt) sowie einer erweiterten Version des "Core 1"-Strangs (pink dargestellt), einem "Base"-Strang (braun), einem "Bridge"-Strang (gelb) und dem "Aptamer-Template" (grün) zusammen. Der DNA-Duplex, der aus den beiden letztgenannten Strängen besteht, bildet die T7-Polymerase-Promotorregion, die die Startstelle der Transkription markiert. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
C-Stern-Kondensate bilden sich beim thermischen Glühen der konstituierenden Oligonukleotide, das in dem hier vorgestellten Protokoll in versiegelten Glaskapillaren mit einem rechteckigen Querschnitt mit hohem Aspektverhältnis durchgeführt wird. Diese Behälter bieten mehrere entscheidende Vorteile: i) Die Versiegelung stellt sicher, dass die Verdunstung über die (manchmal langsamen) Glühschritte vollständig verhindert wird; ii) Der flache Boden der Kapillaren in optischer Qualität ermöglicht die Abbildung der Selbstorganisation (oder Demontage) Transiente; iii) Das hohe Aspektverhältnis der Kapillaren stellt sicher, dass sich schwere Kondensate über eine breite, flache Fläche absetzen, wodurch die Wahrscheinlichkeit von Koaleszenz und Aggregation in späteren Stadien der Selbstorganisationstransiente, die in keilförmigen Behältern (z. B. Mikrozentrifugenröhrchen) auftreten würden, verringert wird und relativ monodisperse Kondensatpopulationen entstehen. iv) Das Glühen in einer länglichen Glaskapillare minimiert die Exposition der Probe gegenüber hydrophoben Grenzflächen (Luft, Kunststoff oder Öl), von denen beobachtet wurde, dass sie die Selbstorganisation stören, indem sie die amphiphilen cholesterinisierten Oligonukleotide rekrutieren. Sobald das Assemblierungsprotokoll abgeschlossen ist, können Kondensate aus Glaskapillaren extrahiert werden, um weitere Experimente durchzuführen, bei denen zusätzliche Reagenzien zum Einsatz kommen.
Protokoll
HINWEIS: Das Protokoll ist in drei Abschnitte unterteilt. Abschnitt 1 beschreibt die erforderlichen Schritte, einschließlich der Herstellung von DNA-Oligonukleotiden und Glaskapillaren. Abschnitt 2 beschreibt die Aufbereitung von C-Stern-Kondensaten unterschiedlicher Bauart, einschließlich Ein- und Zweikomponenten-Ausführungen, und deren Extraktion aus den Glaskapillaren. Abschnitt 3 beschreibt die Verwendung von Einkomponenten-RNA-Templating-C-Stern-Kondensaten für die Synthese eines RNA-Aptamers. Der Benutzer muss die gute Laborpraxis durchgehend befolgen, sicherstellen, dass alle erforderlichen Risikobewertungen und -minderungen vorhanden sind, und geeignete persönliche Schutzausrüstung (PSA) tragen, einschließlich Handschuhe, Schutzbrille und Laborkittel. Die Reinigung von Glaskapillarrohren erfordert deren Beschallung, zunächst in einer Tensidlösung und dann in Isopropanol oder Ethanol. Die Extraktion von C-Stern-Kondensaten aus Kapillarrohren erfordert die Verwendung eines Diamant-Ritzstifts, um das Glas zu ritzen und zu brechen, mit der damit verbundenen Verletzungsgefahr durch Glassplitter. Die wichtigsten Materialien, Geräte und verwendeten Reagenzien sind in der Materialtabelle aufgeführt. Die meisten nicht-funktionalisierten Oligonukleotide werden vom Lieferanten unter Verwendung der Standardentsalzung aufgereinigt, mit Ausnahme der Stränge "erweiterter Core 1" und "Aptamer-Matrize", die mit Polyacrylamid-Gelelektrophorese (PAGE)-Aufreinigung bestellt werden. Cholesterinmodifizierte Oligonukleotide werden vom Lieferanten mittels Umkehrphasen-Hochleistungsflüssigkeitschromatographie (HPLC) aufgereinigt.
1. Voraussetzungen
HINWEIS: Die folgenden Lösungen sollten in ultrareinem Wasser (Typ I) hergestellt und mit 0,22 μm Spritzenvorsatzfiltern filtriert werden: Tris-EDTA (TE)-Puffer, bestehend aus 10 mM Tris, 1 mM EDTA, bei einem pH-Wert von ~8,0; TE-Puffer ergänzt mit 2 M NaCl; und TE-Puffer, ergänzt mit 0,3 M NaCl. Pufferlösungen sollten innerhalb von 2 Wochen nach der Zubereitung verwendet und bei Nichtgebrauch bei 4 °C gelagert werden. Zusätzlich wird eine 1 Vol.-% Lösung eines alkalischen optischen Reinigungsmittels in Reinstwasser zur Reinigung der Glaskapillaren verwendet.
- Herstellung von DNA-Oligonukleotiden aus lyophilisiertem Zustand
- Zentrifugieren Sie die Röhrchen mit den lyophilisierten DNA-Oligonukleotiden kurz (2000 x g für 10-30 s), um sicherzustellen, dass sich die Pellets mit lyophilisierter DNA am Boden sammeln.
HINWEIS: Die Zentrifugation erfolgt bei Raumtemperatur (RT) für 10-30 s. Die hier verwendete Mini-Zentrifuge ist standardmäßig auf 2000 x g (6000 U/min) eingestellt. - Fügen Sie die entsprechende Menge TE-Puffer hinzu, um jedes Oligonukleotid bei 100 μM zu rekonstituieren. Vortex gründlich, um eine vollständige Auflösung sicherzustellen, und drehen Sie dann die Röhrchen nach unten, um die gesamte Flüssigkeit gemäß Schritt 1.1.1 aufzufangen.
- Für jede Stammlösung ist die Extinktion bei 260 nm zu messen und die Endkonzentration unter Verwendung des Extinktionskoeffizienten der zu prüfenden Oligonukleotidsequenz zu berechnen.
HINWEIS: Der Extinktionskoeffizient für eine gegebene Oligonukleotidsequenz ist in der Regel auf dem Datenblatt des Lieferanten zu finden, kann aber auch mit Online-Tools unter Verwendung des Nearest-Neighbor-Modells35 oder tabellarischer Werte des Extinktionskoeffizienten einzelner Nukleotide36 berechnet werden. - Lagern Sie die rehydrierten Oligonukleotide für kurze Zeit (bis zu 1 Woche) bei 4 °C oder bei -20 °C für eine längerfristige Lagerung (bis zu 6 Monate).
- Zentrifugieren Sie die Röhrchen mit den lyophilisierten DNA-Oligonukleotiden kurz (2000 x g für 10-30 s), um sicherzustellen, dass sich die Pellets mit lyophilisierter DNA am Boden sammeln.
- Reinigung von Glaskapillarrohren
- Beschallung in 1 % alkalischem optischem Reinigungsmittel für optische Komponenten in entionisiertem Wasser.
- Nehmen Sie die erforderliche Anzahl von zu reinigenden Glaskapillarröhrchen und legen Sie sie in ein hohes, schmales Gefäß (z. B. ein Becherglas oder ein 15/50 mL-Zentrifugenröhrchen), so dass die Kapillaren nicht flach auf dem Boden des Behälters aufliegen.
- Gib das Reinigungsmittel in den Behälter und fülle ihn knapp über dem Niveau der Kapillarrohre. Stellen Sie sicher, dass sich keine Luftblasen in den Kapillarrohren befinden - klopfen Sie bei Bedarf zum Entfernen. Decken Sie den Behälter locker ab (z. B. in Alufolie oder mit dem Deckel des Zentrifugenröhrchens, wobei Sie darauf achten müssen, dass er nicht fest verschlossen ist).
- Stellen Sie ein Beschallungswasserbad auf 40 °C ein, stellen Sie das abgedeckte Gefäß aufrecht in das Bad und beschallen Sie es 30 Minuten lang. Stellen Sie sicher, dass die Folie, falls sie verwendet wird, nicht mit dem Wasser im Beschallungsbad in Berührung kommt.
HINWEIS: Das in dieser Studie verwendete Beschallungsbad hat standardmäßig eine Beschallungsfrequenz von 60 Hz und eine Beschallungsleistung von 150 W.
ACHTUNG: Fügen Sie niemals Gegenstände zu einem Beschallungsbad hinzu oder entfernen Sie es daraus, während es läuft. Pausieren Sie immer zuerst das Protokoll. - Sobald die Beschallung abgeschlossen ist, schalten Sie das Heizelement des Beschallungswasserbads aus und spülen Sie dann die Kapillaren im Behälter gründlich mit entionisiertem oder Reinstwasser - mindestens fünfmal, wobei Sie das Spülwasser jedes Mal entsorgen.
- Beschallung in 1 % alkalischem optischem Reinigungsmittel für optische Komponenten in entionisiertem Wasser.
- Ultraschall in Isopropanol oder Ethanol.
- Geben Sie zu den Glaskapillarröhrchen im Reinigungsbehälter Isopropanol oder Ethanol (mindestens 70 %) und füllen Sie sie bis knapp über das Niveau der Kapillarröhrchen. Wie in Schritt 1.2.1.2 ist darauf zu achten, dass sich keine Luftblasen in den Kapillarrohren befinden, und den Behälter locker abdecken.
- Stellen Sie den Behälter aufrecht in das Beschallungsbad und beschallen Sie ihn 15-30 min lang.
ACHTUNG: Isopropanol und Ethanol sind brennbar und haben Flammpunkte unterhalb der RT. Minimieren Sie die Menge an Lösungsmitteln, die während der Reinigung verwendet werden, indem Sie einen Behälter mit geeigneter Größe wählen, sicherstellen, dass die Behälter locker abgedeckt sind, und das Beschallungsbad während dieser Phase nicht unbeaufsichtigt lassen. - Sobald die Beschallung abgeschlossen ist, entsorgen Sie das Isopropanol oder Ethanol ordnungsgemäß und trocknen Sie die Kapillaren unter Stickstoff, indem Sie sie mit einem fusselfreien Tuch behandeln.
2. Aufbereitung und Extraktion von C-Profil-Kondensaten (Abbildung 2)
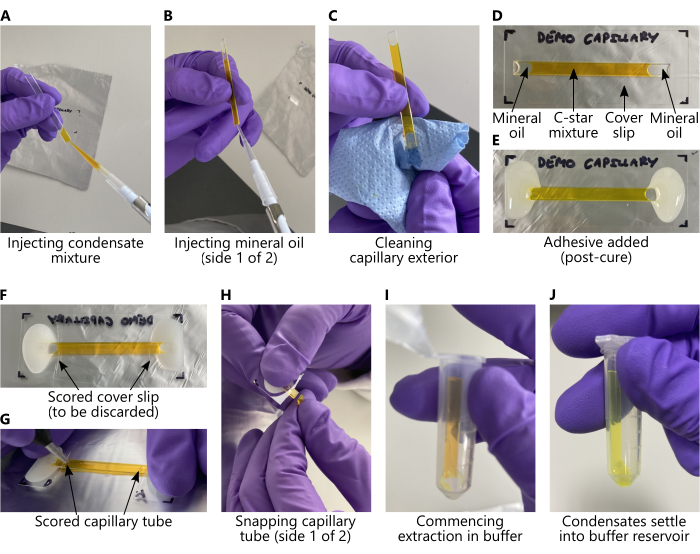
Abbildung 2: Beladung von C-Stern-Gemischen und Absaugung von Kondensaten aus Glaskapillarrohren. In allen Paneelen wurde das C-Stern-Gemisch durch eine wässrige Lösung von 25 mM Calcein ersetzt, um die Sichtbarkeit zu verbessern. (A-E) Wichtigste Schritte, die vor dem Glühen zu unternehmen sind, entsprechend den Protokollabschnitten 2.1 und 2.2. (F-J) Wichtige Schritte, die nach dem Glühen durchzuführen sind, entsprechend Protokollabschnitt 2.3. Während der Extraktion (Paneele (I-J)) sedimentieren DNA-Kondensate aus der Kapillare in das Pufferreservoir, solange das Mikrozentrifugenröhrchen vertikal gelagert wird. Kondensate sind mit bloßem Auge nicht sichtbar. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
- Aufbereitung von C-Stern-Gemischen für Einkomponenten-Kondensate
ANMERKUNG: Sequenzdetails für verschiedene Designs einzelner Komponenten finden sich in der Ergänzenden Tabelle 1 und in den früheren Arbeiten29, 30, 32. Die in den Schritten 2.1.9 und 2.2.2 definierten Slow-Annealing-Protokolle wurden entwickelt, um die Relaxation der Nanostar-Netzwerke in kompakte Morphologien zu gewährleisten, da die stark temperaturabhängigen rheologischen Eigenschaften der Nanostar-Netzwerke37 berücksichtigt werden.- Die Oligonukleotid- und Pufferkomponenten variieren je nach gewünschtem C-Profil-Design. Bereiten Sie eine 60-μl-Mischung aus Einkomponenten-C-Stern-Kondensaten in einer Konzentration von 5 μM entweder für den nicht responsiven vierarmigen C-star, den TMSD-responsiven C-star oder den RNA-Templating-C-star vor.
- Pipettieren Sie für jedes Design die entsprechenden Komponenten, die in der ergänzenden Tabelle 2 aufgeführt sind, in ein separates Mikrozentrifugenröhrchen und mischen Sie es gründlich durch Pipettieren.
HINWEIS: Es wird davon ausgegangen, dass alle Oligonukleotid-Stammlösungen eine Konzentration von 100 μM in TE aufweisen. - Entnehmen Sie die gesamten 60 μl C-Stern-Lösung und pipettieren Sie vorsichtig, um die Mischung in das gereinigte, trockene Glaskapillarröhrchen zu injizieren, wie in Abbildung 2A gezeigt, wobei darauf zu achten ist, dass keine Luftblasen entstehen.
- Injizieren Sie mit einer Pipette etwa 9-12 μl Mineralöl in jedes Ende des Kapillarröhrchens und verschließen Sie die Probe so, dass keine freie Grenzfläche zwischen der C-Profil-Lösung und der Luft vorhanden ist (siehe Abbildung 2B). Trocknen Sie dann das Kapillarrohr vorsichtig mit Seidenpapier ab, um sicherzustellen, dass sich kein Öl auf der Außenseite befindet (Abbildung 2C), und achten Sie darauf, dass kein Mineralöl oder C-Stern-Lösung aus dem Kapillarrohr herauskommt. Das Endergebnis ist in Abbildung 2D dargestellt.
- Bereiten Sie eine kleine Charge zweikomponentigen Epoxidklebers vor, um jedes Ende des Kapillarrohrs mit der flachen Seite nach unten auf einen Glasabdeckglas zu kleben. Stellen Sie sicher, dass die Öffnungen des Rohrs vollständig mit Klebstoff bedeckt sind, um eine durchgehende Abdichtung zu bilden, wie in Abbildung 2E gezeigt.
- Zum Aushärten mindestens 3 Stunden beiseite stellen, vorzugsweise jedoch über Nacht.
- Überprüfen Sie nach ~30 min Aushärtung die Leimschicht auf Lücken in der Dichtung, die durch Luftblasen verursacht wurden. Wenn diese vorhanden sind, versiegeln Sie sie mit einer kleinen Menge Kleber.
- Wickeln Sie das auf das Deckglas geklebte Kapillarrohr in Alufolie ein und achten Sie darauf, dass die Folie an der Unterseite des Glasdeckglases flach bleibt. Die Folie sorgt für einen guten thermischen Kontakt zwischen derselben und dem Heizelement des Thermocyclers (siehe nächster Schritt).
- Legen Sie die eingewickelte Probe in einen Thermocycler und glühen Sie sie nach folgendem Protokoll: 30 Minuten lang bei 95 °C halten, dann von 85 °C auf 50 °C bei -0,04 °C·min-1 abkühlen und dann von 50 °C auf RT bei -0,5 °C·min-1 abkühlen.
- Lagern Sie die geglühten C-Profil-Kondensate über längere Zeiträume (Monate) bei 4 °C oder RT, solange die Kapillare verschlossen bleibt, da das thermische Glühen die Probe effektiv sterilisiert und Nukleasen denaturiert. Halten Sie die Kapillare während der Lagerung und Handhabung flach, um zu verhindern, dass Kondensate zu einem Ende hin sedimentieren und sich ansammeln.
- Aufbereitung von C-Stern-Gemischen für binäre Kondensate
HINWEIS: Um die Auswahl der C-Stern-Populationen für Doppelsternsysteme zu informieren, beziehen Sie sich auf die Arbeit von Malouf et al., die die Designregeln und das erwartete Phasenverhalten von C-Stern-Doppelsternkondensaten30 beschreibt.- Zur Herstellung von binären Kondensaten werden 30 μl Volumen der in Schritt 2.1 beschriebenen C-Stern-Mischungen zu einem Gesamtvolumen von 60 μl kombiniert, gründlich gemischt, in die Kapillaren geladen und die Schritte 2.1.4 bis 2.1.8 befolgt.
- Legen Sie die verpackte Probe in einen Thermocycler und glühen Sie sie nach folgendem Protokoll: 30 Minuten lang bei 95 °C halten, dann von 85 °C auf 40 °C bei -0,01 °C-min-1 abkühlen und dann von 40 °C auf RT bei -0,1 °C-min-1 abkühlen.
- Extraktion von C-Stern-Kondensaten aus Kapillarrohren.
- Bereiten Sie ein großes (1,5 mL oder 2,0 mL) Mikrozentrifugenröhrchen mit 60 μl 0,3 M NaCl in TE-Puffer vor.
- Wickeln Sie die Kapillarprobe aus und ritzen Sie mit einem Diamant-Ritzstift die Unterseite des Deckglases an jedem inneren Ende des geklebten Bereichs ein (Abbildung 2F). Brechen Sie das Deckglas in diesem Bereich ab und entsorgen Sie es entsprechend.
- Reinigen Sie die Kapillarröhrchen gründlich mit Ethanol und trocknen Sie sie.
- Ritzen Sie jedes Ende der Kapillarrohre mit dem Diamantritzstift ein, zuerst mit der Unterseite (Abbildung 2G), dann drehen Sie die Röhren um und ritzen Sie sie mit der richtigen Seite nach oben.
- Stellen Sie sicher, dass sich die Schnittlinien nicht mit der Öl-Wasser-Schnittstelle überlappen. Sie müssen sich im wässrigen Bereich befinden, um zu verhindern, dass Öl in der extrahierten Probe verbleibt.
- Brechen Sie die Enden der Kapillarröhrchen ab (Abbildung 2H), behalten Sie den mittleren Teil des Röhrchens bei und entsorgen Sie den Rest. Legen Sie das geschnittene Kapillarröhrchen in das in Schritt 2.3.1 vorbereitete Mikrozentrifugenröhrchen und achten Sie darauf, dass der Boden des Kapillarröhrchens mit der Pufferlösung in Kontakt kommt (Abbildung 2I).
- Die Kondensate sedimentieren durch die Schwerkraft aus dem Rohr in das Pufferreservoir; Lassen Sie dies mindestens 10 Minuten lang stattfinden (Abbildung 2J). Entfernen Sie das abgeschnittene Kapillarrohr und entsorgen Sie es ordnungsgemäß. Dieser schonende Extraktionsansatz begrenzt das Risiko einer Kondensataggregation.
3. Transkription eines RNA-Aptamers aus RNA-Templating C-Stern-Kondensaten
HINWEIS: Für die Herstellung des Brokkoli-RNA-Aptamers wird eine Lösung von Difluor-4-hydroxybenzyliden-Imidazolidinon (DFHBI) benötigt - DFHBI-Pulver wird zunächst als Stammlösung bei 10 mM in Dimethylsulfoxid (DMSO) hergestellt, das dann in RNase- und DNase-freiem Wasser auf 600 μM verdünnt wird.
- Waschen von RNA-Templating C-Stern-Kondensaten
HINWEIS: C-Stern-Kondensate mit RNA-Templating werden dreimal gewaschen, um sicherzustellen, dass ungebundene Template-Oligonukleotide entfernt werden.- Lassen Sie die Lösung der extrahierten Kondensate mindestens 5 Minuten lang absetzen und entfernen Sie dann etwa die Hälfte des Volumens des Überstands.
- Bei einem Volumen von 60 μl extrahierter Kondensate entfernen Sie zwischen 25 und 30 μl des Überstands.
- Pipettieren Sie von der Oberseite des Flüssigkeitsspiegels, um die Anzahl der während dieses Schritts entfernten Kondensate zu minimieren.
- Geben Sie das gleiche Volumen von 0,3 M NaCl in TE zu, um den entfernten Überstand zu ersetzen, und mischen Sie durch Pipettieren.
- Wiederholen Sie die beiden vorherigen Schritte für insgesamt drei Zyklen.
- Lassen Sie die Lösung der extrahierten Kondensate mindestens 5 Minuten lang absetzen und entfernen Sie dann etwa die Hälfte des Volumens des Überstands.
- Herstellung des T7-Transkriptionsgemisches
HINWEIS: Das T7-Transkriptionsgemisch wird mit dem CellScript T7-FlashScribe Transkriptionskit hergestellt. Schritt 3.2.2 ist eine Modifikation des Protokolls des Herstellers, das hier zu finden ist38. Hier beschreiben wir die Transkription des Brokkoli-RNA-Aptamers, das bei Bindung die Fluoreszenz in DFHBI induziert. Bei anderen leuchtenden Aptameren ist das in Schritt 3.2.2 beschriebene Volumen von DFHBI durch das entsprechende Fluorogen zu ersetzen. Bei anderen Transkripten entfernen Sie diese Komponente vollständig.- Bereiten Sie eine Stammlösung von 10 mM DFHBI in DMSO vor und verdünnen Sie dann ein Aliquot auf eine Endkonzentration von 600 μM mit RNase- und DNase-freiem Wasser.
- Tauen Sie die Komponenten des Transkriptionskits auf Eis auf und pipettieren Sie dann Folgendes mit sterilen Pipettenspitzen bei Raumtemperatur in ein autoklaviertes Mikrozentrifugenröhrchen: 2 μl 10x T7-Transkriptionspuffer (im Transkriptionskit enthalten), 1,8 μl 100 mM ATP, 1,8 μl 100 mM CTP, 1,8 μl 100 mM UTP, 1,8 μl 100 mM GTP, 2 μl 100 mM DTT, 2 μl 600 μM DFHBI, 0,5 μl RNase-Inhibitor, 2 μl T7-Enzymlösung (im Transkriptionskit enthalten).
- Mischen Sie die Lösung vorsichtig durch Pipettieren.
- Verwenden Sie die Transkriptionsmischung für Schritt 3.3 (Synthese des RNA-Transkripts) unmittelbar nach der Vorbereitung.
- Synthese des RNA-Transkripts
- In eine für die Mikroskopie geeignete Kammer pipettieren Sie 3,3 μl der gewaschenen Kondensate, die aus RNA-Templating-C-Sternen hergestellt wurden, und fügen Sie das Gesamtvolumen des zuvor hergestellten Transkriptionsgemisches hinzu.
- Nehmen Sie Mikroskopiebilder für eine Dauer von 18 Stunden auf, beginnend unmittelbar nach der Zugabe des Transkriptionsgemisches zu den Kondensaten.
HINWEIS: Die Mikroskopieeinstellungen hängen vom vorbereiteten System ab. Stellen Sie sicher, dass die entsprechenden Anregungs- und Emissionseinstellungen für alle Fluorophore in der Probe verwendet werden, zusammen mit den Expositionszeiten, die im Verlauf der Transkription nicht zu einer Sättigung führen. Wie bei jedem Zeitraffer sollte ein Kompromiss zwischen einer ausreichend hohen Laser- oder LED-Leistung für ein gutes Signal und der Minimierung des Risikos von Photobleaching gefunden werden. Photobleaching über lange Zeiträume wird bei LED-basierten Systemen im Vergleich zu laserbasierten Systemen minimiert. Empfohlene Bildgebungsintervalle: 20 Minuten für die ersten 2 Stunden und 30 Minuten danach.
Ergebnisse
Nach dem Glühen können C-Stern-Kondensate direkt im Kapillarrohr oder nach der Extraktion abgebildet werden, um ihre Bildung zu bestätigen. Bei allen C-Profil-Designvarianten sollte man unterschiedliche kugelförmige oder polyedrische Kondensate mit einem Durchmesser von etwa 10-50 μm beobachten, wobei sich letztere bei der Kristallisation bilden 28,32. Bei Einkomponenten-Kondensaten sollten die Kondensate diskret und gleichmäßig aussehen und können je nach verwendeter C-Profil-Konstruktion polyedrisch (Abbildung 3A) oder kugelförmig (Abbildung 3B, C) erscheinen. Die Morphologie binärer Kondensate hängt von den Eigenschaften der verwendeten C-Stern-Populationen ab, wie zuvor beschrieben30. Abbildung 3D zeigt binäre Kondensate, die erwartungsgemäß eine Phasentrennung aufweisen, die in der Hellfeldbildgebung zu beobachten ist. Das Vorhandensein von Luftblasen im Kapillarrohr kann auch die Selbstorganisation der Kondensate beeinträchtigen, was häufig zu einer Aggregation in der Nähe der Luftgrenzfläche führt (Abbildung 4A,B). Falsch hergestellte Gemische, wie z. B. solche, denen Oligonukleotidkomponenten fehlen, oder solche, die mit unausgeglichenen Stöchiometrien hergestellt wurden, können dazu führen, dass sich Kondensate überhaupt nicht bilden oder nicht-sphärisch verbundene Netzwerke oder Aggregate bilden, wie in Abbildung 4C dargestellt. In ähnlicher Weise können falsch vorbereitete binäre Kondensate Aggregationen und Netzwerke aufweisen und auch keine beobachtbare Phasentrennung aufweisen, wie in Abbildung 4D gezeigt.
Für die Transkription von RNA-Leuchtaptameren wird ein erfolgreiches Ergebnis beobachtet, indem die Zunahme der Fluoreszenz des Fluorogens im Laufe der Zeit überwacht wird, z. B. durch Mikroskopie (Abbildung 5) oder Spektrophotometrie.
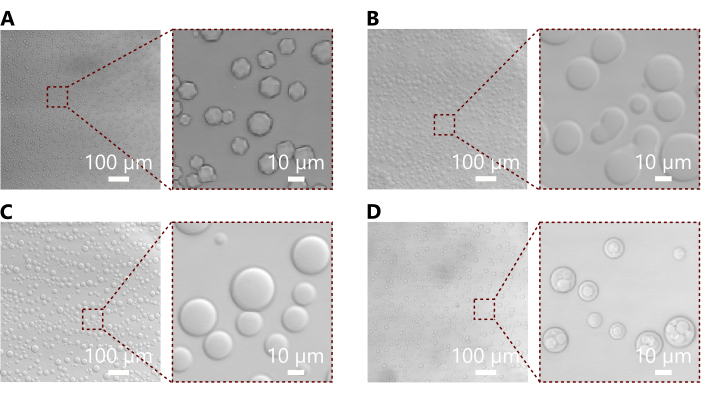
Abbildung 3: Repräsentative Schliffbilder, die geglühte C-Stern-Kondensate zeigen. (A) Hellfeldmikroskopische Aufnahme und Einschub, die Kondensate zeigt, die aus einem nicht reagierenden C-Stern mit einer Armlänge von 28 Basenpaaren gebildet wurden. Hier sehen wir die polyedrische Morphologie, die die kristalline Ordnung der kleineren C-Sterne32 widerspiegelt. (B) Hellfeldmikroskopische Aufnahme und Einschub, die Kondensate zeigt, die aus einem TMSD-responsiven C-Stern gebildet wurden, mit einer Armlänge von 50 Basenpaaren. Diese Kondensate sind breit kugelförmig, obwohl viele eine unregelmäßigere Morphologie aufweisen, die auf die Verschmelzung mehrerer Kondensate hinweist, wie es bei größeren C-Sternen zu erwarten ist, die tendenziell flüssiger sind32. (C) Hellfeldmikroskopische Aufnahme und Einschub, die Kondensate zeigt, die aus einem nicht reagierenden C-Stern mit einer Armlänge von 35 Basenpaaren gebildet wurden. Diese Kondensate erscheinen kugelförmig, obwohl Röntgenstreudaten mit kleinen Winkeln aus früheren Arbeiten zeigen, dass ihre Mikrostruktur kristallin32 ist. (D) Hellfeldmikroskopische Aufnahme und Einschub, die binäre Kondensate zeigt, die aus einer Kombination der C-Stern-Populationen gebildet werden, die auch in den Tafeln (B) und (C) verwendet werden. Die Kombination dieser beiden Populationen führt zur Bildung von Kondensaten mit ausgeprägter Phasentrennung, die ohne Fluoreszenzmarkierung sichtbar sind. Andere Kombinationen weisen möglicherweise keine Phasentrennung auf, wie in früheren Arbeitenbeschrieben 30. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
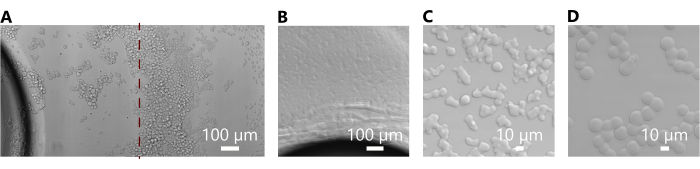
Abbildung 4: Mikroskopische Aufnahmen, die häufige Probleme bei falsch aufbereiteten Kondensaten zeigen. (A) Hellfeld-Mikroskopaufnahmen, die Kondensate zeigen, die aus einem nicht reagierenden C-Stern mit einer Armlänge von 28 Basenpaaren gebildet wurden (der sich in Abbildung 3A erfolgreich gebildet hat) in Gegenwart einer Luftblase im Kapillarrohr. Das Panel besteht aus zwei Mikrographen, die an der roten gestrichelten Linie aufgestickt sind, und zeigt die Ansammlung von Kondensaten in der Nähe der Luftgrenzfläche. (B) Hellfeldmikroskopische Aufnahme, die Kondensate zeigt, die aus einem TMSD-responsiven C-Stern mit 50 Basenpaaren auf Armlänge gebildet wurden (der sich in Abbildung 3B erfolgreich gebildet hat) in Gegenwart einer Luftblase im Kapillarrohr. Hier sind die Kondensate zu einem kontinuierlichen miteinander verbundenen Netzwerk verschmolzen, was auf die flüssigere Natur der Kondensate zurückzuführen ist, die aus größeren C-Stern-Motiven bestehen32. (C) Hellfeldmikroskopische Aufnahme, die Kondensate zeigt, die aus einem nicht reagierenden C-Stern mit einer Armlänge von 35 Basenpaaren gebildet wurden (der sich in Abbildung 3C erfolgreich gebildet hat). Die Morphologie ist unregelmäßig und eckig, was auf einen Präparationsfehler und möglicherweise unausgewogene Stöchiometrien hinweist. (D) Hellfeldmikroskopische Aufnahme von binären Kondensaten, die aus einer Kombination der C-Stern-Populationen gebildet wurden, wie in Fig. 3D. Diese Kondensate sind stark verbunden, wie in Tafel (C), und weisen auch nicht die erwartete Phasentrennung auf (siehe Abbildung 3D), was auf einen Fehler bei ihrer Herstellung hinweist. Während die genauen Fehlerquellen schwer zu lokalisieren sind, können falsche Stöchiometrien oder die Verwendung falscher Oligonukleotidsequenzen Ursachen haben. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
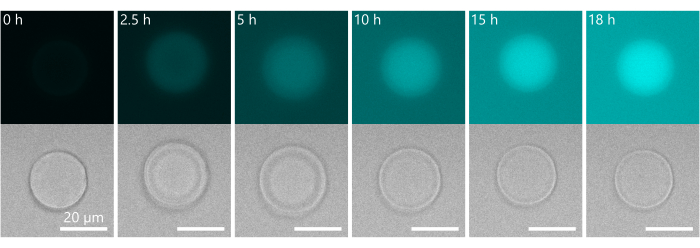
Abbildung 5: Repräsentative Ergebnisse aus der Transkription eines eingebetteten DNA-Templates für ein RNA-Aptamer. Zeitraffer, der die Synthese des Brokkoli-Leuchtaptamers über die Transkription eines DNA-Templates zeigt, das in Kondensaten eingebettet ist, die aus dem in Abbildung 1C beschriebenen C-Stern-Motiv hergestellt wurden. Das Aptamer bindet an das im Transkriptionsgemisch vorhandene DFHBI und induziert eine Zunahme der Fluoreszenz im Laufe der Zeit. Bemerkenswert ist hier eine Veränderung der Morphologie des Kondensats im Laufe der Zeit, die eine Kern-Schale-Struktur zu bilden scheint. Dieses Phänomen ist wahrscheinlich auf eine Schwellung der äußeren Schicht des Kondensats zurückzuführen, die auf ein vorübergehendes osmotisches Druckungleichgewicht zurückzuführen ist, das mit der lokalen Produktion des RNA-Aptamers verbunden ist. Die Aptamerproduktion kann aufgrund der berichteten Tendenz des Aptamer-Matrizenstrangs, sich in diesem Bereich anzureichern, bevorzugt in den äußeren Schichten der Kondensate erfolgen30. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
Ergänzende Tabelle 1: Sequenzangaben für verschiedene Bauformen einzelner Komponenten. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Ergänzende Tabelle 2: Volumen der Komponenten für jede Konstruktion. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
Das hier beschriebene Protokoll bietet einen Ansatz für die Herstellung von Ein- oder Zweikomponenten-Kondensaten aus amphiphilen DNA-Nanosternen, mit Designvariationen, um unterschiedliche Reaktionen in die Kondensate einzuführen. Das gegebene Protokoll erzeugt Kondensate in einer Pufferlösung von 0,3 M NaCl in TE, aber die Pufferbedingungen können durch entsprechende Modifikation der oben aufgeführten Volumina geändert werden. Frühere Arbeiten haben die Bildung von C-Stern-Kondensaten in 0,2 M NaCl in TE und 0,1 M NaCl in TE und in phosphatgepufferter Kochsalzlösung (PBS) untersucht32. Die C-Stern-Kondensate werden bei einer Endkonzentration von 5 μM erzeugt, aber auch dies kann durch geeignete Modifikation der Oligonukleotidkonzentrationen und/oder Volumina, die im obigen Protokoll hinzugefügt wurden, variiert werden. Abhängig von den gewünschten Variationen kann es erforderlich sein, Oligonukleotid-Stammlösungen in unterschiedlichen Konzentrationen und in unterschiedlichen Puffern im Vergleich zu dem in Abschnitt 1 beschriebenen Protokoll herzustellen, obwohl die praktischen Aspekte des Protokolls gleich bleiben. Das C-Star-Design kann leicht modifiziert werden, um eine andere Funktionalität oder Reaktion einzuführen, wie in der vorherigen Arbeit32 beschrieben. Zu den Designvariationen gehört die Einführung von Motiven, die auf pH-Änderungen32, Kaliumionen31 oder Oligonukleotidsequenzen30, 32 reagieren. Sollten neue Designs gewünscht werden, wird empfohlen, die Anordnung zunächst rechnerisch zu testen (unter Verwendung von Werkzeugen wie NUPACK39) und dann die Bildung der äquivalenten, nicht cholesterinisierten Nanosterne mittels Agarose-Gelelektrophorese 32,40 zu testen. Das Ausmaß der Phasentrennung in binären Kondensaten hängt von der Kombination der verwendeten C-Stern-Populationen ab, wie in früheren Arbeitenbeschrieben 30. Wir stellen fest, dass die für die Kondensatbildung spezifizierten Annealing-Protokolle Zeitskalen benötigen, die weitaus länger sind als die für die Faltung kleiner DNA-Nanostrukturen, ähnlich wie bei einzelnen C-Sternen, typisch sind. In der Tat ist ein langsames Glühen erforderlich, um eine Äquilibrierung über die größeren Längenskalen der Kondensate zu ermöglichen. Für Einkomponenten-Kondensate hat das vorgeschlagene Protokoll eine Dauer von 17 Stunden, und für binäre Kondensate wird ein noch längeres Glühprotokoll (~3 Tage) verwendet, um sich dem thermodynamischen Gleichgewicht zu nähern. Wir haben festgestellt, dass diese Protokolle reproduzierbare Ergebnisse über alle verschiedenen bisher verwendeten C-Star-Populationen liefern, aber sollten Forscher den Probendurchsatz verbessern wollen, würden wir eine systematische Studie empfehlen, in der die Annealing-Raten moduliert werden, um das kürzestmögliche Protokoll zu finden, bei dem die gewünschten Morphologien für das zu testende System erreicht werden können. Es wird empfohlen, den 30-minütigen Halt bei 95 °C unverändert zu lassen, da dieser Schritt die Probe effektiv sterilisiert und eine langfristige Lagerung in Kapillarröhrchen ermöglicht.
Die Kammer, in der C-Stern-Kondensate produziert werden, ist entscheidend für deren erfolgreiche Bildung. Die Kammer sollte aus Glas oder Quarz bestehen; Die Verwendung von Kunststoffbehältern wie Polypropylen, einem typischen Material für Mikrozentrifugenröhrchen, stört die Selbstorganisation aufgrund hydrophober Wechselwirkungen zwischen dem Kunststoff und den Cholesteringruppen. Das Aspektverhältnis des Glühbehälters und die Konzentration des C-Stern-Gemisches wirken sich ebenfalls auf die Eigenschaften der Kondensate aus, insbesondere auf ihre Größe und Aggregation. Insbesondere wenn ein "höherer" Behälter mit einer kleinen Oberfläche am Boden im Verhältnis zu seiner Höhe verwendet wird, sedimentieren C-Stern-Kondensate am Boden mit hoher Oberflächendichte, was die Bildung von Kontaktpunkten zwischen den Kondensaten begünstigt. Treten diese erst spät im thermischen Glühprozess auf, wenn die Temperatur relativ niedrig ist und sich die Kondensate entweder als hochviskose Flüssigkeiten oder Feststoffe verhalten, entspannen sich berührende Kondensate nicht zu kugelförmigen Formen, sondern bilden unregelmäßige Aggregate in teilweise verschmolzenen Konfigurationen. Beim Pipettieren des C-Stern-Gemisches in Kapillarröhrchen sollte darauf geachtet werden, dass keine Luftblasen gebildet werden - an der Grenzfläche zwischen Luft und Wasser neigen große Aggregate dazu, sich zu bilden, so dass die extrahierten Kondensate eine nicht ideale Größe und Morphologie aufweisen. Das Trocknen der Enden der Kapillarrohre nach dem Einspritzen des C-Stern-Gemisches oder des Mineralöls führt zu einer verbesserten Haftung. Der gewählte Klebstoff muss viskos genug sein, um die Kapillarrohröffnungen vollständig zu beschichten, ohne in das Rohr eingedrungen zu werden, mineralölinert, glasverträglich und stabil bei den verwendeten Glühtemperaturen. Wir haben festgestellt, dass der zweikomponentige Epoxidklebstoff Araldite Rapid für unsere Zwecke geeignet ist, obwohl er nur für Temperaturen von 80 °C ausgelegt ist. Luftblasen oder Lücken im Kleber führen zu unvollkommen abgedichteten Kapillaren, die beim Glühen zum Auslaufen neigen. Nachdem der Kleber ausgehärtet ist, hat das Einwickeln der Proben in Aluminiumfolie den doppelten Vorteil, dass alle Leckagen eingedämmt und der thermische Kontakt zwischen der Probe und dem Thermocycler verbessert werden. Die Folie sollte so glatt und flach wie möglich gehalten werden, um sicherzustellen, dass die Kapillaren während des Glühens waagerecht bleiben. Geglühte Kondensate in Kapillaren können langfristig bei Raumtemperatur gelagert und bei Bedarf wieder geglüht werden. Die Proben sollten vorsichtig behandelt werden - die Kondensate verschmelzen wahrscheinlich, wenn sie in Kontakt kommen, daher sollten die Kapillaren flach gelagert werden. Für eine optimale mikroskopische Bildgebung kann das Deckglas eingeritzt und entfernt werden, während die Kapillarröhrchen intakt bleiben. Kondensate haben in der Regel einen Durchmesser von mehr als 5 μm, und wir haben während ihrer Abbildung keine signifikante Brownsche Bewegung beobachtet29,30.
Es wird empfohlen, mehrere unabhängige Chargen von C-Profil-Kondensaten herzustellen, um sicherzustellen, dass mögliche Unterschiede zwischen den Proben Unterschiede in der Zusammensetzung oder den Glühbedingungen widerspiegeln und nicht durch mögliche experimentelle Fehler verursacht werden.
Kleine Glaspartikel werden wahrscheinlich als Ergebnis des Extraktionsprozesses in die Kondensatlösung eingebracht. Diese können minimiert werden, indem die abgeschnittenen Enden des Kapillarröhrchens vorsichtig mit einem sauberen Streifen Parafilm abgetupft werden, der beim Aufnehmen von Glas sehr effektiv ist, bevor das geschnittene Kapillarröhrchen in das Mikrozentrifugenröhrchen mit der Pufferlösung eingesetzt wird. Während der Extraktion kann die Anzahl der extrahierten Kondensate maximiert werden, indem das Mikrozentrifugenröhrchen, das das geschnittene Kapillarrohr enthält, kurz heruntergedreht wird, obwohl dies die Wahrscheinlichkeit erhöht, dass Kondensate zusammenfließen und nicht ideale Morphologien bilden. Nach der Extraktion sollten Kondensate bei Kühlschranktemperaturen (in der Regel 4 °C) gelagert und innerhalb von drei Tagen verwendet werden, um mögliche Probleme mit biologischer Kontamination zu vermeiden und da Kondensate in Mikrozentrifugenröhrchen aufgrund der typischerweise abgerundeten oder spitzen Formen dieser Röhrchen mit der Zeit aggregieren und verschmelzen. Sehr heftiges Pipettieren von extrahierten Kondensaten sollte vermieden werden, da diese durch übermäßige Scherströmung beschädigt werden können.
Für die Transkription eines RNA-Aptamers kann es erforderlich sein, das Volumen des verwendeten Transkriptionsgemisches zu modifizieren, da die Anzahl und Größe der Kondensate (und damit die Konzentration der Vorlage) in jeder einzelnen Reaktion nicht genau gesteuert werden kann. In den in Abschnitt 3 beschriebenen Experimenten wird ein Überschuss an Transkriptionsgemisch relativ zur theoretischen Template-Konzentration verwendet. Es wird empfohlen, die Überstände aus den drei Waschschritten (Abschnitt 3.1) zurückzuhalten und zur Durchführung von Transkriptionsreaktionen zu verwenden. Diese Experimente geben Aufschluss über die Menge an ungebundener Aptamer-Matrize, die in der Lösung vorhanden ist.
Einer der Hauptvorteile der C-star-Plattform ist ihre Flexibilität und Modularität. Wie oben und in früheren Arbeiten beschrieben, können Kondensate so gestaltet werden, dass sie auf eine Reihe von Eingaben reagieren, wie z.B. Toehold-vermittelte Strangverschiebung und RNA-Aptamer-Transkription separat oder in Sequenz. In Kombination mit der inhärenten Programmierbarkeit ihrer DNA-Bausteine bieten amphiphile DNA-Nanosterne eine robuste und vielseitige Lösung für das Design und die Vorbereitung synthetischer Zellen.
Offenlegungen
Es wurden keine Interessenkonflikte angegeben.
Danksagungen
LM, LDM und DT danken der Unterstützung durch den Europäischen Forschungsrat (ERC) im Rahmen des Forschungs- und Innovationsprogramms Horizon 2020 (ERC-STG Nr. 851667 - NANOCELL). LDM bedankt sich für die Unterstützung durch ein Royal Society Research Grant for Research Fellows (RGF/R1/180043) und die Unterstützung durch ein Forschungsstipendium der Royal Society University (UF160152, URF/R/221009).
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 0,22 μm m Spritzenvorsatzfilter | Sigma-Aldrich | SLGVR33RB | |
| 24 x 60 mm #1,5 Rechteckige Deckgläser, Menzel Glä ser | VWR | 631-0853 | |
| 2-Propanol | Sigma-Aldrich | 34683 | |
| 6 L Ultraschallreiniger mit digitalem Timer und Wärme, 230 VAC | Cole-Parmer | WZ-08895-11 | |
| Araldite Schnellkleber 2 Teile Epoxidkleber | RS | ARA-400005 | |
| Bio-Rad C1000 Thermocycler | Bio-Rad | 1851197 | |
| Marke Mikrozentrifugenröhrchen 2 mL mit Verschlussdeckel | Fisher Scientific | 15338665 | 2 mL Mikrozentrifugenröhrchen für die Extraktion von C-Stern-Kondensaten |
| Diamond Scribing Pen | RS | 394-217 | |
| Difluor-4-hydroxybenzylidene imidazolidinone (DFHBI) | Sigma-Aldrich | SML1627 | |
| Dimethylsulfoxid (DMSO) | Sigma-Aldrich | 472301 | |
| Eppendorf PCR Clean Farblos Safe-Lock Zentrifugenröhrchen | Fisher Scientific | 0030123301 | 0,5 mL Mikrozentrifugenröhrchen für die Herstellung von C-Stern-Mischungen |
| Ethanol Absolut 99,8+% | Fisher Scientific | 10437341 | 70% Ethanol reicht für Reinigungszwecke aus |
| Fisherbrand ZX4 IR Vortex Mixer | Fisherbrand | 13284769 | |
| Hellmanex III | Hellma | 9-307-011-4-507 | |
| Hohlrechteck Kapillaren ID 0,40 x 4,00 mm, 50 mm Länge | CM Scientific | 2540-50 | |
| Mineralöl | Sigma-Aldrich | 69794 | |
| Mini-Zentrifuge, 230 V | PRISM(TM) | ||
| NaCl | Sigma-Aldrich | S3014 | |
| NanoDrop One Spektralphotometer | Thermo Fisher Scientific | ND-ONE-W | Wird zur Messung der Absorption von Oligonukleotiden für Konzentrationsberechnungen verwendet |
| Oligonukleotide Integrierte | DNA-Technologien | Kundenspezifische | Oligonukleotidsequenzen sind einzigartig für das erforderliche C-Star-Design. |
| ScriptGuard RNase Inhibitor | CELLSCRIPT | C-SRI6310K | RNase Inhibitor |
| T7-FlashScribe Transkriptionskit | Cambio | C-ASF3507 | |
| Tris-EDTA Puffer, 100x Stammlösung | Sigma-Aldrich | 574793 | |
| UltraPure DNase/RNase-frei destilliertes Wasser | Invitrogen | 10977035 | |
| VWR Spec-Wipe 3 Scheibenwischer | VWR | 21914-758 |
Referenzen
- Buddingh', B. C., Hest, J. C. M. v Artificial cells: Synthetic compartments with life-like functionality and adaptivity. Acc Chem Res. 50 (4), 769-777 (2017).
- Fanalista, F., et al. Shape and size control of artificial cells for bottom-up biology. ACS Nano. 13 (5), 5439-5450 (2019).
- Dora Tang, T. -Y., et al. Fatty acid membrane assembly on coacervate microdroplets as a step towards a hybrid protocell model. Nat Chem. 6 (6), 527-533 (2014).
- Deshpande, S., et al. Spatiotemporal control of coacervate formation within liposomes. Nat Commun. 10 (1), 1800(2019).
- Rubio-Sánchez, R., et al. Thermally driven membrane phase transitions enable content reshuffling in primitive cells. J Am Chem Soc. 143 (40), 16589-16598 (2021).
- Jahnke, K., Huth, V., Mersdorf, U., Liu, N., Göpfrich, K. Bottom-up assembly of synthetic cells with a DNA cytoskeleton. ACS Nano. 16 (5), 7233-7241 (2022).
- Tran, M. P., et al. A DNA segregation module for synthetic cells. Small. 19 (13), 2202711(2023).
- Mason, A. F., Buddingh', B. C., Williams, D. S., Hest, J. C. M. v Hierarchical self-assembly of a copolymer-stabilized coacervate protocell. J Am Chem Soc. 139 (48), 17309-17312 (2017).
- Gumz, H., et al. Toward functional synthetic cells: In-depth study of nanoparticle and enzyme diffusion through a cross-linked polymersome membrane. Adv Sci. 6 (7), 1801299(2019).
- Huang, X., Patil, A. J., Li, M., Mann, S. Design and construction of higher-order structure and function in proteinosome-based protocells. J Am Chem Soc. 136 (25), 9225-9234 (2014).
- Booth, R., Qiao, Y., Li, M., Mann, S. Spatial positioning and chemical coupling in coacervate-in-proteinosome protocells. Angew Chem Int Ed Engl. 58 (27), 9120-9124 (2019).
- Hindley, J. W., et al. Light-triggered enzymatic reactions in nested vesicle reactors. Nat Commun. 9 (1), 1093(2018).
- Zubaite, G., Hindley, J. W., Ces, O., Elani, Y. Dynamic reconfiguration of subcompartment architectures in artificial cells. ACS Nano. 16 (6), 9389-9400 (2022).
- Hirose, T., et al. A guide to membraneless organelles and their various roles in gene regulation. Nat Rev Mol Cell Biol. 24 (4), 288-304 (2023).
- Guindani, C., Silva, L. C. d, Cao, S., Ivanov, T., Landfester, K. Synthetic cells: From Simple Bio-Inspired Modules to Sophisticated Integrated Systems. Angew Chem Int Ed Engl. 61 (16), e202110855(2022).
- Adamala, K. P., et al. Present and future of synthetic cell development. Nat Rev Mol Cell Biol. 25 (3), 162-167 (2023).
- Allen, M. E., et al. Biomimetic behaviors in hydrogel artificial cells through embedded organelles. Proc Natl Acad Sci U S A. 120 (35), e2307772120(2023).
- Cook, A. B., Novosedlik, S., Hest, J. C. M. v Complex coacervate materials as artificial cells. Acc Mater Res. 4 (3), 287-298 (2023).
- Seeman, N. C., Sleiman, H. F. DNA nanotechnology. Nat Rev Mater. 3, 17068(2018).
- Takinoue, M. DNA droplets for intelligent and dynamical artificial cells: from the viewpoint of computation and non-equilibrium systems. Interface Focus. 13 (5), 20230021(2023).
- Liu, W., Lupfer, C., Samanta, A., Sarkar, A., Walther, A. Switchable hydrophobic pockets in DNA protocells enhance chemical conversion. J Am Chem Soc. 145 (13), 7090-7094 (2023).
- Wilner, O. I., Willner, I. Functionalized DNA nanostructures. Chem Rev. 112 (4), 2528-2556 (2012).
- Gong, J., Tsumura, N., Sato, Y., Takinoue, M. Computational DNA droplets recognizing miRNA sequence inputs based on liquid-liquid phase separation. Adv Funct Mater. 32, 2202322(2022).
- Jeon, B. -J., Nguyen, D. T., Saleh, O. A. Sequence-controlled adhesion and microemulsification in a two-phase system of DNA liquid droplets. J Phys Chem. 124 (40), 8888-8895 (2020).
- Sato, Y., Sakamoto, T., Takinoue, M. Sequence-based engineering of dynamic functions of micrometer-sized DNA droplets. Sci Adv. 6 (23), 3471(2020).
- Saleh, O. A., et al. Vacuole dynamics and popping-based motility in liquid droplets of DNA. Nat Commun. 14 (1), 3574(2023).
- Rubio-Sánchez, R., Fabrini, G., Cicuta, P., Michele, L. D. Amphiphilic DNA nanostructures for bottom-up synthetic biology. Chem Commun. 57 (95), 12725-12740 (2021).
- Brady, R. A., Brooks, N. J., Cicuta, P., Di Michele, L. Crystallization of amphiphilic DNA C-Stars. Nano Lett. 17 (5), 3276-3281 (2017).
- Leathers, A., et al. Reaction-diffusion patterning of DNA-based artificial cells. J Am Chem Soc. 144 (38), 17468-17476 (2022).
- Malouf, L., et al. Sculpting DNA-based synthetic cells through phase separation and phase-targeted activity. Chem. 9 (11), 3347-3364 (2023).
- Fabrini, G., Minard, A., Brady, R. A., Antonio, M. D., Michele, L. D. Cation-responsive and photocleavable hydrogels from noncanonical amphiphilic DNA nanostructures. Nano Lett. 22 (2), 602-611 (2022).
- Brady, R. A., Brooks, N. J., Foderà, V., Cicuta, P., Di Michele, L. Amphiphilic-DNA platform for the design of crystalline frameworks with programmable structure and functionality. J Am Chem Soc. 140 (45), 15384-15392 (2018).
- Walczak, M., et al. Responsive core-shell DNA particles trigger lipid-membrane disruption and bacteria entrapment. Nat Commun. 12 (1), 4743(2021).
- Zhang, D. Y., Winfree, E. Control of DNA strand displacement kinetics using Toehold exchange. J Am Chem Soc. 131 (47), 17303-17314 (2009).
- Integrated DNA Technologies OligoAnalyzer Tool. , Available from: https://www.idtdna.com/pages/products/custom-dna-rna/dna-oligos/custom-dna-oligos (2024).
- Cavaluzzi, M. J., Borer, P. N. Revised UV extinction coefficients for nucleoside-5'-monophosphates and unpaired DNA and RNA. Nucleic Acids Res. 32 (1), e13(2004).
- Lattuada, E., Caprara, D., Piazza, R., Sciortino, F. Spatially uniform dynamics in equilibrium colloidal gels. Sci Adv. 7 (49), (2021).
- T7-FlashScribeTM Transcription Kit. , Available from: https://www.cellscript.com/products/018pl0617CS.pdf (2017).
- Zadeh, J. N., et al. NUPACK: Analysis and design of nucleic acid systems. J Comput Chem. 32 (1), 170-173 (2011).
- Walczak, M., Brady, R. A., Leathers, A., Kotar, J., Di Michele, L. Influence of hydrophobic moieties on the crystallization of amphiphilic DNA nanostructures. The Journal of Chemical Physics. 158 (8), 084501(2023).
Nachdrucke und Genehmigungen
