In dieser Studie wird ein einfacher, benutzerfreundlicher ratiometrischer FRET-Assay für den Nachweis und die quantitative Beurteilung der DNase-Aktivität vorgestellt und seine Anwendung bei der Analyse einer schwachen Nuklease demonstriert.
Ein Abonnement von JoVE ist erforderlich, um diesen Inhalt anzuzeigen. Melden Sie sich an oder beginnen Sie noch heute mit einer kostenlosen Testphase.
Methodenartikel
Beurteilung der DNase-Aktivität durch ratiometrischen Fluoreszenz-Resonanz-Energietransfer
In diesem Artikel
Zusammenfassung
Zusammenfassung
Das vorliegende Protokoll beschreibt einen einfachen und sensitiven ratiometrischen Förster-Resonanzenergietransfer (FRET) Assay zur Detektion und quantitativen Beurteilung der DNase-Aktivität. Bei der ratiometrischen FRET-Messung wird das Verhältnis von Donor- und Akzeptor-Emissionssignalen genutzt. Der Assay detektiert einzelsträngige DNA-Brüche mit einer klammerförmigen, doppelt markierten 38-mer-FRET-Oligosonde, die als Echtzeit-DNA-Spaltungssensor eingesetzt wird. Die Hauptanwendung des beschriebenen Ansatzes ist die quantitative Bewertung der Auswirkungen von Reaktionsbedingungen, wie pH-Wert, Temperatur und Pufferzusammensetzung, auf die DNase-Aktivität. Aufgrund seiner Fähigkeit, selbst geringfügige und langsame DNA-Spaltungen zu detektieren, eignet sich der Assay besonders gut für die Untersuchung schwacher nukleolytischer Aktivität, die längere Beobachtungszeiträume erfordert, und für die Untersuchung der Auswirkungen des pH-Werts auf die DNase-Aktivität. Diese spezifischen Vorteile dieses ratiometrischen FRET-Protokolls werden durch seine Anwendung auf den Nachweis und die Analyse der DNase-Aktivität von Leukozyten-Elastase-Inhibitoren (LEI) veranschaulicht.
Einleitung
Der ratiometrische Fluoreszenzansatz ist eine analytische Methode, die Verhältnisse von Fluoreszenzsignalen verwendet, anstatt sich ausschließlich auf die Intensität eines einzelnen Signals zu verlassen 1,2. Der Vorteil der Verwendung der Verhältnisse besteht darin, dass sie eine interne Kalibrierung ermöglichen und viele Zufallsfaktoren ausgleichen, wie z. B. Schwankungen der Proben- und Sondenkonzentrationen, Geräteparameter usw. Dies erhöht die Genauigkeit und Empfindlichkeit von Fluoreszenzsonden.
Im speziellen Kontext der Förster-Resonanzenergietransfersonden (FRET) bezieht sich der Begriff "ratiometrisch" auf die Tatsache, dass die Messung auf dem Verhältnis von zwei Emissionssignalen aus dem Paar FRET-Donor- und Akzeptorfluorophoren basiert. Um die Aktivität des Zielanalyten zu quantifizieren, verwenden ratiometrische FRET-Sonden das Verhältnis der Emissionsintensitäten von Akzeptor zu Donor (oder in einigen Fällen das invertierte Donor/Akzeptor-Verhältnis). Das Verhältnis steht in direktem Zusammenhang mit dem FRET-Wirkungsgrad. Es bietet einen selbstnormalisierenden Mechanismus, der Hintergrundrauschen minimiert und Schwankungen der Beleuchtungsbedingungen und der Sondenkonzentration berücksichtigt3.
Zu den jüngsten interessanten Anwendungen der ratiometrischen Methode gehören ihre Verwendung in ratiometrischen elektrochemischen Biosensoren zum Nachweis zirkulierender Tumor-DNA (ctDNA)4,5, in Brownschen bewegungsbetriebenen Bio-Nanomaschinen zur FRET-Detektion der phagozytären Phase der Apoptose6 und zur Express-FRET-Markierung und Analyse der phagozytären Clearance7. Der in dieser Arbeit beschriebene ratiometrische FRET-Ansatz ist nützlich für die quantitative Bewertung der DNase-Aktivität. Die Messungen basieren auf den Verhältnissen der FRET-Paaremissionen. Aufgrund seiner Fähigkeit, selbst geringfügige und langsame DNA-Spaltungen zu detektieren, eignet sich der Assay besonders gut für die Untersuchung schwacher nukleolytischer Aktivität, die längere Beobachtungszeiträume erfordert, und für Experimente bei unterschiedlichen pH-Werten.
Hier werden einige spezifische Vorteile des ratiometrischen FRET-Assays anhand seiner Anwendung zur Untersuchung der DNase-Aktivität eines schwachen Nuklease-Leukozyten-Elastase-Inhibitors (LEI) veranschaulicht. Der Bericht enthält ein detailliertes Protokoll mit einer Schritt-für-Schritt-Anleitung und einer Beschreibung der ratiometrischen Datenanalyse.
Beschreibung der ratiometrischen FRET-Sonde
Die ratiometrische FRET-Sonde ist ein selbstkomplementäres 38-mer-DNA-Oligo, das das Donor-Akzeptor-FRET-Paar von FAM-TAM (Fluorescein-Tetramethylrhodamin) trägt. Seine Sequenz ist 5'-AAGGGT(TAM) CCTGCTGCAGGACCCTTAACGCATTATGCGT(FAM)T-3'. Das selbsthybridisierende 38-mer nimmt eine klammernförmige Konformation an, die aus zwei miteinander verbundenen Haarnadeln aus 23 und 15 Nukleotiden besteht, die ihre beiden Fluorophore 23,8 Å voneinander entfernt positionieren. Dies ist deutlich näher als der Förster-Radius für dieses Paar, R0 = 55 Å8. Eine solche Positionierung entspricht einem sehr hohen Wirkungsgrad der Energieübertragung vom Donor zum Akzeptor7: EFRET = 0,993477. Dies hat zur Folge, dass die FRET-Sonde bei Beleuchtung bei der FAM-Anregungswellenlänge (488 nm) Fluoreszenz bei der Emissionswellenlänge des Akzeptors TAM (580 nm) emittiert, während die FAM-Emission (525 nm) unterdrückt wird.
Abbildung 1A zeigt die von UNAFold vorhergesagte Sekundärstruktur der Sonde mit kleinen Schleifen an beiden Haarnadelspitzen aufgrund sterischer Behinderung durch enge Krümmung. Das Schema der DNA-Brucherkennung durch die FRET-Sonde ist in Abbildung 1B dargestellt. Es zeigt sich, dass der Bruch der Oligosonde durch eine DNase ihr FRET-Paar trennt. Diese Trennung führt zu drastischen Veränderungen in den Emissionsspektren beider Fluorophore in der Sonde. Abbildung 1C zeigt die Sondenemissionsspektren vor und nach der Spaltung und zeigt, dass die Spaltung des FRET-Paares nach der Spaltung der DNase II-Sonde die Donoremission bei 525 nm (ID 525 nm) erhöht und gleichzeitig die Akzeptoremission bei 580 nm (IA 580 nm) verringert. Abbildung 1D zeigt die PAGE-Gel- und FRET-Verhältnisse, die den Emissionsspektren entsprechen. Die Spaltung der DNase-II-Sonde erzeugte zwei breite Banden, die 12-16-mer FAM (grün) und 20-24-mer TAM (rot) Fragmenten entsprechen, was auf zufällige Schnitte des 38-mer auf beiden Seiten von T23 in der Nähe des Verbindungsbereichs zwischen den Haarnadeln hinweist.
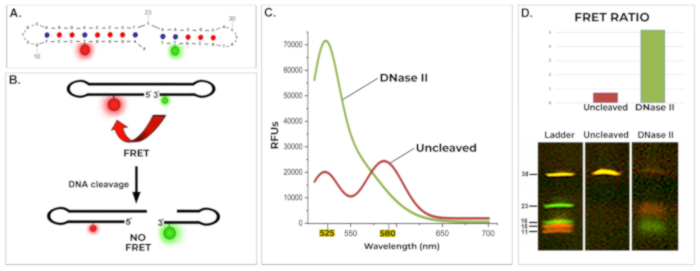
Abbildung 1: Aufbau und Funktionsweise der ratiometrischen FRET-Sonde. (A) Vorhergesagte Sekundärstruktur der FRET-Sonde, die von UNAFold erzeugt wurde. (B) Schematische Darstellung der funktionierenden FRET-Sonde. Die ratiometrische FRET-Sonde ist ein klammernförmiges 38-mer-Oligonukleotid, das mit einem FRET-Donor (FAM) und -Akzeptor (TAM) bei einem effektiven FRET-Abstand von 23,8 Å markiert ist und einen FRET-Wirkungsgrad von >99 % gewährleistet. Durch die Spaltung der Oligosonde durch eine DNase wird das FRET-Paar abgetrennt, wodurch FRET aufgehoben wird. (C) Emissionsspektren der FRET-Sonde vor und nach der DNase II-vermittelten Spaltung. Vor der Spaltung wird die FAM-Emission unterdrückt und die TAM-Emission ist prominent. Die DNase-vermittelte Spaltung trennt FAM und TAM, wodurch die FAM-Emission (525 nm Peak) wiederhergestellt und die TAM-Emission (580 nm Abfall) aufgehoben wird. λAnregung = 488 nm. (D) Ratiometrische und elektrophoretische Beurteilung der FRET-Sonde vor und nach der DNase II-Spaltung. Oberes Bild: FRET-Verhältnisse (RD/A = ID 525 nm / IA 580 nm), die ein quantitatives Maß für den Sondenzustand darstellen. Rot: ungespalten; grün: DNase II-gespalten. Unteres Bild: Denaturierendes PAGE-Gel entsprechend den fluorometrischen Daten. Die Spaltung von DNase II ergibt FAM-markierte Fragmente (12-16 nt, grün) und TAM-markierte Fragmente (20-24 nt, rot), was auf eine Spaltung in der Nähe der Verbindung zwischen den Haarnadeln hinweist, die T23 flankieren. Die ungespaltene Kontrolle zeigt gelbe Fluoreszenz. Leiter: FAM- und TAM-markierte Oligonukleotide, die den 5'- und 3'-Segmenten der 38-mer-Sonde entsprechen, mit fluoreszierenden Markierungen in ihren ursprünglichen Positionen. Reaktionsbedingungen: 10 mM Natriumacetatpuffer (pH 5,2), 1 pmol/μl FRET-Sonde, 0,0033 U/μl DNase II, 24 h bei 37 °C. RD/A = ID 525 nm/IA 580 nm; λAnregung = 488 nm. UNAFalte Bedingungen: 1 μM FRET-Sonde, 10 mM Na+, 0 mM Mg2+, 37 °C. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
Während die Änderungen in den einzelnen Emissionsspektren der Prüfung offensichtlich sind, erfordern quantitative Vergleiche zwischen einer großen Anzahl von Emissionsspektren einen benutzerfreundlicheren und kompakteren quantitativen Parameter. Diese Rolle spielt das FRET-Verhältnis. Die vorgestellte Fluoreszenzmethode gehört zu einer Gruppe von ratiometrischen Ansätzen, die sich für ihre quantitative Bewertung auf die direkten (zweikanaligen) Verhältnisse der Fluoreszenzemissionen von FRET-Paarmitgliedern stützen 2,9.
Der Ansatz verwendet das Verhältnis der Donor/Akzeptor-Emissionen (RD/A = ID 525 nm / IA 580 nm), das mit der FRET-Effizienz zusammenhängt und den Zustand des 38-mers (gebrochen oder intakt) quantitativ charakterisiert. Das ID / IA-Verhältnis bietet einen selbstnormalisierenden Mechanismus, der von Natur aus Schwankungen in Faktoren wie Sondenkonzentration, Anregungsintensität und Photobleichung berücksichtigt3. Der Ansatz ist nur für FRET-Sonden geeignet, bei denen Donor und Akzeptor innerhalb derselben Sonde verknüpft sind, wenn ihr Verhältnis bekannt und konstant ist. Aus diesem Grund muss der Ansatz weder die direkte Anregung des Akzeptors noch das Donor-Übersprechen2 berücksichtigen. Die feste Donor-Akzeptor-Stöchiometrie der Sonde stellt sicher, dass die Donor/Akzeptor-Emissionsverhältnisse durch diese Schwankungen nicht beeinflusst werden und den Zustand der Sonde direkt widerspiegeln. Als Ergebnis liefert das Verhältnis der Donor-Akzeptor-Emissionen einen quantitativen DNA-Spaltungsparameter mit eingebauter Signalnormalisierung 2,3.
Der Assay verwendet das ID / IA-Verhältnis (und nicht das entgegengesetzte IA / ID-Verhältnis ), da dieses Verhältnis die FRET-Beendigung nach der Sondenspaltung beschreibt und sich daher in die gleiche Richtung ändert wie die DNase-Aktivität - mit zunehmender Spaltung. Dies wird durch Abbildung 1D veranschaulicht, die das FRET-Verhältnis der ratiometrischen Sonde und ihre PAGE-Elektrophorese vor und nach ihrer Spaltung durch DNase II zeigt, die beide den Spektren in Abbildung 1C entsprechen. Um die Bequemlichkeit, Zeitökonomie und Benutzerfreundlichkeit des ratiometrischen FRET-Assays zu demonstrieren, wurde er eingesetzt, um die DNase-Aktivität eines schwachen Nuklease-Leukozyten-Elastase-Inhibitors (LEI) aufzudecken und zu untersuchen.
Schwacher Nuklease-LEI
Der Proteasehemmer LEI ist von Natur aus metastabil, d.h. topologisch unausgeglichen. Diese Eigenschaft ist essentiell für seinen hemmenden Mechanismus. Wenn seine Zielprotease die LEI-Schleife (RSL) spaltet, erfährt das Proteaseinhibitormolekül eine drastische Konformationsänderung, wodurch die Protease mechanisch in eine inaktive Form gedehntwird 10,11. Bemerkenswert ist, dass dadurch auch das LEI-Molekül selbst aufgebrochen und aufgebläht wird und eine kryptische DNase-Stelle entlarvt wird, die von ihrer nativen Faltung bedeckt ist, wodurch der LEI in eine aktive Endonuklease L-DNase II umgewandelt wird (LEI-abgeleitete DNase II)11,12. Die kryptische DNase-Stelle kann auch durch die Denaturierung und den Bruch des LEIs freigelegt werden, die durch seine nächtliche Inkubation bei pH 2 in Schwefelsäure10,13 verursacht werden. Die Verwendung dieses FRET-Assays zur Untersuchung des LEI zeigte, dass harte chemische Denaturierungsbehandlungen und gezielte enzymatische Spaltung nicht unbedingt erforderlich sind, um die latente nukleolytische Aktivität des LEI zu entlarven.
Die vorgestellte Anwendung und das Protokoll des ratiometrischen FRET-Ansatzes beschreiben die Aufdeckung einer schwachen DNase-Aktivität, die inhärent in normalen, nicht denaturierten LEIs vorhanden ist. Die Entdeckung der intrinsischen nukleolytischen Fähigkeit von ungespaltenen LEI und deren Analyse war möglich, da der Assay für längere Beobachtungszeiträume bei unterschiedlichen sauren pH-Werten geeignet war.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Protokoll
Beurteilung der DNase-Aktivität durch ratiometrischen Fluoreszenz-Resonanz-Energietransfer
Das Verfahren eignet sich für den Nachweis und die Analyse der nukleolytischen Eigenschaften eines löslichen Proteins. Um die pH-Abhängigkeit der untersuchten DNase zu untersuchen, wird gleichzeitig die DNase-Aktivität über einen Bereich von pH-Werten bewertet. Die Technik kann verwendet werden, um schwache und langsame Nukleaseaktivitäten zu untersuchen. Die Einzelheiten zu den Reagenzien und der Ausrüstung, die in dieser Studie verwendet wurden, sind in der Materialtabelle aufgeführt.
1. Vorbereitung der Komponenten der Inkubationsmischung für das fluorometrische Bewertungssystem
- Bereiten Sie die Pufferlösungen im gewünschten pH-Bereich vor. Für den pH-Bereich von 6,8 bis 8,0 verwenden Sie Tris-HCl oder Phosphatpuffer. Verwenden Sie Tris-HCl-Puffer für physiologische pH-Bedingungen (pH 7,2 bis 8,0) aufgrund seiner Stabilität und minimalen Beeinträchtigung der Enzymaktivität.
HINWEIS: Phosphatpuffer sind für diesen pH-Bereich geeignet, aber aufgrund ihrer begrenzten Pufferkapazität weniger geeignet für höhere pH-Werte (>7,5).
Für einen pH-Bereich von 4,2 bis 7,2 verwenden Sie Acetat- oder Citratpuffer. Acetatpuffer ist wirksam für Bedingungen mit niedrigerem pH-Wert bis hinunter zu pH 4,2.
HINWEIS: Citratpuffer ist bei etwas höheren pH-Werten (pH 5,6 bis 7,2) verwendbar und bietet eine gute Pufferkapazität. Diese Puffer eignen sich für die Untersuchung der DNase-Aktivität unter sauren bis neutralen Bedingungen. In der vorliegenden Studie zur nukleolytischen Aktivität von LEI wurden 10 mM Natriumacetatpuffer mit einem pH-Wert von 4,8 bis 6,5 verwendet. - Die Proteinprobe wird in jeder Pufferlösung auf eine geeignete Konzentration verdünnt. Wenn die Aktivität in der Probe völlig unbekannt ist, bereiten Sie eine Reihe von Verdünnungen des Proteins vor. Die optimale Verdünnung hängt von der Stärke der DNase-Aktivität ab und muss experimentell durch Testen mehrerer Proteinkonzentrationen bestimmt werden.
HINWEIS: In der vorliegenden Studie zur ultraschwachen nukleolytischen Aktivität von LEI wurde diese in einer Konzentration von 1 μM verwendet.- Überprüfen Sie bei der Verwendung von hochkonzentrierten Puffern immer den pH-Wert der, da sich der pH-Wert von konzentrierten Puffern bei der Verdünnung ändern kann.
- Bereiten Sie die ratiometrische FRET-Sondenlösung in nukleasefreiem Wasser vor. Verwenden Sie FRET-Sondenkonzentrationen nahe 1 μM (1 pmol/μL). Vermeiden Sie die Verwendung sehr hoher Sondenkonzentrationen.
Erhitzen und kühlen Sie die Sondenlösung vor der Anwendung schnell ab, um eine vollständige Dissoziation von unerwünschten Basenpaarungen sicherzustellen.
HINWEIS: In der vorliegenden Studie zur nukleolytischen Aktivität von LEI wurde eine Konzentration von 1 μM (1 pmol/μl) FRET-Sonde in nukleasefreiem Wasser verwendet.
2. Induktion der DNase-Reaktion unter Verwendung der ratiometrischen FRET-Sonde als Substrat
- Bereiten Sie drei Vertiefungen in einer 96-Well-Platte für jede zu testende pH-Bedingung vor. Fügen Sie drei zusätzliche Vertiefungen hinzu, jeweils für die Positiv- und Negativkontrollen.
- Kombinieren Sie in jeder Vertiefung für die pH-Serie Folgendes:
70 μl nukleasefreies Wasser
10 μL 10X Puffer (Puffer Ihrer Wahl)
10 μl Probe mit Protein
10 μl ratiometrische Sondenlösung (10 pmol/μl Stammkonzentration)
HINWEIS: In der vorliegenden Studie zur nukleolytischen Aktivität von LEI bei saurem pH-Wert wurde der folgende 10X-Puffer verwendet: 100 mM Na-Acetat pH 5,2 - Kombinieren Sie in jeder Vertiefung der Positivkontrolle Folgendes:
79 μl nukleasefreies Wasser
10 μl 10X DNase II Puffer (100 mM Na Acetat pH 5,2)
0,33 μl DNase II (1 U/μl Stamm)
10 μl ratiometrische Sondenlösung (10 pmol/μl Stammkonzentration)
HINWEIS: Für Studien bei saurem pH-Wert ist DNase II als Positivkontrolle zu verwenden. Bei der Beurteilung der DNase-Aktivität in der Nähe von pH 7 (insbesondere pH 6,5-8) wechseln Sie zu DNase I und dem zugehörigen Puffer (z. B. 10 mM Tris-HCl, 2,5 mM MgCl2, 0,5 mM CaCl2, pH 7,6) anstelle von DNase II und Acetatpuffer. - In jede Negativkontrollvertiefung wird anstelle der Proteinprobe nukleasefreies Wasser zugegeben.
- Kombinieren Sie in jeder Vertiefung für die pH-Serie Folgendes:
- Induzieren Sie die DNase-Reaktion, indem Sie die Sondenlösungen zu den Reaktionsgemischen hinzufügen, die das DNase-Protein bei unterschiedlichen pH-Werten enthalten.
HINWEIS: Mischen Sie alle Proben gründlich und vermeiden Sie dabei Blasenbildung. Bei aktiven DNase-Proben sollten alle Reaktionen so nah wie möglich gleichzeitig gestartet werden. Bei extrem schwachen Aktivitäten, wie z. B. der von LEIs, ist ein striktes Timing weniger kritisch.
HINWEIS: Um konsistente Inkubationszeiten zu gewährleisten, insbesondere wenn es sich um aktive Nukleasen handelt, staffeln Sie die Zugabe von Proben basierend auf der für jede Messung erforderlichen Zeit. Wenn z. B. jede Messung 10 s dauert, fügen Sie die zweite Probe 10 s nach der ersten hinzu.
3. Inkubation
- Inkubieren Sie die untersuchte DNase mit der ratiometrischen FRET-Sonde bei 37°C in einem Wasserbad oder einem temperaturgeregelten Inkubator für verschiedene Zeiträume. Verwenden Sie mehrere Zeitpunkte mit regelmäßigen Probenahmeintervallen, um die Enzymumsatzraten genau zu bewerten und Artefakte zu minimieren. Die vorliegende Studie zur ultraschwachen nukleolytischen Aktivität von LEI verwendete 24-stündige Inkubationen, um die langsame nukleolytische Reaktion zu registrieren.
HINWEIS: Bestimmen Sie die optimale Inkubationszeit in den Vorversuchen, da sie von der Stärke der untersuchten DNase abhängt. Eine aktive Nuklease würde sehr kurze Zeit benötigen, um die Sondenspaltung abzuschließen, also beginnen Sie mit einer 15-30-minütigen Inkubation. Wenn die Probe zu konzentriert ist und die Reaktion zu schnell ist, sollte die Proteinkonzentration reduziert werden. Ist das Probenprotein zu schwach, kann sich die Inkubationszeit bei Bedarf verlängern.
4. Normalisierung des Signals auf die gleichen pH-Bedingungen
- Stoppen Sie alle Inkubationsreaktionen durch Zugabe von 100 μl 250 mM Tris-HCL (pH 8,0). In diesem Schritt wird auch der pH-Wert über alle Proben hinweg ausgeglichen.
HINWEIS: Der Schritt des pH-Ausgleichs ist wichtig, wenn Reaktionen verglichen werden, die unter verschiedenen pH-Bedingungen eingeleitet wurden. Das Verfahren gewährleistet eine vollständige Trennung der Sondenfragmente und maximiert das FRET-basierte Signal. Darüber hinaus wird die FAM-Fluorophoremission der Sonde bei saurem pH-Wert reduziert und ist bei pH 8,0 optimal. Für Proben mit höherer Ionenstärke als den in dieser Studie verwendeten könnte eine konzentriertere (>250 mM) und höhere pH-Ausgleichslösung (>8,0) erforderlich sein, um eine effektive pH-Einstellung zu erreichen.
HINWEIS: Der alkalische pH-Wert stoppt effektiv die Aktivität von sauren Nukleasen wie LEI, wie in der aktuellen Studie gezeigt. Für neutrale oder alkalische Nukleasen sollten geeignete spezifische Inaktivierungsmethoden identifiziert und vor der Signalbewertung angewendet werden.
5. Fluorometrische Signalerfassung und Berechnung von FRET-Verhältnissen
- Verwenden Sie unmittelbar nach dem pH-Ausgleichsschritt ein Spektrofluorometer, um die Emissionsspektren sowohl der Donor- als auch der Akzeptorfluorophore aufzuzeichnen. Führen Sie Messungen direkt in der 96-Well-Platte durch, indem Sie das Donorfluorophor bei 488 nm anregen und gleichzeitig Emissionen bei 525 nm (Donor) und 580 nm (FRET-abgeleitetes Akzeptorsignal) detektieren.
- Verwenden Sie die aufgezeichneten Fluoreszenzintensitäten, um die DNase-Aktivität in jeder Probe zu bewerten. Wenden Sie geeignete statistische Methoden an, um die Daten zu analysieren und die Signifikanz zu bewerten.
HINWEIS: Berechnen Sie das FRET-Verhältnis mit der Formel: RFRET = Donoremission bei 525 nm/Akzeptoremission bei 580 nm. In diesem Assay stört die DNA-Spaltung FRET, indem sie die Fluorophore trennt, was zu einer erhöhten Donoremission und einer verringerten Akzeptoremission führt. Diese Verschiebung erhöht das FRET-Verhältnis (RFRET), das als Indikator für die DNase-Aktivität dient.
6. PAGE-basierte Verifizierung der Spaltung
- Überprüfen Sie die Spaltung der FRET-Sonde durch Durchführung einer denaturierenden Polyacrylamid-Gelelektrophorese (PAGE)14. Die FRET-Sonde und ihre Spaltprodukte sind fluoreszenzmarkiert und ohne zusätzliche Färbung sichtbar.
HINWEIS: In der repräsentativen Studie wurde die LEI-vermittelte Spaltung der 38-mer-FRET-Sonde durch Denaturierung von PAGE bestätigt (siehe Abbildung 2). Die Analyse ergab, dass der LEI 6-8-mer-FAM-markierte Fragmente und 15-16-mer-TAM-markierte Fragmente produzierte, was mit der Spaltung in der Nähe beider Haarnadelspitzen übereinstimmt. Dieses Muster unterschied sich von dem von DNase II erzeugten Fragmentprofil.- Laden Sie 15 μl jeder Probe auf ein 20 % denaturierendes PAGE-Gel.
- Lassen Sie das Gel 1 h lang bei 100 V laufen.
- Erfassen Sie Gelbilder mit einem Dokumentationssystem, das mit einer hochauflösenden Farbkamera ausgestattet ist.
HINWEIS: Die Bilder in der repräsentativen Studie wurden mit einer digitalen Spiegelreflexkamera aufgenommen.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Ergebnisse
Diese repräsentative Studie unterstreicht die spezifischen Vorteile des ratiometrischen FRET-Ansatzes für die Untersuchung langsamer enzymatischer Reaktionen, die längere Beobachtungszeiträume erfordern. Insbesondere demonstriert die Anwendung die Detektion und Analyse der inhärenten DNase-Aktivität von LEI unter Verwendung eines ratiometrischen FRET-Systems. Die Ergebnisse dieser Studie sind in Abbildung 2 dargestellt.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Diskussion
Diese Studie demonstriert die Anwendung von ratiometrischen FRET zur Detektion und Bewertung der DNase-Aktivität mit Hilfe eines schwachen Nuklease-Leukozyten-Elastase-Inhibitors (LEI). Der Ansatz bietet eine bequeme und quantitative Methode zur Bewertung der DNase-Eigenschaften von Proteinen und Biomolekülen. Das Protokoll ist unkompliziert und das Verfahren zur Datenanalyse ist direkt und einfach. Der Assay verwendet eine 38-mer-FRET-Sonde, die lange Inkubationen bei verschiedenen saur...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Offenlegungen
Die Autoren haben nichts offenzulegen.
Danksagungen
Diese Forschung wurde durch das Stipendium R01 GM148812 des National Institute of General Medical Sciences, NIH, unterstützt; durch Zuschüsse in Höhe von R21 CA255979 vom National Cancer Institute, NIH; und gewährt R21 AG073887 und R21 AG071978 beide vom National Institute on Aging, NIH (alle V.V.D.).
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 96-Well-Platte | Falke | 353219 | |
| DNA-FRET-Sonde | IDT DNA | 5'-AAG GGT(TAM)CCT GCT GCA GGA CCC TTA ACG CAT TAT GCG T(FAM)T- 3'; FAM – Fluorescein-dT; TAM – Tetramethylrhodamin-dT. | |
| DNase II | Sigma Aldrich | Nr. D8764 | |
| EVOLT digitale SLR-Kamera | Olymp | E500 | |
| Gelelektrophorese-Gerät mit Stromversorgung | Bio-Rad | ||
| LEI | Novoprotein (Englisch) | CJ01 | |
| LiCOR Gel-Bildgebungssystem | LiCOR | ||
| Nukleasefreies Wasser | Invitrogen | 10977015 | |
| Vorgegossenes PAGE Gel | Invitrogen | EC68852 | |
| Natriumacetat-Pufferlösung pH 5,2 | Sigma Aldrich | Artikel-Nr.: S2899-100ML | |
| Spektrofluorometer | Tecan | Saffire 2 |
Referenzen
- A guide to ratiometric fluorescence. , AZoM. https://www.azom.com/article.aspx?ArticleID=16081 (2018).
- Müller, S. M., Galliardt, H., Schneider, J., Barisas, B. G., Seidel, T. Quantification of Förster resonance energy transfer by monitoring sensitized emission in living plant cells. Front Plant Sci. 4, 413(2013).
- Lakowicz, J. R. Principles of fluorescence spectroscopy. , Springer Science & Business Media. (2006).
- Chai, H., Tang, Y., Guo, Z., Miao, P. Ratiometric electrochemical switch for circulating tumor DNA through recycling activation of blocked DNAzymes. Anal Chem. 94 (6), 2779-2784 (2022).
- Liu, G., Ma, X., Tang, Y., Miao, P. Ratiometric fluorescence method for ctDNA analysis based on the construction of a DNA four-way junction. Analyst. 145 (4), 1174-1178 (2020).
- Minchew, C. L., Didenko, V. V. Nanoblinker: Brownian motion powered bio-nanomachine for FRET detection of phagocytic phase of apoptosis. PLoS One. 9 (9), e108734(2014).
- Didenko, V. V. Express FRET labeling and analysis of phagocytic clearance. Methods Mol Biol. 1644, 3-11 (2017).
- Domingo, B., Sabariegos, R., Picazo, F., Llopis, J. Imaging FRET standards by steady-state fluorescence and lifetime methods. Microsc Res Tech. 70 (12), 1010-1021 (2007).
- Lee, M. H., Kim, J. S., Sessler, J. L. Small molecule-based ratiometric fluorescence probes for cations, anions, and biomolecules. Chem Soc Rev. 44 (13), 4185-4191 (2015).
- Torriglia, A., Leprêtre, C., Padrón-Barthe, L., Chahory, S., Martin, E. Molecular mechanism of L-DNase II activation and function as a molecular switch in apoptosis. Biochem Pharmacol. 76 (11), 1490-1502 (2008).
- Padron-Barthe, L., Leprêtre, C., Martin, E., Counis, M. F., Torriglia, A. Conformational modification of serpins transforms leukocyte elastase inhibitor into an endonuclease involved in apoptosis. Mol Cell Biol. 27 (11), 4028-4036 (2007).
- Torriglia, A., Martin, E., Jaadane, I. The hidden side of SERPINB1/leukocyte elastase inhibitor. Semin Cell Dev Biol. 62, 178-186 (2017).
- Torriglia, A., et al. L-DNase II, a molecule that links proteases and endonucleases in apoptosis, derives from the ubiquitous serpin leukocyte elastase inhibitor. Mol Cell Biol. 18 (6), 3612-3619 (1998).
- Summer, H., Grämer, R., Dröge, P. Denaturing urea polyacrylamide gel electrophoresis (Urea PAGE). J Vis Exp. (32), e1485(2009).
- Lauková, L., Konečná, B., Janovičová, Ľ, Vlková, B., Celec, P. Deoxyribonucleases and their applications in biomedicine. Biomolecules. 10 (7), 1036(2020).
- Minchew, C. L., Didenko, V. V. Dual detection of nucleolytic and proteolytic markers of lysosomal cell death: DNase II-type breaks and cathepsin D. Methods Mol Biol. 1554, 229-236 (2017).
- Nucleases (DNases and RNases). , Sigma-Aldrich. https://www.sigmaaldrich.com/US/en/products/protein-biology/proteins-and enzymes/nucleases (2025).
- Altairac, S., Zeggai, S., Perani, P., Courtois, Y., Torriglia, A. Apoptosis induced by Na+/H+ antiport inhibition activates the LEI/L-DNase II pathway. Cell Death Differ. 10 (5), 548-557 (2003).
- Li, J. J., Geyer, R., Tan, W. Using molecular beacons as a sensitive fluorescence assay for enzymatic cleavage of single-stranded DNA. Nucleic Acids Res. 28 (11), E52(2000).
- Ma, C., Tang, Z., Huo, X., Yang, X., Li, W., Tan, W. Real-time monitoring of double-stranded DNA cleavage using molecular beacons. Talanta. 76 (2), 458-461 (2008).
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Nachdrucke und Genehmigungen
