Hier präsentieren wir eine Studie, die im iDiv Ecotron etabliert wurde, in terrestrischen Mesokosmenkammern mit kontrollierten Umweltbedingungen über und unter der Erde, um die unabhängigen und interaktiven Effekte von Pflanzen- und Bodengeschichte auf das Funktionieren von Ökosystemen von Graslandgemeinschaften entlang eines Pflanzendiversitätsgradienten zu untersuchen.
Methodenartikel
JenaTron - Ein experimenteller Ansatz zur Untersuchung der Auswirkungen von Pflanzen- und Bodengeschichte auf die Funktionsweise von Grünlandökosystemen
In diesem Artikel
Zusammenfassung
Zusammenfassung
Der weltweite Verlust der Artenvielfalt hat viele Studien motiviert, die den Artenreichtum von Pflanzen experimentell variieren und die Folgen für das Funktionieren von Ökosystemen untersuchen. Solche Experimente zeigen in der Regel einen positiven Zusammenhang zwischen ober- und unterirdischer Biodiversität und dem Funktionieren terrestrischer Ökosysteme. Darüber hinaus nimmt diese Beziehung im Laufe der Zeit tendenziell zu, was sich als verbesserte Funktionsfähigkeit verschiedener Pflanzengemeinschaften und als verminderte Funktionsfähigkeit von Pflanzengemeinschaften mit geringer Vielfalt zeigt. Es wird angenommen, dass Unterschiede in der Zusammensetzung multitrophischer Gemeinschaften und biotischen Interaktionen in Pflanzengemeinschaften mit hoher und niedriger Diversität die Leistung von Pflanzen beeinflussen, indem sie die Struktur und Funktion der Verbrauchergemeinschaften verändern und plastische oder mikroevolutionäre Reaktionen von Pflanzenarten in den Pflanzengemeinschaften auslösen. Um dieses komplexe Zusammenspiel der Gemeindegeschichte aufzulösen, haben wir diese Effekte in Pflanzen- und Bodengeschichte unterteilt. Die Pflanzengeschichte bezieht sich auf alle Reaktionen auf Pflanzenebene auf vergangene abiotische und biotische Selektionsdrucke, die in ihren Gemeinschaften erlebt wurden, während sich die Bodengeschichte auf alle abiotischen und biotischen Bodeneigenschaften bezieht, die sich als Vermächtnis von Pflanzen-Boden-Interaktionen unter variabler Pflanzenvielfalt entwickelt haben. Wir haben ein Biodiversitätsexperiment in einem Ecotron durchgeführt, einer terrestrischen Mesokosmenanlage, die es ermöglicht, die Umweltbedingungen über und unter der Erde zu kontrollieren, um zu testen, ob die Beziehung zwischen der Stärkung der Biodiversität und der Funktionsweise des Ökosystems auf die Bodengeschichte, die Pflanzengeschichte oder eine Kombination aus beidem zurückzuführen ist. Wir haben einen Pflanzendiversitätsgradienten bestehend aus 1, 2, 3 und 6 Grünlandpflanzenarten erstellt und für jede Stufe des Pflanzenartenreichtums mit Bodengeschichte und pflanzengeschichtlichen Behandlungen faktoriell verschachtelt. Repräsentative Ergebnisse zeigen die erfolgreiche Etablierung von Zielbehandlungen im Ecotron-Experiment, wobei die Auswirkungen der Pflanzen- und Bodengeschichte auf die anfängliche Pflanzenentwicklung und das endgültige Pflanzenwachstum beobachtet wurden. Zusätzlich stellen wir eine Fallstudie zur Datenanalyse einzelner Antwortvariablen zur Verfügung. Wir skizzieren Forschungsziele und Methoden, um die multifunktionalen Reaktionen auf die experimentellen Behandlungen umfassend zu bewerten, die notwendig sind, um letztendlich die übergeordnete Hypothese zu adressieren.
Einleitung
In den letzten drei Jahrzehnten hat die wachsende Besorgnis über den Verlust der biologischen Vielfalt zu umfangreichen Forschungen geführt, die sich auf die experimentelle Manipulation des Pflanzenartenreichtums konzentrieren, um seine Auswirkungen auf das Funktionieren des Ökosystems zu untersuchen 1,2. Experimentelle Studien haben einen positiven Zusammenhang zwischen der Pflanzenvielfalt und der Funktionsweise des Ökosystemsgezeigt 1, der im Laufe der Zeit tendenziell zunimmt 3,4,5,6,7,8,9. Dies ist eine wichtige Erkenntnis, da sie darauf hindeutet, dass experimentelle Ergebnisse von jungen, kürzlich etablierten Gemeinschaften wahrscheinlich die Folgen des Verlusts der biologischen Vielfalt unterschätzen, während sie gleichzeitig die Bedeutung des Schutzes älterer, artenreicher Ökosysteme betonen10.
Veränderungen in biotischen und abiotischen Prozessen im Laufe der Zeit, die nur in Langzeitexperimenten beobachtet werden können, sind eine mögliche Erklärung für die verstärkenden Effekte der Biodiversität auf das Funktionieren von Ökosystemen. Eine hohe Pflanzendiversität wurde mit einem Anstieg der Kohlenstoff- und Nährstoffkonzentrationen im Boden in Verbindung gebracht 3,9,11,12,13, einer optimierten Ressourcenkomplementarität 3,8,14, einer verbesserten Nischendifferenzierung zwischen Pflanzen15 und einer Akkumulation von Mutualisten auf allen trophischen Ebenen10,16und verringerte die Bedrohung durch Krankheitserreger und Pflanzenfresser durch stärkere Top-down-Regulationsmechanismen 17,18,19. Umgekehrt wurde eine geringe Pflanzenvielfalt mit einem Selektionsdruck in Richtung erhöhter Investitionen in die Pflanzenabwehr und einer weniger effizienten Ressourcennutzung in Verbindung gebracht 10,20,21,22. Zusammenfassend wird angenommen, dass Unterschiede in der Zusammensetzung multitrophischer Gemeinschaften und biotischer Interaktionen in Pflanzengemeinschaften mit hoher und niedriger Vielfalt die Pflanzenleistung beeinflussen, indem sie die Struktur und Funktion von Verbrauchergemeinschaften verändern und plastische oder mikroevolutionäre Veränderungen von Pflanzenarten auf der Ebene von Pflanzengemeinschaften vorantreiben 23,24,25,26. Um das komplexe Zusammenspiel der Gemeindegeschichte zu lösen, wurden diese Effekte in zwei wichtige Komponenten getrennt: Pflanzengeschichte und Bodengeschichte. Die Pflanzengeschichte bezieht sich auf alle Reaktionen der Pflanzen auf vergangenen abiotischen und biotischen Selektionsdruck, der in ihren jeweiligen Gemeinschaften erlebt wurde, während sich die Bodengeschichte auf alle abiotischen und biotischen Bodeneigenschaften bezieht, die sich als Ergebnis von Pflanzen-Boden-Wechselwirkungen entwickelt haben 23,24,27,28. Beide Komponenten werden zunehmend als Schlüsselfaktoren für langfristige Auswirkungen auf die biologische Vielfalt anerkannt 29,30,31.
Experimentelle Feldstudien liefern wertvolle Einblicke in die Langzeitwirkungen der Boden- und Pflanzengeschichte unter realistischen Umweltbedingungen und auf einer großen räumlichen Skala32,33. Feldversuche unterliegen jedoch verschiedenen unkontrollierten äußeren Faktoren, wie z. B. Wetterschwankungen, natürlichen Störungen und Wechselwirkungen mit anderen Organismen. Im Gegensatz dazu bieten kleine Mikrokosmos-Experimente zwar nur begrenzt die Komplexität und Dynamik natürlicher Ökosysteme, bieten aber eine präzise Kontrolle über abiotische Faktoren wie Temperatur, Licht und Wasser34. Um die Vorteile beider Ansätze zu kombinieren, entstanden in den 1990er Jahren neuartige Versuchsanlagen namens "Ecotrons" (z. B. Ecotron in Silkwood, UK34; Ecotron in Montpellier, Frankreich35; Ecotron in Hasselt, Belgien36). Roy et al. (2021)37 definieren ein Ecotron als eine experimentelle Anlage, die aus replizierten Gehäusen besteht, die für die Aufnahme von Ökosystemproben ausgelegt sind und eine realistische Simulation der ober- und unterirdischen Umweltbedingungen ermöglichen und gleichzeitig die gleichzeitige und automatisierte Messung von Ökosystemprozessen erleichtern. Auf diese Weise ermöglichen Ecotrons die integrierte Untersuchung komplexer Ökosystemprozesse, multitrophischer Wechselwirkungen und Ökosystemfunktionen. Sie können eine Vielzahl von ober- und unterirdischen Organismen aus mehreren trophischen Ebenen in einer großen Reihe unabhängiger Mesokosmenkammern beherbergen, was eine präzise Steuerung und Überwachung der Umweltbedingungen sowohl in ober- als auch in unterirdischen Systemen ermöglicht37,38.
In dieser Studie haben wir ein Experiment im iDiv Ecotron38,39 aufgebaut, das als "JenaTron Experiment" bezeichnet wird (Abbildung 1 und Abbildung 2), um zu testen, ob die Beziehungen zwischen Biodiversität und Ökosystemfunktionen (BEF) in Gemeinschaften mit unterschiedlichem Pflanzenartenreichtum durch die Bodengeschichte, die gemeinsame Pflanzengeschichte oder einen kombinierten Effekt aus beiden moduliert werden. Das iDiv Ecotron ist speziell für multitrophische Biodiversitätsexperimente konzipiert, die sich auf die gemeinsame Untersuchung von ober- und unterirdischen Wechselwirkungen in terrestrischen Ökosystemen konzentrieren 38,39,40. Es besteht aus 24 identischen experimentellen Einheiten, die als "EcoUnits" bezeichnet werden (Abbildung 2F,G), die jeweils in der Lage sind, bis zu vier einzelne Ökosysteme in isolierten Kompartimenten unterzubringen (Abbildung 2K), was den Aufbau komplexer, naturnaher Ökosysteme ermöglicht und gleichzeitig die Auswirkungen der Umweltvariabilität minimiert. Ein wesentlicher Vorteil ist die Fähigkeit, mehrere Replikate von intakten Bodenmonolithen (Abbildung 2A-C) unter kontrollierten Umweltbedingungen zu etablieren, was die Messung komplizierter Ökosystemprozesse ermöglicht, einschließlich Pflanzen-Pflanzen- und Pflanzen-Boden-Rückkopplungseffekten, die in kleinen Mikrokosmos-Experimenten oft schwer zu erfassen sind38,39.
In Europa gehören naturnahe Graslandschaften zu den artenreichsten und komplexesten Landökosystemen und erbringen lebenswichtige Ökosystemleistungen. Seit dem frühen 20. Jahrhundert sind diese extensiv bewirtschafteten Grünlandschaften jedoch zunehmend durch Landnutzungsänderungen bedroht, was sie zu einem wichtigen Schwerpunkt für den Erhalt und die Erforschung der Biodiversität macht. Eines der weltweit am längsten laufenden Biodiversitätsexperimente auf extensiv bewirtschafteten Grünflächen ist das Jenaer Experiment32,33 in Jena (50.951°N, 11.621°E, 139 m ü.d.M.; Webseite: https://the-jena-experiment.de). Das 2002 gestartete Experiment untersucht die Zusammenhänge zwischen der Pflanzenvielfalt des Grünlandes und der Funktionsweise von Ökosystemen, wobei der Schwerpunkt auf dem Nährstoffkreislauf und den trophischen Wechselwirkungen liegt32,33. Für die Installation des JenaTron Experiments innerhalb des iDiv Ecotron haben wir das Trait-Based Experiment41 (TBE) verwendet, eine Komponente des Jenaer Experiments, das 2010 initiiert und 2021 abgeschlossen wurde. Im Jahr 2022 wurden 23 Parzellen der FSME ausgewählt, um einen Pflanzendiversitätsgradienten von einer bis sechs Arten zu etablieren, der sich über 24 Pflanzengemeinschaften innerhalb des iDiv Ecotron erstreckt. Diese Gemeinschaften umfassten sechs Grünlandpflanzenarten, die sich mit dem Hauptversuch des Jenaer Versuchs überschnitten und drei Grasarten (Anthoxanthum odoratum L., Dactylis glomerata L., Holcus lanatus L.) und drei Kräuterarten (Leucanthemum vulgare agg., Plantago lanceolata L. und Ranunculus acris L. repräsentierten; siehe Tabelle 1 für Details zur Zusammensetzung der Pflanzenarten und zu den Replikaten für jede Stufe der Pflanzenvielfalt). Diese Arten, die in naturnahen europäischen Graslandschaften weit verbreitet sind und häufig nebeneinander leben, unterscheiden sich zusätzlich in ihren Merkmalen des zeitlichen Ressourcenerwerbs, was sie ideal für umfassende Studien zur zeitlichen Ressourcennutzung macht, wie z.B. die Pflanzenphänologie41. Die 24 Pflanzenzusammensetzungen wurden nach dem Zufallsprinzip allen EcoUnits zugeordnet (Abbildung 1C), wobei jede EcoUnit weiter in vier Kompartimente unterteilt wurde, um die faktoriellen Kombinationen von Bodenanamnese und pflanzengeschichtlichen Behandlungen zu berücksichtigen.
Die Bodengeschichte (Abbildung 1A) wurde durch die Ausgrabung von insgesamt 96 Bodenmonolithen aus dem Jenaer Experiment ermittelt. Der Boden des Standorts ist ein nährstoffreicher Auenboden, der als Eutrisches Fluvisole klassifiziert ist und sich aus lehmigen Flusssedimenten entwickelthat 32,33. Detaillierte Informationen zum pH-Wert des Bodens, zu Veränderungen der Bodentextur und zur organischen Substanz innerhalb des Bodenprofils des Jenaer Experiments finden Sie in Lange et al. (2023)9. Von den 96 Monolithen wurden 48 durch Ausgrabung von jeweils zwei Monolithen von 22 TBE-Parzellen gewonnen, die Monokulturen, Zwei- und Drei-Arten-Mischungen umfassen. Zusätzlich wurden vier Monolithen aus einer Acht-Spezies-Parzelle entnommen, die als Sechs-Spezies-Mischung im JenaTron-Experiment dienen werden. Jeder dieser 48 Bodenmonolithen (Tiefe: 0,8 m; Durchmesser: 0,5 m) beherbergte seit 2010 eine parzellenspezifische Residenzgemeinschaft und repräsentiert damit eine pflanzengemeinschaftsspezifische Bodengeschichte (+SH). Die restlichen 48 Monolithen wurden von vier kahlen Bodenflächen freigelegt, die seit Beginn des Jenaer Experiments im Jahr 2002 vegetationsfrei gehalten wurden und somit keine pflanzengemeinschaftsspezifische Bodengeschichte (-SH) aufweisen. Von jedem der vier nackten Grundstücke wurden 12 Monolithen ausgegraben. Die beiden Bodenanamnesebehandlungen (+SH; -SH) wurden faktoriell mit zwei Pflanzenanamnesebehandlungen kombiniert, indem vorgezogene Pflanzen, die die pflanzengemeinschaftsspezifische Zusammensetzung der FSME in gleicher Dichte widerspiegelten, mit Einzelpflanzen im Abstand von 6 cm gepflanzt wurden.
Die Pflanzengeschichte (Abbildung 1B) wurde anhand von zwei unterschiedlichen Saatgutquellen für jede der ausgewählten Pflanzenarten aus dem Artenpool des Jenaer Experiments ermittelt: Die erste Quelle bestand aus Samen von Pflanzen, die seit 2010 eine gemeinschaftsspezifische Geschichte erlebt hatten, was genau den Flächen des Trait-Based Experiments (TBE) entsprach, von denen die Bodenmonolithen ausgegraben wurden (+PH). Diese Samen wurden von Mai bis September 2019 in Abhängigkeit von der Phänologie der blühenden Art gesammelt, wobei sichergestellt wurde, dass mindestens fünf Individuen pro Art und Parzelle beprobt wurden. Nach der Entnahme wurden die Samen gereinigt und bis zum Beginn des JenaTron-Experiments bei -20°C gelagert. Die zweite Saatgutquelle bestand aus Saatgut, das von einem kommerziellen Saatgutlieferanten stammte, der Saatgut regionaler Herkunft herstellte. Dieses Saatgut wurde 2010 zur Etablierung der FSME-Parzellen verwendet und repräsentiert somit Pflanzen ohne gemeinschaftsspezifische Selektionsgeschichte innerhalb des Jena-Experiments (-PH) und wurde von 2010 bis zum Start des JenaTron-Experiments bei -20°C gelagert. Beide Geschichten der sechs mehrjährigen Pflanzenarten wurden von Februar bis Mai 2022 in vier Kammern des Forschungsgewächshauses iDiv in Leipzig (51.330°N, 12.393°E, 120 m ü.d.M.) vorkultiviert.
Die faktorielle Kombination von Bodengeschichte (SH) und Pflanzengeschichte (PH) auf jeder Ebene des Pflanzenartenreichtums führte zu vier Behandlungen innerhalb jeder der 24 EcoUnits: (1) mit Bodengeschichte, mit Pflanzengeschichte (+SH/+PH), (2) mit Bodengeschichte, ohne Pflanzengeschichte (+SH/-PH), (3) ohne Bodengeschichte, mit Pflanzengeschichte (-SH/+PH) und (4) ohne Bodengeschichte, ohne Pflanzengeschichte (-SH/-PH; Abbildung 1C). Das primäre Ziel des JenaTron-Experiments ist es, zu untersuchen, ob die zunehmende Beziehung zwischen Biodiversität und Ökosystemfunktionen auf die Bodengeschichte, die Pflanzengeschichte oder eine Kombination aus beidem zurückzuführen ist. Wir stellen die Hypothese auf, dass Pflanzengemeinschaften mit einer gemeinsamen pflanzen- und bodengemeinschaftsspezifischen Geschichte die stärkste BEF-Beziehung aufweisen, während ein experimenteller Ausschluss der Bodengeschichte, der Pflanzengeschichte oder beider negative Auswirkungen auf die positiven Beziehungen der Pflanzendiversität und der Ökosystemfunktion haben kann. Sollte die Boden- oder Pflanzengeschichte die Beziehung zwischen Pflanzenartenreichtum und Ökosystemfunktion verändern, wäre dies letztlich ein wichtiger Aspekt für die Erhaltung und Überwachung lokal erhaltener und neu wiederhergestellter Lebensgemeinschaften.
Protokoll
HINWEIS: Stellen Sie sicher, dass bei allen Protokollschritten geeignete persönliche Schutzausrüstung (z. B. Helme, Handschuhe, Westen, Sicherheitsschuhe usw.) zur Verfügung gestellt wird.
1. Böden: Vorbereitung, Aushub, Installation
- Bodenquellen, Parzellenauswahl und -vorbereitung (Februar 2022)
- Wählen Sie zwei Bodenquellen aus dem Jenaer Experimentfeldstandort aus:
- Wählen Sie 23 FSME-Flächen aus, die 12 Jahre lang eine flächenspezifische Lebensgemeinschaft beherbergten, um einen Pflanzendiversitätsgradienten von 1, 2, 3 und 6 Arten abzudecken. Bezeichnen Sie diese Flächen als JenaTron-Experiment-Behandlung "mit pflanzengemeinschaftsspezifischer Bodengeschichte" (+SH).
- Auswahl von 4 unbedeckten Flächen mit den gleichen Bodeneigenschaften wie die FSME-Flächen (pH-Wert, Sandgehalt usw.), die jedoch seit 2002 ohne Vegetationsdecke gehalten werden. Bezeichnen Sie diese Flächen als JenaTron-Experiment-Behandlungen "ohne pflanzengemeinschaftsspezifische Anamnese" (-SH).
- Entfernen Sie vorsichtig die oberen 5 cm Boden von allen ausgewählten Parzellen mit einem Minibagger, um die Bedingungen bei den Bodenverlaufsbehandlungen auszugleichen.
- Wählen Sie zwei Bodenquellen aus dem Jenaer Experimentfeldstandort aus:
- Aushub eines Bodenmonolithen (März 2022)
- Richten Sie die monolithische Extraktionsvorrichtung an jeder Parzelle ein, montieren Sie ein Schneidsystem auf einen leeren Stahlzylinder und setzen Sie es in die Extraktionsvorrichtung ein (Abbildung 2A).
- Schalten Sie das Gerät ein, und das Schneidsystem dreht sich um die äußere Zylinderwand. Das System schneidet eine Kerbe in den Boden, in die die Absaugvorrichtung gleichzeitig den Stahlzylinder drückt. Parallel dazu heben Sie mit einem Minibagger eine Grube an der Seite des Stahlzylinders aus (Abbildung 2B).
- Sobald der Stahlzylinder vollständig in den Boden eingelassen ist, klettern Sie in die Seitengrube und klemmen Sie den Monolithen an der Unterkante des Stahlzylinders ab, indem Sie eine provisorische Bodenplatte montieren, und heben Sie ihn mit der Monolith-Extraktionsvorrichtung aus der Baugrube (Abbildung 2C).
- Demontieren Sie das Schneidsystem vom Stahlzylinder, montieren Sie eine provisorische Deckplatte am Stahlzylinder, heben Sie den Monolithen mit einer am Minibagger befestigten Aufhängung an und drehen Sie ihn auf den Kopf.
- Installation des Wassersaugsystems (März 2022)
- Demontieren Sie die Bodenplatte, entfernen Sie ca. 5 cm Erdschicht mit einer Kelle und bewahren Sie sie für den späteren Gebrauch auf.
- Betten Sie einen Ring aus Wassersaugsonden (8 Kerzen, die mit Schläuchen aus Polyvinylchlorid [PVC] verbunden sind) in Quarzpulver ein, befeuchten Sie es mit demineralisiertem Wasser (VE) und füllen Sie den Boden des Stahlzylinders wieder mit der zuvor entfernten Erde.
- Verbinden Sie das PVC-Endstück des Wassersaugsondenrings mit der Bodenplatte und verschrauben Sie es anschließend.
- Drehen Sie den Stahlzylinder mit der Aufhängung am Minibagger wieder aufrecht, beschriften Sie ihn einzeln, versiegeln Sie die Öffnungen in den Zylinderwänden mit Klebeband und wickeln Sie den Zylinder zum Schutz während des Transports in Plastikfolie ein.
- Transportieren Sie die Bodenmonolithen mit einem LKW zum iDiv Ecotron, das sich an der Experimentierfeldstation des Helmholtz-Zentrums für Umweltforschung (UFZ) in Bad Lauchstädt (51.392°N, 11.876°E, 116 m ü.d.M.) befindet.
- Installation von Bodensensoren (April 2022)
- Schneiden Sie nach dem Auspacken mit einer maßgeschneiderten Stahlklinge mit Hilfe der Öffnungen in der Zylinderwand in drei verschiedenen Tiefen (9,5 cm, 21,5 cm und 43,5 cm) passgenaue Löcher für die Sensoren horizontal in den Bodenmonolithen.
- Platzieren Sie die Bodensensoren in den Löchern, bringen Sie sie mit einem Holzklotz in die richtige Position und verschrauben Sie die Öffnungen mit speziell angefertigten Verschlussstopfen.
- Einbau der Bodenmonolithen in die EcoUnits (April 2022)
- Heben Sie den technischen und den oberen Teil jeder EcoUnit vorsichtig vom unteren Teil ab (Abbildung 2G). Transportieren Sie den unteren Teil zu den Stahlzylindern, in denen sich die mit Bodensensoren ausgestatteten Monolithen des intakten Bodens befinden.
- Befestigen Sie jeden Stahlzylinder an einer Aufhängung, heben Sie ihn mit einem Gabelstapler an und montieren Sie einen Anschluss an den Saugkerzenring, der mit der Bodenplatte verbunden ist.
- Heben Sie vier Bodenmonolithen in den unteren Behälter jeder der 24 EcoUnits (Abbildung 2F), wobei zwei die gleiche pflanzengemeinschaftsspezifische Bodengeschichte (SH) und zwei ohne pflanzengemeinschaftsspezifische Bodengeschichte (-SH) haben. Führen Sie die Kabel der Bodensensoren durch die Öffnungen des Bodenbehälters.
- Befestigen Sie die Stahlzylinder mit Schrauben am unteren Teil und verbinden Sie anschließend die Wassersaugkerzenringe jedes Zylinders über den zuvor installierten Anschluss mit dem Wassersaugsystem der EcoUnit.
- Transportieren Sie den mit den Erdmonolithen bestückten Container mit dem Gabelstapler in eine Halle (24 m x 24 m).
- Platzieren Sie den technischen Teil und den oberen Teil (mit Innenwänden zwischen den Untereinheiten [Abbildung 2K]) jeder EcoUnit vorsichtig wieder auf dem unteren Teil.
- Ordnen Sie alle 24 EcoUnits in drei Reihen an, die jeweils aus zwei Gruppen von je vier EcoUnits bestehen, die insgesamt sechs Blöcke bilden. Achten Sie auf einen Achsabstand von 6 m zwischen den Blöcken innerhalb jeder Reihe und 8,2 m zwischen den Reihen. Weisen Sie in jedem Block die vier Pflanzendiversitätsstufen (1, 2, 3 und 6) nach dem Zufallsprinzip den vier EcoUnits zu, um eine gleichmäßige Verteilung der Arten auf alle EcoUnits zu gewährleisten, wo immer dies möglich ist.
2. Pflanzen: Vorbereitung und Anbauanlage
- Auswahl der Arten und des Saatguts
- Wählen Sie aus dem Artenpool des Jenaer Experiments die folgenden sechs Pflanzenarten aus: Anthoxanthum odoratum L. (Poaceae), Dactylis glomerata L. (Poaceae), Holcus lanatus L. (Poaceae), Leucanthemum vulgare agg. (Asteraceae), Plantago lanceolata L. (Plantaginaceae) und Ranunculus acris L. (Ranunculaceae).
- Wählen Sie für jede Art Saatgut aus, das aus zwei verschiedenen Saatgutquellen stammt:
- Verwenden Sie Samen von Pflanzen, die seit 2010 auf den FSME-Parzellen des Jenaer Versuchs gewachsen sind (mit Pflanzengeschichte, +PH).
- Verwenden Sie das Originalsaatgut, das 2010 zur Auslösung der FSME verwendet wurde und von einem regionalen Saatgutproduzenten (ohne Pflanzenanamnese, -PH) bezogen wurde.
- Vorbereitung des Untergrunds (Februar 2022)
- Sammeln Sie parzellenspezifischen Boden von jeder der ausgewählten Parzellen am Einsatzort des Jenaer Experiments. Füllen Sie die Erde in 20-Liter-Plastikboxen und lagern Sie sie bei 4 °C, bis sie für den Pflanzenanbau verwendet wird.
- Sieben Sie jeden parzellenspezifischen Boden durch ein 4 mm Maschenweite. Mischen Sie die Erde von den vier kahlen Grundstücken vor dem Sieben.
- Um unerwünschte Biota zu entfernen, wird Quarzsand in Edelstahlbehälter umgefüllt und in einem Trockenofen 4 h lang bei 200 °C erhitzt.
- Parzellenspezifische Erde und Quarzsand im Verhältnis 3:1 nach Volumen mischen und das Boden-Sand-Gemisch mit einer Kunststoffschaufel (gesamt n = 152) in Multipotplatten füllen.
- Beschriften Sie jede Multipot-Platte einzeln und stellen Sie sie in ein Gewächshaus mit einem Tag-Nacht-Zyklus von 16 h/18 °C und 8 h/12 °C, wobei eine moderate Luftfeuchtigkeit von 60 % bis 70 % relativer Luftfeuchtigkeit (RH) beibehalten wird.
- Gießen Sie die Platten bei Bedarf und halten Sie sie zwei Wochen lang kahl, damit die Saatgutbanken der Erde keimen können. Jäten Sie alle Platten zweimal, um unerwünschte Sämlinge zu entfernen.
- Aussaatkampagne (März-April 2022)
- Bestimmen Sie die Aussaatreihenfolge anhand der artspezifischen Keimzeit wie folgt:
- Säen Sie R. acris 2 Wochen vor anderen Kräutern
- Säen Sie P. lanceolata und L. vulgare 1 Woche vor den Gräsern A. odoratum, D. glomerata und H. lanatus.
- säen Sie alle Arten, außer R. acris, direkt in das parzellenspezifische Boden-Sand-Substrat (3:1) in Mehrtopfplatten mit zwei oder drei Samen pro Topf. Nach erfolgreicher Keimung dünnen Sie alle Arten mit einer Federstahlpinzette zu einzelnen Sämlingen aus.
- R. acris-Samen in Petrischalen auf Filterpapier vorbehandeln, das mit einer Gibberellinsäurelösung (1000 mg. L−1), um die Ruhephase zu unterbrechen (Abbildung 2D). Inkubieren Sie die Samen 24 Stunden lang.
- Übertragen Sie die Samen von R. acris bis zur Keimung auf Filterpapier, das mit demineralisiertem Wasser (VE) angefeuchtet ist. Sobald die Samen das Keimwurzelstadium erreicht haben, stechen Sie die Sämlinge mit einer Federstahlpinzette in das parzellenspezifische Boden-Sand-Substrat (3:1) in den vorbereiteten Multipot-Platten.
- Gießen Sie alle Pflanzeneinzelpersonen bei Bedarf mit entionisiertem Wasser und bewahren Sie sie bis zum Transport zum iDiv Ecotron im Gewächshaus auf (Abbildung 2E-H)
- Bestimmen Sie die Aussaatreihenfolge anhand der artspezifischen Keimzeit wie folgt:
- Pflanzkampagne (Mai 2022)
- Entwerfen Sie individuelle Pflanzschemata für alle Erdmonolithen mit folgenden Eigenschaften:
- Sorgen Sie für eine ausgewogene Anzahl von Individuen pro Art innerhalb der Pflanzengemeinschaften.
- Halten Sie einen Abstand von 6 cm zwischen jedem Pflanzenindividuum und seinem Nachbarn ein.
- Randomisieren Sie das Pflanzmuster über die EcoUnits hinweg, aber halten Sie es innerhalb der Untereinheiten konstant.
- Verwenden Sie eine speziell angefertigte Pflanzschablone, um die genaue Position jeder einzelnen Pflanze auf den Bodenmonolithen zu markieren. Verwenden Sie zum Markieren verschiedenfarbige Plastikzahnstocher und weisen Sie jeder Art eine bestimmte Farbe zu. Entfernen Sie nach dem Markieren die Schablone (Abbildung 2I).
- Pflanzen Sie die vorgezogenen Pflanzen innerhalb einer Woche auf alle Erdmonolithen mit Zwiebelpflanzgefäßen mit einem Durchmesser von 4 cm (insgesamt 5280 Pflanzenindividuen; Abbildung 2J).
- Entwerfen Sie individuelle Pflanzschemata für alle Erdmonolithen mit folgenden Eigenschaften:
3. Ablauf des Versuchs
- Dreiwöchige Aufbauphase (Mai 2022):
- Ersetzen Sie alle Individuen, die die Pflanzkampagne nicht innerhalb von 2 Wochen nach der Erstpflanzung überlebt haben (n = 124 [2,35%]).
- Schalten Sie das Licht ein und stellen Sie das Beleuchtungsregime auf einen Tag-Nacht-Zyklus von 16/8 Stunden ein. Um die regionale Tageslänge im späten Frühling und Sommer zu Beginn des Experiments zu replizieren, simulieren Sie die Dämmerung, indem Sie das Licht von 100 % auf 75 % Intensität über eine Stunde und dann auf 0 % in der nächsten Stunde dimmen (100 % Intensität: ~370 μmol/(m²·s)). Simulieren Sie die Morgendämmerung, indem Sie dieses Dimmmuster umkehren.
- Gleichen Sie die obere Bodenfeuchte mit einem Bodenfeuchtemesskit auf 20 Vol.-% (± 3 %) aus.
- Stellen Sie die anfängliche Bewässerung auf 450 mL alle 12 Stunden für jede Untereinheit ein.
- Schließen Sie Luft- und Bodensensoren an, um Temperatur und Luftfeuchtigkeit während des gesamten Experiments zu überwachen.
- Experimentierphase (Juni-Oktober 2022)
- Der natürlichen Saisonalität folgend, verkürzen Sie die Tageslänge von August bis Oktober alle 2 Wochen um eine volle Stunde, um die regionalen Tageslängen vom Spätsommer bis zum Herbst zu berücksichtigen.
- Erhöhen Sie die anfängliche Bewässerung auf 650 ml alle 12 Stunden im Juli und 750 ml alle 12 Stunden im August, um sie an den Wasserbedarf der Pflanzen anzupassen.
- Jäten Sie unerwünschte Sämlinge im Keimblattstadium ständig mit einer Pinzette aus, um die Pflanzendichte zu erhalten und gleichzeitig die Störung der Bodenstruktur zu minimieren.
- In Übereinstimmung mit der Standardbewirtschaftung für extensiv bewirtschaftete Wiesen führen Sie zwei Ernten von oberirdischer Biomasse durch und schneiden Sie die Pflanzen mit einer Schere 3 cm über der Bodenoberfläche ab.
Ergebnisse
Um erste Einblicke in die Wirksamkeit dieses Ansatzes bei der Überprüfung der unabhängigen und interaktiven Effekte der Pflanzen- und Bodengeschichte auf die Funktionsbeziehungen zwischen Biodiversität und Ökosystem zu erhalten, werteten wir zunächst Fotografien von zwei repräsentativen EcoUnits nach der 3-wöchigen Etablierungsphase des JenaTron-Experiments aus, bei denen die Behandlungseffekte schnell sichtbar wurden (Abbildung 3). Neben behandlungsspezifischen Unterschieden in der Höhe und Farbe der Pflanzengemeinschaft (Abbildung 3A) konnten wir zusätzlich behandlungsspezifische Unterschiede in der Blütezeit von R. acris feststellen. Insbesondere Pflanzen, die aus Samen ohne Pflanzengeschichte gezogen wurden, schienen einen früheren Blütenbeginn zu haben als Pflanzen, die aus Samen mit der gemeinschaftsspezifischen Pflanzengeschichte des Jenaer Experiments gezogen wurden (Abbildung 3B).
Um zu bewerten, ob die neu etablierten Gemeinschaften im iDiv-Ecotron die ursprünglichen Feldgemeinschaften genau widerspiegeln, wurde eine vergleichende Analyse der artspezifischen vegetativen Pflanzenhöhe als Indikator für die endgültige Pflanzenentwicklung zwischen dem JenaTron-Experiment und den FSME-Parzellen durchgeführt. Im JenaTron-Experiment wurde die Pflanzenhöhe als Mittelwert des höchsten vegetativen Blattes von drei Individuen pro Pflanzenart in jeder der 24 Gemeinschaften und Behandlungskombinationen kurz vor der ersten Erntekampagne Ende Juli 2022 bestimmt. In der FSME wurde die vegetative Pflanzenhöhe als Mittelwert des höchsten vegetativen Blattes von drei Individuen pro Pflanzenart und Parzelle im Juli 2012 bestimmt. Die Messungen der Pflanzenhöhe mit dem iDiv Ecotron zeigen eine starke Korrelation mit denen aus den Feldflächen des Jenaer Experiments (Ergänzende Abbildung 1).
Um eine Fallstudie für die Datenanalyse zu erhalten, wurde die Höhe der vegetativen Pflanze im iDiv Ecotron genauer untersucht. Wir konzentrierten uns auf Analysen auf Arten- und Gemeinschaftsebene und testeten, ob Pflanzengeschichte, Bodengeschichte und Pflanzendiversität das vegetative Pflanzenwachstum beeinflussen. Hierfür haben wir lineare Mixed-Effects-Modelle (LMM) verwendet und die Ergebnisse über die ANOVA zusammengefasst (Typ-I-Summe der Quadrate; für detaillierte ANOVA-Ergebnisse siehe Ergänzende Tabelle 1). Auf Parzellenebene waren die Antwortvariablen die mittlere vegetative Höhe der Pflanze und der Variationskoeffizient der Pflanzenhöhe (CV = sd/Mittelwert 100). Zu den festen Effekten gehörten die Pflanzendiversität (numerisch), die Behandlung von Pflanzen und Böden und deren Wechselwirkungen. Zu den zufälligen Effekten gehörte die EcoUnit, die im Ecotron-Hallenblock verschachtelt war. Auf der Ebene der Arten haben wir zusätzlich Arten und ihre Wechselwirkung mit der Pflanzenvielfalt und der historischen Behandlung in festen Begriffen einbezogen. Datentransformationen (log für die Pflanzenhöhe und Quadratwurzel für die Höhe (CV)) stellten sicher, dass die Modellannahmen erfüllt wurden. Die Analysen wurden mit R (Version4.3.1)42 und dem nlme-Paket für LMMs43 durchgeführt. Die Ergebnisse zeigten signifikante Artenunterschiede in der Pflanzenhöhe, wobei die Gräser höher als die Kräuter waren (Abbildung 4, Ergänzende Abbildung 2). Über alle Arten hinweg wirkte sich die Bodengeschichte positiv auf die Pflanzenhöhe aus (F(1,66) = 11,11, P = 0,001), während die Pflanzengeschichte und -diversität keinen signifikanten Einfluss hatte (F(1,66) = 0,22, P = 0,64 bzw. F(1,17) = 1,52, P = 0,23; Abbildung 4). Auf Gemeinschaftsebene hatte die Pflanzenvielfalt keinen Einfluss auf die Höhe (F(1,17) = 0,01, P = 0,91; Abbildung 5A) aber signifikant erhöhte die CV der Pflanzenhöhe innerhalb der Gemeinschaften (F(1,17) = 14,29, P = 0,002; Abbildung 5B). Es wurden keine signifikanten Auswirkungen der Pflanzen- oder Bodengeschichte auf die Pflanzenhöhe CV gefunden (F(1,68) = 0,55; P = 0,46; F(1,68) = 0,09, P = 0,76; Abbildung 5). Wir haben die Daten und das R-Skript in die Datenbank des Jenaer Experiments (https://doi.org/10.25829/QN9R-J839) hochgeladen.

Abbildung 1: Aufbau des JenaTron-Experiments. (A) Die Bodengeschichte (SH) wurde durch die Ausgrabung von 96 intakten Bodenmonolithen aus dem Jena-Experiment (JE) ermittelt, von denen die Hälfte (n = 48) von 23 Flächen stammte, die 12 Jahre lang eine flächenspezifische Gemeinschaft beherbergten (+SH), während die andere Hälfte (n = 48) von vier nackten Flächen stammte, die seit Beginn des Jenaer Experiments im Jahr 2002 vegetationsfrei gehalten wurden (-SH). (B) Die Pflanzengeschichte (PH) wurde anhand von zwei Saatgutquellen für jede der sechs Pflanzenarten erstellt: Samen von Pflanzen, die seit 2010 auf denselben Parzellen angebaut wurden, auf denen die Monolithen im Jenaer Experiment ausgegraben wurden (+ PH), und das ursprüngliche Saatgut, das 2010 zur Aussaat dieser Gemeinschaften auf dem Feld verwendet wurde (-PH). (C) Die Pflanzengeschichte und die Bodengeschichte wurden für jede Zusammensetzung auf verschiedenen Ebenen der Pflanzendiversität (1, 2, 3 und 6) unabhängig voneinander gekreuzt, was zu vier Behandlungen in jeder EcoUnit des iDiv Ecotron führte: (1) +SH/+PH, (2) +SH/-PH, (3) -SH/+PH und (4) -SH/-PH. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.

Abbildung 2: Das iDiv-Ecotron an der Forschungsstation des Helmholtz-Zentrums für Umweltforschung (UFZ) in Bad Lauchstädt. (A) Bodenmonolithen-Aushubgeräte im Feld, (B) Bodenmonolithenaushub im Feld, (C) Baugrube im Feld, (D) Aufbereitung von Ranunculus acris-Samenmaterial in Petrischalen auf mit Gibberellinsäurelösung angefeuchtetem Filterpapier im Gewächshaus, (E) Vorkultivierung von Pflanzen mit parzellenspezifischem Bodensubstrat in Multipotplatten im Gewächshaus, (F) EcoUnits in der iDiv Ecotron-Halle, (G) Schematische Darstellung einer Versuchseinheit ("EcoUnit") mit technischer Ausstattung (adaptiert von Eisenhauer et al. (2019)23 und Schmidt et al. (2021)38), (H) Platten mit allen im JenaTron-Experiment zu pflanzenden Individuen) nach dem Transport zum iDiv Ecotron, (I) Artspezifische Markierung der Pflanzpositionen für alle Pflanzenindividuen auf einem Bodenmonolithen, der mit einer Pflanzschablone erstellt wurde, (J) Pflanzung von Pflanzenindividuen auf einem Bodenmonolithen mit Hilfe von Blumenzwiebelpflanzgefäßen, (K) Vier Lysimeter in einer EcoUnit mit Innenwänden. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.

Abbildung 3: Zwei Vertreter der 24 EcoUnits, die jeweils eine Gemeinschaft in allen Behandlungskombinationen der Pflanzen- und Bodengeschichte beherbergen. (A) EcoUnit mit einer 3-Spezies-Mischung (A. odoratum, H. lanatus und P. lanceolata) mit behandlungsspezifischen Unterschieden in der Höhe und Farbe der Gemeinschaftsvegetation. (B) EcoUnit mit einer Monokultur von R. acris, was auf pflanzengeschichtliche Unterschiede in der Blütezeit hinweist. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
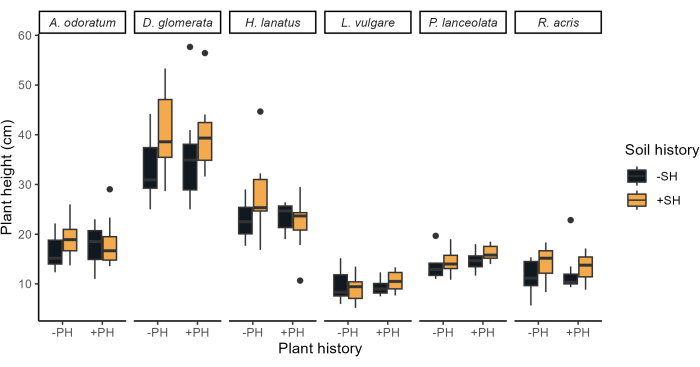
Abbildung 4: Auswirkungen der Pflanzen- und Bodengeschichte auf die vegetative Pflanzenhöhe (cm) der sechs Grünlandpflanzenarten vor der ersten Ernte im Juli 2022. Die Arten sind alphabetisch innerhalb funktioneller Gruppen (Gräser, gefolgt von Kräutern) aufgeführt. Die Behandlungen der Pflanzenanamnese (+PH/-PH) befinden sich auf der x-Achse, und die Bodenanamnese (+SH/-SH) ist in den Boxplots farbcodiert (gelb/schwarz). Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
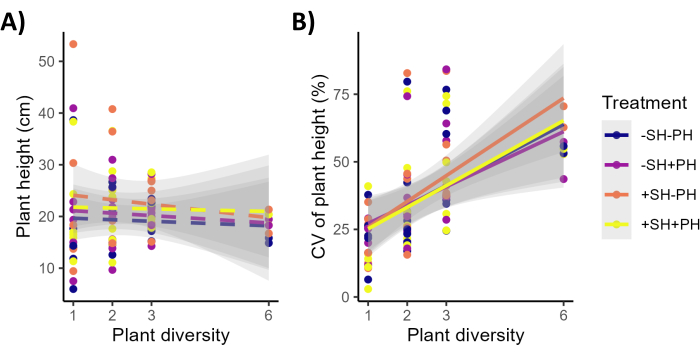
Abbildung 5: Auswirkungen des Artenreichtums auf den Mittelwert der Gemeinschaft und die Variation der Höhe der vegetativen Pflanzen. (A) Mittelwert der Gemeinschaft. (B) Variation der vegetativen Pflanzenhöhe. (+PH/-PH) für die Pflanzengeschichte, (+SH/-SH) für die Bodengeschichte. Die Variation der Pflanzenhöhe (CV) wird pro Untereinheit angezeigt. Gestrichelte Linien stehen für nicht signifikante, durchgezogene Linien für signifikante Auswirkungen auf die Pflanzenvielfalt. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
Tabelle 1 Pflanzengemeinschaften im JenaTron Experiment. Monokulturen aller ausgewählten Pflanzenarten (n = 6); Mischungen aus 2 Spezies (n = 9); 3-Spezies-Mischungen (n = 7), alle mit unterschiedlicher Zusammensetzung; und zwei identische Replikate der 6-Spezies-Mischung (n = 2). Bitte klicken Sie hier, um diese Tabelle herunterzuladen.
Ergänzende Abbildung 1: Durchschnittliche Pflanzenhöhe der Art. Durchschnittliche Pflanzenhöhe der Art auf den (A) JenaTron Experiment Parzellen (Juli 2022) und auf den Feldflächen (B) FSME (Juli 2012). Nur Daten aus der Behandlung mit Pflanzenanamnese und Bodenanamnese wurden in Panel A aufgenommen. Es besteht eine signifikante Korrelation zwischen der Pflanzenhöhe im JenaTron-Experiment und den Feldflächen (Pearson-Korrelation r(49) = 0,45, p = 0,0008). Bitte klicken Sie hier, um diese Datei herunterzuladen.
Ergänzende Abbildung 2: Auswirkungen pflanzen- und bodengeschichtlicher Behandlungen auf die vegetative Pflanzenhöhe (cm) der sechs Pflanzenarten auf verschiedenen Ebenen der Pflanzendiversität (SR). Die Legendensymbole +PH und -PH stehen für Behandlungen mit und ohne Pflanzengeschichte, während +SH und -SH für Behandlungen mit bzw. ohne Bodengeschichte stehen. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Ergänzende Tabelle 1: ANOVA-Ergebnisse aus linearen Modellen mit gemischten Effekten, die die Auswirkungen der Pflanzendiversität (Artenreichtum, SR), der Bodengeschichte (SH) und der Pflanzengeschichte (PH) auf die Pflanzenhöhe sowohl auf Artenebene als auch auf Parzellenebene bewerten. F-Werte und p-Werte werden für jeden Term angegeben. Hinweis: numDF und denDF stellen den Zähler und den Nenner der Freiheitsgrade für jeden Modellterm dar. P-Werte < 0,05 deuten auf einen statistisch signifikanten Effekt auf die Pflanzenhöhe hin. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Ergänzende Tabelle 2: Über- und unterirdische Messungen, Antwortvariablen und Methoden. Ein Spektrum von ober- und unterirdischen Messungen, Antwortvariablen und Methoden, die im JenaTron Experiment durchgeführt wurden, um die unabhängigen und interaktiven Effekte von Pflanzen- und Bodengeschichte auf BEF-Beziehungen für Ökosysteme als Ganzes zu untersuchen. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
Mit dem JenaTron Experiment bieten wir einen komplementären experimentellen Ansatz zum Jenaer Experimentfeldstandort 32,33, um unser mechanistisches Verständnis der BEF-Beziehungen zu verbessern. Das Feldexperiment ermöglicht es uns, die langfristigen Auswirkungen der Boden- und Pflanzengeschichte auf das Funktionieren von Ökosystemen unter realistischen Umweltbedingungen zu untersuchen, wobei große, ungestörte Flächen wiederholte Messungen über viele Jahre ermöglichen. Die zufällig ausgewählten Kombinationen von Pflanzenarten aus einem großen Artenpool entlang eines gut etablierten Pflanzendiversitätsgradienten von Monokulturen bis zu 60 Arten helfen, Diversitätseffekte zu identifizieren, indem artspezifische Effekte so weit wie möglich ausgeschlossenwerden 32,33. Das Feldexperiment, das sich hier explizit auf das "ΔBEF-Experiment" als Teil des Jenaer Experiments bezieht (für weitere Details siehe Vogel et al. (2019)29), beschränkt sich jedoch darauf, die Boden- und Pflanzengeschichte völlig unabhängig voneinander und von möglichen Einflüssen verschiedener äußerer Faktoren, wie Wetterschwankungen, natürliche Störungen und Wechselwirkungen mit anderen Organismen, zu untersuchen29. An dieser Stelle rückt der komplementäre Ansatz der Nutzung von Ecotron-Experimenten in den Fokus der BEF-Forschung. Ökotron-Experimente stellen ein wichtiges Bindeglied zwischen kleinräumigen, kurzfristigen Mikrokosmos-Experimenten dar, die nur wenige oder sogar nur eine einzige Spezies untersuchen und so die hohe Komplexität von Feldexperimenten oder sogar der realen Welt reduzieren34,38. Das Hauptziel der Ecotron-Experimente besteht daher nicht darin, die volle Komplexität der Natur nachzuahmen, sondern vielmehr darin, vereinfachte, aber biologisch sinnvolle Ökosysteme zu schaffen. Dies ermöglicht es, viele, aber natürlich nicht alle biologischen Prozesse und Wechselwirkungen, die in der realen Welt ablaufen, besser zu verstehen34,37. Darüber hinaus ermöglichen die geschlossenen Systeme eines Ecotrons die Untersuchung von Flüssen und Prozessen, die im Feld oft nicht einfach untersucht werdenkönnen 35.
In früheren Studien wurden verschiedene Modifikationen der experimentellen Technik verwendet, was die signifikante Anpassungsfähigkeit der iDiv Ecotron-Anlage unterstreicht. So wurden bei dem 2018 durchgeführten Experiment44 "Insect Armageddon" die EcoUnits neu konfiguriert, indem die oberirdischen Innenwände entfernt und die unterirdische Dissektion mit Stahlzylindern durchgeführt wurde. Stattdessen wurden die unterirdischen Behälter vollständig mit einem Boden-Sand-Gemisch gefüllt, was die Etablierung von Grünlandgesellschaften mit 12 europäischen Pflanzenarten auf einer Bodenfläche von 1,5m2 pro EcoUnit ermöglichte. Dieses experimentelle Design ermöglichte die Einführung von zwei unterschiedlichen Abundanzstufen von oberirdischen Wirbellosen, die es den Forschern ermöglichten, die Auswirkungen des Rückgangs der Biomasse von Wirbellosen auf die Ökosystemfunktionen und -dienstleistungen in mitteleuropäischen Graslandökosystemen zu untersuchen. Ein weiteres anschauliches Beispiel ist das 2020 durchgeführte Experiment "EcoLux", bei dem eine Modifikation des Lichtregimes nachgewiesen wurde, um die Auswirkungen der nächtlichen Lichtverschmutzung auf die Pflanzendiversität und -leistung45 sowie deren Einfluss auf Bodengemeinschaften und -funktionen46 zu untersuchen. Mit Blick auf die Zukunft ist das Potenzial für weitere Änderungen nach wie vor erheblich. Das kommende "ResCUE"-Experiment, das für 2026 geplant ist, zielt darauf ab, die Zusammenhänge zwischen pflanzlicher Vielfalt und Ökosystemstabilität unter klimatischen Extremen zu untersuchen26. Dieses Experiment wird eine standardisierte Hitzedürre implementieren, eine Umweltbedingung, die in natürlichen Umgebungen schwer zu replizieren ist, indem reduzierte Niederschläge bei gleichzeitig erhöhten Temperaturen über einen Gradienten der Grünlandpflanzenvielfalt simuliert werden, der im iDiv Ecotron festgelegt wurde. Die Studie wird sich auf die Bewertung der Widerstandsfähigkeit und Erholung mehrerer Ökosystemfunktionen als Reaktion auf das kontrollierte klimatische Extremereigniskonzentrieren 26.
Die Nutzung von Ecotron-Anlagen zur Überbrückung von Feldexperimenten und kleinmaßstäblichen Mikrokosmos-Experimenten bringt jedoch auch Einschränkungen mit sich, wie z. B. meist eine noch relativ kleine räumliche Skala, eine geringe Anzahl von Replikaten, eine geringere biologische Komplexität und die mangelnde Darstellung der natürlichen klimatischen Variabilität37. Darüber hinaus kann die iDiv Ecotron-Anlage nicht alle Arten von Klimaszenarien, wie z. B. Winter, simulieren, was ihre Fähigkeit einschränkt, einzelne Pflanzen in einem realistischen Jahreszyklus über mehrere Generationen hinweg zu untersuchen. Daher ist es, wie bereits erwähnt, sehr wichtig, Ecotron-Studien als komplementäre Forschungsansätze zu betrachten, die letztlich in Kombination mit Ergebnissen aus anderen experimentellen Ansätzen betrachtet werden müssen37. Nichtsdestotrotz bietet uns die iDiv Ecotron-Anlage die einzigartige Möglichkeit, intakte Bodenmonolithen unter kontrollierten Umweltbedingungen zu untersuchen, Pflanzen mit unterschiedlicher pflanzengemeinschaftsspezifischer Geschichte orthogonal mit Böden mit unterschiedlicher pflanzengemeinschaftsspezifischer Geschichte zu kreuzen und ihre Auswirkungen auf die Ökosystemfunktion entlang eines Pflanzendiversitätsgradienten zu untersuchen, was unter Feldbedingungen nur schwer zu erreichen ist23, 35. Urheberrecht Darüber hinaus ermöglicht die Technik die Untersuchung von Pflanzen als Ganzes, sowohl über als auch unter der Erde, unter kontrollierten Umweltbedingungen, was im Feld nicht leicht zu erreichen ist. Schließlich wurden im JenaTron-Experiment die gepflanzten (und nicht gesäten) Pflanzengemeinschaften festgelegt, um eine gleichmäßige Gesamtpflanzendichte zu gewährleisten, wobei jede Art zu gleichen Anteilen vertreten war. Im Gegensatz dazu etablieren sich die Arten in gesäten Gemeinschaften oft unterschiedlich schnell, und einige Zielarten können sich möglicherweise nicht vollständig etablieren oder in sehr geringer Häufigkeit verbleiben.
Um die Reproduzierbarkeit des vorgestellten Protokolls zu gewährleisten, müssen mehrere kritische Schritte während der Ausführung sorgfältig berücksichtigt werden: (1) Aushub von Bodenmonolithen: Ein wesentlicher Vorteil der iDiv Ecotron-Anlage ist ihre Fähigkeit, eine beträchtliche Anzahl von Replikaten intakter Bodenmonolithen unter kontrollierten Umweltbedingungen zu etablieren. Um die Integrität der Bodenmonolithen zu gewährleisten, ist es unerlässlich, optimale Feldbedingungen für die Extraktion von Bodenmonolithen aufrechtzuerhalten. Insbesondere kann eine zu hohe Bodenfeuchtigkeit zu einer Verdichtung der Bodensäule führen, während zu trockene oder gefrorene Böden zur Bildung von Rissen führen können. In Fällen, in denen der Monolith aufgrund dieser Faktoren gefährdet ist, muss er verworfen werden, was eine Wiederholung des Aushubprozesses erforderlich macht. (2) Artenauswahl: Das beschriebene Protokoll verwendet sechs Grünlandpflanzenarten der FSME, die aufgrund von Überschneidungen mit dem Hauptversuch, einer ausgewogenen Repräsentation von Gräsern und Kräutern und der Möglichkeit, verschiedene Ressourcennutzungsstrategien (z. B. Pflanzenphänologie) zu untersuchen, ausgewählt wurden41. Für ein Biodiversitätsexperiment sind sechs Arten eine geringe Artenzahl, und die Selektion anderer Arten mit anderen Merkmalskombinationen könnte zu unterschiedlichen experimentellen Ergebnissen führen und muss sorgfältig abgewogen werden. (3) Pflanzendichte und gleiche Anteile aller Arten: Ein bemerkenswerter Vorteil des JenaTron-Experimentaufbaus besteht darin, dass Pflanzengemeinschaften mit gleichen Gesamtpflanzendichten gebildet werden und jede Art mit der gleichen Anzahl von Individuen vertreten ist. Die Sicherstellung einer konstanten Pflanzendichte und gleicher Pflanzanteile ist entscheidend für die experimentelle Reproduzierbarkeit, da sie Störeffekte verhindert, die mit einer unterschiedlichen Etablierung einzelner Arten verbunden sind. Daher ist eine präzise Kontrolle der Pflanzendichte unerlässlich, um das Versuchsdesign zu erhalten und zuverlässige Ergebnisse zu gewährleisten.
Nach dem Start des JenaTron-Experiments nach dem Protokoll mit besonderem Schwerpunkt auf der Berücksichtigung der genannten kritischsten Schritte zeigten sich schnell erkennbare Behandlungseffekte auf die Höhe, Farbe und Blütezeit der Pflanzengemeinschaft. Anschließende vergleichende Analysen der artspezifischen vegetativen Pflanzenhöhen zwischen JenaTron und FSME bestätigten eindeutig, dass die im iDiv-Ecotron etablierten Gemeinschaften tatsächlich den ursprünglichen Gemeinschaften im Feld ähneln. Um eine weitere Fallstudie für die Datenanalyse zu liefern, haben wir die Höhe der vegetativen Pflanze im JenaTron-Experiment genauer analysiert. Analysen der artspezifischen vegetativen Pflanzenhöhen im JenaTron bestätigten die erfolgreiche Etablierung aller Zielarten und zeigten signifikante Unterschiede zwischen den Arten und funktionellen Gruppen. Dieses Ergebnis ist zu erwarten, da im Jenaer Experiment47 bekannt ist, dass Gräser höher wachsen als andere funktionelle Gruppen. Ein signifikanter positiver Effekt der Bodengeschichte wurde über alle Arten hinweg festgestellt, was darauf hindeutet, dass frühere Bodenbedingungen das Pflanzenwachstum im Ecotron beeinflussen, möglicherweise angetrieben durch positive Rückkopplungseffekte von Böden, die zuvor eine Pflanzengemeinschaft beherbergten (unabhängig vom Diversitätsgrad) und negative Rückkopplungen von Böden, die vegetationsfrei gehalten wurden. Die biotischen und abiotischen Eigenschaften der Bodengeschichte scheinen sich zu unterscheiden, so dass Pflanzen in Böden mit pflanzengemeinschaftsspezifischer Geschichte einen Vorteil gegenüber Pflanzen in Böden ohne diese jeweilige Geschichte haben, da die Pflanzenhöhe eine wichtige Rolle für ihre Fähigkeit spielt, um Licht zu konkurrieren, und somit ein wichtiges Merkmal für den Kohlenstoffgewinnist 48. Im Gegensatz dazu wurde kein signifikanter Einfluss der pflanzengemeinschaftsspezifischen Pflanzengeschichte auf die mittlere vegetative Höhe gefunden, was darauf hindeutet, dass die Bodeneigenschaften unter den Umweltbedingungen des Ökotrons einen stärkeren Einfluss haben könnten als die Samenquellen. Diese Hypothese muss jedoch ganzheitlich überprüft werden, indem die Vielzahl der Ökosystemfunktionen untersucht wird, die im JenaTron-Experiment gemessen wurden.
Weder arten- noch gemeinschaftsspezifische Analysen lieferten Hinweise darauf, dass der Artenreichtum die mittlere vegetative Pflanzenhöhe beeinflusst, im Gegensatz zu früheren Ergebnissen aus dem Feldversuch, bei dem die Pflanzenhöhe mit höheren Arten49 wahrscheinlich aufgrund stärkerer Lichtkonkurrenz 47,50 zunahm. Eine größere Komplementarität zwischen Arten in vielfältigeren Gemeinschaften kann zu höheren Pflanzendichten führen51, was möglicherweise das Wachstum der Pflanzenhöhe zusätzlich erhöht52. Das Fehlen von Auswirkungen der Pflanzendiversität auf die Pflanzenhöhe im JenaTron-Experiment könnte daher auf das Fehlen einer biodiversitätsabhängigen Variation der Pflanzendichte zurückzuführen sein, was auf die potenzielle Bedeutung dieses Mechanismus für die diversitätsabhängige Leistung einzelner Pflanzen in der realen Welt hinweist52. Nichtsdestotrotz hatte der Artenreichtum einen signifikanten Einfluss auf die CV der Pflanzenhöhe, was darauf hindeutet, dass die Pflanzendiversität die strukturelle Komplexität der Vegetation erhöht, was mit Studien übereinstimmt, die die Diversität mit komplexeren oberirdischen Kronen in Verbindung bringen 49,50,52,53,54.
Zusammengenommen bestätigen die Ergebnisse die erfolgreiche Etablierung der Zieltherapien des JenaTron-Experiments und geben erste Einblicke in die Wirksamkeit unseres Ansatzes durch die schnelle Manifestation signifikanter Behandlungseffekte (Abbildung 3, Abbildung 4 und Abbildung 5). Darüber hinaus deutet eine vergleichende Analyse der artspezifischen vegetativen Pflanzenhöhe darauf hin, dass die neu etablierten Gemeinschaften im iDiv Ecotron tatsächlich den ursprünglichen Feldbeobachtungen ähneln. Die detaillierte Analyse der vegetativen Pflanzenhöhe dient als Fallstudie für die Datenanalyse und Visualisierung von Einzelantwortvariablen. Diese Fallstudie zeigt jedoch die Grenzen der Fokussierung auf eine einzelne Antwortvariable bei der ganzheitlichen Betrachtung der übergeordneten Hypothese auf, unabhängig davon, ob die zunehmende Beziehung zwischen Biodiversität und Ökosystemfunktionen im Laufe der Zeit auf die Bodengeschichte, die Pflanzengeschichte oder eine Kombination aus beidem zurückzuführen ist. Dies unterstreicht die Bedeutung unseres hochgradig kollaborativen Ansatzes zur Untersuchung der unabhängigen und interaktiven Auswirkungen von Pflanzen- und Bodengeschichte auf BEF-Beziehungen23. Elf Teilprojekte der Jenaer Experimentellen Forschergruppe (FOR 5000) arbeiteten im JenaTron-Experiment eng zusammen und maßen ein breites Spektrum an Antwortvariablen in verschiedenen Forschungsbereichen wie Mikrobiologie, chemische Ökologie, Phänologie, proximale Sensorik, Genetik, Epigenetik, Bodenökologie und Nahrungsnetzmodellierung. Diese integrative Anstrengung zielt darauf ab, (1) pflanzengeschichtliche Effekte von bodengeschichtlichen Effekten auf mehreren trophischen Ebenen und Ökosystemfunktionen zu trennen, (2) pflanzenartenspezifische und interaktionsspezifische Effekte auf allen Ebenen des Pflanzenartenreichtums zu untersuchen und (3) die zugrundeliegenden Mechanismen von BEF-Beziehungenzu erforschen 23 (Ergänzende Tabelle 249, 50,55,56,57,58 ,59,60,61,62,63,64,65,66,67,68,69,70,71,72,
73,74,75,76,77,78,79,80,81,82,83,84).
Offenlegungen
Die Autoren haben nichts offenzulegen.
Danksagungen
Ein ausserordentlicher Dank geht an L. Boockmann, T. Meier, N. Naderi und L.-M. Walter für ihre Unterstützung als wissenschaftliche Mitarbeiter während der gesamten Dauer des JenaTron-Experiments. Vielen Dank an alle Mitarbeiterinnen und Mitarbeiter der Umwelt-Geräte-Technik GmbH (UGT) für die professionelle und herzliche Zusammenarbeit während des Bodenmonolithenaushubs im Jenaer Experiment. Wir bedanken uns auch bei C. Lauterwasser, H.-C. Schulz und R. Widuwils für die Unterstützung der UGT beim Abbau von Bodenmonolithen. Vielen Dank an die technischen Mitarbeiter des Jenaer Experiments S. Eismann, F. Freter, G. Kratzsch, U. Köber, K. Kunze und H. Scheffler für ihre Unterstützung im Feld und ihre fleißige Hilfe während der Pflanzaktion am iDiv Ecotron. Wir danken I. Merbach und den technischen Mitarbeitern der Forschungsstation des Helmholtz-Zentrums für Umweltforschung (UFZ) in Bad Lauchstädt, insbesondere O. Bednorz und K. Kirsch, für ihre tatkräftige Unterstützung. Wir danken A.Q. Barth und R. Altmann für die hervorragende Zusammenarbeit im iDiv-Gewächshaus. Vielen Dank an S. Haenzel, A. Lochner und A. Zeuner für ihre unentbehrliche Hilfe bei der Administration, Organisation und Laborarbeit. Wir danken den Mercator Fellows J. Cavender-Bares, F. Isbell, L. Mommer und K. Müller sowie dem engen Mitarbeiter B. Schmid und den Principal Investigators U. Brose, H. Schielzeth, N. van Dam, W.W. Weisser, C. Wirth und J. Wolf für ihren wichtigen Beitrag zur Konzeption, Konzeption und Realisierung des JenaTron-Experiments. Abschließend danken wir der Deutschen Forschungsgemeinschaft (DFG) für die finanzielle Unterstützung (FOR 5000) sowie dem Deutschen Zentrum für integrative Biodiversitätsforschung (iDiv, gefördert von der Deutschen Forschungsgemeinschaft [DFG-FZT 118, 202548816]), der Universität Leipzig, der Friedrich-Schiller-Universität Jena und dem Max-Planck-Institut für Biogeochemie Jena für die finanzielle und logistische Unterstützung.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Blumenzwiebel-Pflanzgefäß ( 4 cm Durchmesser) | Kent & Baumarkt in Stowe | https://www.bauhaus.info/gartenhandgeraete/kent-stowe-hand-blumenzwiebelpflanzer/p/27516825?cid=SSAGoo 8995092923_90652787883& gad_ Quelle=1& gclid=CjwKCAiAqNSs BhAvEiwAn_tmxcMcdbxDo72K6g O6FX7hNePwWoc_8JIcgwA4qrY sbv-diJjHf_osDhoCXxEQAvD_BwE | |
| Anschluss Saugkerze | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Kulturschale ( ohne Drainage) | Bonsai-shopping | 59000/5-m.D._1 | https://www.bonsai-shopping.eu/Anzuchtschale-59000-5er.html |
| Demineralisiertes Wasser (VE) | Alfiltra | VEWA1000B | https://www.alfiltra.de/zubehoer/1000-liter-ve-wasser-im-ibc-behaelter |
| Klebeband | T-Rex | Baumarkt | https://www.bauhaus.info/panzertape/t-rex-gewebeband/p/25421491?cid=SSAGoo8843016955_1500 14388930& gad_source=1& gclid= CjwKCAiAqNSsBhAvEiwAn_tmxX 5KDl2CRPyAgi7nx2ILVTSy7dUfNY 2DvvCi0ZvtnU8opjA-stwmvRoCflwQAvD_BwE |
| iDiv Ecotron | iDiv | n.a.https://www.idiv.de/en/research/platforms-and-networks/idiv-ecotron.html | |
| Kunststoffboxen (20 L) | Auer Packaging | EG 43/22 HG | https://www.auer-packaging.com/de/de/Eurobeh%C3%A4lter-geschlossen/EG-4322-HG.html?customer_type=private&gad_source =1& gclid=Cj0KCQjw4Oe4BhCc ARIsADQ0csk38dwQfgiSU63e KE-xapuDT3f2f6EpzwKCJdjknbGP NbEwv4iOg0YaApUKEALw_wcB |
| Filterpapier (150 mm Durchmesser) | Labsolute | 7697996 | https://www.thgeyer.com/lab/shop/qualitativ-rundfilter-sorte-2005/labsolute-/7697990_de?variant=7697996 |
| Gabelstapler | hirsch | NEW-10084 | https://www.hirsch.expert/elektro-gabelstapler-2-tonnen_1794_13098/?gad_source=1&gclid=Cj0KCQjw4O e4BhCcARIsADQ0csmqfjWn 46WlTGVGnZDoDv4WkqUh WT0eYrsGnvIWcjemrOYCp 3c3QC4aAn3WEALw_wcB |
| Gibberellinsäure ( 90%) | Rotichrom | 7697996 | https://www.carlroth.com/de/de/weitere-vergleichssubstanzen/gibberellinsaeure/p/7464.2 |
| Messkrüge ( 3000 mL) | Hü | Baumarkt | https://www.hornbach.de/p/messkanne-3000-ml-huenersdorff/6481831/ |
| Messkrüge ( 5000 mL) | Hü | Baumarkt | Nersdorff https://www.hornbach.de/p/messkanne-5000-ml-huenersdorff/6481832/ |
| Metallsiebe (4 mm Maschenweite) | Blau-Metall | 711082 | https://analysensiebe.de/shop/produkt/analysensieb-400-maschenweite-2000/ |
| Minibagger | Zeppelin Cat | ZCS196577 | https://www.zeppelin-cat.de/shop/produkte/minibagger-kaufen/cat-301-8-minibagger-inkl-loeffel-und-schnellwechsler/?srsltid=AfmBOoqOG9_VONO0EmP K0GAYEr1onMxM-v3YyM 14hZFK0i9YHXJ_0ddggcs |
| Mörtelwannen ( 90 L) | Gripline | Baumarkt | https://www.hornbach.de/p/moertelkuebel-pe-eckig-78-5-x-46-3-x-31-0-cm-90-l/274293/ |
| Multipot-Platten (QuickPotPlates - QP 96T) | Herkuplast | 741238 | https://www.meyer-shop.com/product/view/37052?variantProductId=29253 |
| Petrischalen (150 mm Durchmesser) | Labsolute | 7696412 | https://www.thgeyer.com/lab/shop/petrischalen-ps-mit-nocken--aseptis/labsolute-/7696390_de?variant=7696412 |
| Pflanzschablone (Sonderanfertigung) | UFZ | n.a. | Pflanzschablone, hergestellt von der Werkstatt des Helmholtz-Zentrums für Umweltforschung (UFZ), Leipzig, Deutschland, speziell für die Bepflanzung der iDiv Ecotron Metallzylinder. |
| Kunststofffolie | Cargo Point | Baumarkt | https://www.hornbach.de/p/cargo-point-stretchfolie-0-50-x-300-m-20/7152950/ |
| Kunststoffschaufeln | Hü | Baumarkt | https://www.hornbach.de/p/abfuellschaufel-huenersdorff-1390-ml/6481824/ |
| Drucksprüher (1500 mL) | Bü rkle | 9223162 | https://shop.thgeyer-lab.com/erp/catalog/search/search.action?model.query=9223162 |
| Quarzpulver | Quarzsande | n.a.https://quarzsand-shop.de/p/quarzmehl-25-kg-papier-sack-feinpulverig?srsltid=AfmBOoptmSFCMO-9KTIKo< | br/> StSkd6aV2OobmBa2__ UUcpYHXJisHGdq0JG |
| Quarzsand HQS (0,3 - 0,8 mm Größe) | Quanzsande | WMQ-10040 | https://quarzsand-shop.de/p/quarzsand-hqs?variant=1185 |
| Dichtstopfen | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Saatgut | Rieger-Hofmann GmbH | n.a.https://www.rieger-hofmann.de/startseite-rieger-hofmann.html | |
| Bodenfeuchtemesskoffer (ML3 ThetaKit) | Delta-T Geräte | ML3 ThetaKit | https://delta-t.co.uk/product/ml3/ |
| Extraktion von Bodenmonolithen Gerät | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Bodensensoren ( SMT-100) | Truebner GmbH | SMT-100 | https://www.truebner.de/en/smt100.php#scroll-target |
| Federstahl-Pinzette (105 mm) | Roth | AL99.1 | https://www.carlroth.com/de/de/spezialpinzetten-wafer-hakenpinzetten/federstahlpinzette/p/al99.1 |
| Klinge aus rostfreiem Stahl (Sonderanfertigung) | UFZ | n.a.Klinge | aus rostfreiem Stahl, hergestellt von der Werkstatt des Helmholtz-Zentrums für Umweltforschung (UFZ), Bad Lauchstä dt, Deutschland, speziell für den Einsatz von Bodensensoren in die iDiv Ecotron Metallzylinder. |
| Edelstahlzylinder | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Stick Etiketten (12 cm x 2 cm) | Meyer | 160140 | https://www.meyer-shop.com/product/view/36273?variantProductId=31841 |
| Pendelleuchte | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Provisorische Ober-/Unterplatte | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Zahnstocher | Bü roshop24 | 269946 | https://www.bueroshop24.de/500-papstar-party-picker-drop-kunststoff-269946?srpId=c8e0fcec04cb5e7e68a9bfe94 096a8aa& storeType=B2C& lkz= 1131602& obt=20& kwdid=54 40413105-16705681638-135 559674952-pla-32800987645 8& gad_source=1& gclid=CjwK CAiAqNSsBhAvEiwAn_tmxfR EZBIPohPHqFs2n6v_elmZTx L6QgkYdjBjMgZ2eYONmM05 Iwo-CRoCfWsQAvD_BwE |
| Trowel | Kaufmann | Eisenwarengeschäft | https://www.hornbach.de/p/berner-edelstahl-putzkelle-kaufmann-mit-softgriff/7940328/?marketNo=566&wt_mc=de.paid.sea. google.alwayson_assortment.bod. pla.868482949.79838688391.& wt _cc1=868482949& wt_cc2=798386 88391& wt_cc3=377419910580& wt _cc4=& wt_cc6=7940328& wt_cc7= 566& gad_source=1& gclid=Cj0KCQ jw4Oe4BhCcARIsADQ0cslOTaWzp RLoaIVADaAOi5ZcHJEtFbKXvXJU ocTnzbhZTWgEUTlXr0waAp1q EALw_wcB |
| LKW | Europcar | n.a.https://www.europcar.de/de-de/reservation/vehicles?utm_source=google&utm_medium | = cpc& utm_campaign& utm_term& gad_source=1& gclid=Cj0KCQjw4 Oe4BhCcARIsADQ0csn2Ph3mak wxbwrSHzKvJNJq9jaD-aiUvo8-4l RdCaUy8Gw_hgNW6KsaAiR2 EALw_wcB& gclsrc=aw.ds& Fahrzeug Typ=TR& pickupLocation=ZJSC04 & dropoffLocation=ZJSC04& AbholungYe ar=2024& pickupMonth=12& Abhol Tag=11& DropoffJahr=2024& dropoff Monat=12& DropoffDay=18& Abholung Stunde=10& pickupMinute=00& Dropoff Stunde=18& DropoffMinute=00& Fahrer Alter=26& countryOfResidence=DE |
| Pinzette | Bochem Instrumente | 9171013 | https://www.thgeyer.com/lab/shop/pinzette-105-mm-18/10-stahl/bochem-instrumente-1000/9171010_de?variant=9171013 |
| Wassersaugsonden | Umwelt Gerä te Technik (UGT) | 1211000 | https://ugt-online.de/en/solutions/ugt-suction-probe-with-ceramic-cup/ |
| Holz für das Sensorprotokoll | Konsta | Baumarkt | https://www.hornbach.de/p/konsta-konstruktionsvollholz-40x60x3000-mm-fichte-nsi-nicht-sichtbarer-einbau/8465807/ |
Referenzen
- Cardinale, B. J., et al. Biodiversity loss and its impact on humanity. Nature. 486 (7401), 59-67 (2012).
- Eisenhauer, N., et al. Chapter One - A multitrophic perspective on biodiversity-ecosystem functioning research. Adv Ecol Res. 61, 1-54 (2019).
- Reich, P. B., et al. Impacts of biodiversity loss escalate through time as redundancy fades. Science. 336 (6081), 589-592 (2012).
- Meyer, S. T., et al. Effects of biodiversity strengthen over time as ecosystem functioning declines at low and increases at high biodiversity. Ecosphere. 7 (12), e01619(2016).
- Guerrero-Ramírez, N. R., et al. Diversity-dependent temporal divergence of ecosystem functioning in experimental ecosystems. Nat Ecol Evol. 1 (11), 1639-1642 (2017).
- Huang, Y., et al. Impacts of species richness on productivity in a large-scale subtropical forest experiment. Science. 362 (6410), 80-83 (2018).
- Bongers, F. J., et al. Functional diversity effects on productivity increase with age in a forest biodiversity experiment. Nat Ecol Evol. 5 (12), 1594-1603 (2021).
- Wagg, C., et al. Biodiversity-stability relationships strengthen over time in a long-term grassland experiment. Nat Commun. 13 (1), 7752(2022).
- Lange, M., Eisenhauer, N., Chen, H., Gleixner, G. Increased soil carbon storage through plant diversity strengthens with time and extends into the subsoil. Glob Change Biol. 29 (9), 2627-2639 (2023).
- Eisenhauer, N., Reich, P. B., Scheu, S. Increasing plant diversity effects on productivity with time due to delayed soil biota effects on plants. Basic Appl Ecol. 13 (7), 571-578 (2012).
- Fornara, D. A., Tilman, D. Plant functional composition influences rates of soil carbon and nitrogen accumulation. J Ecol. 96 (2), 314-322 (2008).
- Leimer, S., et al. Mechanisms behind plant diversity effects on inorganic and organic N leaching from temperate grassland. Biogeochemistry. 131 (3), 339-353 (2016).
- Dietrich, P., Eisenhauer, N., Roscher, C. Linking plant diversity-productivity relationships to plant functional traits of dominant species and changes in soil properties in 15-year-old experimental grasslands. Ecol Evol. 13 (3), e9883(2023).
- Roscher, C., et al. A functional trait-based approach to understand community assembly and diversity-productivity relationships over 7 years in experimental grasslands. Perspect Pl Ecol Evol Syst. 15 (3), 139-149 (2013).
- Zuppinger-Dingley, D., Schmid, B., Petermann, J. S., Yadav, V., De Deyn, G. B., Flynn, D. F. B. Selection for niche differentiation in plant communities increases biodiversity effects. Nature. 515 (7525), 108-111 (2014).
- Latz, E., et al. Plant diversity improves protection against soil-borne pathogens by fostering antagonistic bacterial communities. J Ecol. 100 (3), 597-604 (2012).
- Barnes, A. D., et al. Biodiversity enhances the multitrophic control of arthropod herbivory. Sci. Adv. 6 (45), eabb6603(2020).
- Huang, Y., et al. Effects of enemy exclusion on biodiversity-productivity relationships in a subtropical forest experiment. J Ecol. 110 (9), 2167-2178 (2022).
- Wan, N. -F., et al. Species richness promotes plant productivity by suppressing plant antagonists. Research Square. , (2023).
- Schnitzer, S. A., et al. Soil microbes drive the classic plant diversity-productivity pattern. Ecology. 92 (2), 296-303 (2011).
- Kulmatiski, A., Beard, K. H., Heavilin, J. Plant-soil feedbacks provide an additional explanation for diversity-productivity relationships. Proc Biol Sci. 279 (1740), 3020-3026 (2012).
- Mommer, L., et al. Lost in diversity: the interactions between soil-borne fungi, biodiversity and plant productivity. New Phytol. 218 (2), 542-553 (2018).
- Eisenhauer, N., et al. Biotic interactions, community assembly, and eco-evolutionary dynamics as drivers of long-term biodiversity-ecosystem functioning relationships. Res Ideas Outcomes. 5, e47042(2019).
- Thakur, M. P., et al. Plant-soil feedbacks and temporal dynamics of plant diversity-productivity relationships. Trends Ecol Evol. 36 (7), 651-661 (2021).
- Eisenhauer, N. Aboveground-below-ground interactions as a source of complementarity effects in biodiversity experiments. Plant Soil. 351 (1), 1-22 (2012).
- Eisenhauer, N., et al. The multiple-mechanisms hypothesis of biodiversity-stability relationships. Basic Appl Ecol. 79, 153-166 (2024).
- Bever, J. D. Soil community feedback and the coexistence of competitors: conceptual frameworks and empirical tests. New Phytol. 157 (3), 465-473 (2003).
- Schmid, M. W., Hahl, T., van Moorsel, S. J., Wagg, C., De Deyn, G. B., Schmid, B. Feedbacks of plant identity and diversity on the diversity and community composition of rhizosphere microbiomes from a long-term biodiversity experiment. Mol Ecol. 28 (4), 863-878 (2019).
- Vogel, A., et al. A new experimental approach to test why biodiversity effects strengthen as ecosystems age. Adv Ecol Res. 61, 221-264 (2019).
- Dietrich, P., Eisenhauer, N., Otto, P., Roscher, C. Plant history and soil history jointly influence the selection environment for plant species in a long-term grassland biodiversity experiment. Ecol Evol. 11 (12), 8156-8169 (2021).
- van Moorsel, S. J., et al. Co-occurrence history increases ecosystem stability and resilience in experimental plant communities. Ecology. 102 (1), e03205(2021).
- Roscher, C., et al. The role of biodiversity for element cycling and trophic interactions: an experimental approach in a grassland community. Basic Appl Ecol. 5 (2), 107-121 (2004).
- Weisser, W. W., et al. Biodiversity effects on ecosystem functioning in a 15-year grassland experiment: Patterns, mechanisms, and open questions. Basic Appl Ecol. 23, 1-73 (2017).
- Lawton, J. H., et al. The Ecotron: a controlled environmental facility for the investigation of population and ecosystem processes. Philos Trans R Soc Lond B Biol Sci. 341 (1296), 181-194 (1993).
- Milcu, A., et al. Functional diversity of leaf nitrogen concentrations drives grassland carbon fluxes. Ecol Lett. 17 (4), 435-444 (2014).
- Rineau, F., et al. Towards more predictive and interdisciplinary climate change ecosystem experiments. Nat Clim Chang. 9 (11), 809-816 (2019).
- Roy, J., et al. Ecotrons: Powerful and versatile ecosystem analysers for ecology, agronomy and environmental science. Glob Change Biol. 27 (7), 1387-1407 (2021).
- Schmidt, A., et al. The iDiv Ecotron-A flexible research platform for multitrophic biodiversity research. Ecol Evol. 11 (21), 15174-15190 (2021).
- Eisenhauer, N., Türke, M. From climate chambers to biodiversity chambers. Front Ecol Environ. 16 (3), 136-137 (2018).
- Eisenhauer, N., et al. Ecosystem consequences of invertebrate decline. Curr Biol. 33 (20), 4538-4547.e5 (2023).
- Ebeling, A., et al. A trait-based experimental approach to understand the mechanisms underlying biodiversity-ecosystem functioning relationships. Basic Appl Ecol. 15 (3), 229-240 (2014).
- R: A Language and Environment for Statistical Computing. , R Core Team. Available from: https://www.R-project.org/ (2023).
- Theory and Computational Methods for Nonlinear Mixed-Effects Models. Mixed-Effects Models in S and S-PLUS. Statistics and Computing. , Springer. New York, NY. (2000).
- Ulrich, J., et al. Invertebrate decline leads to shifts in plant species abundance and phenology. Front Plant Sci. 11, 542125(2020).
- Bucher, S. F., et al. Artificial light at night decreases plant diversity and performance in experimental grassland communities. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220358(2023).
- Cesarz, S., Eisenhauer, N., Bucher, S. F., Ciobanu, M., Hines, J. Artificial light at night (ALAN) causes shifts in soil communities and functions. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220366(2023).
- Schmidtke, A., Rottstock, T., Gaedke, U., Fischer, M. Plant community diversity and composition affect individual plant performance. Oecologia. 164 (3), 665-677 (2010).
- Westoby, M., Falster, D. S., Moles, A. T., Vesk, P. A., Wright, I. J. Plant ecological strategies: Some leading dimensions of variation between species. Annu Rev Ecol Syst. 33 (1), 125-159 (2002).
- Guimarães-Steinicke, C., et al. Biodiversity facets affect community surface temperature via 3D canopy structure in grassland communities. J Ecol. 109 (5), 1969-1985 (2021).
- Roscher, C., et al. Interspecific trait differences rather than intraspecific trait variation increase the extent and filling of community trait space with increasing plant diversity in experimental grasslands. Perspect Pl Ecol Evol Syst. 33, 42-50 (2018).
- Marquard, E., Weigelt, A., Roscher, C., Gubsch, M., Lipowsky, A., Schmid, B. Positive biodiversity-productivity relationship due to increased plant density. J Ecol. 97 (4), 696-704 (2009).
- Lorentzen, S., Roscher, C., Schumacher, J., Schulze, E. -D., Schmid, B. Species richness and identity affect the use of aboveground space in experimental grasslands. Perspect Pl Ecol Evol Syst. 10 (2), 73-87 (2008).
- Williams, L. J., Paquette, A., Cavender-Bares, J., Messier, C., Reich, P. B. Spatial complementarity in tree crowns explains overyielding in species mixtures. Nat Ecol Evol. 1 (4), 1-7 (2017).
- Roscher, C., et al. Using plant functional traits to explain diversity-productivity relationships. PLoS One. 7 (5), e36760(2012).
- Abbas, M., et al. Biodiversity effects on plant stoichiometry. PLoS One. 8 (3), e58179(2013).
- Pérez-Harguindeguy, N., et al. New handbook for standardised measurement of plant functional traits worldwide. Aust J Bot. 61 (3), 167-234 (2013).
- Bassi, L., et al. Uncovering the secrets of monoculture yield decline: trade-offs between leaf and root chemical and physical defence traits in a grassland experiment. Oikos. 2023, e10061(2023).
- Medina-van Berkum, P., et al. Plant geographic distribution influences chemical defences in native and introduced Plantago lanceolata populations. Funct Ecol. 38 (4), 883-896 (2024).
- Motohka, T., Nasahara, K. N., Oguma, H., Tsuchida, S. Applicability of green-red vegetation index for remote sensing of vegetation phenology. Remote Sens. 2 (10), 2369-2387 (2010).
- Yin, G., Verger, A., Descals, A., Filella, I., Peñuelas, J. A Broadband green-red vegetation index for monitoring gross primary production phenology. J Remote Sens. 2022, 9764982(2022).
- Chen, B., Jin, Y., Brown, P. An enhanced bloom index for quantifying floral phenology using multi-scale remote sensing observations. ISPRS J Photogramm Remote Sens. 156, 108-120 (2019).
- Dean, J. M., Mescher, M. C., De Moraes, C. M. Plant dependence on rhizobia for nitrogen influences induced plant defenses and herbivore performance. Int J Mol Sci. 15 (1), 1466-1480 (2014).
- McCormick, A. C., Reinecke, A., Gershenzon, J., Unsicker, S. B. Feeding experience affects the behavioral response of polyphagous gypsy moth caterpillars to herbivore-induced poplar volatiles. J Chem Ecol. 42 (5), 382-393 (2016).
- Waldbauer, G. P. The consumption and utilization of food by insects. Adv In Insect Phys. 5, 229-288 (1968).
- Bachmann, D., Roscher, C., Buchmann, N. How do leaf trait values change spatially and temporally with light availability in a grassland diversity experiment. Oikos. 127 (7), 935-948 (2018).
- van Gurp, T. P., Wagemaker, N. C. A. M., Wouters, B., Vergeer, P., Ouborg, J. N. J., Verhoeven, K. J. F. epiGBS: reference-free reduced representation bisulfite sequencing. Nat Methods. 13 (4), 322-324 (2016).
- Eichenberg, D., Ristok, C., Kröber, W., Bruelheide, H. Plant polyphenols - implications of different sampling, storage and sample processing in biodiversity-ecosystem functioning experiments. J Chem Ecol. 30 (7), 676-692 (2014).
- Scheu, S. Automated measurement of the respiratory response of soil microcompartments: Active microbial biomass in earthworm faeces. Soil Biol Biochem. 24 (11), 1113-1118 (1992).
- Freschet, G. T., et al. A starting guide to root ecology: strengthening ecological concepts and standardising root classification, sampling, processing and trait measurements. New Phytol. 232 (3), 973-1122 (2021).
- Fiore-Donno, A. M., Richter-Heitmann, T., Bonkowski, M. Contrasting responses of Protistan plant parasites and phagotrophs to ecosystems, land management and soil properties. Front Microbiol. 11, 1823(2020).
- Fiore-Donno, A. M., Bonkowski, M. Different community compositions between obligate and facultative oomycete plant parasites in a landscape-scale metabarcoding survey. Biol Fertil Soils. 57 (2), 245-256 (2021).
- Albracht, C., et al. Common soil history is more important than plant history for arbuscular mycorrhizal community assembly in an experimental grassland diversity gradient. Biol Fertil Soils. 60 (4), 547-562 (2024).
- Breitkreuz, C., Herzig, L., Buscot, F., Reitz, T., Tarkka, M. Interactions between soil properties, agricultural management and cultivar type drive structural and functional adaptations of the wheat rhizosphere microbiome to drought. Environ Microbiol. 23 (10), 5866-5882 (2021).
- Barnes, A. D., et al. Energy flux: The link between multitrophic biodiversity and ecosystem functioning. Trends Ecol Evol. 33 (3), 186-197 (2018).
- Gauzens, B., et al. fluxweb: An R package to easily estimate energy fluxes in food webs. Methods Ecol Evol. 10 (2), 270-279 (2019).
- Anderson, J. P. E., Domsch, K. H. A physiological method for the quantitative measurement of microbial biomass in soils. Soil Biol Biochem. 10 (3), 215-221 (1978).
- Pausch, J., et al. Small but active - pool size does not matter for carbon incorporation in below-ground food webs. Funct Ecol. 30 (3), 479-489 (2016).
- Macfadyen, A. Improved funnel-type extractors for soil arthropods. J Anim Ecol. 30 (1), 171(1961).
- Kempson, D., Lloyd, M., Ghelardi, R. A new extractor for woodland litter. Pedobiologia. 3, 1-21 (1963).
- Cesarz, S., Eva Schulz, R., Beugnon, A., Eisenhauer, N. Testing soil nematode extraction efficiency using different variations of the Baermann-funnel method. Soil Org. 91 (2), 61-72 (2019).
- Ohno, T., Sleighter, R. L., Hatcher, P. G. Comparative study of organic matter chemical characterization using negative and positive mode electrospray ionization ultrahigh-resolution mass spectrometry. Anal Bioanal Chem. 408 (10), 2497-2504 (2016).
- Swenson, T. L., Jenkins, S., Bowen, B. P., Northen, T. R. Untargeted soil metabolomics methods for analysis of extractable organic matter. Soil Biol Biochem. 80, 189-198 (2015).
- Steinbeiss, S., Temperton, V. M., Gleixner, G. Mechanisms of short-term soil carbon storage in experimental grasslands. Soil Biol Biochem. 40 (10), 2634-2642 (2008).
- Roth, V. N., et al. Persistence of dissolved organic matter explained by molecular changes during its passage through soil. Nat Geosci. 12, 755-761 (2019).
Nachdrucke und Genehmigungen
