La contaminación de las preparaciones de los ribosomas eucarióticos purificado por los métodos tradicionales de purificación de nucleasas y proteasas co-incide negativamente en posteriores análisis bioquímicos y estructurales. Un método de cromatografía de purificación rápida y sencilla se utiliza para resolver este problema con los ribosomas levadura como un sistema modelo.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de método
Purificación por cromatografía de ribosomas de levadura de gran actividad
En este artículo
Resumen
Resumen
Ribosomas eucariotas son mucho más lábiles en comparación con sus contrapartes eubacterial y archael, lo que plantea un importante reto para los investigadores. Particularmente preocupante es el hecho de que la lisis de las células libera una gran cantidad de proteasas y nucleasas que pueden degradar los ribosomas. Por lo tanto, es importante separar los ribosomas de estas enzimas lo más rápido posible. Desafortunadamente, los métodos convencionales de ultracentrifugación diferencial ribosomas hojas expuestas a estas enzimas por períodos excesivamente largos de tiempo, afectando su integridad estructural y funcionalidad. Para solucionar este problema, utilizamos un método de cromatografía de cisteína con un cargo Sulfolink resina. Esta aplicación sencilla y rápida reduce significativamente co-purificación de las actividades proteolíticas y nucleolytic, produciendo altos rendimientos de los ribosomas intactos, levadura muy bioquímicamente activas. Sugerimos que este método debería ser aplicable también a los ribosomas de mamíferos. La simplicidad deel método, y la pureza mejorada y la actividad de los ribosomas cromatográficas representa un avance técnico importante para el estudio de los ribosomas eucarióticos.
Protocolo
1. Preparación de una cisteína acusado Sulfolink resina
- Prepare Sulfolink resina (Pierce) a temperatura ambiente.
- Lugar a un total de 10 ml de una mezcla del 50% de gel de acoplamiento Sulfolink suministrada por el fabricante en dos viales de 10 ml de plástico, con 5 ml distribuidos en cada vial.
- En pocas palabras centrífuga viales a 850 xg y retirar con cuidado los sobrenadantes.
- Lavar el gel tres veces en tampón de acoplamiento (50 mM Tris, pH 8,5, 5 mM EDTA) por resuspensión de las cuentas de 5 ml, centrifugar brevemente a 850 xg y eliminar el sobrenadante con una pipeta.
- Agregue cinco ml de una solución 50 mM de L-cisteína en tampón de acoplamiento a cada tubo y mezclar la pasta durante 1 hora a 25 ° C.
- Eliminar el residuo de L-cisteína por lavado como se describe en el paso 1.4.
- Resuspender el gel en 10 ml de tampón de unión [20 mM HEPES, pH 7,6, 5 mM Mg (OAc) 2, 60 mM NH 4 Cl, 2 mM TDT], y equilibrar la resina por el lavado en 10 ml de tampón de unión3 veces como se describe en el paso 1.4. Resina se decanta en un 10 ml de centrífuga columna, la tapa y se almacena a 4 º C. La capacidad de la resina de unión al ARN es de ~ 20 A 260 unidades por mililitro.
2. Purificación por cromatografía de ribosomas con una cisteína acusado Sulfolink resina
Nota: Si se trabaja con una tensión donde la actividad de la proteasa ha demostrado ser un problema, los cócteles de la proteasa inhibición puede ser utilizado en todos los topes posteriores.
- Mantener todos los componentes en el hielo y preparar todas las soluciones con RNasa libre de agua y filtración estéril.
- Se cultivan las células de levadura durante la noche a mitad de la fase de registro (OD 595 = 0,6 - 1,2) en los medios de comunicación adecuados. Pellet las células por centrifugación y se lavan las células de un gramo en tampón de unión y centrifugar a 3700 xg durante 5 minutos a 4 ° C.
- Resuspender las células en 1 ml de tampón de unión para un volumen total aproximado de 2 ml, e interrumpir el uso de un volumen igual de 0,5 mm perlas de vidrio se enfría a 4 ° C ucantar una Biospec Mini-batidor de bolas (Bartlesville, OK). Las muestras se pueden dividir en varios tubos según sea necesario.
- Eliminar las células intactas, orgánulos, y los restos celulares por centrifugación a 30.000 xg durante 30 minutos en una ultracentrífuga Beckman-Coulter Optima Max E (Fullerton, CA).
- Inmediatamente antes del uso de perdigones de la resina durante un minuto a 1.000 xg para extraer la solución de almacenamiento. Dos ml de resina se utiliza para cada gramo de las células.
- Quitar sobrenadantes de células lisado de la vuelta 30 000 xg (S30), teniendo cuidado para minimizar la contaminación ya sea de la fracción lipídica en la parte superior o los restos celulares en la parte inferior de los tubos, y el lugar directamente en la suspensión Sulfolink cargos. La capa de lípidos se puede evitar, ya sea por retiro o por empujar fuera de la pipeta después de que la punta se cruzó en el sobrenadante.
- Incubar la mezcla S30/Sulfolink en el hielo sin mezclar durante 15 minutos.
- Coloque las columnas en 15 ml tubos cónicos y se centrifuga a 1.000 g duranter un minuto.
- Coloque las fracciones de caudal contínuo de nuevo en las columnas, mezclar con la mano, y se incuba durante 15 minutos en hielo.
- Coloque las columnas en 15 ml tubos cónicos y se centrifuga a 1.000 g durante un minuto. Deseche el caudal contínuo.
- Columnas de la tapa y añadir 5 ml de tampón de unión. Mezcla de columnas con la mano hasta resuspendido, quite las tapas, y centrifugar la centrífuga columnas en 1000 xg durante un minuto. Repita este protocolo de lavado dos veces más.
- Añadir 1,5 ml de tampón de elución (20 mM HEPES-KOH, pH 7,6, 10 mM Mg (OAc) 2, 500 mM KCl, 2 mM DTT, 0,5 mg / ml de heparina) para cada columna. Mezcla de lodos de la mano, e incubar en hielo durante 2 minutos
- Columnas en lugar de nuevos tubos de 15 ml y centrifugar a 1000 xg durante 1 minuto. Recoger eluido. Repita el paso de elución una vez más, de modo que el volumen final, además de la muestra se ~ 3 ml. Resina utilizada se pueden lavar con tampón de elución y sin heparina seguida de equilibrio con buffe vinculanter, y se almacenan en volúmenes de 10 ml de tampón de unión a 4 ° C para su reutilización posterior.
3. Puromicina tratamiento
Nota: Un método alternativo para eliminar la contaminación de especies tRNA es pasar de un nivel de glucosa rico en medios de glucosa reducido para promover la escorrentía ribosoma. Sin embargo, esto no cambia el estado metabólico de las células de levadura, lo que podría afectar la función del ribosoma y la concentración.
Con el fin de despojar a los ribosomas de la endógeno peptidil-tRNA, un tratamiento con puromicina se lleva a cabo.
- Neutralizar a un pH de 7,5 una solución de 100 mM puromicina mediante la adición de KOH 1M gota a gota, a temperatura ambiente.
- Añadir solución neutralizada puromicina a ~ concentración final de 1mM eluido.
- Añadir 100 mM GTP hasta una concentración final de 1 mM.
- Incubar durante 30 minutos a 30 ° C.
4. Purificación de los ribosomas por sedimentación a través de los cojines de glicerol
- Coloque un mlde tampón amortiguador (20 mM HEPES, pH 7,6, 10 mM Mg (OAc) 2, 500 mM KCl, 2 mM de DTT, 25% de glicerol) en un tubo de 4 ml de volumen ultracentrífuga policarbonato.
- Suavemente la capa de puromicina tratados fracciones de elución en la parte superior de la almohadilla, y las muestras de centrifugar a 100.000 xg durante la noche a 4 ° C.
- Retire los tubos de los rotores de centrifugación, y aspirar sobrenadante.
- Lávese las pastillas que contienen ribosomas purificados dos veces con 1 ml de tampón de amortiguación.
- Resuspender los ribosomas en 100 l de tampón amortiguador por la interrupción suave usando una varilla de vidrio.
- Después de la interrupción, cubrir los tubos con parafilm y agitar a una velocidad moderada en un vórtice cuarto frío durante una hora.
- Transferir el contenido de un tubo de microcentrífuga, centrifugar durante 5 minutos a velocidad máxima a 4 ° C, y eliminar los sobrenadantes a tubos nuevos.
- Repita los pasos 4,1 a 4,7 con 2 ml de tampón de amortiguación y, salvo que l 100 de buffer de almacenamiento (50 mM HEPES-KOH pH 7,6, 50 mM NH 4 Cl, 5 mM Mg(OAc) 2, 1 mM DTT, 25% de glicerol) se utiliza en los pasos 4.4 y 4.5 en lugar de buffer amortiguador.
- Cuantificar los ribosomas purificados por espectrofotometría (1 A 260 = 20 pmoles de los ribosomas de levadura), y almacenar a -80 ° C. Los resultados típicos de 1 gramo de levadura son 300-400 pmoles de los ribosomas.
5. Los resultados representativos:
Un ejemplo de las especies de ARN extraído de cada uno de los tres pasos principales del protocolo se muestra en la Figura 2. Mientras rRNAs son las principales especies presentes en lisados celulares totales (T), estos también contienen un gran número de otras especies de ARN. Ribosomas purificados de la columna Sulfolink (SL) también contienen una gran cantidad de tRNAs debido a la alta afinidad del lecho de la columna para estas especies también. El tratamiento de esta fracción con los resultados de puromicina en la hidrólisis de los péptidos de la peptidil-ARNt, y promueve la disociación de estas especies de los ribosomas. La puromicina muestras tratadas (Pm) la falta de co-purifying especies de tRNA, y por lo tanto representan los ribosomas completamente puro. Como se informó anteriormente 8, estos ribosomas son altamente intactos y activos bioquímicamente, lo que los soportes ideales para detallado análisis funcional y estructural.
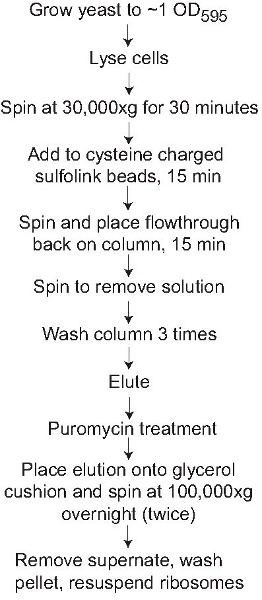
Figura 1. Diagrama de flujo del método. Purificación cromatográfica de los ribosomas con la cisteína vinculada sulfolink resina se representa.
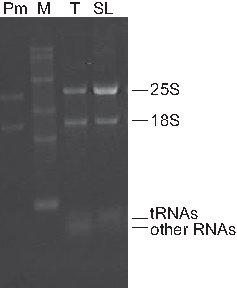
Figura 2. Análisis representativo de los preparativos del ribosoma. Especies de ARN total se extrajeron a partir de lisados celulares totales (T), Sulfolink ribosomas purificados (SL) y ribosomas Sulfolink purificado posteriormente fueron tratadas con puromicina y sedimentado a través de un colchón de glicerol (Pm). Carril M representa el tamaño de marcadores de ARN. Las bandas que representan rRNAs 25S y 18S, así como los ARNt y otras especies de ARN se indican. Todoslos carriles fueron cargados con 2 g de ARN.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
Protocolos de purificación de ribosomas en esencia, de las células de lisis, cosecha una fracción citosólica de un giro a baja velocidad, y luego granulación ribosomas por centrifugación de alta velocidad 1. Mientras que un nuevos métodos se han utilizado algunos para la purificación de los ribosomas bacterianos, la misma no había sido cierto para los eucariotas 2-4. A pesar de las medidas adicionales han sido añadidos a lo largo de los años, por ejemplo, se lava la sal, y los cojines de glicerol (...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
No hay conflictos de interés declarado.
Agradecimientos
Queremos agradecer a todos los miembros del laboratorio Dinman, incluyendo Ashton Belew, Jack Karen, Musalga Sharmishtha, Sulima Sergey, Reddy Shivani, y Michael Rhodin por su ayuda y aportación en este proyecto. Este trabajo fue apoyado por becas de AM de la American Heart Association (AHA 0630163N) y JDD de los Institutos Nacionales de Salud (5R01 GM058859-12). JAL fue apoyado por una de Reinversión y Recuperación Americana de 2009, suplemento al título principal (3R01GM058859-11S1).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Nombre del reactivo | Empresa | Número de catálogo | |
| Sulfolink acoplamiento de resina | Atravesar | 20402 | |
| Mini-batidor de cuentas 16 | Biospec | 607 | |
| Optima Max E ultracentrífuga | Beckman Coulter | ||
| Leyenda RT | Sorvall | ||
| 0.5 Cuentas de vidrio mm | Biospec | 11079105 | |
| Tris | Sigma-Aldrich | 252859 | |
| EDTA | Sigma-Aldrich | E9884 | |
| TDT | Sigma-Aldrich | 43815 | |
| HEPES | Sigma-Aldrich | 54459 | |
| NH 4 Cl | Sigma-Aldrich | A9434 | |
| KCl | Sigma-Aldrich | 60128 | |
| Mg (OAc) 2 | Sigma-Aldrich | M5661 | |
| KOH | Sigma-Aldrich | 221473 | |
| Glicerol | Sigma-Aldrich | G5516 | |
| Puromicina | Sigma-Aldrich | P7255 | |
| GTP | Fermentas | R0461 |
Referencias
- Palade, G. E., Siekevitz, P. Liver microsomes; an integrated morphological and biochemical study. J. Biophys. Biochem. Cytol. 2, 171-200 (1956).
- Fabry, M., Kalvoda, L., Rychlik, I. Hydrophobic interactions of Escherichia coli ribosomes. Biochim. Biophys. Acta. 652, 139-150 (1981).
- Jelenc, P. C. Rapid purification of highly active ribosomes from Escherichia coli. Anal. Biochem. 105, 369-374 (1980).
- Le goffic, F., Moreau, N., Chevelot, L., Langrene, S., Siegrist, S. Purification of bacterial ribosomes using chloramphenicol and erythromycin columns. Biochimie. 62, 69-77 (1980).
- Meskauskas, A., Petrov, A. N., Dinman, J. D. Identification of functionally important amino acids of ribosomal protein L3 by saturation mutagenesis. Mol. Cell Biol. 25, 10863-10874 (2005).
- Algire, M. A. Development and characterization of a reconstituted yeast translation initiation system. RNA. 8, 382-397 (2002).
- Maguire, B. A., Wondrack, L. M., Contillo, L. G., Xu, Z. A novel chromatography system to isolate active ribosomes from pathogenic bacteria. RNA. 14, 188-195 (2008).
- Leshin, J. A., Rakauskaite, R., Dinman, J. D., Meskauskas, A. Enhanced purity, activity and structural integrity of yeast ribosomes purified using a general chromatographic method. RNA. Biol. 7, 354-360 (2010).
- Triana, F., Nierhaus, K. H., Chakraburtty, K. Transfer RNA binding to 80S ribosomes from yeast: evidence for three sites. Biochem. Mol. Biol. Int. 33, 909-915 (1994).
- Azzam, M. E., Algranati, I. D. Mechanism of puromycin action: fate of ribosomes after release of nascent protein chains from polysomes. Proc. Natl. Acad. Sci. U. S. A. 70, 3866-3869 (1973).
- Nathans, D. Puromuycin inhibition of protein synthesis: incorporation of puromycin into peptide chains. Proc. Natl. Acad. Sci. U. S. A. 51, 585-592 (1964).
- Rabinovitz, M., Fisher, J. M. A dissociative effect of puromycin on the pathway of protein synthesis by Ehrlich ascites tumor cells. J. Biol. Chem. 237, 477-481 (1962).
- Allen, D. W., Zamecnik, P. C. The effect of puromycin on rabbit reticulocyte ribosomes. Biochim. Biophys. Acta. 55, 865-874 (1962).
- Yarmolinsky, M. B., Haba, G. L. Inhibition by puromycin of amino acid incorporation into protein. Proc. Natl. Acad. Sci. U. S. A. 45, 1721-1729 (1959).
- Becker-Ursic, D., Davies, J. In vivo and in vitro phosphorylation of ribosomal proteins by protein kinases from Saccharomyces cerevisiae. Biochemistry. 15, 2289-2296 (1976).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
