Caracterizar los epítopos de células T de patógenos que causan infecciones localizadas, como el virus del papiloma humano, es un desafío debido al número limitado de células T en circulación. Se describe un método mediante el cual se aislaron y caracterizaron células T raras a partir de un número muy pequeño de células.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de método
El uso de interferón-γ enzimo-inmunoensayo para la Caracterización de Nuevos epítopos de células T del virus del papiloma humano
En este artículo
Resumen
Resumen
Se ha desarrollado un protocolo para superar las dificultades de aislamiento y caracterización de linfocitos T raros específicos para patógenos, como el virus del papiloma humano (VPH), que causan infecciones localizadas. Los pasos implicados consisten en identificar la(s) región(es) de las proteínas del VPH que contienen epítopo(s) para linfocitos T a partir de un sujeto, seleccionar los linfocitos T específicos para el péptido basándose en la secreción de interferón-γ (IFN-γ) y cultivar y caracterizar los clones de linfocitos T (Fig. 1). El sujeto 1 era un paciente recientemente diagnosticado con una lesión intraepitelial escamosa de alto grado mediante biopsia y que se sometió a una escisión electroquirúrgica con asa para su tratamiento el mismo día en que se recolectaron los linfocitos T1. Se identificó una región dentro de las proteínas E6 y E7 del virus del papiloma humano tipo 16 (VPH 16) que contenía un epítopo para linfocitos T, utilizando un ensayo ELISPOT (enzima inmunoensayo con detección de placas) para IFN-γ realizado con péptidos sintéticos superpuestos (Fig. 2). Los datos de este ensayo se utilizaron no solo para identificar una región que contenía un epítopo para linfocitos T, sino también para estimar el número de linfocitos T específicos para el epítopo y para aislarlos en función de la secreción de IFN-γ mediante microperlas magnéticas comercialmente disponibles (kit de aislamiento de linfocitos T CD8, Miltenyi Biotec, Auburn CA). Los linfocitos T seleccionados que secretaban IFN-γ se diluyeron y cultivaron individualmente en presencia de una mezcla de células alimentadoras irradiadas para favorecer el crecimiento de un solo linfocito T por pocillo. Estos clones de linfocitos T se cribaron mediante un ensayo ELISPOT para IFN-γ en presencia de péptidos que cubrían la región identificada y células B linfoide transformadas por el virus de Epstein-Barr autólogas (LCLs, obtenidas como se describe en Walls y Crawford)2, con el fin de minimizar el número de células del clon de linfocitos T necesarias. En lugar de utilizar 1 x 10⁵ células por pocillo, cantidad típicamente empleada en ensayos ELISPOT1,3, se utilizaron 1.000 células del clon de linfocitos T en presencia de 1 x 10⁵ LCLs autólogas, reduciendo drásticamente el número de células del clon de linfocitos T necesarias. Las LCLs autólogas sirvieron no solo para presentar antígenos peptídicos a las células del clon de linfocitos T, sino también para mantener una alta densidad celular en los pocillos, lo que permitió a las células del clon de linfocitos T específicas para el epítopo secretar IFN-γ. Esto asegura el correcto funcionamiento del ensayo ELISPOT para IFN-γ. De manera similar, se utilizaron ensayos ELISPOT para IFN-γ para caracterizar la secuencia aminoacídica mínima y óptima del epítopo para linfocitos T CD8 (VPH 16 E6 52-61 FAFRDLCIVY) y su elemento de restricción de clase I del HLA (B58). También se realizó el ensayo ELISPOT para IFN-γ utilizando LCLs autólogas infectadas con virus vaccinia que expresaban la proteína E6 o E7 del VPH 16. El resultado demostró que el epítopo para linfocitos T E6 fue procesado endógenamente. Se mostró el reconocimiento cruzado del epítopo homólogo de linfocitos T de otros tipos de VPH de alto riesgo. Este método también puede utilizarse para describir epítopos para linfocitos T CD44.
Protocolo
Al realizar un ensayo ELISPOT de IFN-γ con una línea de células T CD8 establecida a partir del Sujeto 1, se determinó que la región 46-70 de E6 del VPH 16 contiene un epítopo de células T1 (Fig. 2), y las células T específicas para este epítopo se seleccionaron en función de la secreción de IFN-γ antes de iniciar este protocolo (Fig. 1).
1. Dilución limitante de linfocitos T específicos para epítopos
- Prepare la mezcla de células alimentadoras combinando células mononucleares de sangre periférica alogénicas irradiadas (4.000 rad) a 5 x 10⁵ células/ml, líneas celulares linfoblastoides alogénicas (LCLs) irradiadas (5.000 rad) a 5 x 10⁴ células/ml, y fitohemaglutinina (PHA) a 0,1 μg/ml, utilizando medio completo de Yssel que contiene 1 % de suero humano agrupado. Las células deben manipularse en condiciones estériles durante todo el protocolo.
- Diluya en serie las células T específicas del epítopo aisladas (Fig. 3) utilizando la mezcla de células alimentadoras hasta que la concentración alcance 0,5 célula/100 μl o 5 células/1 ml. Utilice aproximadamente 3 x 10³ células T específicas del epítopo.
- Coloque 100 μl por pocillo de células T específicas del epítopo diluidas en un total de 30 a 60 placas de 96 pocillos con fondo redondo, utilizando un pipetador multicanal.
- Incube las placas en una incubadora a 37 °C, 5 % de CO2.
- En el día 5, añada 100 μl de medio completo de Yssel que contenga 20 u/ml de interleucina-2 humana recombinante (rhIL-2).
- Identifique visualmente los clones de células T en crecimiento en las placas de 96 pocillos con fondo redondo por el tamaño considerable de sus sedimentos en el fondo.
- Entre el día 11 y 14, prepare una nueva mezcla de células alimentadoras combinando células mononucleares de sangre periférica alogénicas irradiadas (4.000 rad) a 1 x 10⁶ células/ml, líneas celulares linfoblastoides alogénicas irradiadas (5.000 rad) a 1 x 10⁵ células/ml, y PHA a 0,1 μg/ml, utilizando medio completo de Yssel. Coloque esta nueva mezcla de células alimentadoras en una placa de 24 pocillos a 1 ml por pocillo.
- Aspire individualmente los clones de células T de cada pocillo utilizando un micropipetador que pueda contener aproximadamente 200 μl de volumen.
- Dispense individualmente los clones de células T en la placa de 24 pocillos que contiene la nueva mezcla de células alimentadoras. Repita hasta que todos los clones de células T hayan sido transferidos.
2. Identificación de clones de linfocitos T específicos de epítopos mediante un ensayo ELISPOT de cribado de alto rendimiento (adaptado de un método descrito por Larsson et al.5)
- Recubra 2 placas estériles de ELISPOT (Multiscreen-HA; Millipore, Bedford, MA) con 50 μl/pocillo de anticuerpo monoclonal primario anti-IFN-γ (clon D1K, Mabtech, Estocolmo, Suecia) diluido a 5 μg/ml en solución salina tamponada con fosfato estéril para cultivo celular (PBS) durante un mínimo de 1 hora a 4 °C.
- Lave los pocillos con 150 a 200 μl/pocillo de PBS mediante pipeteo y descarte. Repita tres veces más.
- Bloquee la unión no específica añadiendo 50 μl/pocillo de suero humano agrupado diluido al 5 % en RPMI 1640 durante al menos 1 hora a 37 °C, 5 % CO2. Elimine las burbujas grandes pinchándolas con una aguja estéril.
- Siembre 1 x 10⁵ LCLs autólogos2 en 50 μl de RPMI 1640 con 5 % de suero humano por pocillo.
- Mezcle las células en cada pocillo de la placa de 24 pocillos que contiene los clones de linfocitos T usando una pipeta de 1 ml. Transfiera 100 μl por pocillo a un tubo Eppendorf estéril. Añada 500 μl de RPMI 1640 con 5 % de suero humano agrupado a cada tubo Eppendorf y centrifugue en una microcentrífuga a 3.000 RPM durante 5 min.
- Decante los tubos Eppendorf, añada 110 μl de RPMI 1640 con 5 % de suero humano por tubo y resuspenda las células mediante vortex.
- Siembre 50 μl de medio que contenga un clon específico de linfocitos T, independientemente del número de células, para un cribado rápido, en pocillos idénticamente posicionados de las 2 placas. Repita para todos los clones de linfocitos T. Al eliminar los pasos de conteo celular, se pueden probar simultáneamente un gran número de clones de linfocitos T.
- Combine el medio restante de varios tubos Eppendorf y siembre 50 μl en los siguientes pocillos idénticamente posicionados que se utilizarán como pocillos de control positivo, a los cuales se añadirá PHA.
- Añada 50 μl de RPMI 1640 con 5 % de suero humano agrupado a cada pocillo que servirá como control negativo, sin contener clones de linfocitos T.
- Añada péptidos contenidos en la región positiva (Tabla 1) en 50 μl/pocillo hasta una concentración final de 10 μM/péptido. Los stocks de péptidos se disuelven a 5 mM cada uno en 5 % - 15 % de dimetilsulfóxido en PBS, dependiendo de la solubilidad del péptido. Cada pocillo contendrá un volumen de 200 μl (50 μl de bloqueo, 50 μl de LCLs, 50 μl de clones de linfocitos T y 50 μl de péptidos).
- Añada 50 μl de PHA (concentración final 10 μg/ml) a los pocillos de control positivo.
- Añada 50 μl de RPMI 1640 con 5 % de suero humano agrupado a los pocillos de control negativo.
- Incube durante la noche a 37 °C, 5 % CO2.
- Lave los pocillos con 150 a 200 μl/pocillo de PBS con 0,05 % de Tween-20 mediante pipeteo y descarte. Repita tres veces más.
- Añada 50 μl de PBS que contenga 1 μg/ml de anticuerpo monoclonal anti-IFN-γ conjugado con biotina (clon 7B-6, Mabtech) e incube a 37 °C, 5 % CO2 durante 2 horas. Elimine las burbujas grandes pinchándolas con una aguja.
- Veinte minutos antes del final de la incubación de 2 horas, prepare la peroxidasa de rábano picante biotinilada unida a avidina (kit Vectastain Elite ABC; Vector Laboratories, Inc., Burlingame, CA) añadiendo 2 gotas de la solución A y 2 gotas de la solución B a 5 ml de PBS que contenga 0,1 % de Tween-20.
- Lave los pocillos con 150 a 200 μl/pocillo de PBS con 0,1 % de Tween-20 mediante pipeteo y descarte. Repita tres veces más.
- Siembre 50 μl/pocillo de la peroxidasa de rábano picante biotinilada H e incube a 37 °C, 5 % CO2 durante 1 hora. Elimine las burbujas grandes pinchándolas con una aguja.
- Lave los pocillos con 150 a 200 μl/pocillo de PBS con 0,1 % de Tween-20 mediante pipeteo y descarte. Repita tres veces más.
- Siembre 50 μl/pocillo de un reactivo colorimétrico denominado diaminobencidina (DAB) estable a temperatura ambiente durante 5 minutos. Elimine las burbujas grandes pinchándolas con una aguja.
- Lave los pocillos con 150 a 200 μl/pocillo de agua desionizada mediante pipeteo y descarte. Repita dos veces más.
- Deje secar completamente la placa.
- Cuente los focos utilizando un microscopio estereoscópico o un lector automatizado de ELISPOT (AID ELISPOT Classic Reader; Autoimmun Diagnostika GmbH, Strassberg, Alemania).
3. Confirmación de la naturaleza específica del epítopo de los clones de linfocitos T mediante el ensayo ELISPOT (Figura 4)
- Seleccione clones de células T de buen crecimiento. Realice un ensayo ELISPOT como se describió anteriormente, excepto que se sembrarán 1 x 10⁵ LCL autólogos y 1 x 10³ células del clon de células T por pocillo junto con uno de cada uno de los tres péptidos contenidos en la región (Tabla 1) a 10 μM. Prepare el ensayo en duplicado o triplicado.
4. Determinación de si el epítopo se procesa endógenamente (Fig. 5)
- Seleccione clones de linfocitos T de buen crecimiento. Realice un ensayo ELISPOT como se describió anteriormente, con la excepción de que se sembrarán 1 x 10⁵ LCL autólogos infectados con virus vaccinia recombinante que expresa E6 y E7 del VPH 16 6 (antes del ensayo) o ninguno (tipo silvestre, cepa WR) (una multiplicidad de infección de 5 durante 1 hora) y 1 x 10³ células del clone de linfocitos T por pocillo.
5. Caracterización de la secuencia mínima y óptima del epítopo de células T (Figuras 6a, 6b y 6c)
- Seleccione clones de células T con buen crecimiento. Realice un ensayo ELISPOT como se describió anteriormente, con la excepción de que se sembrarán 1 x 10⁵ LCL autólogas y 1 x 10³ células del clone de células T por pocillo junto con uno de los péptidos superpuestos de 9 aminoácidos que cubren la región (Tabla 1) a una concentración de 10 μM (Fig. 6a).
- Realice un ensayo ELISPOT como se describió anteriormente, con la excepción de que se sembrarán 1 x 10⁵ LCL autólogas y 1 x 10³ células del clone de células T por pocillo junto con uno de los péptidos de longitud variable de la serie (Tabla 1) a una concentración de 10 μM (Fig. 6b).
- Realice un ensayo ELISPOT como se describió anteriormente, con la excepción de que se sembrarán 1 x 10⁵ LCL autólogas y 1 x 10³ células del clone de células T por pocillo junto con algunos péptidos que con mayor probabilidad contengan la secuencia mínima y óptima de aminoácidos. Estos péptidos se probarán en concentraciones que oscilan entre 10-5 M y 10-10 M (Fig. 6c).
6. Identificación del elemento de restricción mediante el ensayo ELISPOT (Fig. 7)
- Seleccione clones de linfocitos T de buen crecimiento. Realice un ensayo ELISPOT como se describió anteriormente, con la excepción de que se sembrarán 1 x 10³ células por pocillo del clone de linfocitos T junto con el péptido mínimo y el óptimo a 10 μM. También se sembrarán cien mil LCL alogénicos por pocillo que compartan una o dos moléculas de HLA clase I con el sujeto en estudio.
7. Estudio de la reactividad cruzada de los clones de células T específicos de epítopos frente a secuencias de aminoácidos homólogos de otros tipos de VPH de alto riesgo (Fig. 8)
- Seleccione clones de células T de buen crecimiento. Realice un ensayo ELISPOT como se describió anteriormente, excepto que se sembrarán 1 x 10³ células por pozo del clone de células T junto con péptidos (10 μM) que contengan secuencias de aminoácidos homólogos de otros tipos de VPH de alto riesgo (Tabla 2). También se sembrarán cien mil LCL autólogos por pozo y LCL alogénicos que expresen las moléculas de clase I del HLA restrictivas en los pozos respectivos.
8. Resultados Representativos
La paciente 1 presentada aquí era una mujer afroamericana de 22 años con antecedentes recientes de lesión intraepitelial escamosa de alto grado diagnosticada mediante biopsia. Acudió para ser tratada mediante procedimiento de escisión con asa eléctrica el mismo día en que se recolectaron los linfocitos T1. El ensayo ELISPOT de su línea de linfocitos T CD8 mostró que la región E6 46-70 del VPH 16 (cada región se prueba con 3 péptidos superpuestos de 15 aminoácidos) contenía un epítopo de linfocitos T (Fig. 2). El número de linfocitos T específicos para el epítopo seleccionados en función de la secreción de IFN-γ fue de 1,2 x 10⁵. Tras realizar una dilución limitante (Fig. 3) con una quinta parte de las células seleccionadas, se obtuvieron 262 clones de linfocitos T. Las células seleccionadas restantes no se utilizaron, ya que el primer intento de clonación de linfocitos T fue exitoso. El ensayo ELISPOT de cribado de alto rendimiento realizado en 94 de estos clones identificó 62 clones positivos en el cribado, que pueden identificarse fácilmente macroscópicamente en la placa ELISPOT. Los clones restantes de linfocitos T no se probaron, ya que el primer ensayo ELISPOT identificó clones de linfocitos T específicos para el péptido. Ocho clones positivos en el cribado y de buen crecimiento se volvieron a probar individualmente con los tres péptidos de 15 aminoácidos que cubren la región (Fig. 4). Todos los clones de linfocitos T fueron positivos con los péptidos E6 51-65 del VPH 16, 6 de los 8 clones fueron positivos con el péptido E6 46-60 y ninguno de los clones fue positivo con el péptido E6 56-70. Las pruebas con LCL autólogas infectadas con un virus vaccinia recombinante que expresa la proteína E6 o E7 del VPH 16 demostraron que los clones de linfocitos T reconocen un epítopo E6 procesado endógenamente (Fig. 5). Las pruebas con una serie de péptidos superpuestos de 9 aminoácidos que cubren la región 46-65 del VPH 16 (Tabla 1) mostraron la mejor respuesta con el péptido E6 53-61 (Fig. 6a). Se probaron los dos péptidos de 10 aminoácidos que contienen el péptido E6 53-61, los dos péptidos de 8 aminoácidos contenidos en el péptido E6 53-61 y un péptido de 11 aminoácidos que contiene ambos péptidos de 10 aminoácidos, y el péptido E6 52-61 (10-mer) resultó ser la secuencia mínima y óptima de forma más consistente (Fig. 6b). Sin embargo, el péptido E6 53-61 (9-mer) mostró una respuesta igualmente fuerte con el clon de linfocitos T #79. Este clon de linfocitos T se probó con estos dos péptidos en un rango más amplio de concentraciones, y el péptido E6 52-61 (10-mer) mantuvo la positividad mucho más eficazmente que el péptido E6 53-61 (9-mer) a concentraciones más bajas del péptido (Fig. 6c). No se probó el péptido más largo E6 52-62 (11-mer), ya que el objetivo era definir la secuencia más corta que demostrara una respuesta robusta. Se determinó que el péptido E6 52-61 (10-mer) contiene la secuencia mínima y óptima.
La molécula HLA clase I restrictiva del epítopo de células T CD8 se puede examinar mediante un ensayo ELISPOT que utiliza LCL alogénicas que expresan una o dos moléculas HLA clase I comunes con el sujeto. Sin embargo, los resultados fueron inconcluyentes para el Sujeto 1 debido a un fondo elevado observado en el ensayo ELISPOT. Posteriormente, se identificó que la molécula HLA clase I restrictiva para el Sujeto 1 era B58 mediante un ensayo de liberación de cromo (datos no mostrados). Fig. 7 muestra un ejemplo de otro sujeto [Sujeto A, en quien se encontró que detectaba la secuencia mínima y óptima de E6 75-83 (KFYSKISEY) como lo describieron Wang et al.]7. Se observa una alta positividad con una LCL que expresa las moléculas B62 y Cw3, mientras que se muestra una positividad de fondo con una LCL que expresa Cw3. Un ensayo de liberación de cromo confirmó que la molécula B62 era el elemento restrictivo para el Sujeto A7.
Algunas regiones del genoma del VPH están bien conservadas, y secuencias homólogas a las regiones E6 52-61 del VPH 16 estuvieron presentes en otros 13 tipos de VPH de alto riesgo (Tabla 2). Se demostró un fuerte reconocimiento cruzado (>50% de unidades formadoras de colonias para el péptido E6 52-61 del VPH 16) para 8 de los 13 tipos de VPH de alto riesgo (Fig. 8).
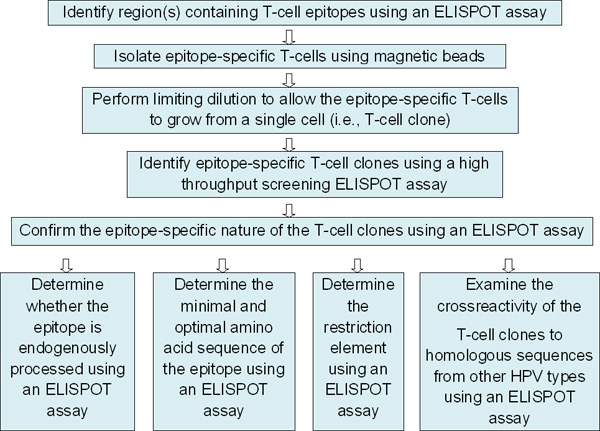
Figura 1. Esquema general que describe la serie de experimentos para caracterizar epítopo(s) novedoso(s) de células T. Este artículo describe el protocolo a partir del tercer cuadro contando desde la parte superior.
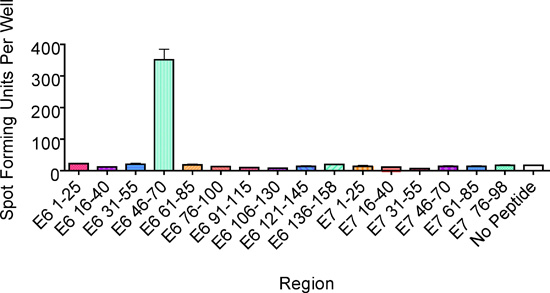
Figura 2. Un ensayo ELISPOT realizado para identificar la(s) región(es) que contienen el epítopo de células T. Cien mil células T CD8 estimuladas in vitro por pocillo se sembraron junto con tres péptidos superpuestos de 15 aminoácidos (10 μM cada uno) que cubren cada región dentro de las proteínas E6 y E7 del VPH 16. Este ejemplo del Sujeto 1 mostró la presencia de un epítopo de células T en la región E6 46-70. Las barras representan los errores estándar de las medias.
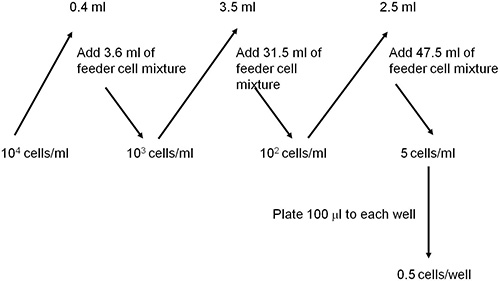
Figura 3. Esquema que muestra cómo diluir células T específicas frente a un epítopo utilizando una mezcla de células alimentadoras hasta una concentración de 0,5 células por pocillo.
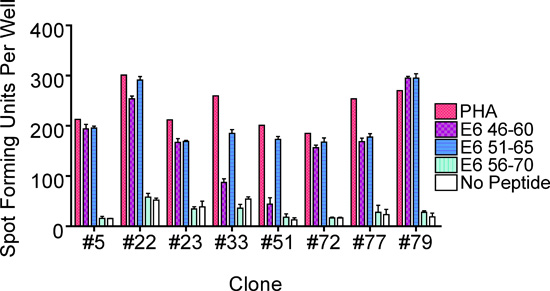
Figura 4. Un ensayo ELISPOT realizado para identificar subregiones que contienen el epítopo de células T mediante la prueba individual de tres péptidos de 15 aminoácidos. Este ejemplo del Sujeto 1 mostró la presencia del epítopo en las subregiones E6 46-60 y E6 51-65. Las barras representan los errores estándar de las medias.
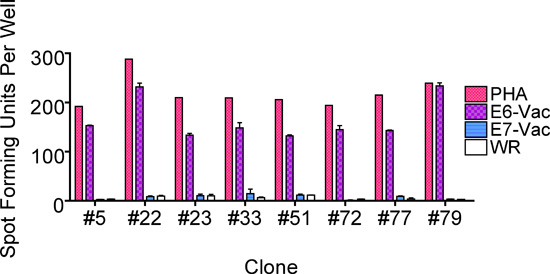
Figura 5. Un ensayo ELISPOT realizado para examinar si el epítopo de células T se presenta endógenamente. Este ejemplo del Sujeto 1 reveló que los clones de células T reconocieron un epítopo E6 procesado endógenamente. Las barras representan los errores estándar de las medias.
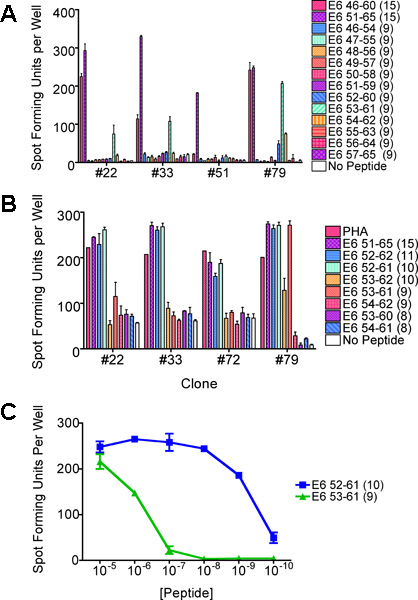
Figura 6. Ensayos ELISPOT realizados para caracterizar la secuencia peptídica más corta y óptima del epítopo de células T. Se utilizaron los mismos clones en toda la serie si estaban disponibles. (a) Un ensayo ELISPOT realizado utilizando péptidos solapados de 9 aminoácidos. Este ejemplo del Sujeto 1 reveló que el epítopo se encuentra en la subregión E6 53-61. (b) Un ensayo ELISPOT realizado para identificar la secuencia peptídica mínima y óptima utilizando péptidos de diversas longitudes. Este ejemplo reveló que la secuencia peptídica más corta y óptima fue de manera más consistente el péptido E6 52-61, seguido del péptido E6 53-61. (c) Un ensayo ELISPOT realizado para confirmar qué péptido contiene la secuencia mínima y óptima. El péptido E6 52-61 mantuvo positividad a concentraciones más bajas y se determinó que era la secuencia más corta y óptima. Las barras representan los errores estándar de la media.
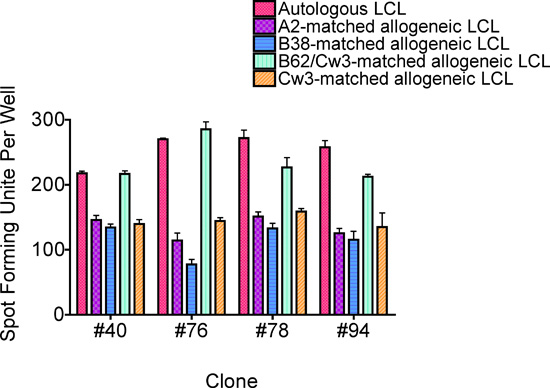
Figura 7. Un ensayo ELISPOT realizado para identificar la molécula HLA clase I restrictora. Este ejemplo respaldó la idea de que la molécula B62 es el elemento restrictor para el clon de linfocitos T CD8 del Sujeto A que reconoce el epítopo HPV 16 E6 75-837. Esto fue confirmado mediante un ensayo de liberación de cromo. Las barras representan los errores estándar de las medias.
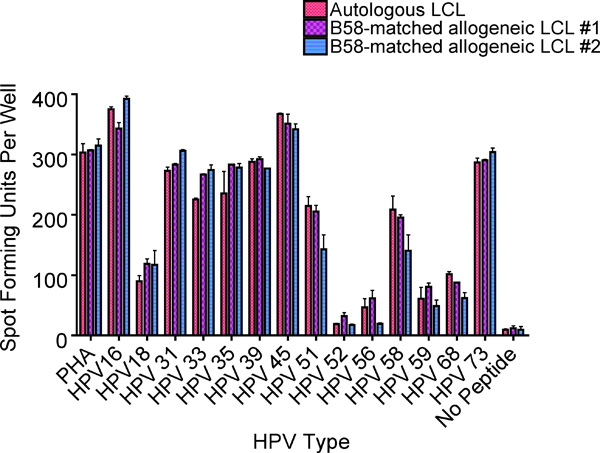
Figura 8. Un ensayo ELISPOT realizado para evaluar la reactividad cruzada de los clones de linfocitos T específicos frente a la secuencia 52-61 del VPH 16 frente a secuencias similares de otros tipos de VPH de alto riesgo (Tabla 2). Este ejemplo del Sujeto 1 mostró una reactividad cruzada significativa (>50 % de positividad en comparación con la secuencia 52-61 del VPH 16) en 8 de los 13 otros tipos de VPH de alto riesgo analizados. Las barras representan los errores estándar de las medias.
| Tipo de VPH | Residuos de AA* | Secuencia^ |
| 16 | E6 46-60 (15) | RREVYDFAFRDLCIV |
| 16 | E6 51-65 (15) | DFAFRDLCIVYRDGN |
| 16 | E6 56-70 (15) | DLCIVYRDGNPYAVC |
| 16 | E6 52-62 (11) | FAFRDLCIVYR |
| 16 | E6 52-61 (10) | FAFRDLCIVY |
| 16 | E6 53-62 (10) | AFRDLCIVYR |
| 16 | E6 46-54 (9) | RREVYDFAF |
| 16 | E6 47-55 (9) | REVYDFAFR |
| 16 | E6 48-56 (9) | EVYDFAFRD |
| 16 | E6 49-57 (9) | VYDFAFRDL |
| 16 | E6 50-58 (9) | YDFAFRDLC |
| 16 | E6 51-59 (9) | DFAFRDLCI |
| 16 | E6 52-60 (9) | FAFRDLCIV |
| 16 | E6 53-61 (9) | AFRDLCIVY |
| 16 | E6 54-62 (9) | FRDLCIVYR |
| 16 | E6 55-63 (9) | RDLCIVYRD |
| 16 | E6 56-64 (9) | DLCIVYRDG |
| 16 | E6 57-65 (9) | LCIVYRDGN |
| 16 | E6 53-60 (8) | AFRDLCIV |
| 16 | E6 54-61 (8) | FRDLCIVY |
* El número de aminoácidos se muestra entre paréntesis.
Tabla 1. Secuencias de aminoácidos de los péptidos E6 del VPH 16 utilizados para definir la secuencia peptídica antigénica mínima y óptima.
| Tipo de VPH | Residuos A A* | Secuencia^ |
| 16 | E6 52-61(10) | FAFRDLCIVY |
| 18 | E6 47-56 (10) | FAFKDLFVVY |
| 31 | E6 45-54 (10) | FAFTDLTIVY |
| 33 | E6 45-54 (10) | FAFADLTVVY |
| 35 | E6 45-54 (10) | FACYDLCIVY |
| 39 | E6 47-56 (10) | FAFSDLYVVY |
| 45 | E6 47-56 (10) | FAFSDLYVVY |
| 51 | E6 45-54 (10) | VAFTEIKIVY |
| 52 | E6 45-54 (10) | FLFTDLRIVY |
| 56 | E6 48-57 (10) | FACTELKLVY |
| 58 | E6 45-54 (10) | FVFADLRIVY |
| 59 | E6 47-56 (10) | FAFNDLFIVY |
| 68 | E6 47-56 (10) | FAFGDLNVVY |
| 73 | E6 45-54 (10) | FAFSDLCIVY |
* El número de aminoácidos se muestra entre paréntesis.
^ Los residuos de aminoácidos diferentes a los del epítopo E6 52-61 del VPH-16 se indican en negrita.
Tabla 2. Secuencias de aminoácidos de péptidos de tipos de VPH de alto riesgo homólogos a los epítopos de células T CD8 E6 52-61 del VPH 16, probados para evaluar el reconocimiento cruzado.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
Tradicionalmente, los inmunólogos intentaron caracterizar epítopos de células T novedosos mediante la estimulación in vitro de las células T de interés y la realización de un experimento de dilución límite para aislar los clones de células T específicos del epítopo. Luego, los clones de células T se caracterizaron utilizando un ensayo de liberación de cromo8,9. Sin embargo, muchos intentos resultaron infructuosos porque las frecuencias de las células T podrían haber sido demasiado bajas para ser aisla...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
Los autores no tienen nada que revelar.
Agradecimientos
Este estudio fue financiado por una beca de la American Cancer Society Scholars Award (RSG-06-180-01-MBC) y por subvenciones de los NIH (R01 CA143130 y UL1RR029884).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Kit de aislamiento de células T CD8 | Miltenyi Biotec | 130-094-156 | |
| Fitohemaglutinina | Remel, Thermo Fisher Scientific | R-30852801 | 2 mg/vial |
| Medio de Yssel’s | Gemini Bio Products | 400-102 | 1 % de suero humano agrupado |
| Placa de 96 pocillos con fondo redondo | BD Biosciences | 08-772-17 | |
| IL-2 humana recombinante | R&D Systems | 202-IL-050 | 50μg |
| Placa de 24 pocillos | Corning | 07-200-84 | |
| Solución salina tamponada con fosfato | Cellgro | MT-21-031-CV | |
| Anticuerpo monoclonal primario anti-IFN-γ (D1K) | Mabtech | 3420-3-1000 | |
| Anticuerpo monoclonal anti-IFN-γ conjugado con biotina (7B-6) | Mabtech | 3420-6-1000 | |
| Placa Multiscreen HA para ELISPOT | EMD Millipore | MAHA S45 10 | |
| Dimetilsulfóxido | Sigma-Aldrich | D2650 | Botella de 100 ml |
| Suero agrupado humano | Atlanta Biologicals | S40510H | Inactivar por calor |
| RPMI 1640 | Cellgro | MT-10-040-CV | |
| Tween-20 | Sigma-Aldrich | P2287-100ml | |
| Kit Vectastain Elite ABC | Vector Laboratories | NC9313719 | |
| Diaminobencidina estable | Open Biosystems | MBI 1241 | |
| Lector AID EliSpot Reader Classic | Autoimmun Diagnostika GmbH | ELR06 |
Referencias
- Nakagawa, M. A favorable clinical trend is associated with CD8 T-cell immune responses to the human papillomavirus type 16 e6 antigens in women being studied for abnormal pap smear results. J. Low. Genit. Tract Dis. 14, 124-129 (2010).
- Walls, E., Crawford, L. Lymphocytes: A practical approach. Klaus, G. G. B. , IRL Press. 149-149 (1987).
- Nakagawa, M., Kim, K. H., Moscicki, A. B. Patterns of CD8 T-cell epitopes within the human papillomavirus type 16 (HPV 16) E6 protein among young women whose HPV 16 infection has become undetectable. Clin. Diagn. Lab Immunol. 12, 1003-1005 (2005).
- Wang, X., Santin, A. D., Bellone, S., Gupta, S., Nakagawa, M. A novel CD4 T-cell epitope described from one of the cervical cancer patients vaccinated with HPV 16 or 18 E7-pulsed dendritic cells. Cancer Immunol. Immunother. 58, 301-308 (2009).
- Larsson, M. A recombinant vaccinia virus based ELISPOT assay detects high frequencies of Pol-specific CD8 T cells in HIV-1-positive individuals. AIDS. 13, 767-777 (1999).
- Nakagawa, M. Cytotoxic T lymphocyte responses to E6 and E7 proteins of human papillomavirus type 16: relationship to cervical intraepithelial neoplasia. J. Infect. Dis. 175, 927-931 (1997).
- Wang, X., Moscicki, A. B., Tsang, L., Brockman, A., Nakagawa, M. Memory T cells specific for novel human papillomavirus type 16 (HPV16) E6 epitopes in women whose HPV16 infection has become undetectable. Clin. Vaccine Immunol. 15, 937-945 (2008).
- Evans, M. Antigen processing defects in cervical carcinomas limit the presentation of a CTL epitope from human papillomavirus 16 E6. J. Immunol. 167, 5420-5428 (2001).
- Shi, Y., Smith, K. D., Kurilla, M. G., Lutz, C. T. Cytotoxic CD8+ T cells recognize EBV antigen but poorly kill autologous EBV-infected B lymphoblasts: immunodominance is elicited by a peptide epitope that is presented at low levels in vitro. J. Immunol. 159, 1844-1852 (1997).
- Varadarajan, N. A high-throughput single-cell analysis of human CD8+ T cell functions reveals discordance for cytokine secretion and cytolysis. The Journal of Clinical Investigation. , (2011).
- Nakagawa, M., Kim, K. H., Moscicki, A. B. Different methods of identifying new antigenic epitopes of human papillomavirus type 16 E6 and E7 proteins. Clin. Diagn. Lab Immunol. 11, 889-896 (2004).
- Nakagawa, M., Kim, K. H., Gillam, T. M., Moscicki, A. B. HLA class I binding promiscuity of the CD8 T-cell epitopes of human papillomavirus type 16 E6 protein. J. Virol. 81, 1412-1423 (2007).
- Brown, S. A. T cell epitope "hotspots" on the HIV Type 1 gp120 envelope protein overlap with tryptic fragments displayed by mass spectrometry. AIDS Res. Hum. Retroviruses. 21, 165-170 (2005).
- Masemola, A. M. Novel and promiscuous CTL epitopes in conserved regions of Gag targeted by individuals with early subtype C HIV type 1 infection from southern Africa. J. Immunol. 173, 4607-4617 (2004).
- Walker, B. D., Korber, B. T. Immune control of HIV: the obstacles of HLA and viral diversity. Nat. Immunol. 2, 473-475 (2001).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
Etiquetas
Ensayo ELISPOT de interferón gammacaracterización de epítopos de células Tproteínas E6 E7 del VPH 16aislamiento de células T antígeno-específicasdetección de la secreción de IFN-gammapresentación mediante LCL autólogasclonación de células T epítopo-específicasrestricción del HLA clase Ireactividad cruzada de tipos de VPHsecuencia peptídica mínima óptima
