Somitogenesis es un proceso de desarrollo rítmico que espacialmente los patrones de los ejes corporales de los embriones de vertebrados. Anteriormente, hemos desarrollado líneas de pez cebra transgénico que utilizan los reporteros fluorescentes para observar los genes cíclicos que impulsan este proceso. En este sentido, la cultura dispersamos las células de estas líneas y la imagen de sus oscilaciones en el tiempo en vitro.
Artículo de método
Generación de Dispersed presomitic mesodermo Cultivos Celulares for Imaging del pez cebra Segmentación del Reloj en células individuales
En este artículo
Resumen
Resumen
La segmentación es un proceso morfogenético periódica y secuencial en los vertebrados. Esta formación rítmica de bloques de tejido llamados somitas a lo largo del eje del cuerpo es evidencia de un oscilador genética modelar el embrión en desarrollo. En el pez cebra, el reloj de la segmentación de conducción intracelular está formado por miembros de la familia de factores de transcripción Her / Hes organizados en ciclos de retroalimentación negativa. Hemos generado recientemente líneas fluorescentes reportero transgénicos para el gen HER1 cíclica que recapitular el patrón espacio-temporal de las oscilaciones en el mesodermo presomitic (PSM). El uso de estas líneas, hemos desarrollado un sistema de cultivo in vitro que permite el análisis en tiempo real de las oscilaciones de reloj de segmentación dentro de las células individuales, aislados de PSM. Mediante la eliminación de tejido PSM de embriones transgénicos y luego dispersar las células de las regiones oscilante sobre placas con fondo de vidrio, que generó culturas adecuadas para time-lapse de la señal de fluorescencia decélulas de reloj individuales. Este enfoque proporciona un marco experimental y conceptual de la manipulación directa del reloj de segmentación con la resolución de una sola célula sin precedentes, permitiendo a sus propiedades de células autónomas ya nivel de tejido para ser distinguidos y disecados.
Introducción
La formación periódica de segmentos a lo largo del eje del cuerpo de vertebrados, o somitogenesis, es evidencia de un oscilador espacial y temporal en el embrión en desarrollo. El mecanismo favorecido controlar somitogenesis se describe conceptualmente por un modelo de "reloj y frente de onda" 1, en donde el "reloj" que consiste en osciladores celulares, ahora se piensa para ser conducido intracelularmente por la expresión rítmica de un conjunto de genes cíclicos 2, hace enojar a la formación de somitas del mesodermo presomitic (PSM). Como se desarrolla el embrión, un "frente de onda" maduración en el PSM se mueve en concierto con el tejido regresión hacia la parte posterior, la desaceleración y detención de los osciladores celulares a medida que pasa 3. Juntos, este sistema espaciotemporalmente dinámico se denomina el reloj de segmentación. Los enfoques actuales para el estudio de la extensión del reloj segmentación tres niveles crecientes de organización del oscilador genético en las células individuales a th acoplamiento localespor lo que ocurra entre las células y, finalmente, a la regulación global de información sobre la posición en el tejido PSM colectiva 4.
Estudios previos sugieren que el oscilador de segmentación de células autónomas en el pez cebra se compone de genes y productos proteínicos del her / hes transcripción factorfamily, que se cree que forma un bucle de retroalimentación negativa a través de la represión transcripcional 5-7. La vía de señalización Delta / Notch sincroniza oscilaciones entre las células vecinas y regula el período de la colectivización de la población 8-10. Moléculas FGF señalización producidas en el tailbud parecen construir un gradiente a través del pez cebra PSM, y son la hipótesis de ese modo contribuir a ralentizar y detener a las células que oscilan en el anterior 11. Hasta ahora, el papel funcional de cada una de estas moléculas en somitogenesis han sido investigados por la mutación genética, la inyección morfolino, choque térmico sobre-expresión, y trea fármaco antagonistatamento de componentes de reloj y de señalización entre células 5,7,10,12. El uso de estas perturbaciones, la función de reloj de segmentación se ha inferido a partir de descripciones de los niveles de tejido de defectos somite y la pérdida de oscilaciones uniformes en la expresión de los genes cíclicos como HER1, her7, y delta C. Sin embargo, casi todos estos datos son de embriones fijos y no logran captar con precisión los cambios que son inherentes a la función dinámica del reloj de segmentación. Más recientemente, time-lapse de múltiples embriones ha revelado los primeros mutantes con periodo oscilador alterada, pero estas observaciones también fueron compuestos en el 7,13 nivel de los tejidos. Por lo tanto, no se ha observado el comportamiento del oscilador autónomo de la célula durante la hipótesis de somitogenesis.
Instantáneas estáticas de somitogenesis dan una imagen incompleta, ya que, por sí, el proceso está impulsado por un sistema oscilatorio. Trabajos anteriores en células de ratón y pollo mostró que los niveles de transcripcióny aumento de proteínas y el otoño, pero el muestreo de una oscilación de aproximadamente 2 horas cada 30 o 45 min restringe necesariamente los datos recogidos y por lo tanto las conclusiones que pueden extraerse 14,15. Estudio de los otros osciladores biológicos, sobre todo, los relojes circadianos, se ha alejado de las mediciones por etapas de genes y expresión de proteínas para monitoreo en tiempo real utilizando fluorescente y reporteros bioluminiscentes 16,17. Estas herramientas son esenciales para la demostración de propiedades del reloj de las células individuales 18. Un reportero bioluminiscente del gen cíclico Hes1 se ha desarrollado y brevemente caracterizado células PSM de ratón individuales 19. Se calculó el período promedio y la varianza para un pequeño número de células, que muestra que las oscilaciones persisten durante varios ciclos in vitro. Sin embargo, estos estudios no abordaron cuantitativamente la estabilidad y robustez de frecuencia del oscilador y la amplitud, si las células de forma espontánea pueden entrar o oscilaciones de salida,y cómo las células mantienen sus relaciones de fase. Además, los efectos de las moléculas de señalización que se encuentran en el embrión en el reloj autónomo de la célula no se han probado directamente. En consecuencia, estas propiedades fundamentales del oscilador de células individuales permanecen completamente desconocido.
Recientemente hemos desarrollado líneas de peces transgénicos utilizando recombinería BAC 20 para conducir Venus (YFP) reporteros de fluorescencia de la expresión de HER1 30. Tales líneas explotan las señales reguladoras del locus cromosómico intacta en la que están inmersos y recapitulan la dinámica temporal y patrón espacial de HER1. Este avance permite la supervisión en tiempo real de la expresión génica en el embrión de pez cebra en desarrollo in vivo. Para el estudio de las propiedades fundamentales de las oscilaciones de células autónomas y las modalidades de dicha expresión está regulada a través del tiempo, recientemente hemos desarrollado un método fiable para aislar y registro de las células PSM in vitro. Este protocol describe cómo hemos utilizado nuestras líneas de reportero transgénicos para generar cultivos de células dispersas, de la que podemos caracterizar las oscilaciones del reloj de la segmentación del pez cebra en las células individuales. Podemos abordar de ese modo las cuestiones pendientes en el campo que no eran accesibles con el análisis estático o de nivel de tejido, así como manipular directamente el reloj de segmentación a nivel de una sola célula con moléculas de señalización e inhibidores.
Protocolo
1. Antes de la disección
- En el día antes de la disección, los embriones obtener a partir de un Incross de pares de pez cebra heterocigotos para el alelo transgénico.
- Levante embriones en medio E3 sin azul de metileno a 28 º C hasta la etapa de protección (6 horas después de la fecundación).
- Transferencia de embriones en medio E3 sin azul de metileno al 20 o CO / N. A los 20 o C, los embriones se forman 1 somito por hora una vez que alcanzan la etapa tailbud. Después de 17 a 20 hr O / N a 20 º C, los embriones deben estar en 5 a 8 somite etapa a la mañana siguiente al inicio del protocolo de disección.
- Montar herramientas y reactivos necesarios para la disección.
- Pipeta de vidrio pulido al fuego para la transferencia de embriones y tejido
- Par de pinzas finas para la eliminación de chorions a partir de embriones
- Recubierto de Sylgard plato de 35 mm para la disección - Vierta polímero Sylgard en una placa de 35 mm y curar O / N en un 37 ° C. Hacer la disección bien utilizandouna punta de la aguja para extraer una pequeña cantidad de polímero curado. El plato se puede limpiar y reutilizar posteriormente.
- Afilados, herramientas de alambre de tungsteno aplanados para la manipulación de tejidos PSM
- Micro-bisturí para cortar piezas deseadas del PSM a la cultura
- 35 mm de plato de plástico para la incubación de tripsina
- Medio L15 que contiene suero bovino fetal al 10%
- Solución de tripsina / EDTA 0,25%
- Puntas de carga de gel Sigmacoted para la dispersión
- Placas de Petri de plástico que contenían medio E3 sin azul de metileno.
- Cubrir el plato de imágenes de fondo de cristal con sustrato Fibronectin1 (10 g / ml en PBS). Deja el plato en el banco para cubrir durante la disección.
- Utilice estereoscopio con filtros de fluorescencia apropiadas para identificar y embriones transgénicos tipo positivos (fase 5 a 8 somito).
- Identificar embriones transgénicos mediante el examen de la presomitic mesodermo (PSM) para la expresión de YFP bajo canal de fluorescencia (Figura 1A). Sho Fluorescenciauld ser visible en la región desde el último somito formada para la tailbud. Seleccionar embriones con la señal más brillante; 25% de la descendencia debería ser embriones homocigotos que llevan 2 copias del transgén. El número de embriones identificados necesarios varía en función de la experiencia. Una pieza tailbud diseccionado producirá 1.000 células, en promedio. Típicamente, unos pocos embriones positivos adicionales son útiles en caso de errores se realizan durante la disección.
- Use luz transmitida como una referencia posicional para distinguir cualquier autofluorescencia, en particular en la célula de huevo, de la señal.
- Transferencia de embriones positivos a una placa petri de plástico separada que contiene medio de E3 sin azul de metileno.
2. PSM Disección y Dispersión
- Preparar embriones para la disección.
- Bajo un microscopio de disección, usando unas pinzas finas, retire con cuidado el corion de cada embrión a medio E3. Asegúrese de no dañar el embrión o interrumpir la célula huevo.
- Llenar Sylgard recubiertos de disección plato con medio L15 con suero. El uso de pinzas u otra herramienta plana, eliminar las burbujas de aire de la superficie de la Sylgard.
- Transferencia de embriones dechorionated utilizando la pipeta de vidrio pulido al fuego al plato de disección.
- Usando las herramientas de alambre, mover todos los embriones a un lado del plato de disección.
- Diseccionar PSM de un solo embrión.
- Orient un solo embrión en su lado lateral en el pequeño pozo hecho en la capa de Sylgard en el plato de disección (Figura 1B).
- Utilizando el micro bisturí, cortar a través del embrión y las células yema justo por delante de la parte posterior del cerebro y por el polo ventral del embrión (Figura 1B, línea roja punteada).
- Retire la pieza anterior del embrión desde el pozo y hacer que pase a un lado del plato, y luego usar las herramientas de alambre para raspar restantes gránulos de células de la yema de la sección posterior incluyendo el PSM.
- Una vez que la yema ha sido raspado, aplanar y orientar el PSM con el extremo anterior apuntando lejos del experimentador y la posterior apuntando hacia el experimentador (Figura 1C).
- Si la fina capa de ectodermo no ha tirado fuera por este punto, utilice las herramientas de cable a pelar lejos de la parte superior del tejido PSM.
- Uso de la micro-escalpelo cortó el tailbud, la punta más posterior del PSM allá del final de la notocorda, lejos del resto del tejido (Figura 1C, línea roja punteada). NOTA: Otras piezas de tejido del PSM, para PSM ejemplo anterior más cerca de la última somite formado, también se pueden tener en la cultura, dependiendo de la pregunta experimental.
- Mover la pieza tailbud a una esquina del plato lejos de la zona de disección. Utilice las herramientas de alambre para limpiar los desechos y los tejidos de embriones no deseados desde el campo de disección.
- Repita con el siguiente embrión.
- Piezas Piscina tailbud de múltiples embryos, dependiendo del número de células se requiere para el experimento. En promedio, una sola pieza de tejido tailbud produce 1.000 células.
- Llenar vacío 35 mm de plato de plástico con un pequeño volumen de tripsina-EDTA.
- Usando la pipeta de vidrio pulido al fuego, transferir piezas tailbud de disección plato en plato que contiene tripsina / EDTA. Incubar piezas tailbud en tripsina / EDTA durante 20 min a TA.
- Mientras que el tejido se incubaron en tripsina, se retira la solución Fibronectin1 desde el plato de imagen con fondo de cristal.
- Lavar la solución de vidrio 3 veces con agua MilliQ. Utilice succión para eliminar cada lavado y garantizar el plato esté completamente seco.
- Dispersar piezas tailbud en medio para la formación de imágenes.
- Pipetear 100 l de medio L15 con suero en la fuente de imagen.
- Con una punta de gel recubierto, retire las piezas tailbud de la tripsina / EDTA en el menor volumen posible.
- Pipetear los pedazos tailbud en el medio en elplato de formación de imágenes. Pipetear las piezas arriba y abajo varias veces para separarlos y suspender las células en el medio. Tenga cuidado de no introducir burbujas de aire. Compruebe si hay grupos de células en el microscopio y se dispersan más si es necesario.
- Permiten a las células dispersadas en la suspensión se asienten sobre el vidrio recubierto de Fibronectin1 durante 20 min a TA.
- Añadir un pequeño volumen de medio L15 adicional con suero a las células antes de comenzar de formación de imágenes. Tenga cuidado de no romper las células asentadas.
- Ante la pregunta experimental, añadir cualquier suplemento o tratamientos farmacológicos para la cultura.
3. Obtención de imágenes de células dispersas PSM
- Configure el plato de imagen en la cámara de temperatura en el microscopio time-lapse. Establecer cámara de Warner a la temperatura deseada para el experimento. Permitir plato se equilibre durante al menos 30 min antes de iniciar la adquisición de imágenes. Temperatura Revisión Cruzada con sonda de temperatura externa colocada en el plato, si es necesario. NOTA: Debido ala relación entre la temperatura y tasa de somitogenesis 21 de control de temperatura estable es esencial para mediciones precisas de tiempo en células individuales de PSM.
- Adquirir imágenes de prueba en el canal de fluorescencia para comprobar que el tiempo de exposición y ganancia proporcionan un gran rango dinámico de intensidades sin saturación para asegurar una buena señal a niveles de ruido. Una imagen típica fluorescencia adquirida de células dispersas generados a partir de nuestras líneas utilizando este protocolo requiere 400 ms y 40 ms para una imagen de luz transmitida con una cámara EMCCD operando a una ganancia EM de 85 años. Además, la ganancia del preamplificador y la velocidad de lectura del cámara son también esenciales para maximizar la señal sobre el ruido.
- Usando el canal de luz transmitida, seleccione los campos de las células para la adquisición de lapso de tiempo.
- Ejecutar protocolo de adquisición de lapso de tiempo de tiempo deseado.
- Adquirir una imagen de fluorescencia por campo una luz y se transmiten. NOTA: Establezca un intervalo entre ro de adquisiciónunds que capturarán dinámica temporal sin foto-blanqueamiento sobre la imagen ampliada o de la toxicidad que induce en las células. Este protocolo utiliza un intervalo de 2 min.
- Compruebe lapso de tiempo de establecimiento de vez en cuando durante la grabación para asegurarse de que las células se mantienen en el foco, no hay errores de software o hardware, etc
4. Procesamiento de imágenes de Adquiridos Time-lapse películas
- Abrir archivo de película para un campo adquirido en un software de procesamiento de imágenes. NOTA: Fiji se utilizó para todo el procesamiento en este protocolo.
- Dividir transmite luz y fluorescencia marcos de un campo a crear 2 pilas de imágenes.
- Seguimiento de una sola célula en el canal de la luz transmitida.
- Coloque un ROI circular (región de interés) en torno a la celda seleccionada en el primer cuadro en el canal de la luz transmitida. NOTA:.. Sólo las células que 1 son sanas al final de la grabación, 2 no se mueven fuera del campo, y 3 no entran en contacto con otras ce.lls se realiza un seguimiento.
- ¡Ahorre un ROI cada pocos fotogramas a la gerente de ROI. Seguimiento de la célula hasta el último fotograma.
- Medir la intensidad de uso de las regiones de interés guardados en el canal de fluorescencia.
- Seleccione la pila de fluorescencia y con el rendimiento de la inversión guardado, siga el círculo costumbre interpolador plug-in y macro para medir la intensidad de la célula de seguimiento en el tiempo.
- Revise la traza de salida de la macro. Si la traza capta cualitativamente características de la fluorescencia de lapso de tiempo, exportar los valores a una hoja de cálculo de Excel.
- Guarde la lista de ROI para la célula.
- Repetir el seguimiento en el canal de transmisión y la medición en el canal de fluorescencia para otras células en el campo.
- Repita todos los pasos para campos adicionales a partir del experimento.
Resultados
Este protocolo produce cultivos de dispersos, las células viables, solo PSM para time-lapse de la señal de fluorescencia (Figura 2). Nuestra transgén genera un reportero cuyo ciclo de producción y la degradación se produce con una dinámica similar a la del gen y de la proteína endógena en el embrión, en el orden de la mitad de una hora. Debido a su rápida rotación, la señal de YFP en células individuales debe ser detectado rápidamente para minimizar la decoloración y con una alta resolución temporal para capturar las características de cada ciclo oscilatorio. Además, dada la oscuridad relativa de la señal, la cultura y las condiciones de adquisición se han perfeccionado al máximo para garantizar resultados sensibles y robustas. Hemos encontrado los siguientes factores a ser importantes en la generación de cultivos óptimos de células PSM para imágenes:. 1 Un sustrato ECM utilizado para recubrir las placas de cultivo con fondo de cristal. 2. La adición de suero a la disección y medio formador de imágenes. 3. Disección de PSM a partir de embriones identificados tomadas después hete apareamientopares rozygous, cuya descendencia potencialmente llevar 2 copias del transgén. 4. Adquisición de imágenes dentro de un rango de aumento óptimo, utilizando un objetivo de alto NA para asegurar la captura eficiente de la señal de fluorescencia. 5. Iluminación con una fuente de luz de estado sólido para minimizar las fluctuaciones de intensidad que puedan contribuir al ruido de fondo. 6. Detección de señal con una cámara EM-CCD de alta sensibilidad para maximizar la señal de lectura.
Culturas subóptimas contendrán células que no permanecen redondeadas y saludable durante toda la grabación. La hipótesis de que nuestro sustrato ECM, un fragmento de fibronectin1 pez cebra mantiene células en un estado PSM-como indiferenciada, en comparación con otros sustratos comúnmente utilizados como poli-lisina o laminina. Otros sustratos que probamos causados células para aplanar en el cristal y la pérdida de la señal fluorescente oscilante en el transcurso de la grabación. También se encontró que la adición de suero al medio durante la disección, la dispersión,y la grabación no sólo era importante para inactivar la tripsina utilizada para la disociación, pero también aumentó la intensidad de fluorescencia sobre el fondo, probablemente debido a la mejora de la viabilidad celular. Para asegurar la captura óptima de la señal de las células individuales se utilizó un objetivo de 40x diseñado específicamente para imágenes de fluorescencia (Zeiss Plan de serie Neofluor) con un alto NA. También se encontró que una fuente de luz de estado sólido proporciona una iluminación más estable que las lámparas de mercurio tradicionales, lo cual es fundamental para minimizar las fluctuaciones de fondo que contribuyen a imágenes ruidosas. Estas modificaciones son importantes para asegurar resultados consistentes.
El uso de este protocolo se espera culturas en las que la mayoría de las células en un campo dado son fluorescentes en algún momento durante la grabación. Encontramos que las células fluorescentes suelen permanecer redondeada y son a veces muy móviles durante las grabaciones. Unas pocas células, incluyendo las células fluorescentes, pueden llegar a ser apoptótica durante la grabación. Estas células están excluidos de cualquier unanálisis. También excluimos las células que entran en contacto con otras células o movemos fuera del campo de visión. En promedio, se observa una reducción del 12% en el número de células por campo por el final de la grabación 10 horas tal como se mide contando el número de células sanas en el canal de luz transmitida. Esta pérdida incluye tanto la muerte celular y las células que se han trasladado fuera del campo. Dadas estas advertencias, podemos, en promedio, pista 5 células fluorescentes por campo que siguen siendo viables y visibles, y típicamente grabar 6 campos por condición. Por ejemplo, un experimento con 4 condiciones tendrá 24 campos de totales adquiridos y por lo general alrededor de 30 células rastreados por condición. Bajo condiciones estándar de formación de imágenes con medio L15 que contiene suero bovino fetal al 10%, encontramos que las células PSM (n = 101 células de 4 réplicas experimentales) pueden producir entre 2 y 7 picos, con la media y la desviación estándar de 3 ± 1 picos (2 ciclos de -3). El número máximo mediana, así como el percentil 25%, es de 2 picos y el 75% percentil is 3 picos. Utilizando el seguimiento y el análisis semiautomatizado, podemos generar rápidamente la intensidad de fluorescencia sobre los rastros de tiempo para las células individuales de PSM, con un rastro célula representativa se muestra en la figura 2C. Estas trazas primas se pueden utilizar para hacer las mediciones cuantitativas de las propiedades de las células oscilantes PSM, tales como frecuencia, amplitud, número de ciclos, y el momento de picos.
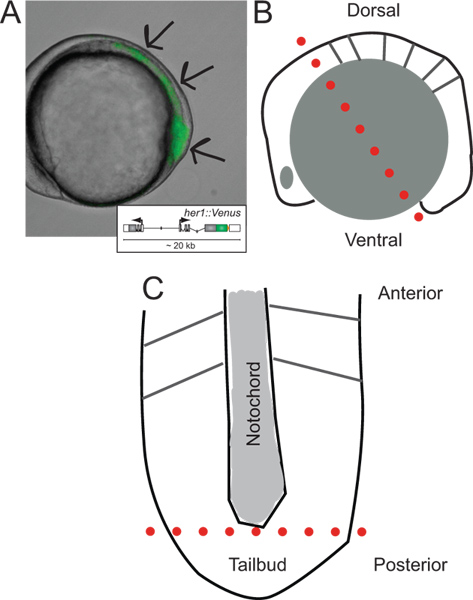
Figura 1. Identificación de embriones transgénicos y esquemas de su disección. (A) Vista lateral de un embrión de pez cebra transgénico que expresa YFP fluorescencia a ~ etapa 5 somitas. La imagen es una superposición de la luz transmitida y el canal de fluorescencia. Las flechas indican las áreas de señal a partir de la punta de la tailbud, a lo largo del PSM, hacia el L ast somito formado. El recuadro muestra un esquema del transgén reportero (para más información sobre su desarrollo y el comportamiento in vivo consulte Soroldoni et al. 30. (B) Esquema de la vista lateral del embrión antes del corte por primera vez durante la disección. Línea roja punteada indica el primer corte realizado a través de la parte posterior del cerebro, aunque la célula yema justo detrás de la tailbud. (C) Representación esquemática de aplanado PSM tras la retirada de los gránulos de yema y capa epidérmica, orientado a lo largo de su eje antero-posterior. línea roja punteada indica el segundo corte para quitar la punta del tailbud para la dispersión y la cultura. Haga clic aquí para ver una versión más grande de esta figura.
07fig2.jpg "/>
Figura 2. Imágenes representativas y las huellas de una sola célula en una cultura PSM dispersa. (A) Montaje de imágenes de luz transmitida de una sola célula PSM en una grabación de lapso de tiempo de 6 h. Tenga en cuenta que la célula sigue siendo redondeado y saludable durante todo el curso de la grabación. (B) correspondiente montaje de imágenes de fluorescencia de una sola célula de PSM. Los picos en la intensidad de la célula se numeran en el transcurso de la grabación. (C) Intensidad media en el tiempo medido a partir de un retorno de la inversión colocado en esta célula. Los valores se toman de cada fotograma en un vídeo con una velocidad de uno por cada 2 minutos usando el círculo interpolador plug-in y macro personalizado escrito en Fiji. Los picos de intensidad se numeran de nuevo a lo largo de la traza. Por favor, haga clic aquí para ver una versión más grande de esta figura.
Discusión
Para estudiar un proceso celular que tiene lugar durante el curso del desarrollo embrionario, los biólogos utilizan típicamente un enfoque en el contexto de todo el embrión. Sin embargo, para entender completamente cómo una sola célula se comporta dentro de un marco de tiempo de desarrollo, un método para examinar y perturbar las células individuales en aislamiento también es muy beneficioso. Mediante la generación de cultivos de células PSM dispersos con embriones de pez cebra transgénico que ahora tenemos una herramienta para estudiar directamente el carácter autónomo de células de oscilaciones genéticos en el reloj de segmentación de una manera cuantitativa. Es posible medir la dinámica de las oscilaciones en nuestro reportero fluorescente en cientos de células bajo una variedad de condiciones.
El período observado de células individuales en cultivo es más largo que el período de somitogenesis en el embrión intacto. Se observa que un explante de PSM intacta en la cultura también exhibe oscilaciones más lento que el embrión intacto (datos no mostrados), lo que sugiere THAT el período más largo observado en células aisladas no es simplemente debido a los daños de la dispersión. Se observa un período variable y amplitud en la mayor parte de nuestra serie de tiempo de una sola célula. El origen de esta variabilidad es desconocida, pero debe revelar detalles importantes sobre circuitos ritmo de decisiones del reloj de segmentación.
Con este método podemos estudiar los componentes genéticos de segmentación a nivel celular, y tratar las cuestiones que son difíciles de examinar en todo el embrión. Por ejemplo, mediante la adición controlada de moléculas de señalización conocidas que se encuentran en el embrión en desarrollo a nuestras culturas, podemos examinar sus efectos en el único oscilador celular de PSM en un ensayo robusto y reproducible. Nuestro sistema de cultivo PSM abre la puerta a una rigurosa evaluación de cuáles son los factores, solos o en combinación promover oscilaciones en estas células, ¿qué factores inhiben estas oscilaciones, y para probar la interacción entre dichas moléculas. Con estas herramientas en la mano, nuestro objetivo esevaluar los modelos existentes de somitogenesis que se basan en los datos publicados a nivel de tejido, así como el uso de los resultados en las células individuales para generar predicciones que pueden ser probados en todo el embrión.
Hasta donde sabemos, este es el primer protocolo de cultivo de células primarias de pez cebra para la grabación de lapso de tiempo agudo de la fluorescencia en células individuales; desarrollo y perfeccionamiento de este protocolo es sin duda posible. Otros protocolos utilizan a menudo embriones de pez cebra para generar líneas celulares estables que pueden ser transfectadas con los reporteros y utilizados para formación de imágenes a largo plazo 27-29. Mientras que las líneas estables son útiles para crear un proceso que no está vinculada a los plazos de desarrollo, como el reloj circadiano, la cuestión de la segmentación embrionaria requiere de imágenes inmediata mientras que las células están todavía en su oscilatoria, estado progenitor. Una vez que las células dejan oscilante, asumen un destino de la célula diferenciada, y cuando en el tejido, se incorpora en un somite. Es POssible que con el factor o los factores presentes en vitro derecho podríamos generar PSM-como las líneas de cultivo de células de pez cebra que permanecerían oscilatorio, lo que permite observaciones significativamente más largo plazo, múltiples perturbaciones secuenciales o cribado de alto rendimiento.
Esperamos que este método de preparación de cultivos primarios de células dispersas para la imagen de lapso de tiempo es muy adecuado para el estudio de cualquier proceso celular que se produce dentro de un marco de tiempo de desarrollo que no es accesible utilizando líneas celulares estables de pez cebra. El aislamiento de los tipos de células diferentes en etapas de desarrollo distintas de las líneas de reportero transgénicos adecuados, ya sea a través de la disección o mediante FACS después de la disociación embrionario, podría proporcionar las células de partida. Algunos optimización de condiciones de cultivo, guiadas por el origen embrionario de las células, puede ser requerida. Al combinar este protocolo flexible y sensible, con el rápido crecimiento de la colección de pez cebra transgénicolíneas, esperamos facilitar un enfoque de la biología del desarrollo in vitro en el que es complementaria a los métodos genéticos y embriológicos clásicos.
Divulgaciones
Contribuciones de autor:
ABW desarrolló y perfeccionó la dispersión, la cultura, las imágenes, y los protocolos de seguimiento de la célula. DS generó las líneas transgénicas y supervisó el diseño del microscopio de fluorescencia de lapso de tiempo utilizado en este protocolo. AO fue pionera en los experimentos iniciales de prueba de principio para disociar las células y la imagen de PSM en la cultura. JS escribió la herramienta plug-in círculo interpolador en Fiji se utiliza para medir la intensidad de fluorescencia de películas a intervalos. ABW y ACO escribió el manuscrito.
Agradecimientos
Este trabajo fue apoyado por un largo plazo beca EMBO (ABW), una Ciencia de la Fundación Internacional de Investigación Postdoctoral Fellowship Nacional (ABW), el Max Planck Gesellschaft (ABW, DS, JS, ACO), una beca DIGS-BB (AO), y el Consejo de Investigación Europeo, en las Comunidades Europeas del Séptimo Programa Marco STG-207634 (DS, ACO). Damos las gracias a Ravi Desai por sus valiosos comentarios sobre el manuscrito. También nos gustaría dar las gracias a la facilidad de expresión de la proteína MPI-CBG para la producción del fragmento de pez cebra Fibronectin1, el personal de las instalaciones de peces MPI-CBG para el cuidado y mantenimiento de nuestras líneas de pescado y las instalaciones de microscopía de luz MPI-CBG para el apoyo de imágenes.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Microscopio de epifluorescencia | Olympus | Modelo: SZX16 | |
| Microscopio de epifluorescencia | X-cite Illumination | Serie: 120Q | |
| Microscopio de disección | Olympus | Modelo: SZX12 | |
| Pinzas finas n.º 55 | Fine Science Tools | 11295-51 | |
| Pipetas de transferencia de vidrio | Assistent | 567/2 | |
| Placas de Petri de plástico de 35 mm Placas de Petri de plástico | Greiner | 627102 | |
| de 60 mm | Polímero Greiner | 628102 | |
| Sylgard | SASCO | ||
| Herramientas de manipulación De | fabricación propia | Para la descripción de las herramientas de manipulación Ref. 22 | |
| Bisturí microquirúrgico | World Precision Instruments | 500249 | |
| L15 medio | Invitrogen | 57322 | |
| Penicilina/estreptomiocina | PAA | P11-010 | |
| Suero fetal bovino | Invitrogen | 257322 | |
| 0,05% tripsina / 0,02% EDTA | PAA | L11-004 | |
| Puntas de carga de gel | Fisher Scientific | 253188 | |
| Sigmacote | Sigma Aldrich | 254589 | |
| Juego de micropipetas | Gilson International | F167300 | |
| Pez cebra Fibronectina1 Fragmento de 70 kD | Instalación | Generado internamente a partir de un constructo basado en un trabajo publicado anteriormente Ref. 23-25 | |
| Platos de imagen con fondo de vidrio | Mattek (pocillo único) | P35G-1.5-14-C | |
| Platos de imagen con fondo de vidrio | Greiner (CellView -multi-well) | 262502 | |
| Medio E3 sin azul de metileno | Hecho internamente | De El libro del pez cebra, 5ª ed. Ref. 26 | |
| Pipetas de transferencia de plástico | Ratiolab | 260011 | |
| Cámara de calentamiento/enfriamiento Warner | EM-CCD TC-324B/344B | Warner Instruments | |
| Andor | Modelo: iXOn 888 | ||
| Microscopio de fluorescencia de campo amplio con juego | de filtros VenusModelo Zeiss | : Axiovert 200M | |
| Microscopio de fluorescencia de campo amplio con juego | NeoFluor 40x, NA 0.75 | ||
| Microscopio de fluorescencia de campo amplio con juego de filtros Venus | Lumencor Light Engine | Modelo: Spectra X | |
| Microscopio de fluorescencia de campo amplio con juego de filtros Venus | BrightLine HC 575/15 | F39-575 |
Referencias
- Cooke, J., Zeeman, E. C. A clock and wavefront model for control of the number of repeated structures during animal morphogenesis. J Theor Biol. 58, 455-476 (1976).
- Oates, A. C., Morelli, L. G., Ares, S. Patterning embryos with oscillations: structure, function and dynamics of the vertebrate segmentation clock. Development. 139, 625-639 (2012).
- Dequeant, M. L., Pourquie, O. Segmental patterning of the vertebrate embryonic axis. Nat Rev Genet. 9, 370-382 (2008).
- Oates, A. C., Gorfinkiel, N., Gonzalez-Gaitan, M., Heisenberg, C. P. Quantitative approaches in developmental biology. Nat Rev Genet. 10, 517-530 (2009).
- Oates, A. C., Ho, R. K. Hairy/E(spl)-related (Her) genes are central components of the segmentation oscillator and display redundancy with the Delta/Notch signaling pathway in the formation of anterior segmental boundaries in the zebrafish. Development. 129, 2929-2946 (2002).
- Lewis, J. Autoinhibition with transcriptional delay: a simple mechanism for the zebrafish somitogenesis oscillator. Curr Biol. 13, 1398-1408 (2003).
- Schroter, C., Oates, A. C. Segment Number and Axial Identity in a Segmentation Clock Period Mutant. Curr Biol. 20, 1254-1258 (2010).
- Riedel-Kruse, I. H., Muller, C., Oates, A. C. Synchrony dynamics during initiation, failure, and rescue of the segmentation clock. Science. 317, 1911-1915 (2007).
- Ozbudak, E. M., Lewis, J. Notch signalling synchronizes the zebrafish segmentation clock but is not needed to create somite boundaries. PLoS Genet. 4, e15(2008).
- Herrgen, L., et al. Intercellular Coupling Regulates the Period of the Segmentation Clock. Curr Biol. 20, 1244-1253 (2010).
- Sawada, A., et al. Fgf/MAPK signalling is a crucial positional cue in somite boundary formation. Development. 128, 4873-4880 (2001).
- Giudicelli, F., Ozbudak, E. M., Wright, G. J., Lewis, J. Setting the tempo in development: an investigation of the zebrafish somite clock mechanism. PLoS Biol. 5, e150(2007).
- Herrgen, L., Schroter, C., Bajard, L., Oates, A. C. Multiple embryo time-lapse imaging of zebrafish development. Methods Mol Biol. 546, 243-254 (2009).
- Hirata, H., et al. Oscillatory expression of the bHLH factor Hes1 regulated by a negative feedback loop. Science. 298, 840-843 (2002).
- Maroto, M., Dale, J. K., Dequeant, M. L., Petit, A. C., Pourquie, O. Synchronised cycling gene oscillations in presomitic mesoderm cells require cell-cell contact. Int J Dev Biol. 49, 309-315 (2005).
- Reppert, S. M., Weaver, D. R. Coordination of circadian timing in mammals. Nature. 418, 935-941 (2002).
- Welsh, D. K., Imaizumi, T., Kay, S. A. Real-time reporting of circadian-regulated gene expression by luciferase imaging in plants and mammalian cells. Methods Enzymol. 393, 269-288 (2005).
- Soroldoni, D., Oates, A. C. Live transgenic reporters of the vertebrate embryo's Segmentation Clock. Curr Opin Genet Dev. 21, 600-605 (2011).
- Masamizu, Y., et al. Real-time imaging of the somite segmentation clock: revelation of unstable oscillators in the individual presomitic mesoderm cells. Proc Natl Acad Sci USA. 103, 1313-1318 (2006).
- Soroldoni, D., Hogan, B. M., Oates, A. C. Simple and efficient transgenesis with meganuclease constructs in zebrafish. Methods in molecular biology. 546, 117-130 (2009).
- Schroter, C., et al. Dynamics of zebrafish somitogenesis. Dev Dyn. 237, 545-553 (2008).
- Picker, A., Roellig, D., Pourquie, O., Oates, A. C., Brand, M. Tissue micromanipulation in zebrafish embryos. Methods in molecular biology. 546, 153-172 (2009).
- Mould, A. P., et al. Identification of multiple integrin beta1 homologs in zebrafish (Danio rerio). BMC Cell Biol. 7, 24(2006).
- Mould, A. P., Koper, E. J., Byron, A., Zahn, G., Humphries, M. J. Mapping the ligand-binding pocket of integrin alpha5beta1 using a gain-of-function approach. Biochem J. 424, 179-189 (2009).
- Zhao, Q., Liu, X., Collodi, P. Identification and characterization of a novel fibronectin in zebrafish. Exp Cell Res. 268, 211-219 (2001).
- Westerfield, M. In The zebrafish book : a guide for the laboratory use of zebrafish (Brachydanio rerio). , (1993).
- Vallone, D., Santoriello, C., Gondi, S. B., Foulkes, N. S. Basic protocols for zebrafish cell lines: maintenance and transfection. Methods Mol Biol. 362, 429-441 (2007).
- Carr, A. J., Whitmore, D. Imaging of single light-responsive clock cells reveals fluctuating free-running periods. Nat Cell Biol. 7, 319-321 (2005).
- Whitmore, D., Foulkes, N. S., Sassone-Corsi, P. Light acts directly on organs and cells in culture to set the vertebrate circadian clock. Nature. 404, 87-91 (2000).
- Soroldoni, D., et al. A Doppler effect in embryonic pattern formation. Science. 345, DOI. 222-225 (1126).
Reimpresiones y permisos
