El tráfico de membrana implica el transporte de proteínas desde la membrana plasmática hasta el interior de la célula (es decir, endocitosis) seguido de un tráfico a los lisosomas para su degradación o a la membrana plasmática para su reciclaje. Los métodos descritos en este artículo están diseñados para estudiar la endocitosis y el reciclaje de las proteínas de la membrana plasmática.
Artículo de método
Los ensayos de protección de L-glutatión basados en células para estudiar la endocitosis y el reciclaje de proteínas de la membrana plasmática
En este artículo
Resumen
Resumen
El tráfico de membrana implica el transporte de proteínas desde la membrana plasmática hasta el interior de la célula (es decir, endocitosis) seguido de un tráfico a los lisosomas para su degradación o a la membrana plasmática para su reciclaje. Los ensayos de protección contra el L-glutatión basados en células pueden utilizarse para estudiar la endocitosis y el reciclaje de los receptores de proteínas, los canales, los transportadores y las moléculas de adhesión localizadas en la superficie celular. El ensayo endocítico requiere el marcaje de las proteínas de la superficie celular con una biotina impermeable a la membrana celular que contiene un enlace disulfuro y el éster de N-hidroxisuccinimida (NHS) a 4 ºC, una temperatura a la que no se produce el tráfico de membrana. La endocitosis de las proteínas biotiniladas de la membrana plasmática se induce por incubación a 37 ºC. A continuación, se vuelve a disminuir la temperatura a 4 ºC para detener el tráfico endocítico y se reduce con L-glutatión el enlace disulfuro en la biotina unido covalentemente a las proteínas que han permanecido en la membrana plasmática. En este punto, solo las proteínas que fueron endocitadas permanecen protegidas del L-glutatión y, por lo tanto, permanecen biotiniladas. Después de la lisis celular, las proteínas biotiniladas se aíslan con estreptavidina agarosa, eluida de agarosa, y la proteína biotinilada de interés se detecta mediante Western blot. Durante el ensayo de reciclaje, después de la biotinilación, las células se incuban a 37 ºC para cargar las vesículas endocíticas con proteínas biotiniladas y el enlace disulfuro en la biotina unido covalentemente a las proteínas que quedan en la membrana plasmática se reduce con L-glutatión a 4 ºC como en el ensayo endocítico. A continuación, las células se incuban de nuevo a 37 °C para permitir que las proteínas biotiniladas de las vesículas endocíticas se reciclen a la membrana plasmática. A continuación, las células se incuban a 4 ºC y el enlace disulfuro de la biotina unido a las proteínas que se reciclan en las membranas plasmáticas se reduce con L-glutatión. Las proteínas biotiniladas protegidas del L-glutatión son aquellas que no se reciclan a la membrana plasmática.
Introducción
Todas las células vivas procesan información mediante el tráfico de carga, como ligandos extracelulares, microorganismos, nutrientes, proteínas transmembrana y lípidos desde la membrana plasmática hasta las vesículas endocíticas (es decir, endocitosis). Un proceso recíproco llamado reciclaje equilibra la endocitosis y devuelve gran parte de la membrana internalizada y la carga a la superficie celular. El equilibrio entre endocitosis y reciclaje controla la composición de la membrana plasmática y proporciona a las células información que se ha resuelto en el tiempo y el espacio. La endocitosis y el reciclaje son reguladores maestros de diversas funciones celulares como la absorción de nutrientes y el metabolismo, el desarrollo, la proliferación, la diferenciación y la polaridad, la reprogramación, la migración, la adhesión y migración celular, la citocinesis y la neurotransmisión1-3. Las vías endocíticas y de reciclaje son muy dinámicas y altamente coordinadas y permiten que las células revuelvan el equivalente a toda la membrana plasmática de 1 a 5 veces por hora.
Los ensayos de protección de L-glutahione basados en células son útiles para estudiar la endocitosis y el reciclaje de proteínas transmembrana, incluidos receptores, canales, transportadores y moléculas de adhesión en células epiteliales y no epiteliales4-8. Previamente hemos estudiado la endocitosis y el reciclaje del Regulador de la Conductancia Transmembrana de la Fibrosis Quística (CFTR) en células epiteliales de las vías respiratorias humanas y células HEK2939-15. Los ensayos basados en biotinilación descritos en el manuscrito están optimizados para examinar la endocitosis y el reciclaje en células epiteliales cultivadas en condiciones de polarización sobre soportes de crecimiento semipermeables. Estos protocolos pueden modificarse para estudiar la endocitosis y el reciclaje de proteínas en células epiteliales cultivadas en placas de cultivo de tejidos plásticos o en células no epiteliales. Las figuras 1 y 2 contienen ejemplos de ensayos endocíticos y de reciclaje en células epiteliales y no epiteliales.
Los ensayos endocíticos se realizan como se describió anteriormente9-15. Las células se cultivan en soportes de crecimiento semipermeables recubiertos de colágeno11,14. Alternativamente, las células se pueden cultivar en placas de cultivo de tejidos plásticos recubiertos de colágeno10,15. Las células se enfrían rápidamente a 4 ºC para detener el tráfico de membrana y las proteínas de la membrana plasmática se marcan a 4 °C con una biotina impermeable a la membrana celular. La biotina reacciona con ε-amina de los residuos de lisina y el enlace disulfuro es tiol-escindible. Después de la biotinilación, las células se incuban a 37 °C para inducir el tráfico de proteínas y cargar las vesículas endocíticas durante 2,5, 5,0, 7,5 o 10 minutos. Posteriormente, las células se enfrían a 4 °C y el enlace disulfuro de la biotina unido covalentemente a las proteínas de la membrana plasmática se reduce con L-glutatión (GSH). En este punto del protocolo, solo las proteínas que fueron endocitadas de la membrana plasmática están protegidas del GSH y, por lo tanto, permanecen biotiniladas. Las células que permanecen a 4 ºC después de la biotinilación sin incubación a 37 ºC o el tratamiento con GSH servirían para determinar la cantidad de CFTR biotinilado en el tiempo cero. Las células que permanecen a 4 ºC después de la biotinilación sin incubación a 37 ºC pero con tratamiento con GSH servirían para determinar la eficiencia de la reducción de los enlaces disulfuro. Después de los tratamientos descritos anteriormente, las células se lisan, las proteínas biotiniladas se aíslan mediante estreptavidina agarosa, se eluyen en el tampón de muestra SDS y se separan mediante SDS-PAGE. La proteína de interés se detecta en las muestras biotiniladas mediante Western blot. La cantidad de proteína biotinilada a 4 ºC en el tiempo cero (sin el calentamiento de 37 ºC) se considera del 100%. La cantidad de proteína que queda biotinilada después del tratamiento con GSH a 4 ºC se considera de fondo y se resta de la cantidad de proteína que queda biotinilada después de calentarse a 37 ºC en diferentes puntos temporales. La endocitosis proteica se calcula después de restar el fondo y se expresa como el porcentaje de proteína biotinilada en cada punto de tiempo después del calentamiento a 37 ºC en comparación con la cantidad de proteína biotinilada presente en el tiempo cero.
Los ensayos de reciclaje se realizan como se describió anteriormente11,16. Las células se cultivan en soportes de crecimiento semipermeables recubiertos de colágeno11. Alternativamente, las células pueden cultivarse en placas de cultivo de tejidos de plástico recubiertas de colágeno13. Las células se calientan a 37 °C después de la biotinilación para cargar las vesículas endocíticas con proteínas biotiniladas. El momento de la primera incubación a 37 ºC viene determinado por el momento en que la endocitosis de la proteína de interés alcanza su máximo durante el aumento lineal de la señal endocítica. El tiempo es específico de la proteína y puede depender del tipo de célula y de las condiciones de cultivo celular. En nuestra experiencia, la endocitosis CFTR alcanzó su máximo a los 5,0 o 7,5 min13,14 (Figuras 1 y 2). Posteriormente, las células se enfrían inmediatamente a 4 °C y el enlace disulfuro de la biotina unido a las proteínas de la membrana plasmática se reduce con GSH. A continuación, las células se lisan para determinar la cantidad de proteína endocitosada de interés o se calientan de nuevo a 37 °C durante diferentes períodos de tiempo para permitir que la proteína biotinilada endocitosada de interés se recicle a la membrana plasmática. A continuación, las células se enfrían de nuevo a 4 °C, y el enlace disulfuro de la biotina unido a las proteínas recicladas en las membranas plasmáticas se reduce con GSH. El reciclaje de la proteína de interés se determina a partir de la diferencia entre la cantidad de proteína biotinilada después del primer y segundo tratamiento con GSH.
La viabilidad de los ensayos endocíticos y de reciclaje depende de varios factores. En primer lugar, la formación de monocapas celulares es un requisito previo y las células que no forman monocapas o crecen como multicapas no son adecuadas para los ensayos descritos en este manuscrito. En segundo lugar, la abundancia de la proteína de interés en la superficie celular y la presencia de un anticuerpo para detectar la proteína mediante Western blot son críticas. Recomendamos que la abundancia de la proteína en estado estacionario se determine primero en lisados de células enteras (WCL). En tercer lugar, se debe probar la capacidad de biotinilar la proteína específica de la superficie celular. La biotina se adhiere a los residuos de lisina. Por lo tanto, la eficiencia de la biotinilación depende en parte del número de residuos de lisina en el dominio extracelular de la proteína. En consecuencia, recomendamos examinar la secuencia de proteínas para determinar si los residuos de lisina están presentes en los dominios extracelulares. No todos los residuos de lisina de dominio extracelular pueden ser igualmente accesibles a la biotina debido al plegamiento de proteínas. Por lo tanto, la biotinilación de proteínas en estado estacionario seguida de Western blot debe realizarse para determinar no solo la abundancia de la proteína en estado estacionario en la superficie celular, sino también para examinar la viabilidad de los ensayos basados en biotinilación para la proteína de interés.
Este protocolo está optimizado para examinar la endocitosis y el reciclaje de CFTR de tipo salvaje en células epiteliales de las vías respiratorias humanas CFBE41o- cultivadas en soportes de crecimiento semipermeables de 24 mm en la interfaz aire-líquido9,10,13-15. CFTR se polariza al dominio de la membrana apical; Por lo tanto, el protocolo describe la biotinilación del dominio de la membrana apical. La biotinilación del dominio de la membrana basolateral será necesaria para estudiar la endocitosis y el reciclaje de las proteínas que se polarizan a la membrana basolateral. El protocolo de ensayo endocítico descrito en este manuscrito tiene 6 condiciones: Biotinilado solo (BT = tiempo cero; muestra a); Control GSH (GSH; muestra b); y los puntos de tiempo endocíticos de 2,5, 5,0, 7,5 o 10 min (muestras C; Tabla 1). El número y/o la duración de los puntos de tiempo endocíticos en el protocolo se pueden modificar según sea necesario.
El ensayo de reciclaje se realiza después de determinar el momento en que la endocitosis de la proteína de interés alcanza su máximo durante el aumento lineal de la señal endocítica. Este punto de tiempo se utilizará para cargar las vesículas endocíticas con la proteína de interés antes de inducir el reciclaje. El tiempo depende de la proteína y puede diferir según el tipo de célula y las condiciones de cultivo15. Hemos establecido previamente que la endocitosis de CFTR alcanzó la meseta en el punto de tiempo de 7,5 min en las células epiteliales de las vías respiratorias humanas CFBE41 que expresan CFTR15 de manera estable. Por el contrario, la endocitosis de CFTR alcanzó la meseta en el punto de tiempo de 5,0 min en las células HEK293 que expresan CFTR13 de manera estable. El protocolo de ensayo de reciclaje descrito en este manuscrito tiene 5 condiciones: solo biotinilado (BT = tiempo cero; muestra a); Control GSH (GSH; muestra b); 5,0 min endocitosis (Endo; muestra c), 5,0 min endocitosis seguida de los puntos de tiempo de reciclaje de 2,5 o 5,0 min (Rec; muestras d; Tabla 2). El número y/o la duración de los puntos de tiempo de reciclaje en el protocolo se pueden modificar según sea necesario.
Protocolo
1. Células de siembra
- Pretratar los filtros de 24 mm con un 10% de colágeno I (preparar un 10% de colágeno I en un medio esencial mínimo (MEM), cubrir toda la superficie del filtro con la solución de colágeno, incubar bajo la luz ultravioleta a temperatura ambiente durante 30 min, y en una incubadora de cultivo celular a 37 ºC durante 1 hora, aspirar el exceso de colágeno después de la incubación).
- Preparar el medio de cultivo celular (MEM gaseado con CO2 durante 20 min, 10% de suero fetal bovino (FBS), 50 U/ml de penicilina, 50 U/ml de estreptomicina, 2 mM de L-glutamina, 0,5 μg/ml de puromicina)
- Siembre las células CFBE41o- en seis filtros de 24 mm para endocitosis y reciclaje, respectivamente, a 1 x 10⁶/filtro.
- Retire el medio apical el día después de la siembra y aliméntelo diariamente solo desde el lado basolateral.
- Alimente con medio antibiótico negativo de selección 24 horas antes del experimento. Realice el experimento en células CFBE41o- 6-10 días después de la siembra.
2. Preparativos antes del experimento (similar para el ensayo de endocitosis y reciclaje)
- Instala un espacio de banco en la cámara frigorífica. Los ensayos endocíticos y de reciclaje deben realizarse en la cámara frigorífica, excepto la incubación a 37 °C. Las placas que contienen los filtros de 24 mm deben colocarse directamente sobre la mesa de trabajo de la cámara frigorífica.
- Enciende la incubadora a 37 ºC.
- Preparar 500 ml de PBS++, pH 8,2 (solución salina tamponada con fosfato (PBS) de Dulbecco, 1 mM de cloruro de magnesio y 0,1 mM de cloruro de calcio, pH 8,2) y conservar 250 ml a 37 °C en una incubadora y 250 ml a 4 °C en la cámara frigorífica.
- Llene los pocillos en una placa de 6 pocillos con PBS++, pH 8,2, 37 °C y manténgalos en la incubadora a 37 °C.
- Llene los pocillos en otra placa de 6 pocillos con PBS++, pH 8,2, 4 °C y manténgalos en la cámara frigorífica a 4 °C.
- Preparar 100 ml de PBS++, pH 8,6 a 4 °C y conservar en la cámara frigorífica.
- Prepare biotina que contenga el enlace disulfuro y el éster NHS a una concentración de 0,8 mg/ml en PBS++, pH 8,2, 4 °C dentro de los 30 minutos posteriores a la etapa de biotinilación (el volumen de tampón de biotina debe cubrir completamente toda la superficie del filtro); recomendamos un filtro de 1,5 ml/24 mm.
- Preparar 100 ml de tampón GSH en agua, pH 8,6 y enfriar a 4 ºC (75 mM de cloruro de sodio, 1 mM de cloruro de magnesio y 0,1 mM de cloruro de calcio, 50 mM de GSH, 80 mM de hidróxido de sodio y 10% de FBS). El GSH y el hidróxido de sodio deben agregarse justo antes del experimento. Compruebe el pH y ajústelo a 8,6; El hidróxido de sodio neutraliza los grupos carboxilo y deprotona la mitad de los residuos de cisteína en el glutatión. Está fuertemente amortiguado en el pKa de esta cisteína, que es 8.64. (Prepare el mismo volumen de tampón GSH para el ensayo de reciclaje).
- Preparar 50 ml de tampón de lisis, pH 8,2 y mantener a 4 °C (25 mM HEPES, pH 8,2, 1% (v/v) Triton X-100, 10% (v/v) glicerol); añadir Complete cóctel de inhibidores de la proteasa por 50 ml de tampón de lisis y enfriar a 4 ºC; comprobar el pH después de añadir Complete ya que puede producirse una caída del pH.
- Prepare el tampón de muestras Laemli con DTT de 100 mM.
- Prepare 1x Tampón de funcionamiento (100 ml de 10x Tampón de funcionamiento, 900 ml de agua).
- Preparar 1x Tampón de Transferencia y enfriar a 4 ºC (100 ml de 10x Tampón de Transferencia sin dodecil sulfato de sodio (SDS), 200 ml de metanol, 700 ml de agua).
3. Ensayo endocítico
CFTR se polariza al dominio de la membrana apical; por lo tanto, el protocolo describe la biotinilación del dominio de la membrana apical. La biotinilación del dominio de la membrana basolateral será necesaria para estudiar la endocitosis de las proteínas que se polarizan a la membrana basolateral.
Flujo de trabajo: Biotinilación de proteínas de la superficie celular a 4 ºC → Calentamiento a 37 ºC para cargar vesículas endocíticas con proteínas biotiniladas → Enfriamiento a 4 ºC para detener el tráfico endocítico → Reducción del enlace disulfuro en la biotina unida a las proteínas que han permanecido en la superficie celular → Lisis celular → Aislamiento de biotinilados (i.e. endocitos) proteínas con estreptavidina agarosa → Elución de proteínas biotiniladas a partir de estreptavidina agarosa → Electroforesis de proteínas y western blot.
- Traer la placa que contiene seis filtros de 24 mm (Tabla 1: muestras a-c) de la incubadora de cultivos celulares y transferir rápidamente a la placa llena de PBS++ frío (4 ºC), pH 8,2 en hielo.
- Deje que PBS++ desborde la superficie apical para cubrir rápidamente toda la superficie. Lleve el plato en hielo a la cámara frigorífica y colóquelo en la mesa de trabajo.
- Retire PBS++ rápidamente girando la placa boca abajo, sosteniendo los filtros en su lugar para evitar que se caigan. Añadir ~2 ml de PBS++ en el lado apical y basolateral.
- Lave los filtros con ~2 ml de PBS++ frío, pH 8.2 3x durante 2 min. Succionar el lavado de un lado a la vez, apical o basolateral y agregue PBS++, pH 8.2 fresco a un lado a la vez.
- Aspirar el último lavado y añadir 1 ml de PBS++, pH 8,2 en el lado basolateral. Añadir 1,5 ml del tampón de biotina en el lado apical e incubar en la oscuridad durante 30 min. Evite derramar tampones hacia el lado contralateral.
- Succionar el tampón de biotina por el lado apical y lavar con PBS++, pH 8,2 3x durante 2 min.
- Reservar en una placa diferente dos filtros (Tabla 1: muestras a y b), añadir ~2 ml de PBS++, pH 8,2 en el lado apical y basolateral y mantener en la cámara frigorífica. Mantenga los 4 filtros restantes en una placa (Tabla 1: muestras c) y agregue ~ 2 ml de PBS ++ pH 8.2 en el lado apical y basolateral de cada filtro. Coloque la placa en hielo y llévela a la mesa de trabajo junto a la incubadora a 37 ºC.
- Transfiera rápidamente los filtros del hielo a la placa en la incubadora de 37 ºC llena de PBS++ precalentado pH 8.2 e incube un filtro cada uno con precisión de 2.5, 5.0, 7.5 o 10 minutos cubriendo toda la superficie de cada filtro con PBS++ pH 8.2 caliente.
- Durante la incubación, llene completamente cuatro pocillos de la placa sobre hielo con PBS++ pH frío (4 ºC) 8,2.
- Pasado el tiempo de incubación indicado, dar la vuelta a cada filtro para escurrir el PBS++ tibio (37 ºC), pH 8,2 y transferir a la placa con hielo. Añadir PBS++ frío, pH 8,2 para desbordar el lado apical y cubrir rápidamente toda la superficie de cada filtro.
- Después de transferir los filtros al hielo, lleve la placa a la cámara frigorífica y colóquela en la mesa de trabajo.
- Aspirar PBS++ por ambos lados en todos los filtros (muestras a-c) y llenar el lado basolateral con 1 ml de PBS++ pH 8,6. Añadir 1,5 ml de PBS++, pH 8,6 en el lado apical del filtro a (Tabla 1: muestra a).
- Reducir el enlace disulfuro en la biotina unida a las proteínas de la membrana apical con el tampón GSH (pH 8,6) en los filtros b y c (Tabla 1: muestra b y c).
- Añadir 1,5 ml del tampón GSH en el lado apical, incubar durante 15 minutos y repetir seis veces.
- Mantenga 1 ml de PBS++ pH 8.6 en el lado basolateral. Evite derramar el tampón hacia el lado basolateral.
- Después de completar el procedimiento 3.15, lave todos los filtros (Tabla 1: muestras a, b y c) brevemente con PBS++ pH 8.2 2x, succione el lavado desde el lado apical y basolateral y coloque la placa con filtros en un ángulo de 45° para drenar todo el lavado y succionar nuevamente.
- Coloque la placa plana sobre la mesa de trabajo y agregue 500 μl de tampón de lisis en el lado apical de cada filtro e incube en la cámara frigorífica agitando durante 15 min.
- Raspe las celdas con un policía de goma y recójalas en un tubo Eppendorf de 1,5 ml.
- Centrifugar a 14.000 x g durante 10 min a 4 °C.
- Transfiera los sobrenadantes a tubos nuevos de 1,5 ml y deseche los gránulos. Los sobrenadantes ahora se denominan lisados de células enteras (WCL).
- Añadir 100 μl de tampón de muestra Laemli con DTT a 50 μl de WCL (10% de todo el WCL) e incubar a 37 °C durante 30 min (muestras WCL).
- Preparar 200 μl de alícuotas de estreptavidina agarosa al 50% y retirar todo el tampón de lavado con una aguja de 27 G conectada a una succión: lavar 2 veces con 1 ml de PBS, perlas de pellets con centrifugado de pulso entre los lavados; lavar una vez con 1 ml de tampón de lisis para equilibrar antes de añadir WCL; secar la agarosa por succión antes de añadir WCL.
- Incubar el WCL restante con estreptavidina agarosa lavada (aumentar el volumen hasta 1,2 ml con tampón de lisis y girar en la oscuridad durante al menos 2 horas o O/N en la cámara frigorífica).
- Lave los complejos de proteínas estreptavidina-agarosa-biotiniladas tres veces con 1 ml de tampón de lisis (no es necesario que el tampón de lisis contenga Complete durante el lavado), centrifugar la agarosa entre lavados y secar por succión después del último lavado.
- Incubar los complejos proteicos estreptavidina-agarosa-biotiniladas con 65 μl de tampón de muestra Laemli con DTT a 85 °C durante 5 min.
- Pulso, centrifugar y recoger los complejos de proteínas biotiniladas eluidos.
- Cargue geles al 7,5% con 40 μl de las muestras de WCL y todo el volumen de las muestras biotiniladas (BT) por pocillo.
- Ejecute geles a 120 V en SDS que contiene tampón de ejecución.
- Transfiera proteínas a una membrana de PVDF a 90-95 V durante 1,5 horas (hasta <400 A) en un tampón de transferencia sin SDS.
- Bloque en leche descremada al 5% en TBS-T 0.1% O/N. Seque ambas membranas con anticuerpo monoclonal de ratón anti-CFTR CFF596 y un anticuerpo secundario conjugado con HRP anti-ratón de cabra.
- Realizar quimioluminiscencia. Vuelva a secar ambas membranas con un anticuerpo anti-ezrina o anti-actina.
4. Ensayo de reciclaje
Flujo de trabajo: Biotinilación de proteínas de la superficie celular a 4 ºC → Calentamiento a 37 ºC para cargar vesículas endocíticas con proteínas biotiniladas → Enfriamiento a 4 ºC para detener el tráfico endocítico → Reducción del enlace disulfuro en la biotina unida a las proteínas que han permanecido en la superficie celular → Calentamiento a 37 °C para permitir que las proteínas biotiniladas de las vesículas endocíticas se reciclen en la superficie celular → Enfriamiento a 4 ºC para detener el tráfico endocítico → Reducción del enlace disulfuro en la biotina unida a las proteínas que se han reciclado en la superficie celular → Lisis celular → Aislamiento de proteínas biotiniladas (es decir, aquellas que no se han reciclado) con estreptavidina agarosa → Elución de proteínas biotiniladas a partir de estreptavidina agarosa → Electroforesis de proteínas y western blot.
- Biotinilar las proteínas de la superficie apical en cinco filtros de 24 mm (Tabla 2: muestras a-d) siguiendo el procedimiento descrito en el ensayo endocítico (sección 3.1-3.6).
- En la cámara frigorífica, coloque en una placa nueva dos filtros (Tabla 2: muestras a y b), agregue ~ 2 ml de PBS ++, pH 8.2 en el lado apical y basolateral y mantenga en la cámara frigorífica.
- Mantenga los 3 filtros restantes en una placa (Tabla 2: muestras c y d) con ~2 ml de PBS++ pH 8.2 en el lado apical y basolateral de cada filtro. Coloque la placa con los filtros c y d sobre hielo y llévela al banco fuera de la incubadora a 37 ºC.
- Transfiera rápidamente los filtros de la placa en hielo a la placa llena de PBS++ precalentado pH 8.2 en la incubadora y manténgalos durante 5.0 min.
- Durante la incubación, llene 3 pocillos de la placa en hielo con PBS++ pH 8,2 frío (4 ºC).
- Transfiera los filtros después de la incubación de 5,0 min a 37 ºC a la placa en hielo. Deje que el frío PBS++ pH 8.2 desborde el lado apical y cubra toda la superficie de cada filtro rápidamente.
- Lleve el plato en hielo a la cámara frigorífica y colóquelo en la mesa de trabajo.
- Aspire PBS++ pH 8.2 desde ambos lados de los filtros a, b, c y d y agregue 1 ml de PBS++ pH 8.6 en el lado basolateral.
- Mantenga los filtros a y b separados de los filtros c y d. Agregue 1 ml de PBS++ pH 8.6 al lado apical de los filtros a y b.
- Reducir el enlace disulfuro de la biotina que queda en la superficie celular en los filtros b, c y d siguiendo el procedimiento descrito en el ensayo endocítico (pasos 3.13-3.15).
- Lave brevemente los filtros b, c y d con PBS++ pH 8.2 2x y reemplácelos con PBS++ fresco, pH 8.2. Coloque los filtros d en una placa nueva y lleve hielo a la mesa de trabajo fuera de la incubadora a 37 ºC.
- Transfiera rápidamente los filtros de la placa en hielo a la placa en la incubadora llena de PBS++ precalentado pH 8.2 e incube un filtro cada uno con precisión durante 2.5 o 5.0 min como se describe anteriormente en los pasos 4.4-4.9.
- Reducir el enlace disulfuro en la biotina unida a las proteínas de la membrana apical con el tampón GSH después de la segunda incubación a 37 ºC en filtros d como se describe en 4.4 con la excepción de que solo se realizarán tres incubaciones de 15 min con el tampón GSH durante este paso. Mantenga los filtros a, b y c en PBS++ pH 8.6 en el lado apical y basolateral durante este paso.
- Para la lisis celular y la Western blot, siga los procedimientos descritos en el ensayo endocítico (pasos 3.16-3.31).
Resultados
Se estudió la endocitosis de CFTR en células CFBE41o- cultivadas en filtros recubiertos con colágeno (Figura 1). El CFTR biotinilado se visualizó mediante inmunotransferencia con un anticuerpo monoclonal de ratón, clon 596, y un anticuerpo anti-ratón conjugado con peroxidasa de rábano picante, utilizando el sistema de detección para inmunotransferencia seguido de quimioluminiscencia. La cuantificación del CFTR biotinilado se realizó mediante densitometría utilizando exposiciones dentro del rango dinámico lineal del filme. La endocitosis de CFTR se calculó tras restar el fondo y se expresó como el porcentaje de CFTR biotinilado en cada punto de tiempo después del calentamiento a 37 ºC en comparación con la cantidad de CFTR biotinilado presente en el tiempo cero (Figuras 1A y 1B). La endocitosis de CFTR fue lineal entre 0 y 7,5 min. Se excluyeron experimentos en los que el fondo de CFTR fuera >10% debido a un tratamiento ineficaz con GSH (Figura 1D).
Se estudió el reciclaje de CFTR en células HEK293 cultivadas en placas de cultivo tisular recubiertas con colágeno (Figura 2). La endocitosis de CFTR fue lineal entre 0,0 y 5,0 min y alcanzó un máximo en el punto temporal de 5,0 min (Figura 2A); por lo tanto, las células se incubaron a 37 ºC durante 5,0 min para cargar las vesículas endocíticas con proteínas biotiniladas, incluyendo CFTR (Figuras 2B y 2C). El reciclaje de CFTR endocitado se calculó como la diferencia entre la cantidad de CFTR biotinilado después del primer y segundo tratamiento con GSH.
Tabla 1. Ensayos endocíticos.
| Endocitosis | BT | GSH | Endo-2.5 | Endo-5.0 | Endo-7.5 | Endo-10.0 |
| Muestra | a | b | c2.5 | c5.0 | c7.5 | c10.0 |
| Biotina | + | + | + | + | + | + |
| 37 ºC | (-) | (-) | 2.5 min | 5.0 min | 7.5 min | 10 min |
| GSH | (-) | + | + | + | + | + |
Tabla 2. Ensayo de reciclaje.
| Reciclaje | BT | GSH | Endo-5 | Rec-2.5 | Rec-5.0 |
| Muestra | a | b | c | d2.5 | d5.0 |
| Biotina | + | + | + | + | + |
| 1.ª 37 ºC | (-) | (-) | 5 min | 5 min | 5 min |
| 1.º GSH | (-) | (-) | + | + | + |
| 2.ª 37 ºC | (-) | (-) | + | + | + |
| 2.º GSH | (-) | (-) | (-) | 2.5 min | 5 min |
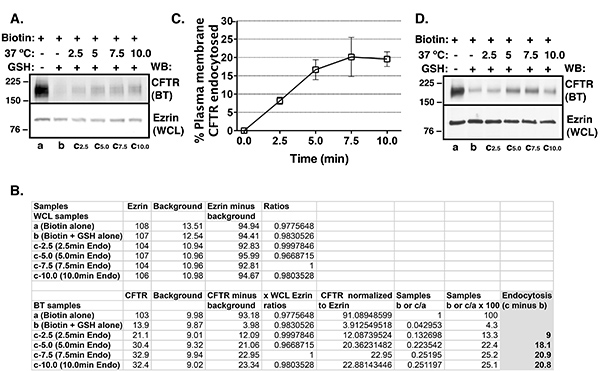
Figura 1. Resumen de los ensayos endocíticos realizados para determinar la endocitosis de CFTR en células CFBE41o-. Las células se cultivaron sobre filtros recubiertos con colágeno. Inmunotransferencias representativas (A), valores representativos de densitometría (B) y resumen de los experimentos (C) que muestran la endocitosis de CFTR en función del tiempo. Se utilizó biotinilación selectiva de la superficie celular e inmunotransferencia para determinar la abundancia de CFTR en la membrana plasmática. La abundancia proteica se cuantificó mediante densitometría utilizando exposiciones dentro del rango dinámico lineal de la película. En el tiempo cero, la cantidad de CFTR biotinilado (BT) se consideró como el 100% (Tabla 1: muestra a). En el tiempo cero, la cantidad de CFTR BT restante tras el tratamiento con GSH se consideró un fondo de CFTR (muestra b; obsérvese que este es un fondo diferente al que se restó de todas las muestras, como se muestra en la Figura 1B). El fondo de CFTR fue del 6,7 ± 0,9% (media ± E.E.M.) en los experimentos incluidos para el análisis. El fondo de CFTR se restó del CFTR BT tras el calentamiento durante 2,5, 5,0, 7,5 o 10 min a 37 ºC (muestra c menos muestra b). La endocitosis de CFTR se expresó como el porcentaje de CFTR que permaneció biotinilado en los puntos temporales de 2,5, 5,0, 7,5 o 10 min tras restar el fondo de CFTR. La endocitosis de CFTR fue lineal entre cero y 7,5 min. La abundancia de ezrina en el lisado total de células (WCL) se utilizó como control de carga. Cuatro experimentos por grupo. Se excluyeron experimentos en los que el fondo de CFTR fue >10% debido a un tratamiento ineficaz con GSH (D). La cantidad de CFTR biotinilado en el control con GSH (muestra b) en el experimento excluido fue del 14,5%.
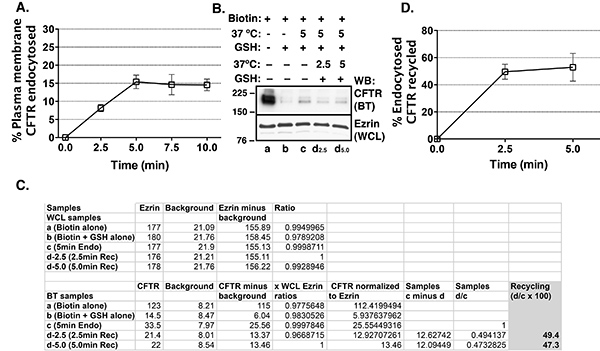
Figura 2. Resumen de los ensayos de endocitosis y reciclaje realizados en células HEK293 que expresan establemente CFTR. Las células se cultivaron en placas de cultivo tisular recubiertas con colágeno. Resumen de los datos que demuestran que la endocitosis de CFTR fue lineal entre 0 y 5 min (A). Por lo tanto, en los ensayos de reciclaje, las vesículas endocíticas se cargaron con proteínas biotiniladas (BT), incluyendo CFTR, mediante incubación a 37 ºC durante 5 min. La abundancia proteica se cuantificó mediante densitometría utilizando exposiciones dentro del rango dinámico lineal de la película. Inmunotransferencia representativa (B), valores representativos de densitometría (C) y resumen de los experimentos (D) que demuestran el reciclaje de CFTR en función del tiempo. En el tiempo cero, la cantidad de CFTR-BT se consideró como el 100 % (Tabla 2: muestra a). En el tiempo cero, la cantidad de CFTR-BT restante tras el tratamiento con GSH se consideró como fondo de CFTR (muestra b; obsérvese que este es un fondo diferente al que se restó de todas las muestras, como se muestra en C). Se excluyeron los experimentos en los que el fondo de CFTR era >10 % debido a un tratamiento ineficaz con GSH. Las vesículas endocíticas se cargaron con proteínas BT, incluyendo CFTR, mediante incubación a 37 ºC durante 5 min, seguida de un tratamiento con GSH para escindir la biotina de las proteínas que permanecieron en la membrana plasmática (muestras c y d). La cantidad de CFTR-BT tras el calentamiento de 5 min a 37 ºC seguido del tratamiento con GSH representa el CFTR endocitado (muestra c). Tras el calentamiento de 5 min a 37 ºC y el primer tratamiento con GSH, las células se volvieron a incubar a 37 ºC durante 2,5 o 5,0 min para permitir que las proteínas endocitadas se reciclaran hacia la membrana plasmática, y la biotina en el CFTR reciclado se redujo mediante un segundo tratamiento con GSH (muestras d). En este punto, solo el CFTR que no se recicló desde los endosomas hacia la membrana plasmática permaneció biotinilado (muestras d). El reciclaje de CFTR se calculó como la diferencia entre el CFTR-BT tras el primer tratamiento con GSH (muestra c) y el segundo tratamiento con GSH a los 2,5 y 5,0 min (muestras d), y se expresó como porcentaje del CFTR endocitado. El reciclaje de CFTR fue rápido y alcanzó un máximo a los 2,5 min. La abundancia de ezrina en el lisado total de células (WCL) se utilizó como control de carga. Tres experimentos por grupo.
Discusión
El éxito de los ensayos endocíticos y de reciclaje depende de la biotinilación eficiente de CFTR en la membrana plasmática. La biotina debe prepararse inmediatamente antes de su uso porque la fracción de éster NHS se hidroliza fácilmente y se vuelve no reactiva. Además, el paso de biotinilación requiere un estricto control de temperatura a 4 ºC para detener el tráfico de proteínas. Si la temperatura se eleva durante el paso de biotinilación por encima de 4 ºC, puede producirse un tráfico de proteínas que resulte en la biotinilación de cantidades variables de CFTR.
El éxito de los ensayos endocíticos y de reciclaje también depende de la reducción eficiente del enlace disulfuro en el CFTR biotinilado que queda en la membrana plasmática. La cantidad de CFTR que queda biotinilado después del tratamiento con GSH debe ser del <10% del CFTR biotinilado total en el momento cero. Deben excluirse los experimentos en los que la cantidad de CFTR biotinilado es del >10% en la muestra de control de GSH. La Figura 1D muestra un experimento "fallido" en el que la cantidad de CFTR biotinilado en el control GSH fue del 14,5%. La reducción insuficiente del enlace disulfuro en el CFTR biotinilado puede ser secundaria a un control deficiente de la temperatura durante el experimento. Si la temperatura se eleva durante el tratamiento con GSH por encima de 4 ºC, puede producirse tráfico de proteínas y el CFTR biotinilado endocitado como resultado del aumento involuntario de la temperatura aumentará el CFTR de fondo. Alternativamente, la reducción insuficiente del enlace disulfuro en el CFTR biotinilado puede resultar de una disminución de la vida media de GSH en solución acuosa causada por la oxidación en el aire o por un pH inadecuado. Como se determinó anteriormente, GSH permanece fuertemente tamponado a pH 8.64. En nuestra experiencia, seis tratamientos de 15 minutos con el tampón GSH redujeron la unión disulfuro en más del 90%, de manera más eficiente que un tratamiento de 90 minutos.
El cultivo celular requiere una atención especial. La biotina tiene que alcanzar el dominio de la membrana plasmática en células intactas donde se expresa la proteína de interés. Hemos utilizado los ensayos endocíticos y de reciclaje basados en biotinilación para estudiar la endocitosis y el reciclaje de CFTR expresado en el dominio de la membrana apical. Estos ensayos también se pueden utilizar para estudiar el tráfico endocítico de proteínas ubicadas en el dominio de la membrana basolateral en células cultivadas en soportes de crecimiento semipermeables. Las células epiteliales que forman multicapas no son adecuadas para estos ensayos, ya que los tampones de biotina y GSH solo llegarán a la capa superior de las células para detectar las proteínas de la membrana apical o a la capa inferior para detectar las proteínas de la membrana basal. Las células epiteliales cultivadas en plástico pueden ser más propensas a lavarse durante los ensayos. La pérdida aleatoria de células durante el experimento comprometerá los resultados. Recomendamos un examen periódico de la integridad de la monocapa bajo un microscopio en experimentos en los que las células se cultivan en placas de cultivo de tejidos plásticos. El recubrimiento de las placas de cultivo de tejidos con colágeno puede aumentar la adherencia celular.
Las muestras de proteínas biotiniladas deben analizarse de forma rutinaria para detectar contaminación con proteínas intracelulares. La detección de proteínas intracelulares en las muestras de proteínas biotiniladas puede indicar un lavado insuficiente de los complejos de proteína biotinilada y agarosa de estreptavidina después de la incubación con WCL. Por lo tanto, el primer paso es aumentar la eficiencia del lavado. Además, la presencia de células con integridad de la membrana plasmática comprometida permitirá el acceso de la biotina a las proteínas intracelulares. La transferencia Western para una proteína expresada exclusivamente en un compartimento intracelular como el retículo endoplásmico podría usarse para detectar la biotinilación de proteínas intracelulares. Alternativamente, se pueden usar proteínas citoesqueléticas como actina o ezrina para detectar la contaminación de las muestras de proteínas biotiniladas con proteínas intracelulares. Las proteínas citoesqueléticas pueden formar complejos con proteínas transmembrana y se pueden detectar pequeñas cantidades de proteínas citoesqueléticas en las muestras de proteínas biotiniladas. Sin embargo, en nuestra experiencia, la proporción de ezrina o actina biotinilada/WCL es de <1:1.000 y, por lo tanto, estas proteínas son adecuadas para la determinación de la integridad de la membrana celular en los ensayos basados en biotinilación.
La reacción de biotinilación se puede apagar con glicina o Tris para eliminar el reactivo de biotinilación no reaccionado como se informó anteriormente17. Además, el GSH se puede enfriar con yodoacetamida6. Según nuestra experiencia, el reactivo de biotinilación sin reacción y el GSH se pueden eliminar de manera eficiente mediante un lavado suave con PBS++ sin el uso de reactivos de enfriamiento.
La elección de estreptavidina frente a neutravidina agarosa para aislar los complejos de proteínas biotiniladas debe determinarse caso por caso. En nuestra experiencia, la agarosa de estreptavidina proporciona un aislamiento eficiente de los complejos de proteínas biotiniladas con una unión mínima de proteínas no biotiniladas, a diferencia de la agarosa de neutravidina, donde la unión inespecífica ocurre a niveles que interfieren con los resultados del ensayo (observación no publicada).
Divulgaciones
Los autores declaran que no tienen intereses financieros contrapuestos.
Agradecimientos
Este estudio fue financiado por las subvenciones de los Institutos Nacionales de Salud (NIH) de EE. UU. R01HL090767, R01HL090767-02S1, P30 DK06010, y la Subvención de Nueva Dirección para Investigadores Establecidos de la Fundación NepCure, (a A.S.-U.).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Referencia de células | 10,11,13,14,15 | ||
| HEK293 Referencia de células | 13 | ||
| Medio esencial mínimo (MEM) | Gibco | 11095 | |
| L-Glutamina | Cellgro | 25-005-CL | |
| Penicilina | Sigma | P0781 | |
| Estreptomicina | |||
| Puromicina | InvivoGen | ant-pr-1 | |
| PureCol Colágeno bovino Solución | |||
| s Solución salina tamponada de fosfato (PBS) | Gibco | 14190 | |
| Cloruro de calcio | Sigma | C3306 | |
| Cloruro de magnesio | Sigma | M2670 | |
| Cloruro de sodio | Sigma | S3014 | |
| EZLink Sulfo-NHS-SS-Biotin | Pierce | 21331 | |
| L-Glutatión reducido (GSH) | Sigma | G6529 | |
| Resina de estreptavidina-agarosa | Thermo Fisher | 20353 | |
| Hidróxido de sodio | Sigma | 224165 | |
| Suero bovino fetal | Gemini Bioscience | 100-106 | |
| Milli-Q agua | Millipore | Advantage System | |
| HEPES | Sigma | H3375 | |
| Triton X-100 | Bio Rad | 161-0407 | |
| Glicerol | FisherScientific | G33 | |
| Laemli Tampón de muestra | BioRad | 161-0737 | |
| Dithiothreitol (DTT) | Sigma | 646563 | |
| Proteasa Completa Cóctel inhibidor | Roche | 1697498 | |
| Perlas de estreptavidina | Thermo Scientific | 20353 | |
| Quimioluminiscencia | Perkin Elmer | NEL104001EA | |
| Reactivos | |||
| Leche en polvo descremada | Clavel | N/A | |
| Tween-20 | BioRad | 170-6539 | |
| Solución salina tamponada con Tris (TBS) | BioRad | 170-6435 | |
| Albúmina sérica bovina (BSA) | Gibco | 15120 | |
| Primario y secundario | |||
| anti-CFTR monoclonal del ratón | |||
| Tampón de ejecución 10x | BioRad | 161-0772 | |
| Tampón de transferencia 10x ( sin SDS) | BioRad | 161-0771 | |
| Metanol | Fisher | A4129 | |
| Contador Coulter | Beckman Coulter | Z1Coulter Contador | |
| Célula estándar Equipo de | |||
| Campana de cultivo celular con luz | |||
| Matraces | |||
| Filtros Transwell-24mm | Corning | 3412 | |
| cultivo celular de 4 cm | |||
| Medidor de pH | |||
| cónicos de | |||
| 15 ml y 50 ml1,5 ml Tubos | |||
| Goma policía | |||
| Cámara frigorífica | |||
| Cubiteras y hielo | |||
| 27 G agujas 37 | |||
| º C Incubadora | |||
| Termómetro | |||
| Centrífuga | |||
| Centrífuga | |||
| electroforesis | |||
| Revelador Película | |||
| GE Amersham | 28-9068-36 | ||
| Membrana | de PVDFMillipore | IPVH00010 | |
| software ImageJ | NIH |
Referencias
- Sigismund, S., et al. Endocytosis and signaling: cell logistics shape the eukaryotic cell plan. Physiol. Rev. 92, 273(2012).
- Andersson, E. R. The role of endocytosis in activating and regulating signal transduction. Cell Mol. Life Sci. 69, 1755(2012).
- Grant, B. D., Donaldson, J. G. Pathways and mechanisms of endocytic recycling. Nat. Rev. Mol. Cell Biol. 10, 597(2009).
- Bretscher, M. S., Lutter, R. A new method for detecting endocytosed proteins. EMBO J. 7, 4087(1988).
- Watts, C., Davidson, H. W. Endocytosis and recycling of specific antigen by human B cell lines. EMBO J. 7, 1937(1988).
- Graeve, L., Drickamer, K., Rodriguez-Boulan, E. Polarized endocytosis by Madin-Darby canine kidney cells transfected with functional chicken liver glycoprotein receptor. J. Cell Biol. 109, 2809(1989).
- Garza, L. A., Birnbaum, M. J. Insulin-responsive aminopeptidase trafficking in 3T3-L1 adipocytes. J. Biol. Chem. 275, 2560(2000).
- Le, T. L., Joseph, S. R., Yap, A. S., Stow, J. L. Protein kinase C regulates endocytosis and recycling of E-cadherin. Am. J. Physiol. Cell Physiol. 283, C489(2002).
- Swiatecka-Urban, A., et al. PDZ-domain interaction controls the endocytic recycling of the cystic fibrosis transmembrane conductance regulator. J. Biol. Chem. 277, 40099(2002).
- Swiatecka-Urban, A., et al. Myosin VI Regulates Endocytosis of the Cystic Fibrosis Transmembrane Conductance Regulator. J. Biol. Chem. 279, 38025(2004).
- Swiatecka-Urban, A., et al. The short apical membrane half-life of rescued uF508-CFTR results from accelerated endocytosis uF508-CFTR in polarized human airway epithelial cells. J. Biol. Chem. 280, 36762(2005).
- Swiatecka-Urban, A., et al. Pseudomonas aeruginosa inhibits endocytic recycling of CFTR in polarized human airway epithelial cells. Am. J. Physiol. Cell. Physiol. 290, C862(2006).
- Swiatecka-Urban, A., et al. Myosin Vb is required for trafficking of the cystic fibrosis transmembrane conductance regulator in Rab11a-specific apical recycling endosomes in polarized human airway epithelial cells. J. Biol. Chem. 282, 23725(2007).
- Ye, S., et al. c-Cbl facilitates endocytosis and lysosomal degradation of cystic fibrosis transmembrane conductance regulator in human airway epithelial cells. J. Biol. Chem. 285, 27008(2010).
- Cihil, K. M., et al. Disabled-2 protein facilitates assembly polypeptide-2-independent recruitment of cystic fibrosis transmembrane conductance regulator to endocytic vesicles in polarized human airway epithelial cells. J. Biol. Chem. 287, 15087(2012).
- MacEachran, D. P., et al. The Pseudomonas aeruginosa secreted protein PA2934 decreases apical membrane expression of the cystic fibrosis transmembrane conductance regulator. Infect. Immun. 75, 3902(2007).
- Pagano, A., Crottet, P., Prescianotto-Baschong, C., Spiess, M. In vitro formation of recycling vesicles from endosomes requires adaptor protein-1/clathrin and is regulated by rab4 and the connector rabaptin-5. Mol. Biol. Cell. 15, 4990(2004).
Reimpresiones y permisos
