El registro de las corrientes de Ca2+ en la membrana frontal de liberación presináptica es clave para una comprensión precisa de la entrada de Ca2+ y la liberación de neurotransmisores. Presentamos una disociación aguda de la médula espinal de la lamprea que produce axones reticuloespinales aislados funcionales, lo que permite el registro directo desde la membrana de la cara de liberación de las terminales presinápticas individuales.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de método
Agudo Disociación de lamprea reticuloespinal axones para permitir la grabación del estreno de la cara de la membrana de individuales Terminales presinápticos funcionales
En este artículo
Resumen
Resumen
La transmisión sináptica es un proceso extremadamente rápido. Potencial de acción impulsado afluencia de Ca 2 + en la terminal presináptica, a través de los canales de calcio dependientes de voltaje (VGCCs) localizados en la membrana cara liberación, es el detonante de la fusión de vesículas y la liberación de neurotransmisores. Crucial para la rapidez de la transmisión sináptica es la sincronía espacial y temporal entre la llegada del potencial de acción, VGCCs y la maquinaria liberación de neurotransmisores. La capacidad de grabar directamente Ca 2 + corrientes de la membrana cara liberación de terminales presinápticas individuales es imperativo para una comprensión precisa de la relación entre presináptica Ca 2 + y la liberación de neurotransmisores. El acceso a la membrana cara liberación presináptica de registro electrofisiológico no está disponible en la mayoría de las preparaciones y Ca 2 + entrada presináptica se ha caracterizado mediante técnicas de imagen y MeasureMe corriente macroscópicaNTS - técnicas que no tienen suficiente resolución temporal para visualizar la entrada de Ca 2 +. La caracterización de VGCCs directamente en las terminales presinápticas individuales no ha sido posible en las sinapsis centrales y hasta el momento se ha logrado con éxito sólo en el tipo cáliz sinapsis del ganglio ciliar de pollo y en los cálices de rata. Hemos abordado con éxito este problema en la sinapsis reticulospinal gigante de la lamprea de la médula espinal mediante el desarrollo de una preparación agudamente disociado de la médula espinal que produce axones reticulospinal aislados con terminales presinápticas funcionales carentes de estructuras postsinápticas. Fluorescencia Podemos etiquetar e identificar las terminales presinápticas individuales y dirigirlos para la grabación. El uso de esta preparación, hemos caracterizado VGCCs directamente en la cara liberación de terminales presinápticas individuales utilizando enfoques de inmunohistoquímica y de electrofisiología. Ca 2 + corrientes se han registrado directamente en la cara de la membrana de liberación of terminales presinápticas individuales, la primera de grabación a ser llevadas a cabo en las sinapsis centrales.
Introducción
La transmisión sináptica es un proceso extremadamente rápido y preciso. Acción potencial invasión de la terminal presináptica conduce a la apertura de VGCCs situados en la membrana cara liberación, el aumento resultante en presináptica Ca 2 + que actúa como el disparador para la fusión de vesículas y liberación de neurotransmisores 1. Todos estos pasos se dan dentro de cientos de microsegundos 2, y por lo tanto requieren de acoplamiento espacial estricto de VGCCs a la maquinaria de la fusión de vesículas 3. Presináptica Ca 2 + flujos se han caracterizado principalmente por medio de imágenes enfoques usando colorantes sensibles al Ca 2 + 4. La incorporación de Ca 2 + tampones que modulan Ca2 + en las neuronas presinápticas se ha utilizado para caracterizar indirectamente la relación entre el calcio y la neurotransmisión presináptica 3. Además, la modulación de la presináptica libre de Ca 2 + de concentración por uncaging Ca 2 + 5 o grabar macroscopic Ca 2 + corrientes se han usado en conjunción con medidas de la fusión de vesículas y / o liberación; tales como medidas de capacitancia 6 o postsináptica respuestas 2 para abordar la misma cuestión. Sin embargo, la caracterización de Ca 2 + corrientes directamente en la cara de la liberación, la sección especializada de la membrana presináptica, donde despolarización de la membrana se traduce en Ca 2 + corrientes desencadenan la fusión de vesículas sinápticas y la liberación de neurotransmisores, es esencial para obtener una medida precisa de la Ca 2 + requisito para la fusión de la vesícula sináptica. Además, la capacidad para caracterizar directamente Ca 2 + corrientes en los terminales presinápticos individuales, junto con mediciones simultáneas precisas de la fusión de vesículas y liberación permite una elucidación precisa de la relación de temporización entre el transcurso de tiempo del potencial de acción, presináptica Ca 2 + actual, la fusión de vesículas y la liberación. El acceso a la membrana de liberación carano está disponible en la mayoría de los terminales presinápticos debido a la estrecha aposición por las dendritas postsinápticas. Esta inaccesibilidad ha sido un obstáculo importante en la caracterización de VGCCs ya que impide las mediciones directas de la corriente en las terminales presinápticas individuales. Caracterización directa de presináptica Ca 2 + corrientes en las terminales presinápticas individuales hasta el momento no ha sido posible en las sinapsis centrales y sólo se ha logrado en dos terminales presinápticas tipo cálices; tipo cáliz sinapsis del ganglio ciliar de pollo de 7-10 y de rata cálices 11,12. En todos los otros terminales presinápticas incluyendo la sinapsis reticulospinal gigante en la lamprea de la médula espinal 13, la falta de acceso a la membrana cara liberación presináptica ha hecho necesario el uso de enfoques indirectos tales como Ca 2 + de imágenes para estudiar presináptica Ca 2 + flujos.
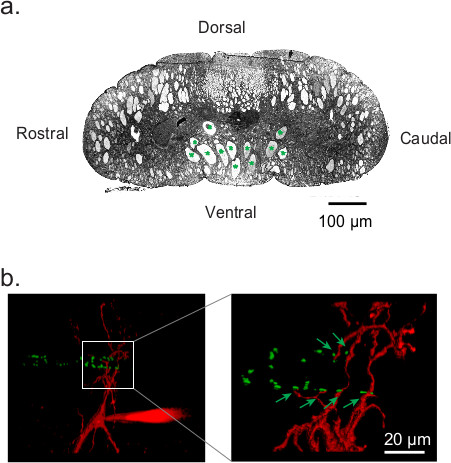 Figura sinapsis reticulospinal gigante. (A) Sección 1.-Lamprea de lamprea médula espinal que indica la orientación dorso-ventral. Reticuloespinal axones están marcados con el asterisco verde. (B) la reconstrucción 3-D de la sinapsis reticuloespinal en la lamprea de la médula espinal que muestra presináptica del axón reticuloespinal hacer numerosos contactos en passant (marcado por flechas verdes) en la neurona postsináptica 13. Terminales presinápticas han sido etiquetados con Alexa Fluor 488 hidrazida conjugado faloidina (verde), mientras que la neurona postsináptica se ha llenado con Alexa Fluor 568 hidrazida (rojo).
Axones gigantes reticulospinales lamprea, ubicadas en la región ventral de la médula espinal en paralelo a la rostral-caudal eje Figura 1a, la forma múltiple en passant contactos sinápticos en neuronas de laasta ventral de la médula 14 Figura 1b 13. De células enteras macroscópica Ca 2 + corrientes han sido registrados en los axones reticulospinales en la médula espinal intacta 13,15. Sin embargo, los intentos anteriores ciegos en la medición directa de Ca 2 + corrientes en los axones reticulospinales en la lamprea intacta la médula espinal usando técnica de patch clamp de células inscritos han tenido éxito 13 debido a la falta de acceso a la membrana cara liberación presináptica debido a los procesos postsinápticos opuestas la Figura 1b. La membrana cara liberación ha sido previamente hecho accesible por la eliminación de la neurona postsináptica 11, perturbación mecánica de la sinapsis antes de grabar 12 o el tratamiento enzimático junto con disociación mecánica 16. Dada la compleja organización de la médula espinal, que resultaría extremadamente difícil identificar la neurona postsináptica y retraer mecánicamente o perturbar ªe sinapsis. Por lo tanto, hemos decidido utilizar el tratamiento enzimático 17 seguido por disociación mecánica.
Con este enfoque, hemos desarrollado una preparación agudamente disociado de la lamprea de la médula espinal que produce viables axones reticulospinal aislados con terminales presinápticas funcionales carentes de cualquier proceso de post-sinápticos, proporcionando así un acceso sin restricciones a las terminales presinápticas individuales. En conjunto con un microscopio invertido y estándar de imágenes de fluorescencia, que nos permite identificar y seleccionar los terminales presinápticos con fluorescencia identificado individuales, con una pipeta de parche que contiene una solución de grabación que aísla Ca 2 + corrientes 4c figura y la figura 4d, para la grabación con base celular técnica de fijación de voltaje adjunta. Ca 2 + corrientes se han registrado directamente en la membrana cara liberación presináptica de los terminales presinápticos individuo Figura 4f. Esta es una SIGNIFICAnt avance en el campo de la transmisión sináptica, ya que es la primera grabación que se llevó a cabo en las sinapsis centrales.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Protocolo
1. Preparación de poli-D-lisina bromhidrato
- Preparar bromhidrato de poli-D-lisina 1 mg / ml en tampón borato 0,1 M (pH 8,5).
- Alícuota y almacenar a -20 ° C.
Recubrimiento 2. poli-lisina de Cubreobjetos
Nota: Llevar a cabo todos los pasos de limpieza y revestimiento en una cámara de flujo laminar.
- Coloque los portaobjetos en una placa de Petri que contiene 1 N de ácido clorhídrico (HCl) durante 2 horas.
- Aspire todo el HCl y enjuague con un 70% de etanol (EtOH) 2-3 veces.
- Deja en EtOH al 70% durante 1 hora.
- Aspire todo el EtOH al 70% y enjuague con EtOH al 100% 2-3x.
- Deja en EtOH al 100% durante 2 horas. Aspirar todo EtOH.
- Secar con papel de filtro y secar al aire durante unos pocos segundos.
- Lugar O N en 1 mg solución poli-lisina / / ml.
- Enjuague cubreobjetos día siguiente con 4-5x agua Millipore.
- Aire seco poli-lisina recubierto cubreobjetos sobre rodillos de cristal en una placa de Petri limpia.
- Para immunohistochemistry, utilizar 35 x 10 mm de Petri tapas de los recipientes. Preparar Sylgard (polydimethylsilioxane, PDMS) forrado platos vertiendo PDMS (elastómero y agente de curado de 10: 1 en peso) en el plato con un grosor de 0,3 cm y permita que se asiente en el 30 ° CO / N. Una vez que esto se ha puesto, cortar unos 2 cm por 1 cm emplazada en el PDMS. Limpiar y recubrir la inserción con poli-lisina siguiendo los mismos pasos como se mencionó anteriormente para cubreobjetos.
- Tienda cubreobjetos y platos recubiertos de poli-lisina cubiertos dentro de la cámara de flujo laminar hasta su uso (hasta 2 semanas, pero lograr mejores resultados mediante la preparación de adhesivos periódicamente cada 3-4 días).
- Preparar un bloque PDMS, al pin de la médula espinal en la máquina de cortar el tejido que vibra. Mix Elastómero A y B Elastómero 1: 1 en peso. Vierta la mezcla en un plato 100 x 15 mm de Petri y permita que se asiente O / N a 30 ° C. Corte un pedazo rectangular de los PMDS y péguelo en la placa base de corte utilizando pegamento epóxico. Deje que el pegamento se seque la fijación de los PDMS en lugar y cortar varias secciones delgadas de la superficie para obtener un pisosuperficie a la clavija del tejido en.
3. aguda disociación de la lamprea de la médula espinal al rendimiento aislado axones reticuloespinal
- Anestesiar a un ammoecoete o adulto lamprea (Petromyzon marinus) con metanosulfonato tricaína (MS-222, 100 mg / L). Añadir anestésico en el agua, en un vaso de plástico cubierto por una tapa, que contiene la lamprea para ser sacrificado.
- Decapitar lamprea en frío (4 ° C) solución de Ringer de la siguiente composición (en mM): 130 NaCl, 2,1 KCl, 2,6 CaCl 2, 1,8 MgCl 2, 4 HEPES, 4 de dextrosa (pH 7,6, osmolaridad 270 mOsm) y retirar el cuerpo músculos de la pared para exponer la superficie dorsal de la médula espinal.
- Eliminar meninge primitiva de la superficie dorsal de la médula espinal utilizando unas pinzas finas. No retire primitiva meninge ventral en esta etapa.
- Cortar la médula espinal en trozos de 1 cm de largo.
- Pin un pedazo de la médula espinal con alfileres de insectos finas, frente a lado dorsal hacia arriba, sobre un PDMS forrado rebanar pla de baseTE (véase 2.12) en una cámara de la máquina de cortar tejido vibrante que contiene la solución de Ringer enfriada con hielo.
- Eliminar una sección central de la columna dorsal de la médula espinal por corte a lo largo del eje rostro-caudal con la hoja, dejando tras de secciones de columna dorsal intactos en el rostral y caudal termina para servir como asas durante el proceso de disociación Figura 2a y la Figura 2b. Use ajuste de velocidad más lenta que permite cortar y un ajuste de la profundidad que elimina sólo la columna de la dorsal dejando la columna subyacente axón reticulospinal Figura 2b sin daños.
- Incubar en rodajas piezas de la médula espinal a ta durante 45 min en un cóctel de 1 mg / ml de proteasa (Tipo XIV de Streptomyces griseus) y 1 mg / ml de colagenasa preparado (Tipo IA de Clostridium histolyticum) en solución de Ringer (adaptado de El Manira y Bussières , 1997 17).
- Piezas de la médula espinal tratados con enzimas Pin utilizando pasadores finos en una placa de Petri de PDMS se alinearon contanando frío (4 ° C) solución de Ringer.
- Retire primitiva meninge ventral con unas pinzas finas.
- Cortar secciones laterales de la médula espinal con una hoja de bisturí en el punto medio de la sección dorsal rodajas de salir de la columna central de los axones intactos reticulospinales en la médula espinal Figura 2d.
- Ponga una gota de aceite de inmersión en el objetivo.
- Coloque el cubreobjetos poli-lisina recubierto (Figura 3a, la pieza superior, un rectángulo rojo) en la ranura de la cámara de grabación de la figura 3 y aplicar grasa de vacío para todos los bordes (espacio entre los rectángulos rojos y azules en la Figura 3a, para facilitar un sello. Tornillo la parte superior en su lugar. Coloque la cámara en la inserción en el equipo de grabación.
- Añadir la solución de Ringer en la cámara de grabación usando una pipeta Pasteur.
- Conectar la tubería de salida de la botella de presión que contiene solución anticongelante a la tubería de entrada del dispositivo de refrigeración termoeléctrica. Conecte el caliut tubo del dispositivo de refrigeración termoeléctrica al extremo de entrada de la camisa de refrigeración exterior y el extremo de salida al depósito de la Figura 3b.
- Colocar una pieza de la médula espinal a la vez en la cámara de grabación y separar suavemente la médula espinal mantener a lo largo del cubreobjetos en todo momento utilizando fórceps recubiertos de teflón hasta que los axones están aislados Figura 2e y la figura 2f.
- Llevar la temperatura de la solución de grabación a 10 ° C haciendo pasar la (gas nitrógeno es empujado dentro de la botella) presurizado solución anticongelante (por el desplazamiento), a través del dispositivo de refrigeración termoeléctrica, a través de la camisa de refrigeración externa de la cámara de grabación de la figura 3b.
- Permitir que los axones se recuperen para el post disociación de 1 hora a 10 ° C.
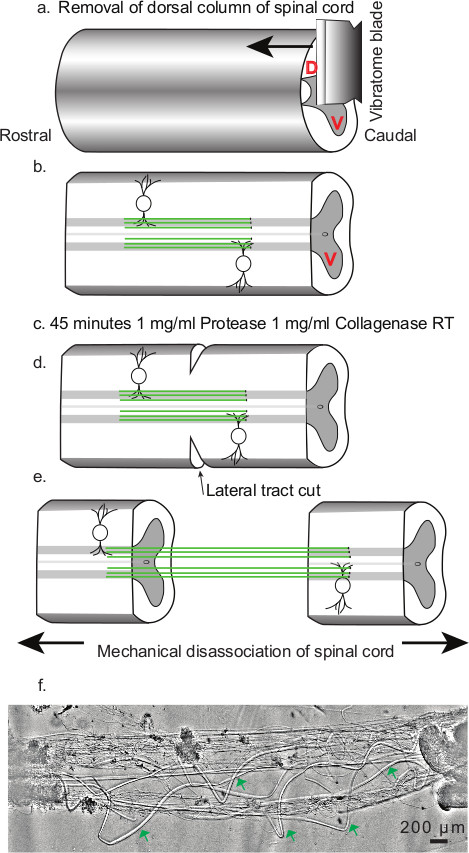
(A) La eliminación de la columna dorsal. La flecha indica la dirección de corte del tejido. Los cuernos dorsales están marcados por el alfabeto D (color fuente roja), mientras que los cuernos ventrales por el alfabeto V (color de fuente rojo). (B) de la columna dorsal retira en la porción central de la médula espinal exponer los axones reticulospinales (líneas verdes ). Los cuernos ventrales, que permanecen intactos después del proceso de corte, están marcados por el alfabeto V (color de fuente rojo). (C) tratamiento de 45 minutos con la proteasa y enzimas colagenasa cocktail (1 mg / ml). (D) El corte de vías laterales de la médula espinal; que indica la posición, dirección y extensión de corte lateral. (e) disociación mecánica de la médula espinal. Las flechas indican la posición de fórceps y dirección de la fuerza de separación durante la disociación. (F) Representatihe ejemplo de preparación axón reticuloespinal disociado. Las flechas verdes marcan las regiones de axones reticulospinal agudamente disociado sin ningún proceso de post-sinápticas.
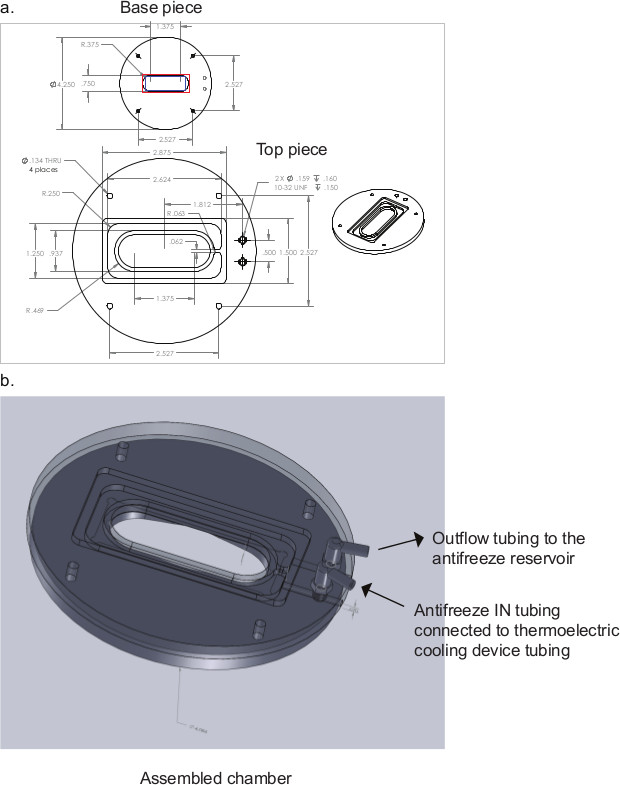
Figura 3. esquemática de cámara para experimentos de electrofisiología grabación. Dimensiones proporcionadas están en pulgadas. Rectángulo rojo muestra en el diagrama basepiece (a) indica el posicionamiento de cubreobjetos en la ranura cubreobjetos en el basepiece. La región entre el rectángulo rojo y azul, que se muestra en el diagrama basepiece (a) es donde se aplica la grasa de alto vacío. (B) muestra la cámara de grabación montado.
4. etiquetado y la identificación de los terminales presinápticos con FM 1-43
- Etiquetar las terminales presinápticas, mediante la incorporación de FM 1-43 en vesicles durante sináptica exo-endocitosis durante la escuela K + despolarización. Perfundir preparación con 5 M FM 1-43 (en solución 5 ml de Ringer que contiene 30 mM KCl).
- Perfundir preparación con 1 mg / ml ADVASEP-7 (en solución de Ringer 5 ml) para eliminar el exceso de colorante FM) 18.
- Perfundir preparación con solución de Ringer durante 15 min al lavado por cualquier colorante Remant y la ADVASEP.
- Imagen con 100 X lente de inmersión en aceite (NA 1,25) en un microscopio de fluorescencia invertido, en conjunción con una cámara CCD digital y la adquisición de imágenes micromanager software, utilizando protocolos de formación de imágenes de fluorescencia estándar.
- Identificar los terminales presinápticos marcados con fluorescencia para apuntar para la grabación de la figura 4c y 4d Figura.
5. inmunohistoquímica de aislados axones reticuloespinal
- Rellene inserción plato (sección Protocolo 2.10.) Con divalente-ion (Ca 2 + y Mg 2 +) libreSolución de Ringer.
- Fabrique pipetas de parche en un extractor micropipeta P-87. Colocar una pequeña cantidad de pegamento de sutura en un extremo de la inserción de poli-lisina utilizando una pipeta de parche (1,5 mm de vidrio de diámetro exterior) y de aspiración (usando un tubo de silicona 0,89 mm de diámetro interior con una punta de micropipeta unido al extremo de succión).
- Realizar disociaciones utilizando el mismo procedimiento que se menciona en la sección de protocolo 3 Figura 2. Coloque un extremo de la médula espinal en la cola de sutura y presione suavemente con unas pinzas para adherirse fuertemente a la superficie. Coloque otra gota de pegamento de sutura en el otro extremo de la inserción y estirar suavemente la médula espinal hasta que se disocian los axones y adherir el extremo libre de la médula espinal arrastrándolo suavemente sobre el pegamento de sutura. Fijar en su lugar por prensado suave hacia abajo con las pinzas.
- Divalente libre intercambio solución de Ringer con solución de Ringer normal por perfusión.
- Permitir que los axones se recuperen para el post dissoc 20 miniation a 10 ° C.
- Fijar los axones disociadas en 4% de paraformaldehído (PFA) {preparado en tampón fosfato salino (PBS, (mM) NaCl 137, KCl 2,7, Na 2 HPO 4 10, KH 2 PO 4 1,8, pH 7,4)} durante 20 min. Filtra solución de PFA antes de su uso mediante el paso a través de un filtro de jeringa de 0,2 mM.
- Lave la PFA perfundiendo glicina 0,1 M (en PBS) durante 10 min.
- Incubar en 0,1% de Triton-X (en PBS) durante 10 min.
- Lavar por perfusión PBS durante 20 min.
- Se bloquea con leche desnatada al 5% (en PBS) durante 6 horas a 4 ° C.
- Añadir en el anticuerpo primario a VGCC de interés (dilución 1: 200 en PBS) y se incuba durante 20 horas a 4 ° C.
- Lavar por perfusión PBS durante 20 min.
- Bloquear con leche desnatada al 5% (en PBS) durante 10 min a 4 ° C.
- Añadir en anticuerpo secundario (dilución 1: 400 en PBS) y se incuba en la oscuridad durante 2 horas a 4 ° C.
- Lavar por perfusión con PBS durante 20 min.
- Bloque con 1% de suero bovino Albumin (en PBS) durante 20 min.
- Añadir en Alexa Fluor 488 faloidina (5 unidades / l concentración de trabajo; de stock preparada en metanol 200 Unidades / ml).
- Lavar por perfusión con PBS durante 20 min.
- Image usando lente de inmersión 100X agua en el microscopio confocal.
6. electrofisiológico de grabación
- Fabrique pipetas de parche de vidrio de aluminosilicato (resistencia pipeta 2-5 mW) en un extractor de micropipeta P-87. Diseño parche pipeta de tal manera que la punta de pipeta abarca toda diámetro terminal presináptica.
- PDMS pipetas de parche capa por inmersión de la pipeta de parche bajo presión de 50-60 psi en PDMS 23 (adjuntar un tubo de silicona, 0,89 mm de diámetro interior, conectado a un cilindro de gas nitrógeno, a la parte de atrás de la pipeta de parche) y secar usando un calor arma. Alternativamente, la capa manualmente la pipeta con PDMS, la aplicación de recubrimiento tan cerca de la punta como sea posible, bajo un microscopio compuesto.
- Fuego pipetas parche pulido utilizando un microforge (un filamento de platino a la medida montado sobre la platina de un microscopio compuesto).
- Identificar los axones aislados que demuestran terminales presinápticos marcados por microscopía de fluorescencia.
- Llenar solución de grabación (diseñado para aislar Ca 2 + corrientes; 10 mM CaCl 2 o 90 mM BaCl 2 como portador de carga, tamponada de HEPES pH 7,6, osmolaridad 270 mOsm) en el parche pipeta usando una jeringa.
- Inserte parche pipeta en el soporte de la pipeta y posición por encima del baño usando un manipulador motorizado MP225. Baje suavemente la pipeta parche en el baño y la posición contra la cara de un terminal presináptica fluorescente identificado.
- Avance el parche pipeta lentamente hasta que se haga contacto con la membrana. En este punto, lograr un sellado gigaohmio por succión la boca suave a través de un tubo conectado a la titular de la pipeta.
- Para alcanzar el fondo extremadamente bajos niveles de ruido requeridos para el registro de un solo canal de Ca 2 + corrientes, utilice una Axopatch 200B con un cabezal de la platina se enfrió durante las grabaciones. Datos de la muestra de 20 a 50 kHz y el filtro utilizando un filtro de Bessel 5 kHz. Llevar a cabo la adquisición de datos utilizando un AxoGraph X.
- Utilice un protocolo estándar para escaleras, en incrementos de 10 mV como estímulo. Incorporar un pre-pulso en el protocolo, el protocolo anterior etapa, para asegurar la activación máxima de los canales de Ca 2 +. Incorporar una mV paso 10 fugas en el protocolo de paso para un análisis posterior sustracción de corrientes de fuga.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Resultados
Esto produce la disociación de protocolo axones sanos y funcionales aisladas reticulospinal carentes de postsináptica proyecciones Figura 2f, pero que sin embargo retener presináptica terminales funcionales capaces de vesícula sináptica evocada exo-y endocitosis Figura 4c y 4d Figura. Secciones de las regiones aisladas de los axones reticulospinal pueden ser claramente identificados con microscopía de luz para estar libre de cualquier otros procesos neuronales que permi...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
Nuestro protocolo de disociación es significativa al ceder axones reticulospinal aislados y fuera de postsináptica proyecciones Figura 2f, pero que sin embargo conservan funcional presináptica terminales Figura 4c y 4d Figura. La ausencia de procesos de post-sinápticas se oponen a la terminal presináptica permite el acceso directo a la grabación de la membrana cara liberación presináptica en las terminales presinápticas individuales, antes no era posible en las sinapsis...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
Los autores no tienen intereses financieros contrapuestos u otros conflictos de intereses que divulgar.
Agradecimientos
Este trabajo ha sido apoyado por NINDS, RO1NS52699 y MH84874 a SA.
Nos gustaría agradecer al Dr. Dave Featherstone (Departamento de Ciencias Biológicas, Universidad de Illinois en Chicago) por proporcionarnos el pegamento de sutura utilizado en el trabajo de inmunohistoquímica. Agradecemos a Michael Alpert por sus comentarios y la revisión del manuscrito.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| 0,2 y micro; m Filtro de jeringa | EMD Millipore | SLGV004SL | |
| 22 x 60 mm Cubreobjetos | Fisherbrand | 12545J | |
| Advasep-7 | Cydex Pharmaceuticals | ADV7 | |
| Alexa Fluor 488 Phalloidin | Invitrogen/Life Technologies | A12379 | |
| Alexa-633 conjugado cabra anti-conejo anticuerpo secundario | Invitrogen/Life Technologies | A21070 | |
| Anticongelante | Prestone | ||
| Ácido bórico | Sigma-Aldrich | B7660 | |
| Albúmina sérica bovina | Sigma-Aldrich | A7906 | |
| Fuente de luz de campo claro | Dolan-Jenner | Fiberlite 180 | |
| Cloruro de calcio | Sigma Aldrich | C4901 | |
| Colagenasa tipo IA de Cloristridium Histolyticum | Sigma-Aldrich | C9891 | |
| Cubreobjetos | Fisher-Scientific | 12-545-J | |
| Dextrosa | Sigma-Aldrich | D9559 | |
| Cámara CCD digital | Hamamatsu | C8484-03G01 | |
| Pinza de disección | Fine Science Tools | 91150-20 | |
| Pinza de disección | Fine Science Tools | 11251-20 | |
| Microscopio de disección | Leica Biosystems | Leica MZ 12 | |
| Tijeras de disección | Fine Science Tools | 15025-10 | |
| Tijeras de disección finas | Fine Science Tools | 91500-09 | |
| Tijeras de disección ultra finas | Fine Science Tools | 15000-08 | |
| FM 1-43 | Invitrogen/Life Technologies | T3163 | |
| Glycine | Sigma-Aldrich | G7126 | |
| HEPES | Sigma-Aldrich | H7523 | |
| Grasa de alto vacío | Dow-Corning | ||
| Ácido clorhídrico | Fisherbrand | SA-56-500 | |
| Aceite de inmersión | Fisher-Scientific | M2000 | |
| Tanque de gas nitrógeno de grado industrial | Praxair | UN1066 | |
| Alfileres para insectos | Fine Science Tools | 26002-10 | |
| Pegamento líquido para suturas | Braun Veterinary Cair Division | 8V0305 | El pegamento para suturas que utilizamos en nuestros experimentos nos lo proporcionó otro laboratorio. Ya no se fabrica. Hemos obtenido un pegamento de sutura de histoacrílico para uso futuro de Aesculap (Ts1050071FP) |
| Cloruro de magnesio | Sigma-Aldrich | M2670 | |
| Metanol | Sigma-Aldrich | 154903 | |
| Leche en polvo descremada | Tecnología de señalización celular | 9999S | |
| P-87 Extractor de micropipetas | Sutter Instruments | ||
| Paraformaldehído | Sigma-Aldrich | P6148 | |
| Bomba de perfusión | Cole-Palmer | Masterflex C/L Placa | |
| Petri 100 x 15 mm | Fisher-Scientific | 875712 | |
| Placa de Petri 35 x 10 mm | Fisher-scientific | 875712 | |
| Hidrobromuro de poli-D-lisina | Sigma-Aldrich | P1024 | MW > 300.000 |
| Cloruro de potasio | Sigma-Aldrich | P9333 | |
| Fosfato de potasio monobásico | Sigma-Aldrich | P5379 | |
| Anticuerpos primarios Canal de calcio tipo R | Alomone Labs | ACC-006 | |
| Proteasa tipo XIV de Streptomyces Griseus | Sigma-Aldrich | P5147 | |
| Hojas de bisturí | World Precision Instruments | 500240 | |
| Botella de presión Schot Duran | Fisher-Scientific | 09-841-006 | |
| Tubo de silicona para la aplicación de pegamento | Cole-Palmer | 07625-26 | |
| Placa base de corte | Leica Biosystems 14046327404 | ||
| Cámara de corte | Leica Biosystems 14046230132 | Cloruro | |
| de sodio | Sigma-Aldrich | S7653 | |
| Hidróxido de | S8045 | ||
| Fosfato de sodio dibásico | Sigma-Aldrich | S9763 | |
| Tetraborato de sodio | Sigma-Aldrich | B3545 | |
| Sylgard 160 Kit de elastómero de silicona | Dow Corning | SYLGARD® 160 | Para preparar, mezcle el elastómero A y el elastómero B 10:1 en peso |
| Sylgard 184 Kit de elastómero de silicona | Dow Corning | SYLGARD® 184 | Para preparar, mezcle el elastómero y el agente de curado 10:1 en peso |
| pinzas recubiertas de teflón | Fine Science Tools | 11626-11 | |
| Metanesulonato de tricaína | Sigma-Aldrich | A5040 | |
| Cuchillas de vibratomo | World Precision Instruments | BLADES Lámpara de | |
| xenón | Nikon |
Referencias
- Katz, B., Miledi, R. The timing of calcium action during neuromuscular transmission. Journal of Physiology. 189 (3), 535-544 (1967).
- Sabatini, B. L., Regehr, W. G. Timing of neurotransmission at fast synapses in the mammalian brain. Nature. 384 (6605), 170-172 (1996).
- Augustine, G. J., Adler, E. M., Charlton, M. P. The calcium signal for transmitter secretion from presynaptic nerve terminals. Annals of the New York Academy of Sciences. 635, 365-381 (1991).
- Zucker, R. S. Calcium and transmitter release. Journal of Physiology Paris. 87 (1), 25-36 (1993).
- Delaney, K. R., Shahrezaei, V. Uncaging Calcium in Neurons. Cold Spring Harbor protocols. (12), (2013).
- Paradiso, K., Wu, W., Wu, L. G. Methods for patch clamp capacitance recordings from the calyx. Journal of Visualized Experiments. (6), 244(2007).
- Stanley, E. F. The calyx-type synapse of the chick ciliary ganglion as a model of fast cholinergic transmission. Canadian Journal of Physiology and Pharmacology. 70, S73-S77 (1992).
- Church, P. J., Stanley, E. F. Single L type calcium channel conductance with physiological levels of calcium in chick ciliary ganglion neurons. The Journal of Physiology. 496 (Pt 1), 59-68 (1996).
- Stanley, E. F. Single calcium channels and acetylcholine release at a presynaptic nerve terminal. Neuron. 11 (6), 1007-1011 (1993).
- Weber, A. M., Wong, F. K., Tufford, A. R., Schlichter, L. C., Matveev, V., Stanley, E. F. N-type Ca(2+) channels carry the largest current implications for nanodomains and transmitter release. Nature Neuroscience. 13 (11), 1348-1350 (2010).
- He, L., Wu, X. S., Mohan, R., Wu, L. G. Two modes of fusion pore opening revealed by cell attached recordings at a synapse. Nature. 444 (7115), 102-105 (2006).
- Sheng, J., He, L., et al. Calcium channel number critically influences synaptic strength and plasticity at the active zone. Nature Neuroscience. 15 (7), 998-1006 (2012).
- Photowala, H., Freed, R., Alford, S. Location and function of vesicle clusters, active zones and Ca2+ channels in the lamprey presynaptic terminal. The Journal of Physiology. 569. 569 (Pt 1), 119-135 (2005).
- Rovainen, C. M. Synaptic interactions of reticulospinal neurons and nerve cells in the spinal cord of the sea lamprey. Journal of Comparative Neurology. 154 (2), 207-223 (1974).
- Takahashi, M., Freed, R., Blackmer, T., Alford, S. Calcium influx independent depression of transmitter release by 5 HT at lamprey spinal cord synapses. The Journal of Physiology. 532 (2), 323-336 (2001).
- Stanley, E. F., Goping, G. Characterization of a calcium current in a vertebrate cholinergic presynaptic nerve terminal. The Journal of Neuroscience. 11 (4), 985-993 (1991).
- El Manira, A., Bussières, N. Calcium channel subtypes in lamprey sensory and motor neurons. Journal of Neurophysiology. 78 (3), 1334-1340 (1997).
- Kay, A. R., Alfonso, A., et al. Imaging synaptic activity in intact brain and slices with FM1 43 in C elegans lamprey and rat. 24 (4), 809-817 (1999).
- Betz, W. J., Bewick, G. S. Optical analysis of synaptic vesicle recycling at the frog neuromuscular junction. Science. 255 (5041), 200-203 (1992).
- Bleckert, A., Photowala, H., Alford, S. Dual pools of actin at presynaptic terminals. Journal of Neurophysiology. 107 (12), 3479-3492 (2012).
- Gustafsson, J. S., Birinyi, A., Crum, J., Ellisman, M., Brodin, L., Shupliakov, O. Ultrastructural organization of lamprey reticulospinal synapses in three dimensions. The Journal of Comparative Neurology. 450 (2), 167-182 (2002).
- Broadie, K., Featherstone, D. E., Chen, K. Electrophysiological Recording in the Drosophila Embryo. Journal of Visualized Experiments. (27), (2009).
- Rae, J. L., Levis, R. A. A method for exceptionally low noise single channel recordings. Pflügers Archiv European Journal of Physiology. 420 (5-6), 618-620 (1992).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
