Los proteoliposomas se utilizan para estudiar canales purificados y transportadores reconstituidos en un entorno bioquímico bien definido. Se ilustra un procedimiento experimental para medir el flujo de eflujo mediado por estas proteínas. Se describen los pasos para preparar los proteoliposomas, realizar los registros y analizar los datos para determinar cuantitativamente las propiedades funcionales de la proteína reconstituida.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de método
Un Proteoliposoma Basada Eflujo Ensayo para determinar una sola molécula Propiedades de Cl
En este artículo
Resumen
Resumen
Los últimos 15 años se han caracterizado por una explosión en la capacidad de sobreexpresar y purificar proteínas de membrana de organismos procariotas, así como de eucariotas. Este aumento ha sido impulsado en gran medida por el exitoso impulso para obtener información estructural sobre las proteínas de membrana. Sin embargo, la capacidad de interrogar funcionalmente estas proteínas no ha avanzado al mismo ritmo y, a menudo, se limita a ensayos cualitativos de valor cuantitativo limitado, lo que limita los conocimientos mecanicistas que pueden proporcionar. Se describe un ensayo para investigar cuantitativamente la actividad de transporte de canales o transportadores de Cl- reconstituidos. El ensayo se basa en la medición de la tasa de eflujo de Cl- de los proteoliposomas tras la adición del ionóforo K+ valinomicina para desviar el potencial de membrana. Se utiliza un electrodo sensible a los iones para seguir el curso temporal de los flujos iónicos de los proteoliposomas reconstituidos con la proteína deseada. El método es muy adecuado para estudios mecanicistas, ya que permite la determinación cuantitativa de las propiedades clave de la proteína reconstituida, como su velocidad de transporte unitaria, la fracción de proteína activa y la masa molecular de la unidad funcional. El ensayo también se puede utilizar para determinar el efecto de compuestos de moléculas pequeñas que inhiben/activan directamente la proteína reconstituida, así como para probar los efectos moduladores de la composición de la membrana o los reactivos modificadores de lípidos. En la medida de lo posible, se encontró que la comparación directa entre los resultados obtenidos con este método concordaba bien con los obtenidos con enfoques electrofisiológicos. La técnica se ilustra utilizando CLC-ec1, un intercambiador de H+/Cl- de tipo CLC, como sistema modelo. El ensayo de eflujo se puede utilizar para estudiar cualquier canal/transportador conductor de Cl- y, con cambios mínimos, se puede adaptar para estudiar cualquier proteína transportadora de iones.
Introducción
En las últimas dos décadas la capacidad para sobreexpresar y purificar las proteínas de transporte de membrana ha aumentado dramáticamente: canales iónicos, transportadores primario y secundario están ahora purificaron rutinariamente a partir de sistemas de expresión heterólogos, así como de fuentes naturales. Constantemente se están desarrollando nuevos enfoques para controlar la expresión, mejorar y facilitar la extracción y mejorar la estabilidad de estas proteínas 1-5. Estos avances tecnológicos han sido fundamentales en el desencadenamiento de la explosión de la información estructural a nivel atómico en las proteínas de membrana que, a su vez, mejorado nuestra comprensión de las bases estructurales de su función. En contraste, nuestra capacidad para investigar las propiedades funcionales de las proteínas purificadas no aumentó en la misma proporción, de modo que en algunos casos alta resolución información estructural está acompañada por datos funcionales cualitativos, lo que limita nuestra capacidad para probar cuantitativamente predicciones basadas en la estructura. Por lo tanto, la development de ensayos funcionales cuantitativos y generalizables es un paso clave hacia la elucidación de las bases mecanicistas de la función de las proteínas de membrana.
Aquí se describe un ensayo de flujo de salida que se puede utilizar para determinar cuantitativamente propiedades funcionales clave de purificado y reconstituido Cl - canales y transportadores. Los principios subyacentes del ensayo se pueden generalizar a una variedad de sistemas de transporte, así como a las proteínas no-iónicos transporte. Los liposomas se reconstituyen con purificados Cl - canal / transportadores en la presencia de un gran Cl - gradiente (Figura 1A, B). Cl - flujo de salida se inicia mediante la adición de un ionóforo para permitir flujo de contra-ión, en nuestro caso el K + valinomicina ionóforo, que la tensión de derivación establecido por el Cl - y establecer el gradiente de potencial inicial membrana para el potencial de equilibrio de K + 6,7. Sin tque ionóforo no significativa Cl neta - flujo de salida se produce, ya que se evita mediante la generación de un potencial transmembrana. Los datos se describe cuantitativamente por dos parámetros medibles (Figura 1C): τ, la constante de tiempo de eflujo de Cl -, y f 0, la fracción de liposomas que no contienen una proteína activa. De τ f 0 y el unitaria Cl - velocidad de transporte, la fracción de proteínas activas y la masa molecular del complejo activo se pueden derivar 8. La técnica se ilustra aquí usando proteoliposomas reconstituidos con CLC-EC1, un bien caracterizado de tipo CLC H + / Cl - intercambiador de la estructura y función conocida. Este ensayo se generaliza fácilmente a los canales o transportadores con diferente selectividad iónica o cuya actividad depende de la presencia de voltaje y / o ligandos. Además, este ensayo se puede usar para determinar si las moléculas pequeñas afectan directamente a la proteína reconstituida,para cuantificar los efectos de estos compuestos y cómo composición de la membrana o de los reactivos modificadores de lípidos afectan a la función de los canales y transportadores reconstituidas.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Protocolo
1. Preparación de lípidos
- Alícuota de los lípidos cantidad deseados en un tubo de vidrio transparente. Tu Ves. coli extracto lipídico polar, pero la mayoría de composiciones lipídicas pueden ser utilizados. Si los lípidos están en forma de polvo, ellos resuspender en cloroformo a una concentración de 20 mg / ml. Secar los lípidos a TA bajo N2 gas hasta que todo el disolvente se haya evaporado.
- Resuspender los lípidos en pentano y secar de nuevo un flujo constante de gas N 2 para eliminar los restos sobrantes de cloroformo. Seco hasta que todo el disolvente se haya evaporado. Si bien el secado, gire suavemente el tubo de manera que el lípido se distribuye en una película uniforme que cubre el tercio inferior del tubo en lugar de una formación de una masa densa en la parte inferior.
- Añadir el tampón de reconstitución que contiene detergente (300 mM KCl, 50 mM de ácido cítrico, 25 mM de K 2 HPO 4, pH 4,5, 35 mM CHAPS) para disolver los lípidos. Utilice otros detergentes suaves para este paso si la proteína es poco tolerante a la CHAPS.
- Resuspend los lípidos a la claridad utilizando un aparato de ultrasonidos baño de agua. Sumergir el tubo en el centro del baño de agua sonicador la máxima potencia a corto (30 seg-1 min) con impulsos cortos (30 seg-1 min) pausas. La solución debería quedar claro.
NOTA: El grado final de la claridad lograrse depende de la composición lipídica específico usado. Alguna variación de lote a lote en este paso, incluso entre los lípidos nominalmente idénticos, también es posible. Bruma residual es debido a la dispersión de la luz por las grandes partículas en la suspensión, que se pueden eliminar por centrifugación. - Incubar los lípidos se resuspendieron a temperatura ambiente durante 20-60 min.
2. Proteoliposoma Formación
NOTA: Varias estrategias se puede emplear para insertar la proteína solubilizada con detergente en liposomas. Para CLC-EC1 diálisis funciona bien y por lo tanto es el método de elección 6,9,10.
- Añadir la proteína purificada a la deseada proteína-lípido (P / L) relación (expresada en microgramos o f proteína / mg de lípidos). La selección de la relación P / L depende de la finalidad del experimento.
- Si el objetivo es evaluar la actividad de la proteína de interés, reconstituir a alta P / L's para maximizar la señal, ya que cada liposoma contiene múltiples copias de la proteína. Para cuantificar la actividad y / o la velocidad de transporte unitario de la proteína, reconstituir en un régimen de dilución de Poisson a baja P / L's, de modo que cada vesícula contiene en promedio proteína 1. Vea el paso 7 y Discusión para un análisis más profundo de cuándo utilizar cada régimen.
- Para determinar los valores de P / L óptimas para los diferentes regímenes, realizar una valoración completa de la actividad como una función de la concentración de proteína 8,11-13. Sin embargo, para cualquier proteína para la que el peso molecular (MW, expresado en kDa) de la unidad activa se conocen los siguientes valores P / L se pueden utilizar como guesstimates iniciales:
pg "/>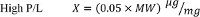
- Cargue la proteína y mezcla de lípidos en un tubo de diálisis pre-humedecida o un casete. Coloque el dispositivo de diálisis en un vaso de precipitados que contiene 500-1,000x el volumen del tampón de reconstitución de lípidos (es decir, 1 L de tampón de 1 ml de la resuspensión de lípidos) bajo agitación suave.
- Cambio búfer 3-4 veces a intervalos de> 3 horas. En cada cambio de solución, lavar la casete / tubo y el vaso de precipitados con agua destilada y llenar el vaso de precipitados con tampón de reconstitución fresco. Incluya 2.1 O / N intervalos para el cambio de solución. El número exacto y la duración de los cambios solución depende de la exacta de lípidos y detergentes utilizados.
- Después de la última etapa, retire los liposomas de la vasija de diálisis, alícuota en tubos y flash les congele en N2 líquido o congelación a -80 ° C.
3. Registro de Configuración
NOTA: La grabación de configuración (Figura 2A) se compone de dos cámaras (cilindros de fondo plano, ~ volumen 3-4 ml), un Cl - (ver más abajo) de electrodo, un medidor de pH con un análogo o salida digital eléctrica, un digitalizador, y un ordenador con un software de adquisición correspondiente.
- Conectar el Cl - electrodo al medidor de pH, la salida del medidor de pH para el digitalizador que está conectado a la computadora. Coloque el electrodo de referencia en una cámara y el cable de recodificación en la otra (Figura 2B).
NOTA: La polaridad de los cables es correcta si? V Cal (ver Paso 6.4 y 7.2) es positiva. - Coloque las cámaras en una placa de agitación con una barra de agitación en la cámara de grabación (Figura 1B). Asegúrese de que la barra de agitación no toque el electrodo.
- Conectar las cámaras utilizando un puente de agar (Figura 2B) (100 mM KCl y 2% de agarosa). Guarde los puentes de agar en 100 mM KCl.
4. Preparación de la Cl - Electrodo
- Tome un electrodo de edad y -eventualmente- que no funciona pH. Romper el recubrimiento de vidrio para revelar completamente los cables de plata.
- Retire cuidadosamente el recubrimiento de los cables de plata usando una hoja de bisturí. Limpie los cables usando copiosas cantidades de H 2 O y EtOH.
- Colocar en una solución saturada de FeCl 3 (o lejía) hasta que los cables están cubiertos con una capa oscura uniforme de AgCl.
5. Preparación de vesículas unilamelares
- La noche antes de los experimentos, se hinchan 1 g de Sephadex G-50 bolas en 15 ml de tampón externo (1 mM KCl, 150 mM de K 2 SO 4, ácido cítrico 25 mM, pH 4,5) con agitación suave (no revuelva) para al menos 3 horas a RT antes de su uso. Cada experimento requiere ~ 3 ml de perlas hinchadas. Mantenga las perlas hinchadas a 4 ° C durante unos días como máximo.
- Mientras que los liposomas están descongelando a temperatura ambiente, se vierte en cada columna ~ 3 ml de hinchadas G-50 perlas. Deje que se sequen por gravedad a RT; esto por lo general toma 1-2 min.
- Preparar vesículas unilamelares por extrusión de los proteoliposomas 11 veces a través de un Mini-Extrusora utilizando un punto de corte 0,4 m de teflón.
- Colocar la columna en un tubo de fondo redondo de plástico. Haga girar las columnas para eliminar el exceso de solución. Centrifugar durante 20-30 segundos a 1400 xg en una centrífuga clínica.
- Desechar el flujo a través, la columna de lugar en un tubo de vidrio de 13 x 100 mm y añadir 100 l de las vesículas extruidos a la columna. Girar la columna durante 1 min a 500 xg en una centrífuga clínica.
- Recoger ~ 200 l de flujo a través que se añadirán a la cámara de grabación en el paso 6.5.
6. Eflujo Medición
- Coloque 2 ml de KCl 100 mM en la cámara (tierra) de referencia y 1,8 ml del tampón externo (1 mM KCl, 150 mM K 2 SO 4, ácido cítrico 25 mM, pH 4,5) a la cámara de grabación. El desequilibrio leve osmótico entre el interiory soluciones externas no afecta
- Inicie el programa de adquisición. Deje que la línea de base se equilibre, esto puede tardar unos minutos.
- Una vez que la señal llega a una línea de base estable (los liposomas están listos y las columnas seco), iniciar la grabación (Figura 3A).
- Añadir 15 l de una solución 10 mM KCl para calibrar el sistema (Figura 2A).
- Añadir liposomas. Un pequeño salto podría ser visible debido a la eliminación incompleta de Cl externa - a partir de los proteoliposomas (Figura 3A). Espere hasta que se estabilice la línea de base.
- Añadir valinomicina (1 l de 1 mg / ml en EtOH) para iniciar el eflujo (Figura 3A).
- Deje que el flujo de salida siga su curso temporal hasta que mesetas (Figura 3A).
- Añadir 40 l de 1,5 M β-octilglucósido (β-OG) preparado en el tampón externo para disolver todos los liposomas (figura 3A). Termine la grabación.
7. Datos Análisis
- Exportar el archivo de rastreo de en un formato ASCII o texto e importarlo al programa de análisis de la elección.
- Mida la tensión en los siguientes puntos (Figura 3A):
Al comienzo de la grabación (V 0);
Después de la adición del pulso de calibración (V cal);
Después de la adición de los liposomas (V lipo);
Al final de el flujo de salida (V fin);
Después de la adición de detergente (V tot);
Los voltajes de línea de base de manera que V 0 = 0. - Use la ecuación de Nernst-Plank para determinar el valor experimental de
 midiendo

Cuando Vol Cal es el volumen del impulso de calibración en l, 1,800 es el volumen de cámara en el comienzo del experimento se expresa en1; l, [Cl] cal / en son el Cl - concentraciones del impulso de calibración y de la memoria intermedia externa en mM y cal? V es el salto en mV medido después del pulso de calibración.
NOTA: Esta determinación empírica de α sirve para tres propósitos: asegura que el sistema responde correctamente, ofrece una medida de la consistencia de la respuesta del instrumento entre los experimentos, así como para comprobar que no se han cometido errores en la fabricación solución. - Calcular las concentraciones de Cl después de cada paso de la siguiente manera:
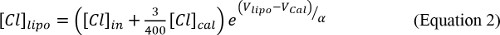


El factor de 3/400 proviene de la dilución del impulso de calibración 15 l en el volumen final de 2.000 l. - Calculcomieron los cambios en [Cl] en cada paso, ΔCl lipo / def / tot.
- Convertir V (t) en Cl (t) con

Determinar directamente los valores [CL] en los puntos críticos y compararlos con los valores calculados como un control interno. - Normalizar la traza para que la lipo Cl rel = 0 y Cl tot rel = 1

- Montar el supuesto tiempo de flujo a la siguiente ecuación:
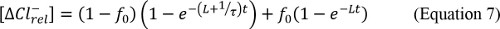
Donde L es la tasa de Cl - fuga que se determina experimentalmente mediante la medición de Cl - flujo de salida a partir de liposomas libres de proteínas preparados en las mismas condiciones y τ es la constante de tiempo del proceso. - Calcular v, la velocidad inicial:

Cuando ΔCl aleta se expresa en milimolar y V es el volumen de la cámara en l. - Calcular la tasa de transporte / conductancia

Donde p es el P / L, MW es el peso molecular del complejo activo expresada en kDa
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Resultados
Se describe un protocolo detallado y robusto para medir Cl - transporte mediado por purificada CLC-ec1, un procariota tipo CLC H + / Cl - intercambiador, reconstituido en liposomas. Una representación esquemática del experimento se muestra en la Figura 3 proteoliposomas reconstituidos con purificada CLC-ec1 y contiene alta Cl interna -. Se sumergen en un baño de solución que contiene bajo Cl -. Bajo estas condiciones netas Cl - flujo de s...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
Hemos descrito un protocolo detallado para medir la Cl - transporte mediado por canales o transportadores reconstituidas en liposomas aniones selectiva purificados. El ejemplo utilizado fue el procariota H + / Cl - Intercambiador CLC-ec1. Sin embargo, la metodología se puede adaptar fácilmente para estudiar canales cerrados por ligandos 12,13,15, 11,12 tensión, o deportivo selectividad diferente aniónico 15,16 sustituyendo el Ag: electrodo AgCl con uno adecuado para...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
Los autores declaran que no tienen intereses financieros contrapuestos.
Agradecimientos
Este trabajo fue apoyado por GM085232 de subvención de los NIH y un premio Irma T. Hirschl/ Monique Weill-Caulier Scholar Award (a A.A.).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Liposomizador, Avanti Polar Lipids Inc. | Avanti Polar Lipids Inc. | 610200 | |
| IEC Centra CL2 Sobremesa | Thermo Scientific | ||
| Orion Research Modelo 701A Medidor | Estos se pueden encontrar en Ebay. | ||
| Sonda de pH no funcional Cualquier sonda | de medidor de pH con cables de plata funcionará. Es necesario quitar el recubrimiento de vidrio/plástico y limpiar los cables. | ||
| Registrador de datos DI-710 Instrumentos | DATAQ | ||
| Software de adquisición WinDAQ | Instrumentos | ||
| Columnas de plástico desechables Pierce, flujo por gravedad, 2 ml | Pierce (Thermo Scientific) | 29922 | |
| KIMAX Tubos de cultivo, desechables, vidrio de borosilicato | Kimble Chase | 73500-13100 | |
| con soporte/bloque | calefactorAvanti Polar Lipids Inc. | Computadora 610000 | |
Referencias
- Kawate, T., Gouaux, E. Fluorescence-detection size-exclusion chromatography for precrystallization screening of integral membrane proteins. Structure. 14, 673-681 (2006).
- Drew, D., et al. GFP-based optimization scheme for the overexpression and purification of eukaryotic membrane proteins in Saccharomyces cerevisiae. Nat Protocols. 3, 784-798 (2008).
- Hattori, M., Hibbs, R. E., Gouaux, E. A fluorescence-detection size-exclusion chromatography-based thermostability assay for membrane protein precrystallization screening. Structure. 20, 1293-1299 (2012).
- Almo, S. C., Love, J. D. Better and faster: improvements and optimization for mammalian recombinant protein production. Curr Opin Struct Biol. 26, 39-43 (2014).
- Xiao, S., Shiloach, J., Betenbaugh, M. J. Engineering cells to improve protein expression. Curr Opin Struct Biol. 26, 32-38 (2014).
- Accardi, A., Miller, C. Secondary active transport mediated by a prokaryotic homologue of CLC Cl- channels. Nature. 427, 803-807 (2004).
- Nguitragool, W., Miller, C. Uncoupling of a CLC Cl-/H+ exchange transporter by polyatomic anions. J. Mol. Biol. 362, 682-690 (2006).
- Walden, M., et al. Uncoupling and turnover in a Cl-/H+ exchange transporter. J. Gen. Physiol. 129, 317-329 (2007).
- Accardi, A., Kolmakova-Partensky, L., Williams, C., Miller, C. Ionic currents mediated by a prokaryotic homologue of CLC Cl- channels. J. Gen. Physiol. 123, 109-119 (2004).
- Basilio, D., Noack, K., Picollo, A., Accardi, A. Conformational changes required for H(+)/Cl(-) exchange mediated by a CLC transporter. Nat Struct Mol Biol. 21, 456-463 (2014).
- Lee, S. Y., Letts, J. A., MacKinnon, R. Functional reconstitution of purified human Hv1 H+ channels. Journal of Molecular Biology. 387, 1055-1060 (2009).
- Terashima, H., Picollo, A., Accardi, A. Purified TMEM16A is sufficient to form Ca2+ activated Cl- channels. Proc Natl Acad Sci U S A. 110, 19354-19359 (2013).
- Malvezzi, M., et al. Ca2+-dependent phospholipid scrambling by a reconstituted TMEM16 ion channel. Nature Communications. 4, 2367(2013).
- Picollo, A., Malvezzi, M., Houtman, J. C., Accardi, A. Basis of substrate binding and conservation of selectivity in the CLC family of channels and transporters. Nat Struct Mol Biol. 16, 1294-1301 (2009).
- Eckford, P. D., Li, C., Ramjeesingh, M., Bear, C. E. Cystic fibrosis transmembrane conductance regulator (CFTR) potentiator VX-770 (ivacaftor) opens the defective channel gate of mutant CFTR in a phosphorylation-dependent but ATP-independent manner. J Biol Chem. 287, 36639-36649 (2012).
- Stockbridge, R. B., et al. Fluoride resistance and transport by riboswitch-controlled CLC antiporters. Proc Natl Acad Sci U S A. 109, 15289-15294 (2012).
- Menon, I., et al. Opsin is a phospholipid flippase. Curr Biol. 21, 149-153 (2011).
- Nimigean, C. M., Miller, C. Na+ block and permeation in a K+ channel of known structure. J Gen Physiol. 120, 323-335 (2002).
- Picollo, A., Xu, Y., Johner, N., Bernèche, S., Accardi, A. Synergistic substrate binding determines the stoichiometry of transport of a prokaryotic H(+)/Cl(-) exchanger. Nat Struct Mol Biol. 19, 525-531 (2012).
- Tsai, M. F., Fang, Y., Miller, C. Sided functions of an arginine-agmatine antiporter oriented in liposomes. Biochemistry. 51, 1577-1585 (2012).
- Heginbotham, L., Kolmakova-Partensky, L., Miller, C. Functional reconstitution of a prokaryotic K+ channel. J Gen Physiol. 111, 741-749 (1998).
- Lundbaek, J. A., Collingwood, S. A., Ingólfsson, H. I., Kapoor, R., Andersen, O. S. Lipid bilayer regulation of membrane protein function: gramicidin channels as molecular force probes. J R Soc Interface. 7, 373-395 (2010).
- Lim, H. H., Stockbridge, R. B., Miller, C. Fluoride-dependent interruption of the transport cycle of a CLC Cl(-)/H(+) antiporter. Nat Chem Biol. 9, 712-715 (2013).
- Stockbridge, R. B., Robertson, J. L., Kolmakova-Partensky, L., Miller, C. A family of fluoride-specific ion channels with dual-topology architecture. Elife. 2, e01084(2013).
- Nimigean, C., Shane, T., Miller, C. A cyclic nucleotide modulated prokaryotic K+ channel. J Gen Physiol. 124, 7(2004).
- Brohawn, S. G., del Mármol,, J,, MacKinnon, R. Crystal Structure of the Human K2P TRAAK, a Lipid- and Mechano-Sensitive K+ Ion Channel. Science. 335, 436-441 (2012).
- Jayaram, H., Robertson, J. L., Wu, F., Williams, C., Miller, C. Structure of a slow CLC Cl-/H+ antiporter from a cyanobacterium. Biochemistry. 50, 788-794 (2011).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
