Un modelo ideal para estudiar la biología de las células madre adultas es el folículo piloso del ratón. En este trabajo se presenta un protocolo para aislar diferentes poblaciones de células madre de folículos pilosos y queratinocitos epidérmicos, empleando la digestión enzimática de la piel dorsal del ratón seguida de un análisis FACS.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de método
El aislamiento de células madre del folículo piloso y queratinocitos epidérmicos de la piel dorsal de ratón
En este artículo
Resumen
Resumen
El folículo piloso (HF) es un sistema ideal para estudiar la biología y la regulación de las células madre adultas (SCs). Este miniórgano dinámico es repuesto por distintos grupos de SCs, que se encuentran en la porción permanente del HF, una región conocida como la protuberancia. Estas SC de protuberancia multipotente se identificaron inicialmente como células retenedoras de etiquetas de ciclo lento; sin embargo, su aislamiento se ha hecho posible después de la identificación de marcadores celulares específicos, como CD34 y queratina 15 (K15). Aquí, describimos un método robusto para aislar SC de protuberancia y queratinocitos epidérmicos de HF de ratón utilizando la tecnología de clasificación de células activadas por fluorescencia (FACS). Las SC aisladas de folículos pilosos (HFSC) se pueden utilizar en varios modelos de injerto in vivo y son un valioso modelo in vitro para estudiar los mecanismos que gobiernan la multipotencia, la quiescencia y la activación.
Introducción
Las células madre adultas (SCS) son esenciales para el mantenimiento de la homeostasis del tejido mediante la sustitución de las células que mueren y la reparación de tejidos dañados después de la lesión. Estos SCs se definen por su capacidad para someterse a continua auto-renovación y de diferenciarse en diferentes linajes de células de 1-3. Los sistemas más estudiados, que son dependientes de SCs adultos para su reposición, incluyen el sistema hematopoyético, el intestino y el 1,2,4 piel.
Durante la embriogénesis, la piel comienza como una sola capa de células epidérmicas. Morfogénesis del folículo piloso (HF) se inicia cuando las células mesenquimales pueblan la piel y forman una dermis de colágeno subyacentes 5. Especializado células mesenquimales, que luego constituyen la papila dérmica (DP), organizan directamente debajo de la capa epidérmica y estimulan el epitelio para formar plácodas pelo que empiezan a crecer hacia abajo 6. Altamente la proliferación de células de la matriz, situadas en la parte inferior de la HF,envolver estas células mesenquimales y formar el bulbo del cabello, mientras que la capa interior comienza a diferenciarse en cilindros concéntricos para formar el eje del pelo (HS) y la vaina circundante interior raíz (IRS) 2,3.
En la vida postnatal la epidermis de la piel se compone de tres compartimentos: la epidermis interfolicular (IFE), la glándula sebácea (SG) y el HF. En contraste con el IFE y SG que están en un constante estado de homeostasis, el HF es una dinámica mini-órgano que se somete a ciclos continuos de crecimiento (anágena), destrucción (catágena) y el resto (telógeno) 4,7. Las células madre del folículo piloso (HFSCs) que el combustible este ciclo perpetuo, residen en un nicho especializado dentro de la HF conocida como la protuberancia 4. Durante la fase anágena los HFSCs salen de la protuberancia, a raíz de las señales de activación de la DP, comenzar la proliferación y descienden hacia abajo creando así un largo camino lineal de células conocidas como la vaina externa de la raíz (ORS) 8-10. Las células de la matriz, querodear la DP en la base de la HF, rápido ciclo y migrar hacia arriba someterse a la diferenciación terminal generando así el SA y el IRS 10 (Figura 1). La duración de la fase anágena determina la longitud del cabello y depende de la capacidad de proliferación y diferenciación de las células de la matriz 6. Cuando el HF entra en la fase catágena, las células de la matriz de amplificación de tránsito en el alto el bulbo proliferen, sufren apoptosis y regresión por completo mientras tira de la DP hacia arriba hasta que llega a la parte no cíclica del HF 8,11. Durante este retracción el HF forma una estructura temporal conocido como la hebra epitelial, que es característico de la fase catágena, y contiene muchas células apoptóticas. En ratones, catágena dura entre 3-4 días y es altamente sincronizada en el primer ciclo del pelo. Cuando el HF alcanza telogen todos HFSCs convierten en reposo. Las distintas etapas del ciclo de HF también se caracterizan por cambios en el color de la piel del ratón debido a melanin producción. Los cambios en la piel de negro durante la fase anágena a gris oscuro durante catágena a rosa durante el telógeno 6,7,12,13.
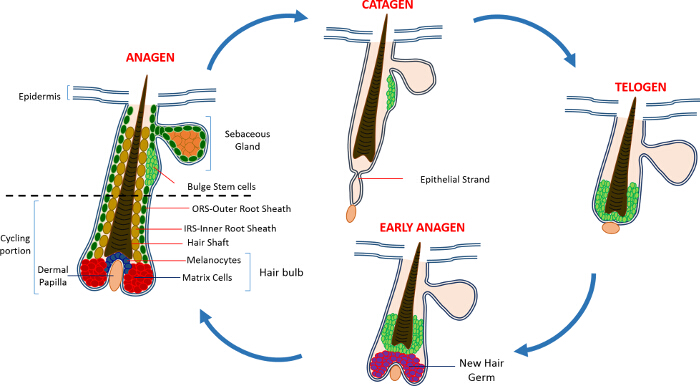
Figura 1: El ciclo del folículo piloso. El HF se compone de una parte superior permanente y una porción de ciclismo más baja constante remodelación que se somete a ciclos continuos de rápido crecimiento (anágena), destrucción (catágena) y una fase de relativa inactividad o reposo (telógeno). Por favor, haga clic aquí para ver una mayor versión de esta figura.
El SCS manteniendo el HF se identificaron inicialmente usando experimentos de persecución, con timidina tritiada, que revelaron una población de células de retención de la etiqueta de ciclo lento (LRC) que residían en la región permanente del HF justo debajo de la SG 14. Los avances en HFSCcaracterización reveló un pequeño número de marcadores que se pueden utilizar para identificar y aislar SCs específicos del nicho HF 15. Tal vez el mejor marcador para el enriquecimiento de HFSCs es CD34, un marcador de superficie celular también identificado como un marcador SC hematopoyético en los seres humanos 16. Dentro de este CD34 + poblaciones dos poblaciones distintas también se han aislado en base a la expresión de la integrina α6 2. Otro marcador es la queratina 15 (K15), que está altamente expresado en la región protuberancia, co-localiza con la expresión de CD34 y un promotor K15 se utiliza para la orientación y el aislamiento de HFSCs en animales transgénicos 15,17-19. En la última década varias otras poblaciones distintas de HFSCs y células progenitoras también se han reportado para residir dentro de la HF 17,20-27.
Una característica interesante adicional de HFSCs es su contribución a la reparación de la piel. En condiciones normales HFSCs reponer el HF y no participan en la homeostasis del IFE. Howeembargo, en respuesta a heridas, estas células salir de su nicho SC y ayuda en la repoblación del IFE 9. Recientemente hemos demostrado que los ratones que eliminan de la pantalla gen Sept4 / arte pro-apoptótica un mayor número de CD34, K15 y Sox9 + HFSCs, que demuestran una resistencia a la apoptosis. HFSCs fueron aisladas de Sept4 / ARTE - / - pieles dorsales utilizando células activadas por fluorescencia (FACS) y no había más que un aumento de dos veces en el número de células CD34 + y K15 + HFSCs. Estos Sept4 / ARTE - / - HFSCs se expandieron in vitro y no sólo dio lugar a más colonias, pero también fueron capaces de resistir las condiciones más duras en comparación con los controles 28.
Como resultado de tener un mayor número de HFSCs, Sept4 / ARTS - / - ratones curados significativamente más rápido en respuesta a lesiones escisión de la piel. Sorprendentemente, Sept4 / arte - / - ratones displayeda gran número de FCs regeneradas a partir de la herida, y cicatrices significativamente más pequeñas. Además, los ratones eliminados de XIAP (ligada al X inhibidor de la apoptosis), el objetivo bioquímica de ARTE, demostraron alteración de la cicatrización 28.
Nuestros resultados y el trabajo realizado en otros laboratorios han demostrado que HFSCs sirven como un modelo ideal para el estudio de la biología y la función de SCs adultos. Aquí, se describe la metodología para el enriquecimiento y aislamiento de HFSCs y queratinocitos epidérmicos en base a la expresión de cuatro marcadores: α6 integrina; β1 integrina; Sca-1 (un marcador de queratinocitos epidérmicos) y CD34. Aislamiento similar de K15 + HFSCs también se puede realizar utilizando el ratón K15 reportero GFP-19.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Protocolo
Este estudio se llevó a cabo en estricta conformidad con las recomendaciones descritas en la Guía para el Cuidado y Uso de Animales de Laboratorio del Ministerio de Salud de Israel. Todos los animales se trataron según el protocolo de cuidado animal institucional aprobado la IL-02302 a 2015 del Instituto Tecnológico de Israel.
1. Preparación Experimental
- Preparación de quelado de suero bovino fetal
Nota: Las células epiteliales son muy sensibles al calcio lo que es crucial para controlar la exposición de estas células a calcio. Con el fin de asegurar que las células no están expuestos al calcio durante el proceso de aislamiento de quelación se utiliza para eliminar cualquier calcio residual desde el suero bovino fetal usado para la preparación de tampón de tinción 29. El siguiente protocolo se prepara aproximadamente 1 L de calcio libre de suero bovino fetal requerido para la preparación tampón de tinción FACS.- Añadir 400 g de materia seca quelante, por ejemplo,., Chelex, en un vaso de precipitados de 4 litros y podrás H2O destilada hasta un volumen total de 4 L. cubierta y revolver continuamente con un agitador magnético.
- Ajustar el pH a 7,4 usando 10 N solución de HCl mientras se agita. Continuar la agitación durante 20 min y volver a ajustar el pH según sea necesario hasta que el pH se mantiene estable durante más de 20 min.
- Incubar vaso de precipitados a 4 ° C durante la noche para permitir que el material quelante para formar un sedimento compacto. Con cuidado, aspirado de H2O y añadir H 2 O destilada fresca a un volumen total de 4 L.
- Repita el ajuste del pH como en el paso 1.1.2.
- Colocar el vaso de precipitados a 4 ° C durante 1 hora para permitir que el material quelante para formar un sedimento compacto. Con cuidado, aspirado de H2O
- Poco a poco agregue dos botellas de 500 ml de suero bovino fetal al material quelante. Se agita lentamente a 4 ° C durante 1 hora asegurando que el ajuste de la velocidad no produce burbujas.
- Colocar el vaso de precipitados a 4 ° C durante 1 hora para permitir que el material quelante para formar una imagen de obsequioactuar pellet.
- Transferir cuidadosamente el suero en botella de vidrio de 1 litro y se filtra a través de un filtro superior de la botella en condiciones estériles. Almacenar el suero quelado a -20 ° C o usar inmediatamente.
- Preparación de tinción Buffer
- Preparar 100 ml de 3% quelado FBS en PBS sin Ca 2+ y Mg 2+ y mantener en hielo.
2. Aislamiento de los folículos pilosos de la epidermis para adultos
- Anestesiar a los ratones utilizando 5% de isoflurano en una cabina de inducción. El protocolo descrito aquí fue optimizada utilizando ratones de 50-80 días que están en la fase telógena del ciclo de HF.
- La eutanasia a los ratones de acuerdo con los procedimientos estándar de laboratorio. Aquí, la eutanasia a los ratones utilizando CO 2 sobredosis en una cámara de eutanasia.
- Afeitarse todo el pelo de la piel dorsal usando una maquinilla eléctrica. Evitar la cabeza y las extremidades. Mantener las máquinas de cortar lo más cerca posible a la piel. No dañar la piel y la capa subcutánea.
- Cuando se quita todo el pelo, usar 70% de etanol para eliminar cualquier residuo del cabello y para la desinfección de la piel dorsal.
- Coloca el ratón sobre una almohadilla de disección, y el uso de fórceps tire hacia arriba de la piel cerca de la cola y hacer un pequeño corte con unas tijeras. Cortar toda la piel dorsal en una dirección posterior-anterior cortando con cuidado de la piel y la separa de la fascia. Evitar daños en la capa subcutánea.
- Colocar la piel sobre una estera de disección, lado del pelo hacia abajo, y de definir dos bordes adyacentes de la piel para fijar en su lugar. raspar suavemente la grasa, usando un escalpelo romo hasta que la dermis es clara y ordenada.
Nota: Cuando el raspado de la grasa, utilizar pinzas curvas para aplicar una presión suave sobre la piel. Aplique presión sobre la piel usando el lado curvo del fórceps. Esto evitará que la piel se desgarre. - Coloque la piel, la dermis hacia abajo, en 100 mm placa de cultivo estéril, y estirar la piel para asegurarse de que no hay pliegues. Añadir 10 ml de PBS sin Ca 2+ 2 + y Mg (PBS -) a la placa de cultivo y enderezar la piel si es necesario.
- Aspirar el PBS y añadir 10 ml de tripsina al 0,25%. Asegúrese de que la piel está desplegado y está flotando libremente. Incubar una pieza de piel por cada 10 ml de 0,25% de tripsina.
- Incubar las muestras a 37 ° C durante 30 a 120 min o a 4 ° C durante la noche.
3. Preparación de la suspensión de células individuales de los folículos pilosos
- Raspe todo el pelo de la piel con pinzas curvas y un escalpelo, en una anterior a la dirección posterior. Mantener la piel en su lugar con el lado curvo de fórceps y utilizar el bisturí para raspar el cabello.
Nota: Raspar el pelo en la solución de tripsina añadido en el paso 2.8. Comience en la cola y seguir la dirección del crecimiento del pelo. Raspar contra la dirección del crecimiento del pelo se traducirá en una pérdida sustancial de los fondos de cobertura y reducción en el rendimiento de la célula. FCs tienden a adherirse entre juntos y formar pequeños grupos; con el fin de reducir THtamaño de correo de grumos HF tratar de raspar un área pequeña a la vez. - La transferencia de la piel sin pelo a la nueva placa de cultivo y añadir 10 ml de PBS - para evitar que se seque. Inspeccionar la piel y raspar cualquier pelo restante.
- Derribar los fondos de cobertura utilizando un bisturí y unas pinzas hasta que se obtiene una suspensión de HF. Vigorosamente la suspensión se tritura usando HF 10 ml pipeta durante unos minutos para romper todas las matas de pelo.
Nota: Realizar todos los pasos siguientes en el hielo. - Transferir la suspensión de la IC en pre-marcado con tubo de 50 ml.
- Aspirar el PBS - de la piel y lo utilizan para enjuagar la placa de cultivo celular que contenía la suspensión HF; transferir al tubo de 50 ml.
- Lavado
- Filtrar la suspensión mediante el paso a través de un filtro de células de 70 micras montado sobre un tubo de 50 ml. Lavar el tubo de 50 ml inicial y el filtro con 10 ml de tampón de tinción (PBS - con 3% quelado FBS).
- Filtrar la suspensión pasandoa través de 40 micras colador celular montado sobre un tubo de 50 ml. Lavar el tubo con 5-10 ml de tampón de tinción para asegurar que todas las células han sido transferidos al nuevo tubo. Mantener la suspensión en hielo hasta que todos los animales han sido procesados.
- Se centrifuga durante 15 min a 300 xga 4 ° C. sobrenadante cuidadosamente aspirado sin perturbar el sedimento y resuspender pellet en 5 ml de tampón de tinción.
- Se centrifuga durante 5 minutos a 300 xga 4 ° C. aspirar cuidadosamente el sobrenadante y resuspender el sedimento celular en 800 l de tampón de tinción.
Nota: Los volúmenes especificados anteriormente es suficiente para la tinción de las células derivadas de dos ratones adultos.
- Suspensión de transferencia en tubos FACS Pre-etiquetados.
- Para tubos de controles, tome 25-50 l de suspensión celular (o cualquier izquierda residual de la suspensión celular) y completar hasta un volumen total de 300 l con tampón de tinción.
Nota: Preparar los tubos de control (volumen total 300 l) para teñir (sin anticuerpoy no DAPI); Sólo DAPI; Integrina β1; Integrina α6; Sca-1; CD34.
- Para tubos de controles, tome 25-50 l de suspensión celular (o cualquier izquierda residual de la suspensión celular) y completar hasta un volumen total de 300 l con tampón de tinción.
- Añadir los anticuerpos primarios y DAPI (véase el cuadro Materiales para las diluciones apropiadas) a las concentraciones deseadas al tubo apropiado. flick suavemente los tubos para mezclar la suspensión de células. Retorno sobre hielo y cubrir con papel de aluminio para protegerlo de la luz.
- Incubar durante 30 min en hielo y dé golpecitos en los tubos cada 10 minutos para asegurar la células se mantienen en suspensión.
- Lavar las células por llenar cada tubo FACS con tampón de tinción (aproximadamente 4 ml por tubo); centrifugar durante 5 minutos a 300 xga 4 ° C.
- aspirar cuidadosamente el sobrenadante y resuspender el sedimento celular en 800 l de tampón de tinción.
- Transferir la suspensión de células en un tubo de FACS con tapas de filtro de células para asegurar suspensión de células individuales.
4. Análisis de Citometría de Flujo
- Proceder a la clasificación celular inmediatamente usando un citómetro de flujo con filtros adecuados para signadetección l. Utilice 405 nm violeta (para mediciones de DAPI), 488 nm azul (para mediciones de FSC, SSC, PE, PE-Cy7 y FITC) y 633 nm (láser rojo para la excitación de APC)
Nota: Asegúrese de que el instrumento está grabando de detectores para los tres canales fluorescentes. - puertas de fluorescencia encomendadas a partir de las muestras y la compensación no teñidas de solapamiento espectral utilizando controles manchadas individuales.
Nota: Utilice los controles manchadas individuales para ajustar la compensación entre los canales con el fin de eliminar cualquier superposición de las señales fluorescentes. ajuste de compensación dependerá del clasificador FACS utilizado. - Creados puertas primarios basados en DAPI para excluir las células muertas.
- Ajustar el gráfico de dispersión (SSC-A frente a FSC-A) para seleccionar los eventos singlete.
- Configurar el FSC y SSC altura y parámetros de ancho de eliminar de dobletes y discriminar los eventos singlete.
- Puerta de células con alta expresión α6 y β1 y desde esta población de células de la puerta, ya sea con CD34 alta expresión o Sca1 alta expresión.
- Ordenar las células en un tubo de FACS pre-marcado.
Nota: Dos poblaciones generales de células pueden ser aisladas; α6 + / β1 + / CD34 + / Sca-1 - α6 y + / + β1 / Sca-1 + / CD34 -. Las células clasificadas deben mantenerse en hielo en todo momento hasta que se utilizan aplicaciones posteriores tales como el cultivo de células o el aislamiento de ARN
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Resultados
Este protocolo describe en detalle el enriquecimiento y el aislamiento de dos tipos de poblaciones:. Protuberancia SC y queratinocitos epidérmicos La figura 2 ilustra las principales etapas del protocolo. Utilizando la piel dorsal retirado de la parte posterior de ratones de 8 semanas, hemos enriquecido SC bulto con el marcador CD34, que sólo se expresa en HFSCs; y Sca-1, que las etiquetas de los queratinocitos epidérmicos. La figura 3 muestra diferentes...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
El protocolo descrito aquí está bien establecido para aislar HFSCs de la piel dorsal de ratones adultos pero se puede aplicar igualmente para el aislamiento de otras poblaciones dentro de la estructura de HF, basado en la selección de marcadores 2,16,23,28,29. Este método es especialmente ventajoso sobre otros métodos de aislamiento de células, tales como la disociación de tejidos, en que un tipo celular específico se puede seleccionar y se cosecha a partir de una mezcla de poblaciones de células heterogéneas...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
Los autores no tienen nada que declarar
Agradecimientos
Este trabajo fue financiado en parte por la subvención de los NIH RO1GM60124 (a H.S.). H.S. es investigador del Instituto Médico Howard Hughes. Y.F. cuenta con el apoyo de la Cátedra Deloro para el Avance Profesional y la Fundación Alemana Israelí (I-2381-412.13/2015). D.S. cuenta con el apoyo de la beca postdoctoral Coleman-Cohen.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Isoflurano | Cuidados críticos primarios | 66794-017-10 | |
| Dióxido de carbono | - | - | |
| Electro Afeitadora | Oster | Golden A5 | de cualquier otra empresa podría usarse |
| 70% de etanol | Gadot Lab | 830000051 | 96% de ehtanol diluido con agua destilada |
| Estera | pueden usar herramientas de disección de cualquier proveedor | ||
| Pinzas | Dumont | 11251-10 | Se pueden usar foreceps de cualquier otra compañía |
| Tijeras | Dumont | 14094-11 | Se pueden usar tijeras de cualquier otra compañía |
| Agujas/Alfileres | - | - | |
| Bisturí | Albion | 10 | Asegúrese de que el bisturí tenga un extremo romo |
| Plato de cultivo de tejidos 60 mm x 15 mm | Sigma-Aldrich | CLS430166 | |
| PBS-PBS | interno sin Calcio y Magnesio | ||
| 0.25% Tripsina/EDTA | Industrias biológicas | 03-050-1A | La tripsina obtenida de una empresa diferente puede tener una actividad diferente y la duración de la digestión de la tripsina debe ajustarse en consecuencia |
| Pipetas 10 ml | Sigma-Aldrich | Corning, 4488 | |
| Hielo | - | -50 | |
| centrífuga estériles | Minplast Ein-shemer | 35050-43 | |
| 70 µ m Filtro de celdas | Fisher | 22362548 | |
| 40 µ m Filtro de células | Fisher | 22362549 | |
| Tampón | de tinción-Centrífuga | ||
| Eppendorf 5804 R | 5805 000.017 | ||
| Tubos FACS con tapas de filtro de células | Halcón | ||
| Tubos FACS | Halcón | ||
| Integrina y beta; 1 | eBioscience | 25-0291 | 1:400 |
| Integrina y alfa; 6 | eBioscience | 15-0495 | 1:600 |
| Sca I | eBioscience | 11-5981 | 1:200 |
| CD34 | eBioscience | 9011-0349 | 1:300 |
| DAPI | Sigma-Aldrich | D9542 | 50 ng/ml |
| Seco Chelex | BioRad | 142-2842 | |
| Vaso de precipitados | Pyrex-Destilado | ||
| H2O | - | - | |
| Barra de agitación | - | - | |
| NHCl | BioLab | 1903059 | |
| Suero fetal bovino (FBS) | Beit Haemek Biological Industries | 400718 | FBS obtenido de una empresa diferente se puede utilizar |
| Botella de vidrio de 1 | L Ilmabor | Boro 3.3 | |
| Filtro de tapa de botella | Autofil | 1102-RLS |
Referencias
- Wagers, A. J., Weissman, I. L. Plasticity of adult stem cells. Cell. 116, 639-648 (2004).
- Blanpain, C., Lowry, W. E., Geoghegan, A., Polak, L., Fuchs, E. Self-renewal, multipotency, and the existence of two cell populations within an epithelial stem cell niche. Cell. 118, 635-648 (2004).
- Fuchs, E. Scratching the surface of skin development. Nature. 445, 834-842 (2007).
- Hsu, Y. C., Fuchs, E. A family business: stem cell progeny join the niche to regulate homeostasis. Nat Rev Mol Cell Biol. 13, 103-114 (2012).
- Blanpain, C., Fuchs, E. Epidermal homeostasis: a balancing act of stem cells in the skin. Nat Rev Mol Cell Biol. 10, 207-217 (2009).
- Alonso, L., Fuchs, E. The hair cycle. J Cell Sci. 119, 391-393 (2006).
- Muller-Rover, S., et al. A comprehensive guide for the accurate classification of murine hair follicles in distinct hair cycle stages. J Invest Dermatol. 117, 3-15 (2001).
- Zhang, Y. V., Cheong, J., Ciapurin, N., McDermitt, D. J., Tumbar, T. Distinct self-renewal and differentiation phases in the niche of infrequently dividing hair follicle stem cells. Cell Stem Cell. 5, 267-278 (2009).
- Ito, M., et al. Stem cells in the hair follicle bulge contribute to wound repair but not to homeostasis of the epidermis. Nat Med. 11, 1351-1354 (2005).
- Hsu, Y. C., Pasolli, H. A., Fuchs, E. Dynamics between stem cells, niche, and progeny in the hair follicle. Cell. 144, 92-105 (2011).
- Fuchs, E. The tortoise and the hair: slow-cycling cells in the stem cell race. Cell. 137, 811-819 (2009).
- Plikus, M. V., Chuong, C. M. Complex hair cycle domain patterns and regenerative hair waves in living rodents. J Invest Dermatol. 128, 1071-1080 (2008).
- Ito, M., Kizawa, K., Hamada, K., Cotsarelis, G. Hair follicle stem cells in the lower bulge form the secondary germ, a biochemically distinct but functionally equivalent progenitor cell population, at the termination of catagen. Differentiation. 72, 548-557 (2004).
- Cotsarelis, G., Sun, T. T., Lavker, R. M. Label-retaining cells reside in the bulge area of pilosebaceous unit: implications for follicular stem cells, hair cycle, and skin carcinogenesis. Cell. 61, 1329-1337 (1990).
- Cotsarelis, G. Epithelial stem cells: a folliculocentric view. J Invest Dermatol. 126, 1459-1468 (2006).
- Trempus, C. S., et al. Enrichment for living murine keratinocytes from the hair follicle bulge with the cell surface marker CD34. J Invest Dermatol. 120, 501-511 (2003).
- Morris, R. J., et al. Capturing and profiling adult hair follicle stem cells. Nat Biotechnol. 22, 411-417 (2004).
- Lyle, S., et al. The C8/144B monoclonal antibody recognizes cytokeratin 15 and defines the location of human hair follicle stem cells. J Cell Sci. 111 (Pt 21), 3179-3188 (1998).
- Liu, Y., Lyle, S., Yang, Z., Cotsarelis, G. Keratin 15 promoter targets putative epithelial stem cells in the hair follicle bulge. J Invest Dermatol. 121, 963-968 (2003).
- Vidal, V. P., et al. Sox9 is essential for outer root sheath differentiation and the formation of the hair stem cell compartment. Curr Biol. 15, 1340-1351 (2005).
- Snippert, H. J., et al. Lgr6 marks stem cells in the hair follicle that generate all cell lineages of the skin. Science. 327, 1385-1389 (2010).
- Nijhof, J. G., et al. The cell-surface marker MTS24 identifies a novel population of follicular keratinocytes with characteristics of progenitor cells. Development. 133, 3027-3037 (2006).
- Jensen, U. B., et al. A distinct population of clonogenic and multipotent murine follicular keratinocytes residing in the upper isthmus. J Cell Sci. 121, 609-617 (2008).
- Jensen, K. B., et al. Lrig1 expression defines a distinct multipotent stem cell population in mammalian epidermis. Cell Stem Cell. 4, 427-439 (2009).
- Jaks, V., et al. Lgr5 marks cycling, yet long-lived, hair follicle stem cells. Nat Genet. 40, 1291-1299 (2008).
- Horsley, V., et al. Blimp1 defines a progenitor population that governs cellular input to the sebaceous gland. Cell. 126, 597-609 (2006).
- Goldstein, J., Horsley, V. Home sweet home: skin stem cell niches. Cell Mol Life Sci. 69, 2573-2582 (2012).
- Fuchs, Y., et al. Sept4/ARTS regulates stem cell apoptosis and skin regeneration. Science. 341, 286-289 (2013).
- Nowak, J. A., Fuchs, E. Isolation and culture of epithelial stem cells. Methods Mol Biol. 482, 215-232 (2009).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
